Niniejszy protokół umożliwia niezawodną izolację żywych kardiomiocytów komór komór z krótkowiecznego killifisha rocznego, Nothobranchius furzeri, z różnych grup wiekowych, dostarczając komórek odpowiednich do badań metodą patch-clamp w konfiguracji whole-cell w celu analizy przebudowy serca związanej z wiekiem.
Artykuł metodologiczny
Izolacja kardiomiocytów komorowych z rocznego killifisha Nothobranchius furzeri do rejestracji metodą patch-clamp w konfiguracji whole-cell
W tym artykule
Podsumowanie
Streszczenie
Izolowane pracujące kardiomiocyty pozostają standardowym podejściem w badaniu elektrofizjologii serca. Preparaty jednokomórkowe umożliwiają bezpośrednią analizę i precyzyjny pomiar prądów jonowych oraz potencjałów czynnościowych bez złożoności strukturalnej nienaruszonej tkanki serca. Nothobranchius furzeri (kilifish afrykański) szybko stał się czołowym organizmem modelowym w badaniach gerontologicznych ze względu na wyjątkowo krótki czas życia oraz podobieństwa w mechanizmach starzenia do ssaków, w tym ludzi. Gatunek ten łączy praktyczne zalety, takie jak mały rozmiar, niedroga hodowla i szybki cykl życiowy, z istotnością translacyjną. N. furzeri wykazuje zależny od wieku spadek aktywności lokomotorycznej, funkcji poznawczych i pracy narządów, akumulację molekularnych cech starzenia oraz wrażliwość na leczenie farmakologiczne modulujące długość życia i okres zdrowia. Jednak badanie funkcjonalnego regresu starzejącego się serca wymaga niezawodnej metody pozyskiwania wysokiej jakości, żywotnych komórek, odpowiednich do wymagających technik jednokomórkowych. Niniejsze badanie zoptymalizowało wcześniej opisany protokół izolacji kardiomiocytów Danio rerio, aby zapewnić spójne odzyskiwanie zdrowych, pracujących miocytów zarówno od młodych, jak i starzejących się osobników N. furzeri. Niniejszy protokół opisuje izolację kardiomiocytów komór komór serca N. furzeri zoptymalizowaną specjalnie pod kątem techniki patch clamp w konfiguracji whole-cell. Artykuł demonstruje, jak efektywnie wyciąć serce, przeprowadzić enzymatyczną dysocjację mięśnia sercowego poprzez perfuzję wsteczną oraz przechowywać izolowane kardiomiocyty. Omówiono dobór enzymów niezbędnych do trawienia macierzy zewnątrzkomórkowej i połączeń międzykomórkowych bez naruszania struktury kanałów jonowych. Świeżo izolowane kardiomiocyty nadają się do wysokorozdzielczych analiz elektrofizjologicznych, w tym do rejestracji potencjałów czynnościowych i pomiarów głównych przywstępnych i odpływowych prądów jonowych w różnych grupach wiekowych. Artykuł porusza również kwestie izolacji kardiomiocytów u ryb, które różnią się od standardowych procedur izolacji u ssaków.
Wprowadzenie
Zależny od wieku spadek funkcji serca jest napędzany przez przebudowę strukturalną, molekularną i elektrofizjologiczną, co łącznie upośledza rezerwę kardiologiczną i zwiększa podatność na arytmogenezę1. Aby zrozumieć mechanizmy sterujące starzeniem się serca na poziomie komórkowym, niezbędnym narzędziem eksperymentalnym jest technika patch clamp w konfiguracji whole-cell. Umożliwia ona bezpośrednią, ilościową ocenę poszczególnych jonowych prądów błonowych i ich kinetyki, a także potencjałów czynnościowych (AP), dostarczając wglądu w specyficzne zmiany prądów jonowych, które leżą u podstaw związanej z wiekiem dysfunkcji mięśnia sercowego. Badanie tych mechanizmów wymaga wiarygodnych kręgowcowych modeli starzenia się serca. W ostatnich latach afrykański killifish (Nothobranchius furzeri) stał się obiecującym modelem do badania starzenia się serca ze względu na naturalnie krótki czas życia2,3. Wstępne badania molekularne i histologiczne ujawniły podobieństwa w procesach starzenia zachodzących u Nothobranchius i ssaków. Badania przeprowadzone przez inne grupy wykazały, że N. furzeri wykazuje kluczowe cechy starzenia się serca u ssaków, w tym skracanie telomerów, zmniejszoną zawartość mtDNA i ekspresję enzymów przeciwutleniających, zmiany strukturalne i elektrofizjologiczne mięśnia sercowego oraz akumulację markerów starzenia, takich jak lipofuscyna i podwyższona aktywność β-galaktozydazy4,5,6.
Jednakże, pomimo rosnącego znaczenia N. furzeri w badaniach sercowo-naczyniowych, szczegółowa charakterystyka elektrofizjologiczna na poziomie pojedynczej komórki jest ograniczona przez utrzymujące się wyzwania techniczne. Uzyskanie wysokiej jakości zapisów metodą patch clamp zależy ściśle od wyizolowania funkcjonalnych kardiomiocytów, które zachowują integralność strukturalną, nienaruszone kanały jonowe oraz morfologię bez cech hiperkontrakcji. Choć protokoły dysocjacji enzymatycznej kardiomiocytów ssaków są dobrze opracowane, izolacja żywotnych miocytów serca z serc ryb pozostaje trudna ze względu na niemammalną architekturę tkanki, stosunkowo niską wydajność komórkową oraz mały rozmiar serca7,8. Głównymi ograniczeniami tej procedury są trudności techniczne związane z prawidłowym kaniulowaniem serca oraz wrażliwość preparatu na niewielkie różnice w traktowaniu enzymatycznym. Jakiekolwiek zaburzenie przepływu perfuzyjnego prowadzi do wyraźnego pogorszenia zarówno jakości, jak i wydajności komórek. Ponadto nawet niewielkie odchylenia w stężeniu enzymu lub czasie trawienia mogą znacząco wpłynąć na żywotność komórek i jakość późniejszych zapisów elektrofizjologicznych. Należy również wziąć pod uwagę wiek zwierzęcia. Chociaż serca starszych ryb wymagają nieco wyższych stężeń enzymów i dłuższego czasu trawienia ze względu na zwiększoną zawartość włókien kolagenowych i fibroblastów2, ogólne zasady izolacji pozostają niezmienne, a stężenia enzymów i czasy ekspozycji różnią się w granicach 10% w celu uzyskania optymalnych wyników.
W związku z tym szczegółowy, wysoce powtarzalny protokół izolacji enzymatycznej jest warunkiem koniecznym dla rozwoju badań elektrofizjologicznych nad starzeniem się serca w modelach rybich. Pomimo pewnych podobieństw morfologicznych w wymiarach liniowych, izolacja kardiomiocytów z N. furzeri wymaga kilku istotnych modyfikacji w porównaniu z protokołem dla Danio rerio. Klasyczna procedura izolacji komórek z serca danio pręgowanego polega na zanurzeniu nienaruszonego serca w roztworze enzymatycznym przez stosunkowo długi czas7,8,9. Chociaż podejście to pozwala uzyskać żywe komórki, może być zbyt agresywne dla serca Nothobranchius i prowadzić do nadmiernego trawienia enzymatycznego. Przedstawiona metoda zapewnia stabilny przepływ roztworów bezpośrednio do jam serca, co umożliwia bardziej efektywne wypłukanie krwi z serca oraz precyzyjniejszą i łagodniejszą obróbkę enzymatyczną. W niniejszym artykule opisano udoskonaloną metodologię izolacji żywych, nadających się do techniki patch clamp miocytów sercowych z N. furzeri, uwzględniając kluczowe korekty niezbędne do zapewnienia wysokiej jakości zapisów elektrofizjologicznych.
Protokół
Badanie przeprowadzono na rybach N. furzeri szczepu GRZ. Do rejestracji potencjałów czynnościowych i prądów jonowych w izolowanych kardiomiocytach komorowych wykorzystano młode, osiągające dojrzałość płciową ryby obu płci w wieku 1,5–2 miesięcy (N = 19, masa ciała = 0.71 g ± 0.36 g). Ryby zostały wyhodowane i udostępnione przez Instytut Ekologii i Ewolucji im. A.N. Severtsova Rosyjskiej Akademii Nauk. Zwierzęta utrzymywano w akwariach w temperaturze 24 °C ± 1 °C przy 12-godzinnym cyklu światło/ciemność w zbiornikach o pojemności 60–100 L. Zagęszczenie zwierząt wynosiło 10–20 osobników na zbiornik, zgodnie z wcześniej opublikowanymi zaleceniami10.
Zasada izolacji kardiomiocytów z N. furzeri opiera się na klasycznej metodzie izolacji ryb opisanej wcześniej i dostosowanej do małych ryb11,12Wszystkie eksperymenty zostały przeprowadzone zgodnie z wytycznymi Guide for the Care and Use of Laboratory Animals (US National Institutes of Health) oraz dyrektywą UE 2010/63/UE. Protokół eksperymentalny został zatwierdzony przez Komitet Bioetyki Uniwersytetu Państwowego im. Łomonosowa w Moskwie (Wniosek №202-a, zatwierdzony podczas posiedzenia Komisji Bioetycznej №169-d z dnia 27.02.2025). Wykorzystane odczynniki i sprzęt wymieniono w Tabela materiałów.
1. Przygotowanie roztworów
- Przygotować pozbawiony Ca2+ roztwór do izolacji zawierający (w mmol L-1): 100 NaCl, 10 KCl, 1,2 KH2PO4, 4 MgSO4, 50 tauryny, 20 glukozy oraz 10 HEPES. Dostosować pH do wartości 6,9 za pomocą NaOH w temperaturze pokojowej (24 °C). Izolację przeprowadzić z wykorzystaniem soli fizjologicznej w temperaturze pokojowej. Natlenianie roztworu podczas izolacji nie jest wymagane.
UWAGA: Roztwór do izolacji można przechowywać w butelce szklanej w temperaturze 4 °C przez 3–4 dni. - Przygotować 3 mL roztworu enzymatycznego na bazie roztworu pozbawionego Ca2+, zawierającego 0,8 mg mL-1 kolagenazy typu 1A, 0,5 mg mL-1 trypsyny oraz 0,8 mg mL-1 albuminy surowicy bydlęcej (BSA). Enzymy należy dodać bezpośrednio przed procedurą izolacji, aby zachować ich aktywność enzymatyczną.
UWAGA: Stężenia enzymów mogą wymagać korekty, ponieważ aktywność enzymatyczna różni się pomiędzy partiami. - Schłodzić 50–100 mL wody z kranu w lodówce do temperatury +4 °C. Schłodzona woda jest niezbędna do analgesji ryb.
2. Przygotowanie systemu izolacyjnego
- Zamocuj dwa korpusy strzykawki o pojemności 10 mL do statywu na wysokości około 35 cm.
- Podłącz rurki silikonowe (d = 8 mm) do korpusów i połącz ich wolne końce za pomocą trójdrożnego kranika do infuzji.
- Napełnij jedną rurkę roztworem izolacyjnym wolnym od Ca2+, a drugą roztworem enzymatycznym. Upewnij się, że w rurkach nie pozostały pęcherzyki powietrza, ponieważ utrudniają one przepływ i obniżają jakość izolacji. Zamknij przepływ.
- Napełnij igłę dozującą G 32 roztworem wolnym od Ca2+, używając strzykawki insulinowej 1 mL, aby uniknąć powstania pęcherzyków powietrza na końcówce igły.
- Przymocuj napełnioną igłę do wolnego końca trójdrożnego kranika.
- Za pomocą masy mocującej przymocuj igłę do szalki Petriego o średnicy 100 mm równolegle do płaszczyzny dna.
- Umieść szalkę Petriego podłączoną do systemu perfuzji pod stereomikroskopem i zabezpiecz ją zaciskami stolika oraz masą mocującą (Rysunek 1A).
3. Disekcja i izolacja serca
- Przygotować instrumenty chirurgiczne: dwie pary mikrosurgicalnych nożyczek i pęset okularnych oraz tackę sekcyjną z czterema igłami medycznymi.
- Wyjąć z lodówki schłodzoną wodę z kranu i szybko zanurzyć w niej rybę. Czekać, aż pokrywy skrzelowe przestaną się poruszać.
UWAGA: Przed przystąpieniem do dalszych czynności należy potwierdzić ustanie ruchów operkulum, aby zapewnić odpowiednią analgezję. - Wyjąć rybę z wody, położyć ją na tacki sekcyjnej grzbietem do góry i przeciąć rdzeń kręgowy nożyczkami okularnymi.
- Odwrócić rybę na grzbiet i przymocować do tacki za pomocą igieł. Przypiąć głowę, ogon i opercula, utrzymując opercula w pełnym odchyleniu, aby zwiększyć dostęp do tkanek.
- Wyonać poprzeczne nacięcie otrzewnej. Przedłużyć nacięcie wzdłuż głównej osi ciała, delikatnie odsuwając skórę od narządów trzewnych za pomocą pęsety. Kontynuować nacięcie do krawędzi dolnej szczęki i przymocować brzegi skóry po lewej i prawej stronie (Ryc. 1B).
- Zlokalizować komorę i bulbus arteriosus. Chwycić bulbus arteriosus pęsetą jak najdalej od komory i delikatnie unieść go z ciała. Nie puszczając pęsety, przeciąć tkanki za komorą (strona ogonowa), aby zachować ją w całości.
- Przenieść wyizolowane serce do szalki Petriego pod mikroskop stereoskopowy. Umocować końcówkę kaniuli w komorze, wprowadzając ją najpierw do bulbus arteriosus, a następnie ostrożnie przeprowadzając przez zastawkę aortalną, nie uszkadzając otaczających tkanek. Pomyślną kaniulację uzyskano w > 90% serc.
- Przymocować bulbus arteriosus do kaniuli za pomocą ligatury (Ryc. 1C).
UWAGA: Ludzki włos (d = 50–70 µm) dobrze sprawdza się jako ligatura, ponieważ standardowe nici chirurgiczne są zbyt grube dla tak małego serca.
4. Izolacja kardiomiocytów
- Otwórz 3-drożny kranik, aby umożliwić przepływ z cylindra zawierającego roztwór wolny od Ca2+. Przy prawidłowym wykonaniu komora napełnia się roztworem i rozszerza. Szybkość przepływu ustawiono na 43 µL min-1.
- Usuń pozostałości przedsionka i zatoki żylnej za pomocą nożyczek mikrosurgicalnych, uważając, aby nie uszkodzić ścian komory.
- Perfuzuj serce przez 10–12 min, monitorując jednolitość przepływu. Delikatnie uciśnij rurkę silikonową, aby podać przejściowy impuls roztworu, który rozszerzy beleczki komory i wypłucze pozostałą krew. Wskaźnikiem skutecznego wypłukania jest zatrzymanie akcji serca i ustanie przepływu erytrocytów widoczne pod mikroskopem stereoskopowym.
- Przełącz kranik, aby skierować roztwór enzymatyczny do komory. Perfuzuj przez 4–6 min. Potwierdź działanie enzymatyczne wizualnie poprzez utratę integralności ściany komory i odrywanie się małych fragmentów mięśnia sercowego.
OSTROŻNIE: Unikaj pobierania próbek lub przenoszenia perfuzatu do mikroskopu odwróconego w celu badania, ponieważ może to prowadzić do utraty lub mechanicznego uszkodzenia materiału komórkowego i przerwać ciągły monitoring jakości perfuzji. Lepiej polegać na opisanych powyżej oznakach skutecznej izolacji, które są wyraźnie widoczne pod mikroskopem binokularnym. - Dodaj małą alikwotę (300–400 µL) roztworu wolnego od Ca2+ do 35 mm szalki do hodowli tkanek. Oddziel komorę od pnia tętniczego i przenieś ją do szalki.
- Posiekaj komorę drobnymi nożyczkami, a następnie delikatnie rozdrobnij tkankę poprzez wielokrotne pipetowanie mikropipetą 100 µL z odciętym końcem końcówki.
- Przenieś zawiesinę komórkową do probówki 1500 µL. Sprawdź alikwotę pod mikroskopem odwróconym przy małym powiększeniu (10×). Wizualnie oszacuj gęstość prętowatych, prążkowanych kardiomiocytów w polu widzenia. Jeśli pole jest zatłoczone i znajduje się w nim wiele nakładających się na siebie prętowatych komórek (>50 na pole 10×), dodaj roztwór wolny od Ca2⁺, aby zmniejszyć gęstość komórek i uniknąć nadmiernego zagęszczenia w komorze rejestracyjnej. Pozostaw komórki do osadzenia w temperaturze 4 °C przez 40–50 min przed rejestracją.
UWAGA: Komórki można przechowywać w temperaturze 4 °C podczas okresu osadzania; należy ich użyć do rejestracji w ciągu 8 h od izolacji.
5. Rejestracja metodą patch-clamp w konfiguracji whole-cell
- Przygotować roztwory zewnątrzkomórkowe i wewnątrzkomórkowe dla różnych prądów jonowych oraz pomiarów potencjałów czynnościowych wymienionych w Tabeli 1.
- Wytworzyć pipety do techniki patch-clamp z cienkościennych kapilar borokrzemowych (bez włókna) za pomocą pionowego wyciągacza i napełnić je roztworem wewnątrzkomórkowym. Opór napełnionej pipety powinien wynosić 2,0–3,0 MΩ dla wszystkich konfiguracji pomiarowych.
- Napełnić zbiornik perfuzyjny roztworem kąpieli zewnątrzkomórkowej i odpowietrzyć linie w celu usunięcia wszystkich pęcherzyków powietrza przed umieszczeniem komórek w komorze pomiarowej.
- Dodać małą objętość (30–40 µL) zawiesiny izolowanych kardiomiocytów do szklanej komory pomiarowej i pozostawić komórki do osadzenia na 5–10 min.
- Zamocować pipetę do głowicy wzmacniacza. Pod kontrolą mikroskopu opuścić pipetę w stronę docelowego kardiomiocytu za pomocą mikromanipulatora, aż końcówka dotknie błony, co objawi się niewielkim wgłębieniem i wzrostem oporu pipety.
- Zastosować delikatne podciśnienie, aby utworzyć wysokooporowe uszczelnienie (seal) rzędu GΩ, które zazwyczaj powstaje w ciągu kilku sekund.
- Ustawić potencjał podtrzymujący na -80 mV. Przerwać błonę za pomocą serii krótkich impulsów ssących. Po ustanowieniu konfiguracji whole-cell zminimalizować przejściowe prądy pojemnościowe oraz skompensować pojemność komórki i opór szeregowy (dostępowy) za pomocą układów kompensacyjnych wzmacniacza.
- Skompensować te prądy pojemnościowe za pomocą regulatorów Cell capacitance i Series resistance we wzmacniaczu. Dostosować regulator Cell capacitance, aby zminimalizować główny skok pojemnościowy, a następnie regulator Series resistance, aby zredukować pozostałe przeregulowanie, aż zostanie ono w znacznym stopniu zniesione, a prąd bazowy stanie się płaski.
- Do pomiarów potencjałów czynnościowych i prądów jonowych dopuszczać tylko komórki z szacowanym oporem dostępowym po kompensacji ≤10–12 MΩ. Przystąpić do pomiaru potencjałów czynnościowych lub prądów jonowych, dodając w razie potrzeby specyficzne blokery wymienione w Tabeli 2 przed rozpoczęciem rejestracji.
- Rejestrować dane za pomocą oprogramowania do akwizycji patch-clamp, które umożliwia konfigurację niestandardowych protokołów stymulacji dla każdego badanego prądu. Protokoły clampowania napięcia użyte w tym badaniu przedstawiono na Rysunku 2.
Wyniki
Niniejszy protokół pozwala na wyizolowanie pojedynczych, pręcikowatych kardiomiocytów komór komory N. furzeri, które nadają się do wysokorozdzielczych pomiarów metodą patch clamp w konfiguracji whole-cell. Prawidłowość izolacji ocenia się w pierwszej kolejności na podstawie morfologii komórek i jakości uszczelnienia, a następnie potwierdza funkcjonalnie poprzez zdolność do rejestracji stabilnych potencjałów czynnościowych oraz każdego z głównych prądów jonowych o oczekiwanej zależności od napięcia i amplitudzie. Przedstawione poniżej reprezentatywne zapisy uzyskano od młodych osobników N. furzeri; definiują one wartości referencyjne wskazujące na zdrową, prawidłowo zastabilizowaną komórkę. Odchylenia od tych punktów odniesienia zazwyczaj wskazują na suboptimalną izolację i są opisane przy każdym z kryteriów.
Morfologia komórek i tworzenie uszczelnienia
Żywe kardiomiocyty komorowe N. furzeri mają wydłużony, pręcikowaty kształt z gładkim, morfologicznie nienaruszonym sarkolemą (Rysunek 3). W niektórych komórkach pod mikroskopem świetlnym można było dostrzec słabe prążkowanie poprzeczne, choć nie było ono wyraźnie widoczne w każdej komórce; dlatego głównymi kryteriami wyboru komórek do rejestracji były gładka, nienaruszona błona oraz wydłużona, pręcikowata morfologia. Takie komórki łatwo tworzą uszczelnienie o wysokiej rezystancji (>1 GΩ) i tolerują przerwanie błony. Z kolei komórki zaokrąglone, skurczone, ziarniste lub obrzęknięte są oznaką nadmiernego trawienia lub uszkodzeń mechanicznych: słabo się uszczelniają, szybko ulegają degradacji i powinny zostać odrzucone. Zdrowa komórka utrzymuje stabilny spoczynkowy potencjał błonowy i wykazuje minimalny prąd upływu przy potencjale utrzymującym -80 mV.
Charakterystyka pomiarów metodą patch-clamp
Rejestracje metodą patch-clamp w konfiguracji whole-cell przeprowadzono w temperaturze 22–24 °C przy użyciu wzmacniacza patch-clamp. Sygnały próbowano z częstotliwością 10 kHz i filtrowano dolnoprzepustowo w zakresie 1–2 kHz. Wzmocnienie wyjściowe (α) ustawiono na ×0.5 w celu optymalizacji rozdzielczości sygnału na dygetyzatorze. Rezystancję szeregową kompensowano w 70%–80%; opóźnienie lag 10 µs. Rejestracje odrzucano, jeśli szacowana rezystancja dostępu przekraczała 10–12 MΩ lub zmieniła się o ponad ~10% w trakcie pomiaru. W przypadku rejestracji potencjałów czynnościowych i prądów jonowych nie stosowano liniowej substrakcji prądu upływu.
Komórki wykluczono z analizy, jeśli spełniały którekolwiek z poniższych kryteriów: potencjał spoczynkowy błony mniej ujemny niż −70 mV w trybie clampy prądowej (current‑clamp); brak możliwości utworzenia stabilnego gigaseala (>1 GΩ); rezystancja dostępowa >10–12 MΩ po kompensacji; szybki spadek prądów jonowych podczas rejestracji; uszkodzenia morfologiczne (wygląd zaokrąglony, ziarnisty lub hiperkontrakcyjny).
Potencjały czynnościowe (pozytywna kontrola żywotności)
Potencjały czynnościowe rejestrowane w trybie clampingu prądowego (current-clamp) stanowią najbardziej bezpośrednią ocenę żywotności elektrycznej wyizolowanego kardiomiocyta. Wywołuj potencjały czynnościowe (AP) za pomocą 1 ms depolaryzujących impulsów prądowych (0,4–1 nA, ok. 30% powyżej progu). Ustaw częstotliwość stymulacji na 0,3 Hz. Rejestruj AP po około 5 min, gdy kształt fali osiągnie stabilny stan stacjonarny. W dobrze wyizolowanym kardiomiocycie młodego osobnika N. furzeri spoczynkowy potencjał błonowy (RMP) jest stabilny i bliski -85 mV (Rysunek 4B). AP osiąga przesunięcie (overshoot) do około +30 mV, dając wyraźną fazę depolaryzacji typu wszystko albo nic (Rysunek 4A). Reprezentatywne charakterystyki AP obejmują APD90 wynoszące ok. 530 ms, APD50 ok. 460 ms oraz maksymalną prędkość narastania (dV/dtmax) ok. 50 V s-1. Zdepolaryzowany RMP (mniej ujemny niż około -70 mV), zmniejszony lub brak przesunięcia, spowolniona prędkość narastania lub niezdolność do utrzymania powtarzalnych wyładowań o stabilnej amplitudzie i czasie trwania w większości przypadków wskazuje na uszkodzoną lub słabo zaklampowaną komórkę, której nie można wykorzystać do oceny charakterystyki AP.
Szybki prąd sodowy (INa)
Szybki prąd sodowy odpowiada za fazę depolaryzacji potencjału czynnościowego i stanowi czuły wskaźnik integralności błony oraz jakości zacisku. Przy zastosowaniu roztworów opartych na Cs+ przedstawionych w Tabeli 1, INa jest rejestrowany jako duży, szybko aktywujący się i inaktywujący prąd wewnątrzkomórkowy (Rysunek 5A). W zdrowych młodych miocytach INa staje się wykrywalny w pobliżu -60 mV, osiąga szczytową gęstość wynoszącą około -13 pA pF−1 przy około -30 mV i odwraca się w pobliżu +20 mV (Rysunek 5B). Stała czasowa inaktywacji maleje z ~8 ms przy -50 mV do ~2 ms przy -10 mV, a napięcie połowy inaktywacji znajduje się w pobliżu -70 mV13 (Rysunek 5C,D). Znacząco zredukowana amplituda prądu szczytowego, przesunięty lub słabo zdefiniowany potencjał odwrócenia, a także spowolniona i zniekształcona kinetyka aktywacji/inaktywacji wskazują na niewłaściwą kontrolę napięcia (błąd rezystancji szeregowej) lub naruszoną integralność błony, a nie na sam proces izolacji.
Prądy wapniowe (ICaL i ICaT)
Rejestrowano przy użyciu roztworów do pomiaru prądów wapniowych (Tabela 1), N. furzeri kardiomiocyty wykazują wypadkowy do wnętrza prąd wapniowy składający się z dwóch komponentów. Prąd ten zaczyna się aktywować przy potencjale wynoszącym około -60 mV, co wskazuje na obecność komponentu typu T (ICaT) poza dominującym prądem typu L (ICaL), i osiąga maksymalną gęstość wynoszącą około -7 pA/pF−1 między -10 mV a 0 mV (Rycina 6B). Tożsamość komponentów potwierdza się farmakologicznie: 10 µM nifedypina częściowo blokuje prąd, podczas gdy 100 µM powoduje niemal całkowite zahamowanie (Rysunek 6A). Należy zauważyć, że 100 µM stężenie nifedipiny zastosowano wyłącznie w określonych eksperymentach kontrolnych, aby zweryfikować, że prąd resztkowy po 10 µM nifedypina wykazuje pełną wrażliwość na wyższe stężenia i w związku z tym mogła zostać zidentyfikowana jako ICaTW przypadku standardowych pomiarów rutynowych, 50 µM jest wystarczające do całkowitego zablokowania prądu I_netWapń bieżący. ICaL składnik jest definiowany jako prąd wywołany z potencjału utrzymującego wynoszącego -50 mV, a ICaT otrzymuje się jako różnicę między prądem zarejestrowanym przy -90 mV a izolowanym prądem ICaL (Rysunek 6C,D). Wyraźnie rozdzielony, wrażliwy na nifedypinę prąd wewnątrzkomórkowy z opisanym napięciem aktywacji i napięciem prądu szczytowego wskazuje na dobrze zachowane kanały wapniowe.
Opóźnione prądy potasowe prostownicze (IKr oraz IKs)
Obecność zewnętrznych prądów potasowych potwierdza, że mechanizmy repolaryzacji pozostają funkcjonalnie nienaruszone po izolacji. W zastosowanych warunkach farmakologicznych (Tabela 2) depolaryzacja do -40 mV i powyżej wywołuje prąd zewnętrzny we wszystkich zdrowych komórkach. Za pomocą selektywnych blokerów wyróżnia się dwa komponenty: wolny prąd opóźnionego prostowania (IKs), wrażliwy na chromanol 293B (20 µM), oraz szybki prąd opóźnionego prostowania (IKr), wrażliwy na E4031 (1 µM) (Rycina 7A,B). W miocytach młodych ryb IKs, podobnie jak IKr, osiągają gęstość około 1 pA pF−1 przy silnie depolaryzowanych potencjałach (Rycina 7C,D). Obecność obu komponentów opóźnionego prostowania, które odgrywają główną rolę w repolaryzacji komór ventricularnych u ludzi, ale w mniejszym stopniu przyczyniają się do niej w standardowych modelach gryzoni14, służy jako kluczowa walidacja, że rejestrowana komórka jest miocytem komory N. furzeri z nienaruszonymi prądami repolaryzującymi.
Tło prądu prostownika dośrodkowego (IK1)
Tło prądu prostowniczego do wewnątrz wyznacza spoczynkowy potencjał błonowy i jest wygodnie oceniane za pomocą protokołu rampy napięciowej od +60 do -120 mV (Rysunek 7E). W zdrowej komórce prąd IK1 odwraca się w pobliżu -80 mV, co jest zgodne z RMP zmierzonym w trybie clamp napięciowy. Przy potencjałach dodatnich względem potencjału odwrócenia, IK1 wykazuje charakterystyczne wybrzuszenie zewnętrzne, osiągając szczyt na poziomie kilku pA pF−1 (Rysunek 7F). Potencjał odwrócenia oddalony od -80 mV lub duży stały prąd upływu wskazują na słabe uszczelnienie lub uszkodzoną błonę.
Podsumowując, preparację uznaje się za udaną, gdy uzyskano wydłużone komórki w kształcie pręcików z gładkimi, nienaruszonymi błonami, które tworzą uszczelnienia rzędu gigaomów oraz wykazują referencyjny kształt potencjału czynnościowego i sygnatury prądowe opisane powyżej. Uzyskanie kilku takich komórek z jednego serca potwierdza, że dysocjacja enzymatyczna zachowała zarówno integralność błony, jak i pełny zestaw kanałów jonowych serca niezbędnych do dalszych badań elektrofizjologicznych.
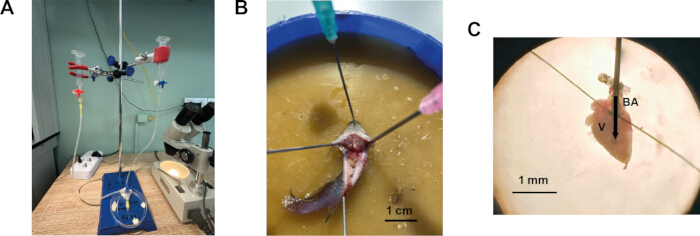
Rysunek 1: Procedura izolacji kardiomiocytów komorowych z serca N. furzeri. (A) System izolacji kardiomiocytów zmodyfikowany dla małych ryb. (B) Ryba unieruchomiona w kuwecie sekcyjnej, grzbietem do dołu, z nacięciem otrzewnej w kierunku poprzecznym i podłużnym. (C) Serce N. furzeri kaniulowane i unieruchomione do perfuzji. BA – bulbus arteriosus, V – komora. Strzałka wskazuje kierunek przepływu roztworu do komory. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
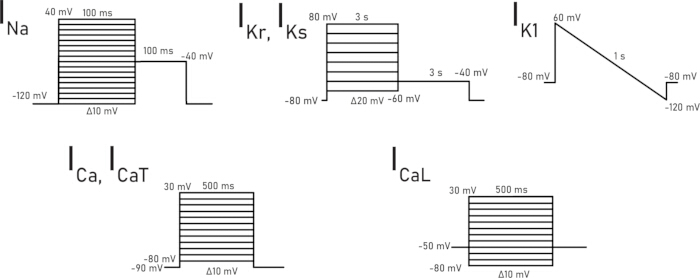
Rycina 2: Protokoły clampowania napięcia stosowane do rejestracji poszczególnych prądów jonowych. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
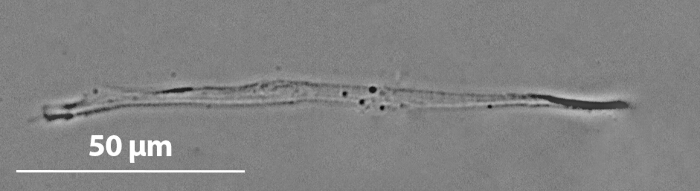
Rysunek 3: Reprezentatywna mikrofotografia kardiomiocyta komorowego młodego osobnika N. furzeri. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
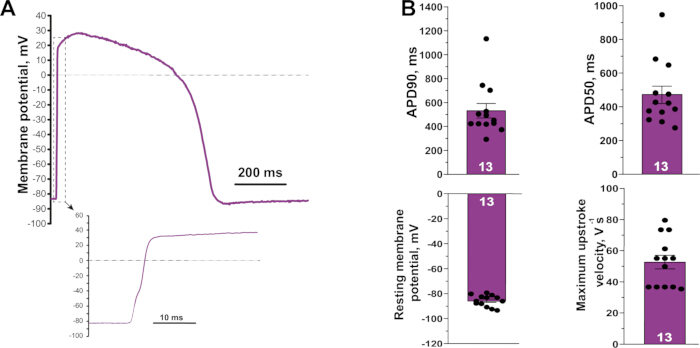
Rysunek 4: Reprezentatywny potencjał czynnościowy zarejestrowany z kardiomiocytu komorowego młodego N. furzeri. (A) Kształt fali potencjału czynnościowego. Wstawka pokazuje szybką fazę depolaryzacji w powiększonej skali czasowej. (B) Charakterystyka potencjału czynnościowego zmierzona w izolowanych młodych miocytach (spoczynkowy potencjał błonowy, APD50, APD90 oraz maksymalna prędkość narastania). (N = 7, n = 13). Wartości przedstawiono jako średnia ± S.E.M. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
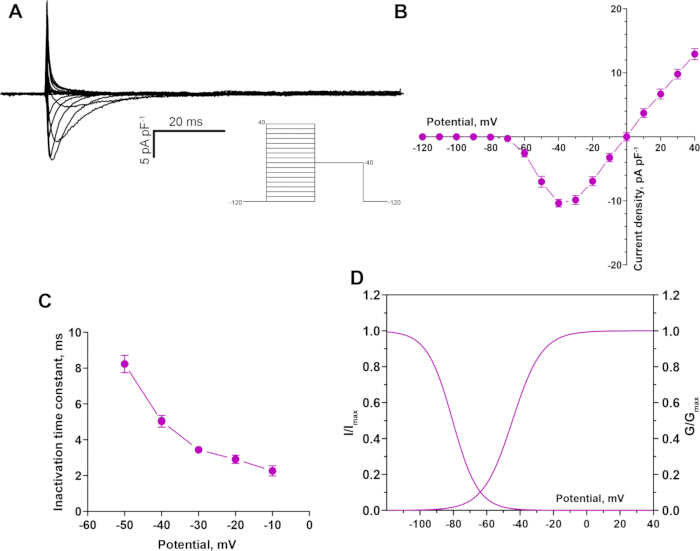
Rycina 5: Szybki prąd sodowy (INa) zarejestrowany z kardiomiocytu komorowego młodej ryby N. furzeri. (A) Reprezentatywny zapis INa. (B) Zależność prądu od napięcia dla INa; aktywacja następuje w pobliżu -60 mV, a szczyt w pobliżu -30 mV. (C) Zależność stałej czasowej inaktywacji od napięcia. (D) Krzywe aktywacji i inaktywacji w stanie stacjonarnym. (N = 5, n = 11). Wartości przedstawiono jako średnia ± S.E.M. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
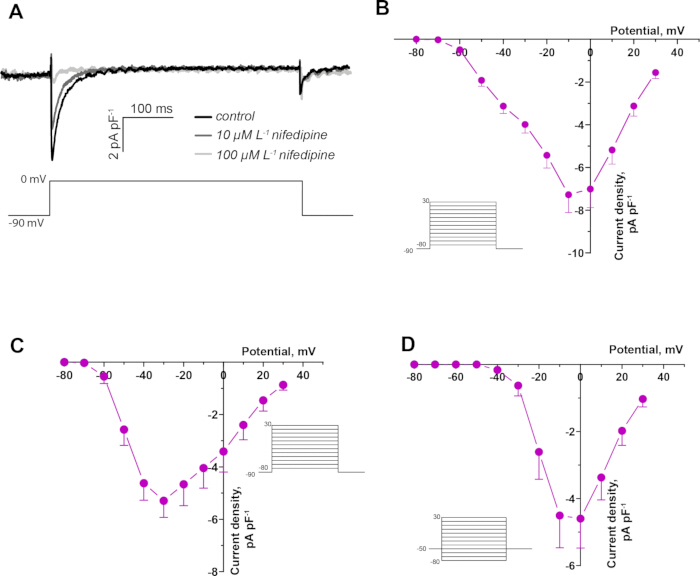
Rysunek 6: Prądy wapniowe w młodym kardiomiocycie komorowym N. furzeri. (A) Reprezentatywny zapis wypadkowego prądu wapniowego w grupie kontrolnej oraz w obecności 10 µM i 100 µM nifedypiny w młodym kardiomiocycie komorowym N. furzeri. (B) Zależność prądowo-napięciowa dla wypadkowego prądu wapniowego, z aktywacją w pobliżu -60 mV i pikiem w pobliżu -10 mV (N = 5, n = 11). (C) Zależność prądowo-napięciowa dla komponentu typu T (ICaT) (N = 3, n = 6). (D) Zależność prądowo-napięciowa dla komponentu typu L (ICaL) (N = 5, n = 7). Wartości przedstawiono jako średnia ± S.E.M. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
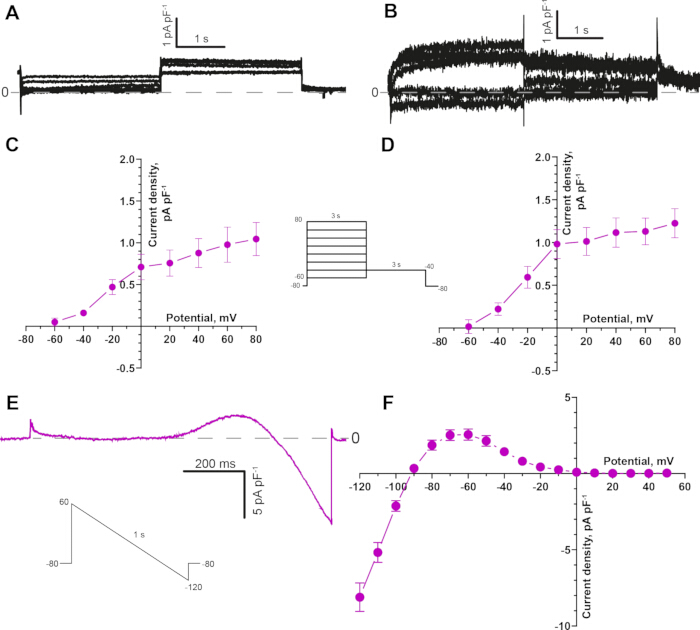
Rycina 7: Prądy potasowe w kardiomiocytach komorowych młodych N. furzeri. (A) Reprezentatywny zapis prądu powolnego opóźnionego prostownika (IKs), wyizolowanego w obecności E4031 (1 µM) w celu zablokowania IKr. (B) Reprezentatywny zapis prądu szybkiego opóźnionego prostownika (IKr), wyizolowanego w obecności chromanolu 293B (20 µM) w celu zablokowania IKs. (C) Zależność prądowo-napięciowa dla prądu IKs (N = 5, n = 9). (D) Zależność prądowo-napięciowa dla prądu IKr (N = 5, n = 10). (E) Reprezentatywny IK1 zarejestrowany przy użyciu protokołu rampy napięcia malejącego od +60 mV do -120 mV. (F) Zależność prądowo-napięciowa dla IK1, z odwróceniem prądu w pobliżu -80 mV (N = 5, n = 18). Wartości przedstawiono jako średnia ± S.E.M. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
| Nazwa roztworu | Odczynnik i stężenie (mM) |
| Potencjał czynnościowy i prądy potasowe Roztwór zewnątrzkomórkowy | 150 NaCl, 3 KCl, 1,2 MgCl2, 1,8 CaCl22, 10 glukozy, 10 HEPES; pH 7,4 skorygowane za pomocą NaOH |
| Potencjał czynnościowy i prądy potasowe Roztwór wewnątrzkomórkowy | 140 KCl, 1 MgCl22, 5 EGTA, 4 MgATP, 0,03 Na2GTP i 10 mM HEPES; pH 7,2 skorygowane za pomocą KOH |
| Roztwór zewnątrzkomórkowy do pomiaru prądów sodowych | 20 NaCl, 123 CsCl, 1 MgCl2, 1,8 CaCl22, 10 glukozy i 10 HEPES; pH 7,2 skorygowane za pomocą CsOH |
| Roztwór wewnątrzkomórkowy do pomiaru prądów sodowych | 5 NaCl, 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0,03 Na2GTP i 15 TEA; pH 7,2 skorygowane za pomocą CsOH |
| Roztwór zewnątrzkomórkowy do pomiaru prądów wapniowych | 150 NaCl, 3 CsCl, 1 MgCl2, 1,8 CaCl22, 10 glukozy i 10 HEPES; pH skorygowano do 7,2 za pomocą NaOH |
| Roztwór wewnątrzkomórkowy do pomiaru prądów wapniowych | 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0,03 Na2GTP i 15 TEA; pH 7,2 skorygowane za pomocą CsOH. |
Tabela 1: Skład roztworów zewnątrzkomórkowych i wewnątrzkomórkowych do rejestracji potencjałów czynnościowych i prądów jonowych metodą patch-clamp.
| Rejestracja prądu | Stężenie blokera (μM) | |
| 1. | Potencjał czynnościowy | Blokery nie są wymagane |
| 2. | IKr | 50 Nifedypliny, 20 Chromanolu 293B |
| 3. | IKs | 50 Nifedypiny, 1 E4031 |
| 4. | IK1 | 50 Nifedypiny, 20 Chromanolu 293B, 1 E4031 |
| 5. | INa | 50 Nifedypina |
| 6. | ICaT | 1 Tetrodotoksyna |
| 7. | ICaL | 1 Tetrodotoksyna |
Tabela 2: Blokery farmakologiczne dodane do roztworów zewnątrzkomórkowych w celu selektywnego rejestrowania danego prądu jonowego.
Dyskusja
Pomyślna izolacja żywych kardiomiocytów komorowych z N. furzeri stanowi postęp metodologiczny, który umożliwia bezpośrednią charakterystykę elektrofizjologiczną związanego z wiekiem remodelingu serca na poziomie komórkowym. Taka rozdzielczość jest niezbędna do zidentyfikowania konkretnych mechanizmów jonowych leżących u podstaw związanej z wiekiem dysfunkcji serca, których nie można rozróżnić przy użyciu wyłącznie preparatów narządowych lub całego serca. Badanie natywnych kardiomiocytów dostarcza bezpośredniej wiedzy na temat tego, jak starzenie zmienia podstawowe właściwości elektrofizjologiczne, w tym prądy jonowe i charakterystykę potencjału czynnościowego.
Kilka etapów niniejszego protokołu ma krytyczne znaczenie dla uzyskania wysokiej jakości kardiomiocytów z N. furzeri, odpowiednich do metody patch-clamp. Po pierwsze, aktywność enzymatyczna różni się w zależności od partii, dlatego stężenia kolagenazy i trypsyny należy dostosować do każdego preparatu. Nadmierna digestia powoduje uszkodzenie błony i utratę funkcji kanałów jonowych, natomiast niedostateczna digestia skutkuje uzyskaniem niewielkiej liczby komórek i uniemożliwia stabilny kontakt pipety z błoną. Izolowane komórki zachowują wydłużoną, pręcikowatą morfologię z gładkim, nienaruszonym sarkolemą, co świadczy o zachowaniu integralności komórkowej podczas izolacji; w niektórych komórkach pod mikroskopem świetlnym można było również dostrzec słabe prążkowanie sarkomerów. Zachowanie tych cech jest kluczowe dla wiarygodności danych elektrofizjologicznych, ponieważ uszkodzone komórki często wykazują zmienioną funkcję kanałów jonowych i zaburzone właściwości błonowe. Po drugie, niewielki rozmiar serca N. furzeri stanowi wyzwanie techniczne, które wymaga starnej optymalizacji izolacji enzymatycznej i precyzyjnej sekcji manualnej, a wydajność komórkowa z jednego serca jest niższa niż w preparatach ssaków. Ponadto niespójna perfuzja lub wycieki z kaniulowanego serca należą do najczęstszych problemów, które mogą wystąpić podczas procedury. Należy przećwiczyć kaniulację na kilku sercach, aby wypracować powtarzalny kąt i głębokość wprowadzania. Należy upewnić się, że końcówka igły jest wolna od pęcherzyków powietrza, a bulbus jest zawiązany bezpiecznie, bez przecinania tkanki. Przed przystąpieniem do rejestracji należy również potwierdzić, że komórki mają kształt pręcików z gładką, nienaruszoną błoną (w niektórych komórkach może być widoczne słabe prążkowanie). Komórki zaokrąglone lub ziarniste należy odrzucić. Należy sprawdzić, czy wszystkie roztwory są świeżo przygotowane i mają prawidłowo dostosowane pH. Należy upewnić się, że oporność pipety mieści się w zalecanym zakresie (2.0–3.0 MΩ). Podczas rejestracji należy sprawdzać opisane powyżej parametry wzmacniacza; oporność dostępu po kompensacji nie powinna przekraczać 10–12 MΩ; potencjał spoczynkowy błony w trybie current-clamp powinien być mniej ujemny niż −70 mV, a komórka powinna tworzyć stabilny gigaseal.
Niemniej jednak, protokół ten pozwala na niezawodne uzyskanie wysokiej jakości komórek odpowiednich do rejestracji techniką patch-clamp oraz potencjalnie do innych zastosowań, czyniąc N. furzeri praktycznym modelem komórkowego starzenia się serca. N. furzeri oferuje bowiem wyraźne zalety w stosunku do tradycyjnych ssaczych modeli w badaniach nad starzeniem się serca. Jako najkrócej żyjący kręgowiec, który może być hodowany w niewoli, umożliwia on prowadzenie podłużnych badań nad starzeniem się serca w praktycznych ramach czasowych, w przeciwieństwie do modeli mysich, które wymagają 18–24 miesięcy, aby osiągnąć podobny wiek biologiczny15. Mimo krótkiego czasu życia, gatunek ten wykazuje kluczowe cechy starzenia się serca kręgowców, w tym przebudowę elektrofizjologiczną, zachowaną czas trwania potencjału czynnościowego przy zmniejszonej prędkości narastania oraz obniżoną regulację istotnych prądów jonowych6.
Porównanie z istniejącymi metodami izolacji kardiomiocytów.
Enzymatyczna izolacja żywych kardiomiocytów komorowych jest uznaną podstawą do prowadzenia elektrofizjologii pojedynczych komórek u szerokiego spektrum gatunków. U ssaków złoty standard opiera się na wstecznej perfuzji aorty całego serca buforem pozbawionym wapnia, a następnie roztworem zawierającym enzymy, zazwyczaj kolagenazę i proteazy, przy kontrolowanym ciśnieniu i temperaturze. Strategia ta zapewnia jednorodne dostarczenie enzymów poprzez naczynia wieńcowe, efektywne wypłukanie krwi oraz stosunkowo łagodną dysocjację mięśnia sercowego, co pozwala na uzyskanie dużej liczby prętowatych miocytów odpowiednich do wysokorozdzielczych pomiarów techniką patch-clamp16,17.
U ryb kostnoszkieletowych organizacja anatomiczna serca oraz brak układu tętnic wieńcowych porównywalnego do tego u ssaków wymagają jednak istotnych modyfikacji. U danio pręgowanego, jednego z najpowszechniej stosowanych modeli małych ryb w badaniach sercowo-naczyniowych, skuteczna izolacja kardiomiocytów komorowych opiera się na trawieniu całego serca w roztworze enzymatycznym przez stosunkowo długi czas8,9. W tych protokołach wycięte serce przenosi się bezpośrednio do kropli lub małej objętości roztworu enzymu, gdzie inkubuje się je w temperaturze pokojowej lub temperaturze odpowiedniej dla danego gatunku, a następnie przeprowadza triturację mechaniczną w celu uwolnienia pojedynczych komórek. Wykazano, że podejście to pozwala na uzyskanie żywotnych, prążkowanych kardiomiocytów, które umożliwiają rejestrację głównych prądów jonowych11.
Pomimo swojej użyteczności, strategia trawienia seryjnego (batch‑digestion) posiada kilka ograniczeń w przypadku bardzo małych lub szczególnie delikatnych serc. Po pierwsze, ekspozycja na enzymy jest słabiej kontrolowana: zewnętrzne warstwy komory są wystawione na wyższe efektywne stężenie enzymu przez dłuższy czas niż warstwy wewnętrzne, co może prowadzić do niejednorodnego trawienia i powstania mieszaniny komórek niedostatecznie i nadmiernie strawionych. Po drugie, przedłużone zanurzenie w roztworze enzymu zwiększa ryzyko nadmiernego trawienia, zwłaszcza gdy aktywność poszczególnych partii enzymów jest zróżnicowana lub gdy serce jest wyjątkowo małe. Po trzecie, wypłukiwanie krwi opiera się głównie na dyfuzji pasywnej i delikatnym płukaniu ręcznym, co może być niewystarczające do całkowitego oczyszczenia wąskich przestrzeni światła komory małego ryby kostnoszkieletowej.
Zachowaliśmy ogólne zasady traktowania bezwapniowego, trawienia enzymatycznego i delikatnej tryturacji. Jednak w badaniu zmodyfikowano sposób podawania roztworów poprzez kaniulację bulbus arteriosus i bezpośrednią perfuzję światła komór. Podejście to pozwala badaczowi na wypłukanie krwi z przestrzeni komorowych przed trawieniem, zmianę roztworów bez konieczności przenoszenia serca oraz przerwanie traktowania enzymatycznego w momencie, gdy ściana komory zaczyna mięknąć. Modyfikacje te są szczególnie istotne w przypadku małego i delikatnego serca N. furzeri, w którym przedłużone zanurzenie w roztworze enzymów może prowadzić do nadmiernego trawienia i obniżenia jakości komórek.
Przyszłe zastosowania
Przedstawiona metoda izolacji otwiera kilka dróg dla przyszłych badań. Po pierwsze, umożliwia ona systematyczną charakterystykę zależnych od wieku zmian w morfologii potencjału czynnościowego oraz gęstości, kinetyce i zależności od napięcia prądów jonowych w kardiomiocytach N. furzeri, co uzupełnia niedawne opisy molekularne i histologiczne starzenia się serca u tego gatunku2,3,4,5. Po drugie, protokół ten można łączyć z narzędziami farmakologicznymi, aby przetestować, w jaki sposób interwencje modulujące długość życia lub okres zdrowia wpływają na elektrofizjologię serca na poziomie pojedynczej komórki. Po trzecie, izolowane kardiomiocyty N. furzeri mogą być wykorzystane w zastosowaniach wykraczających poza rejestrację metodą patch-clamp, w tym w analizach molekularnych (qPCR, RNA‑seq, proteomika) zmian związanych z wiekiem w ekspresji kanałów jonowych i modyfikacjach potranslacyjnych, immunocytochemii oraz obrazowaniu o wysokiej rozdzielczości organizacji sarkomerów. Wreszcie, opisane tutaj ramy metodologiczne można zaadaptować do innych małych modeli ryb kostnoszkieletowych o podobnej wielkości i anatomii serca, rozszerzając tym samym użyteczność N. furzeri jako modelu translacyjnego w badaniach nad starzeniem się serca.
Oświadczenia
Autorzy oświadczają, że nie mają żadnych konkurencyjnych interesów finansowych.
Podziękowania
Praca ta była wspierana przez Rosyjską Fundację Naukową (Grant nr 22-14-00075). Autorzy są wdzięczni Andriejowi Nikiforovowi za pomoc w hodowli i utrzymaniu Nothobranchius furzeri populacja wykorzystana w niniejszym badaniu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| strzykawka insulinowa 1 mL | Med Aim | 939863 | |
| strzykawki 10 mL | Changzhou Jinlong Medical Plastic Appliancy Co | - | |
| szalka Petriego 100 mm | SARSTEDT | 83.3902 | |
| mikropipeta 100 μL | Thermo Scientific | 4640040 | |
| naczynie do hodowli tkankowych 35 mm | SPL LIFE SCIENCES | 11035 | |
| trójdrożny kranik infuzyjny | iLife Medical Devices Pvt. Ltd | 902.07.10 | |
| probówka 500 μL | Eppendorf | EP0030124537-500EA | |
| końcówka 5-200 μL | Deltalab | 200009 | |
| Wzmacniacz | Molecular devices | Axopatch 200B | |
| Blu Tack | BOSTIK | 202401906 | |
| kapilary z borokrzemianowego szkła | Sutter Instrument | B150-110-10 | |
| albumina surowicy bydlęcej | Dia-M | 9048-46-8 BSA.0100 | |
| CaCl2*2H20 | Sigma-Aldrich | C5080 | |
| Chromanol 293B | Sigma-Aldrich | C2615 | |
| Kolagenaza typu 1A | Sigma-Aldrich | C9891 | |
| CsCl | Acros Organics | 422855000 | |
| CsOH | Sigma-Aldrich | 232068 | |
| igła dozująca (32G) | BSTEAN | 744370739503 | |
| E4031 | MedChemExpress | HY-15551 | |
| EGTA | Sigma-Aldrich | E-4378 | |
| Glukoza | helicon | Solarbio G8150-500G | |
| HEPES | Sigma-Aldrich | H3375 | |
| mikroskop odwrócony | Nikon | - | Eclipse Ti-S |
| KCl | Chimmed | 00000000089 | |
| KH2PO4 | helicon | SRL-90654-500G | |
| KOH | helicon | SRL-38630-1KG | |
| MgATP | MACKLIN | A922363 | |
| MgCl2*6H2O | helicon | Solarbio M8161 | |
| MgSO4*7H2O | helicon | SRL-74440-500G | |
| mikromanipulator | RWD | MM-500 | |
| mikrosurgicalna pęseta okulistyczna | CILITA | F-111T | |
| mikrosurgicalne nożyczki okulistyczne | CILITA | S-056S | |
| Na2GTP | Sigma-Aldrich | 51120 | |
| NaCl | helicon | H-1418-1.0 | |
| NaOH | helicon | SRL-13913-500G | |
| Nifedypina | Sigma-Aldrich | N7634 | |
| system perfuzyjny | Biotechnologies | Bio_4_p | |
| wyciągacz pipet | Narishige Group | PC-10 | |
| rurki silikonowe (d = 8 mm) | MEDSIL | TY 9398-004-18037666-94 | |
| statyw | NV-lab | 00000034085 | |
| stereomikroskop | Labkompleks LCC | 10557 | |
| Tauryna | Acros Organics | 166545000 | |
| chlorek tetraetyloamoniu (TEA) | Merck | 822148 | |
| Tetrodotoksyna | Tocris Bioscience | 1078 | |
| Trypsyna | Sigma-Aldrich | T0303 | |
| oprogramowanie WinWCP | University of Strathclyde | - | V5.7.5 |
Bibliografia
- Nakou E et al. Healthy aging and myocardium: a complicated process with various effects in cardiac structure and physiology. Int J Cardiol. 2016;209:167-175.
- Ma X et al. Nothobranchius furzeri: a vertebrate model for studying cardiac aging and cellular senescence. NPJ Aging. 2025;11(1):63.
- Valdesalici S, Cellerino A. Extremely short lifespan in the annual fish Nothobranchius furzeri. Proc R Soc Lond B Biol Sci. 2003;270(Suppl 2):S189-191.
- Platzer M, Englert C. Nothobranchius furzeri: a model for aging research and more. Trends Genet. 2016;32(9):543-552.
- Otsuka T, Matsui H. The African turquoise killifish (Nothobranchius furzeri): a model of age-related diseases and declining regenerative capability across multiple organs. Mech Ageing Dev. 2025;226:112087.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Abramochkin DV. Aging-associated remodeling of ionic currents in ventricular myocytes of seasonal fish Nothobranchius furzeri. Comp Biochem Physiol A Mol Integr Physiol. 2026;317:112013.
- Sander V et al. Isolation and in vitro culture of primary cardiomyocytes from adult zebrafish hearts. Nat Protoc. 2013;8(4):800-809.
- Singareddy SS, McClenaghan C, Roessler HI, Tryon R, Nichols CG. Isolation of cardiac and vascular smooth muscle cells from adult, juvenile, larval and embryonic zebrafish for electrophysiological studies. J Vis Exp. 2022;(180):63225.
- Vornanen M. Sarcolemmal Ca influx through L-type Ca channels in ventricular myocytes of a teleost fish. Am J Physiol Regul Integr Comp Physiol. 1997;272(5):R1432-R1440.
- Polačik M, Blažek R, Reichard M. Laboratory breeding of the short-lived annual killifish Nothobranchius furzeri. Nat Protoc. 2016;11(8):1396-1413.
- Dzhumaniiazova I, Vornanen M, Pustovit OB, Voronkov YI, Abramochkin DV. Effects of tetrodotoxin and ranolazine on the late INa of zebrafish ventricular myocytes. J Evol Biochem Phys. 2022;58(Suppl 1):S22-S30.
- Brette F et al. Characterization of isolated ventricular myocytes from adult zebrafish (Danio rerio). Biochem Biophys Res Commun. 2008;374(1):143-146.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Pustovit OB, Abramochkin DV. Reduction of fast sodium current in the myocardium of fish (N. furzeri) during aging. Bull Exp Biol Med. 2026;181(1):109-116.
- Joukar S. A comparative review on heart ion channels, action potentials and electrocardiogram in rodents and human: extrapolation of experimental insights to clinic. Lab Anim Res. 2021;37(1):25.
- Holtze S et al. Alternative animal models of aging research. Front Mol Biosci. 2021;8.
- Wolska BM, Solaro RJ. Method for isolation of adult mouse cardiac myocytes for studies of contraction and microfluorimetry. Am J Physiol Heart Circ Physiol. 1996;271:H1250-H1255.
- Louch WE, Sheehan KA, Wolska BM. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 2011;51(3):288-298.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny