O vídeo demonstra a purificação e concentração de partículas virais a partir de fluido alantoico clarificado coletado de ovos de galinha embrionados infectados com o vírus. Ele apresenta uma série de etapas de filtração e separação, incluindo filtração em profundidade, filtração de fluxo tangencial e ultracentrifugação em gradiente de densidade para isolar vírus intactos. A fração rica em vírus é então submetida à diálise para remover sais residuais e componentes do gradiente por difusão, seguida de concentração utilizando uma solução hipertônica por osmose. O resultado é uma preparação viral purificada e de alto título, adequada para uso experimental.
Artigo de método
Purificação de Vírus do Fluido Alantoide de Ovos de Galinha Embrionados
71 visualizações
⸱
31 de agosto de 2026
Neste artigo
Resumo
Protocolo
1. Amplificação do vírus da doença de Newcastle (NDV) utilizando ovos de galinha embrionados livres de patógenos específicos
- Inoculação de ovos de galinha embrionados livres de patógenos específicos (SPF)
NOTA: Normalmente, oito dúzias de ovos de galinha embrionados SPF são usados para gerar um lote de vírus da doença de Newcastle (NDV) de grau in vivo. Peça uma ou duas dúzias extras de ovos para compensar danos durante o transporte, bem como a variabilidade na viabilidade.- Após receber os ovos de galinha embrionados SPF, incube-os em uma incubadora de ovos a 37 °C, 60% de umidade, por 9 dias. Certifique-se de que a incubadora esteja configurada para balançar/rotacionar os ovos automaticamente a cada hora.
NOTA: Os ovos podem ser armazenados à temperatura ambiente por até 24 h ou a 4 °C por até 72 h; no entanto, isso pode reduzir a viabilidade do embrião. - Após 8-11 dias de incubação (idealmente no dia 9), examine os ovos com luz para determinar a viabilidade do embrião. Procure por vasos sanguíneos em forma de teia (Figura 1A) e movimento do embrião como indicadores de embriões viáveis. Descarte os ovos que não apresentam essas características (Figura 1B).
- Nos ovos viáveis, marque com um 'X' a lápis a interface entre o saco aéreo e o embrião (Figura 1A). Certifique-se de que este local de injeção não perfure a vasculatura. Devolva os ovos marcados à incubadora enquanto o inóculo é preparado.
- Calcule a quantidade de vírus necessária para injetar todos os ovos de galinha embrionados SPF. Certifique-se de que cada ovo receba 100 unidades formadoras de placa (PFU) de vírus em um volume de 100 µL; dilua o vírus em solução salina tamponada com fosfato (PBS) até uma concentração de 1 × 10³ PFU/mL. Prepare 20% a mais do inóculo para compensar imprecisões na administração do vírus.
- Usando um pano antiestático, limpe a parte superior dos ovos marcados com uma solução de iodo a 10% diluída em etanol a 70%. Aguarde aproximadamente 1-2 minutos para que a solução seque.
- Fure cuidadosamente a casca usando um par de pinças estéreis e afiadas. Sanitize as pinças em etanol a 70% entre os ovos.
- Usando uma seringa de 1 mL e uma agulha 25 G, injete 100 µL do inóculo preparado na etapa 1.1.4 na cavidade corioalantóica (Figura 1C). Aproxime-se com a agulha em um ângulo quase de 90° em relação ao ovo. Insira a agulha apenas na parte superior da membrana corioalantóica.
- Após a inoculação, use esmalte de unha para cobrir o local da punção e devolva os ovos à incubadora. Certifique-se de que a função de balanço esteja LIGADA até 24 h após a inoculação.
- Verifique a viabilidade dos ovos 24 h após a inoculação. Descarte os ovos mortos que não apresentam vasculatura na membrana corioalantóica nem movimento do embrião (Figura 1B).
NOTA: Esses ovos morreram devido ao processo de inoculação e não pelo NDV. - Devolve os ovos à incubadora, com a função de balanço DESLIGADA para evitar contaminação do fluido alantóico com proteínas do ovo.
- Verifique os ovos a cada 12-24 h conforme descrito na etapa 1.1.9 para identificar ovos mortos. Transfira os ovos que morrerem após 24 h da inoculação para 4°C para minimizar a autólise. Colete o fluido alantóico entre 2-12 h após o resfriamento.
- Incube os ovos por pelo menos 72 h.
NOTA: Se estiver propagando uma cepa mesogênica de NDV, o tempo ideal de incubação é de 60-72 h, pois tempos prolongados de incubação podem prejudicar o processo de purificação devido à menor clareza do fluido alantóico. Esse problema não é tão relevante ao propagar cepas lentogênicas de NDV, pois elas levam muito mais tempo para matar o embrião. - Após o período adequado de incubação, transfira os ovos restantes para 4 °C por 2-12 h antes da coleta do fluido alantóico.
- Após receber os ovos de galinha embrionados SPF, incube-os em uma incubadora de ovos a 37 °C, 60% de umidade, por 9 dias. Certifique-se de que a incubadora esteja configurada para balançar/rotacionar os ovos automaticamente a cada hora.
- Coleta do fluido alantóico contendo NDV
- Transfira os ovos resfriados para a cabine de segurança biológica. Limpe a parte superior dos ovos com etanol a 70%.
- Use pinças estéreis e tesoura cirúrgica para quebrar o lado apical do ovo onde está localizado o saco aéreo.
- Remova a casca para revelar a membrana corioalantóica (Figura 1D).
- Fure cuidadosamente a membrana e puxe-a para trás para expor a cavidade alantóica (Figura 1E). Certifique-se de não perfurar acidentalmente o saco de gema, pois isso estragará o ovo.
- Use pinças rombudas para segurar o embrião e abrir o saco embrionário.
NOTA: O fluido dentro do saco embrionário também contém NDV. - Pressione o embrião com as pinças e colete o fluido alantóico usando uma pipeta serológica de 10 mL.
- Armazene o fluido alantóico em gelo em tubos cónicos de 15 mL até a clarificação.
NOTA: Se o fluido alantóico estiver amarelo, o saco de gema foi comprometido e o fluido alantóico deve ser descartado. - Centrifugue os tubos cónicos contendo o fluido alantóico a 1.500 × g por 10 min a 4 °C.
- Ponto de pausa: Aliquote o fluido alantóico clarificado em tubos cónicos de 50 mL e armazene-os a -80 °C para armazenamento de longo prazo (por exemplo, semanas a meses), suplementando o fluido com sacarose até uma concentração final de 5% para proteger o vírus dos efeitos adversos de ciclos de congelamento-descongelamento. Alternativamente, para armazenamento de curto prazo (por exemplo, 1-3 dias), suplemente o fluido alantóico com sacarose (5% final) ou com tampão Mannitol-Lisina (ML) 3× (15% Mannitol, 3% Lisina) para obter uma concentração final de 1× (5% Mannitol, 1% Lisina) antes do armazenamento a 4 °C.
2. Purificação do VND a partir do líquido alantoico
- Filtração em profundidade do líquido alantoico
- Armazene o líquido alantoico clarificado a -80 °C e descongele-o a 4 °C na noite anterior à purificação.
- Em uma cabine de segurança biológica, monte a tubulação e a bomba peristáltica conforme mostrado na Figura 2.
- Se ainda não tiver sido feito, combine o líquido alantoico com tampão ML 3× até atingir uma concentração final de 1×.
- Antes de acoplar o filtro de profundidade, esterilize a tubulação passando 50 mL de hidróxido de sódio (NaOH) 0,5 M pelo sistema até um recipiente de resíduos.
- Lave a tubulação passando 100 mL de água estéril, grau molecular, pelo sistema e até o recipiente de resíduos.
NOTA: Como o NaOH inativará o VND, é importante que as linhas sejam adequadamente lavadas antes de introduzir o líquido alantoico contendo o vírus. - Prima o sistema fazendo passar 50 mL de PBS por ele, parando a bomba quando restarem aproximadamente 5 mL de PBS no tubo.
- Acople um filtro de profundidade com classificação de retenção de 1-3 µm à tubulação e remova a segunda tampa do lado apical do filtro para ventilação. Comece a fazer passar adicionais 50 mL de PBS pelo sistema.
- Quando o PBS começar a fluir pela ventilação no topo do filtro, feche a porta e continue fazendo o PBS fluir pelas linhas.
NOTA: Pequenas bolhas de ar são aceitáveis, mas a presença de grandes quantidades de ar exigirá nova ventilação do filtro, conforme descrito nas etapas 2.1.7 e 2.1.8. - Interrompa a bomba quando restarem aproximadamente 5 mL de PBS no tubo.
- Substitua o recipiente de resíduos por um novo recipiente estéril de coleta e comece a fazer passar o líquido alantoico pelo filtro de profundidade.
NOTA: A pressão não deve exceder 10 psi, pois isso causaria cisalhamento do vírus. A pressão pode ser ajustada diminuindo ou aumentando a taxa de fluxo da bomba. Se a pressão começar a exceder 10 psi e a taxa de fluxo não puder ser reduzida mais, um novo filtro de profundidade deve ser utilizado. Nesse caso, as etapas 2.1.6-2.1.8 devem ser realizadas antes de retomar o fluxo do líquido alantoico. - Após todo o líquido alantoico ter passado pelo filtro, faça passar 50 mL de tampão ML 1× pelas linhas para maximizar a recuperação do vírus.
- Colete o líquido até que as linhas fiquem secas. Armazene o vírus durante a noite ou até 36 h a 4 °C.
NOTA: Após o filtro de profundidade, continue o processo de purificação dentro de 36 h após a conclusão da filtração em profundidade. - Desconecte o filtro de profundidade e sanitize a tubulação fazendo passar 100 mL de NaOH 0,5 M e hipoclorito de sódio a 400 partes por milhão (ppm), pré-aquecidos a 42 °C, pelo sistema antes de armazenar em NaOH 0,5 M.
- Filtração tangencial para concentração do VND
- Monte os componentes do cassete conforme ilustrado na Figura 3A em uma cabine de segurança biológica.
NOTA: O manifold e a placa final devem ser lavados com detergente e secos antes do uso. As juntas de silicone são reutilizáveis e devem ser armazenadas em NaOH 0,5 M junto com o cassete. - Monte o sistema de filtração tangencial (TFF) (também conhecido como filtração em fluxo cruzado) em uma configuração "aberta" (Figura 3B).
- Se estiver utilizando o cassete pela primeira vez, monte-o na configuração de eluição e lave com 100 mL de água estéril, grau molecular (Figura 3C).
- Quando restarem apenas 5 mL de água no tanque do reservatório, pause a bomba e mude a configuração do sistema TFF para uma configuração fechada (Figura 3D).
- Adicione 100 mL de NaOH 0,5 M e hipoclorito de sódio a 400 ppm, pré-aquecidos a 42 °C, ao reservatório e circule pelo sistema por 30-60 min.
- Pause o fluxo e retorne o sistema TFF à configuração de eluição, retomando o fluxo para eluir a solução de limpeza.
- Quando restarem aproximadamente 5 mL no reservatório, pause a bomba e adicione 100 mL de água estéril, grau molecular, para enxaguar o sistema.
- Quando restarem aproximadamente 5 mL no reservatório, pause a bomba e coloque o sistema TFF na configuração aberta (Figura 3B). Continue com a etapa 2.2.3.
- Esterilize o cassete e a tubulação passando 100 mL de NaOH 0,5 M pelo sistema usando a bomba peristáltica. Certifique-se de que a pressão não exceda 30 psi para manter a integridade do cassete.
- Pause a bomba quando restarem aproximadamente 5 mL de NaOH 0,5 M no reservatório.
- Adicione 100 mL de água estéril, grau molecular, ao reservatório e retome a passagem do fluido pelo cassete. Agite o reservatório para remover todo o NaOH das paredes, evitando a inativação do vírus. Repita a etapa de enxágue do reservatório.
- Quando restarem aproximadamente 5 mL de água estéril, grau molecular, no reservatório, pause a bomba.
- Adicione 100 mL de PBS ao reservatório, agitando para garantir que a água estéril, grau molecular, seja removida das paredes. Retome o fluxo de líquido pelo cassete.
- Quando restarem aproximadamente 5 mL no reservatório, pause a bomba, adicione o líquido alantoico pré-filtrado em profundidade ao reservatório e retome o fluxo da bomba.
- Monitore o manômetro 1 (Figura 3B) para garantir que não exceda 10 psi, evitando o cisalhamento do vírus. Combine a velocidade da bomba peristáltica com o uso de grampos em C para aumentar a eluição para o resíduo.
NOTA: A combinação da velocidade da bomba peristáltica e dos grampos em C resultará em aumento da pressão. - Quando restarem 50-100 mL de líquido alantoico no reservatório, pause a bomba para realizar uma troca de tampão, adicionando 150-200 mL de tampão ML 1×.
- Retome o fluxo da bomba, monitorando novamente o manômetro 1 (Figura 3B) para garantir que não exceda 10 psi.
- Quando restarem 5-10 mL no reservatório, pause a bomba.
- Usando dois grampos em C, feche as duas linhas de resíduo conforme mostrado na Figura 3C.
- Desconecte a linha de retenção que alimenta o reservatório e insira-a em um tubo cônico de 50 mL (Figura 3C).
- Retome o fluxo da bomba, pausando quando restarem algumas gotas de fluido no tanque do reservatório.
- Remova os grampos em C das linhas de resíduo e reconecte a linha de alimentação de retenção ao tanque do reservatório (Figura 3B).
- Adicione 20-25 mL de tampão ML 1× e retome o fluxo da bomba até que restem aproximadamente 5 mL no tanque do reservatório.
- Repita as etapas 2.2.13 a 2.2.16.
NOTA: Uma terceira eluição pode ser realizada repetindo as etapas 2.2.17 e 2.2.13 a 2.2.16 para aumentar o rendimento viral. No entanto, a maior parte do vírus está presente nas duas primeiras eluições. - Após concluir as eluições, coloque o vírus no gelo ou a 4 °C.
- Para limpar as linhas, configure o sistema em formato de circuito fechado (Figura 3D), com as linhas de resíduo retornando ao reservatório, conforme ilustrado na Figura 3D.
- Prossiga com a limpeza adicionando 250 mL de NaOH 0,5 M e hipoclorito de sódio a 400 ppm, pré-aquecidos a 42 °C.
- Flua a solução de limpeza pelo sistema durante a noite.
NOTA: Durante a recirculação da solução de limpeza, se a bomba operar a uma velocidade de 50 mL/min, uma pressão de cerca de 5 psi deve ser observada. Se a pressão exceder esse valor, o cassete está sujo, e a solução de limpeza deve ser substituída, repetindo o processo. - Elua a solução de limpeza direcionando ambas as linhas de resíduo e a linha de retenção para um recipiente de resíduos.
- Adicione 400-500 mL de água estéril ao reservatório e faça-a passar pelo sistema até os recipientes de resíduos.
- Quando restarem aproximadamente 5 mL no reservatório, pause a bomba e adicione 100-200 mL de NaOH 0,5 M ao tanque do reservatório, agitando a solução para lavar o recipiente.
- Quando o reservatório estiver quase vazio, repita a etapa 2.2.23 mais duas vezes.
- Desmonte o sistema TFF, armazenando o cassete TFF e as juntas em um pequeno volume de NaOH 0,5 M em um saco plástico com fechamento hermético a 4 °C.
NOTA: A tubulação pode ser armazenada à temperatura ambiente, submersa em NaOH 0,5 M.
- Monte os componentes do cassete conforme ilustrado na Figura 3A em uma cabine de segurança biológica.
- Ultracentrifugação em gradiente de densidade de iodixanol
- Ligue o ultracentrífugo e configure-o para pré-resfriamento a 4 °C. Pré-resfrie também o rotor desejado a 4 °C (consulte a Tabela de Materiais).
NOTA: Os rotores devem ser armazenados a 4 °C. - Use a solução estoque de iodixanol a 60% (concentração no momento da compra) para gerar soluções de iodixanol a 40%, 20% e 10%, diluindo com PBS e tampão ML 3× até atingir uma concentração final de ML buffer 1×.
- Em um tubo de ultracentrífuga de parede fina, topo aberto, de 13,2 mL, sobreponha 0,5 mL, 2,5 mL e 2,5 mL das soluções de iodixanol a 40%, 20% e 10%, respectivamente (Figura 4A).
NOTA: Inclinar o tubo de ultracentrífuga de lado e expelir lentamente a solução reduzirá significativamente o risco de misturar as camadas do gradiente. A separação de cada camada deve ser evidente, com um "halo" visível entre cada camada do gradiente. - Use uma caneta marcadora para identificar as interfaces entre as diferentes camadas do gradiente.
- Deposite cuidadosamente 6-6,5 mL do vírus eluído do procedimento TFF sobre o gradiente de densidade. Adicione o vírus conforme descrito na etapa 2.3.3 para evitar perturbar o gradiente de densidade.
- Carregue os tubos de ultracentrífuga nos suportes do rotor de balde oscilante (consulte a Tabela de Materiais) usando uma balança de topo aberto para equilibrar os suportes com diferença máxima de 0,01 g entre si. Use PBS ou eluente extra do vírus para compensar diferenças de peso.
- Após equilibrar os tubos, tampe-os e carregue-os no rotor.
- Centrifugue por 1,5 h a 125.000 × g a 4 °C.
NOTA: Isso pode ser feito durante a noite se um ultracentrífugo com função de partida atrasada estiver disponível. - Após a ultracentrifugação, remova os tubos com um par de pinças estéreis. Procure a banda-alvo, uma banda larga entre os gradientes de 10% e 20% (Figura 4B).
- Suspenda o tubo sobre um béquer usando um suporte com haste.
- Acople uma agulha de 18 G × 1,5 polegadas a uma seringa de 5 mL e perfure a lateral do tubo de ultracentrífuga.
NOTA: O tubo deve ser perfurado ligeiramente abaixo da banda-alvo, com a agulha em ângulo ascendente e o bisel voltado para cima, de modo que penetre na banda-alvo. - Estenda lentamente o êmbolo para remover a banda-alvo.
NOTA: Mova a agulha dentro da banda-alvo para maximizar a extração do vírus. Tenha cuidado para que outras bandas ou detritos não se misturem à banda-alvo, e evite coletar excesso de solução, pois isso exigirá mais cassetes de diálise. - Após extrair a banda-alvo, remova a agulha e deixe o restante da solução escorrer para o béquer de resíduos. Dispense a banda-alvo em um tubo cônico de 50 mL até que todas as bandas de todos os outros tubos de ultracentrífuga tenham sido extraídas.
- Repita as etapas 2.3.10-2.3.13 até que todas as bandas-alvo tenham sido extraídas de todos os tubos de ultracentrífuga.
- Abordagem alternativa para extração das bandas-alvo conforme descrito nas etapas 2.3.10 a 2.3.13
- Remova lentamente o líquido que sobrepõe a banda-alvo usando uma pipeta. Ao atingir a banda-alvo, extraia-a com a pipeta e armazene o vírus em um tubo cônico de 50 mL.
NOTA: Isso permite que os tubos de ultracentrífuga sejam reutilizados.
- Remova lentamente o líquido que sobrepõe a banda-alvo usando uma pipeta. Ao atingir a banda-alvo, extraia-a com a pipeta e armazene o vírus em um tubo cônico de 50 mL.
- Ligue o ultracentrífugo e configure-o para pré-resfriamento a 4 °C. Pré-resfrie também o rotor desejado a 4 °C (consulte a Tabela de Materiais).
- Remoção de iodixanol da solução viral
NOTA: A banda contendo VND aparece em uma densidade de iodixanol entre 15% e 16%. A concentração de iodixanol na solução pode ser determinada medindo a absorbância a 340 nm em referência a uma curva padrão. Esta etapa pode ser omitida, pois não foram observados efeitos adversos ou toxicidade aguda quando soluções de iodixanol nesta concentração foram administradas a camundongos C57BL/6.- Pré-umedecer um cassete de diálise com corte de peso molecular de 10 kDa, volume de 0,5-3 mL, submergindo-o em PBS por 1 min.
NOTA: A membrana de diálise deve mudar de aparência lisa para rugosa ou irregular. Se o volume de vírus extraído exceder 10 mL, dois cassetes de diálise de 0,5-3 mL ou um cassete de 5-12 mL devem ser utilizados. - Conforme necessário, use uma seringa de 5 ou 10 mL e uma agulha romba de 18 G × 1,5 polegadas para coletar o vírus do tubo cônico de 50 mL.
- Use a seringa para inserir no cassete de diálise, tomando cuidado para não perfurar a membrana, e injete o vírus.
NOTA: O cassete de diálise pode ser girado para manipular a posição do bolsão de ar no interior. O bolsão de ar deve ser removido antes de retirar a agulha do cassete. - Encha um béquer de 1 L com PBS 1× estéril, coloque um bastão de agitação e o cassete de diálise no interior e cubra. Incube a 4 °C com agitação suave.
NOTA: Use espuma de poliestireno expandido e uma faixa elástica para fixar o cassete de diálise de modo que ele flutue no PBS. O cassete pode inchar ligeiramente devido ao tampão ML. - Após 1-2 h, substitua por PBS 1× fresco e continue a incubação a 4 °C por mais 8-10 h com leve agitação.
NOTA: Isso também pode ser feito durante a noite. - Substitua novamente por PBS 1× fresco, incubando à temperatura ambiente por 1-2 h.
- Pré-umedecer um cassete de diálise com corte de peso molecular de 10 kDa, volume de 0,5-3 mL, submergindo-o em PBS por 1 min.
- Concentração da solução viral
- Remova o cassete de diálise do tampão de diálise (Figura 4C) e coloque-o em um saco plástico pequeno e hermético. Adicione 15-25 mL de polietilenoglicol de 40%, peso molecular 20.000, de modo que o cassete de diálise fique completamente submerso.
- Incube à temperatura ambiente com agitação suave. Verifique periodicamente o volume do vírus no cassete usando uma seringa de 5 ou 10 mL e uma agulha romba de 18 G × 1,5 polegadas.
NOTA: O tempo necessário para concentrar o vírus varia conforme o volume inicial e o volume final desejado. Normalmente, o volume final desejado está entre 1 e 1,5 mL, independentemente do volume inicial do líquido alantoico. Ao verificar o volume, tenha cuidado para não usar o mesmo orifício, pois isso comprometerá a integridade do orifício e poderá resultar na mistura da solução de polietilenoglicol com o vírus. - Antes de remover o vírus concentrado do cassete de diálise, enxágue brevemente o cassete em PBS 1× e encha uma agulha romba de 18 G × 1,5 polegadas com ar.
- Insira a seringa cheia de ar no cassete de diálise e pressione o êmbolo. Gire o aparato para que o vírus concentrado possa ser removido sem retirar o ar introduzido.
- Dispense o vírus concentrado em um tubo cônico de 50 mL, anotando o volume dispensado.
- Usando a mesma seringa e agulha, injete uma quantidade apropriada de sacarose a 60% no cassete de diálise, de modo que, quando combinada com o vírus previamente removido, resulte em uma concentração final de 5% de sacarose.
- Use os dedos com luvas para massagear a membrana e soltar o vírus residual que possa ter aderido, tomando cuidado para não danificá-la. Remova parte do ar em excesso no cassete de diálise para facilitar o processo de desprendimento.
- Combine esta lavagem com o vírus já presente no tubo cônico de 50 mL.
NOTA: O vírus agora está em sacarose a 5% e pronto para ser fracionado em alíquotas de 20 µL, 50 µL, 100 µL ou 200 µL e armazenado a -80 °C. Alternativamente, para armazenamento de longo prazo, o VND pode ser liofilizado e armazenado a 4 °C conforme descrito na seção 2.6.
Resultados
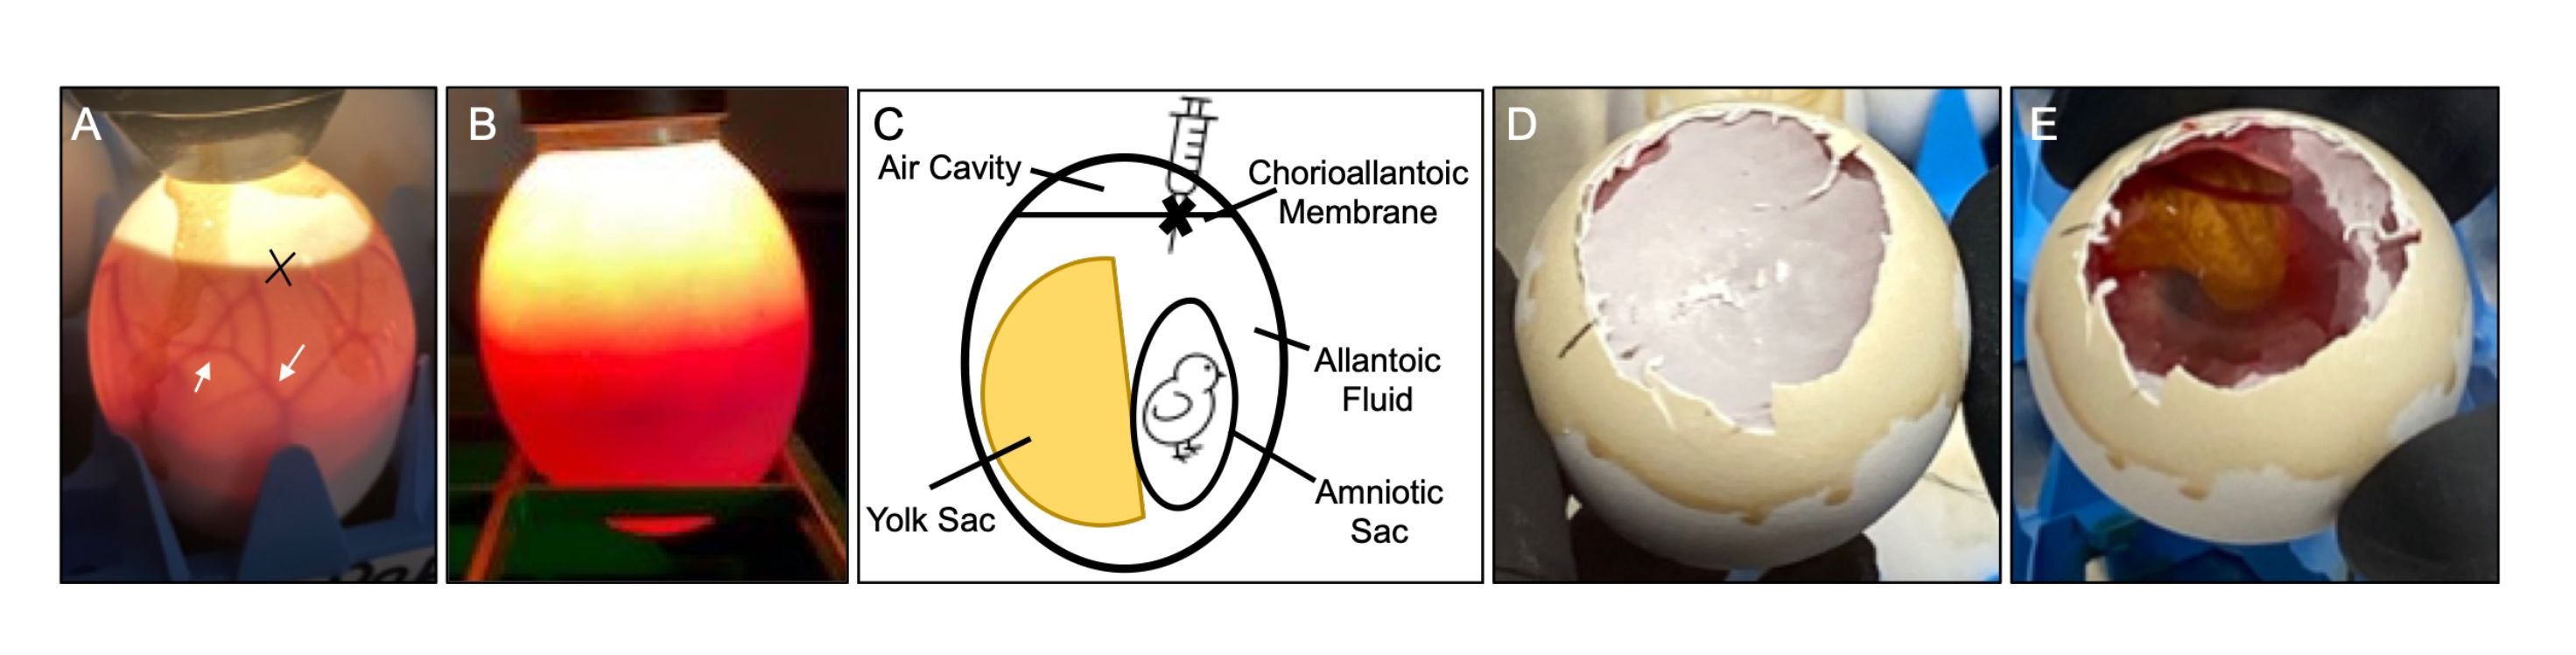
Figura 1: Infecção e coleta de NDV de ovos de galinha embrionados livres de patógenos especificados. (A) A vasculatura em forma de teia (setas) deve ser aparente após 9 dias de incubação, além do movimento do embrião. 'X' indica a interface entre a membrana corioalantoide e a câmara de ar, e o local onde o orifício deve ser feito para inoculação do ovo. (B) Imagem mostrando um embrião morto. Observe a ausência de vasculatura em forma de teia. Também será observada ausência de movimento do embrião. (C) Diagrama dos componentes de um ovo de galinha embrionado, mostrando as localizações da câmara de ar, saco vitelino, saco amniótico, membrana corioalantoide e fluido alantoico. (D) Remoção da casca para expor a membrana corioalantoide. (E) Ilustra como o fluido alantoico e o embrião devem parecer após a abertura da membrana corioalantoide. Abreviação: NDV = vírus da doença de Newcastle.
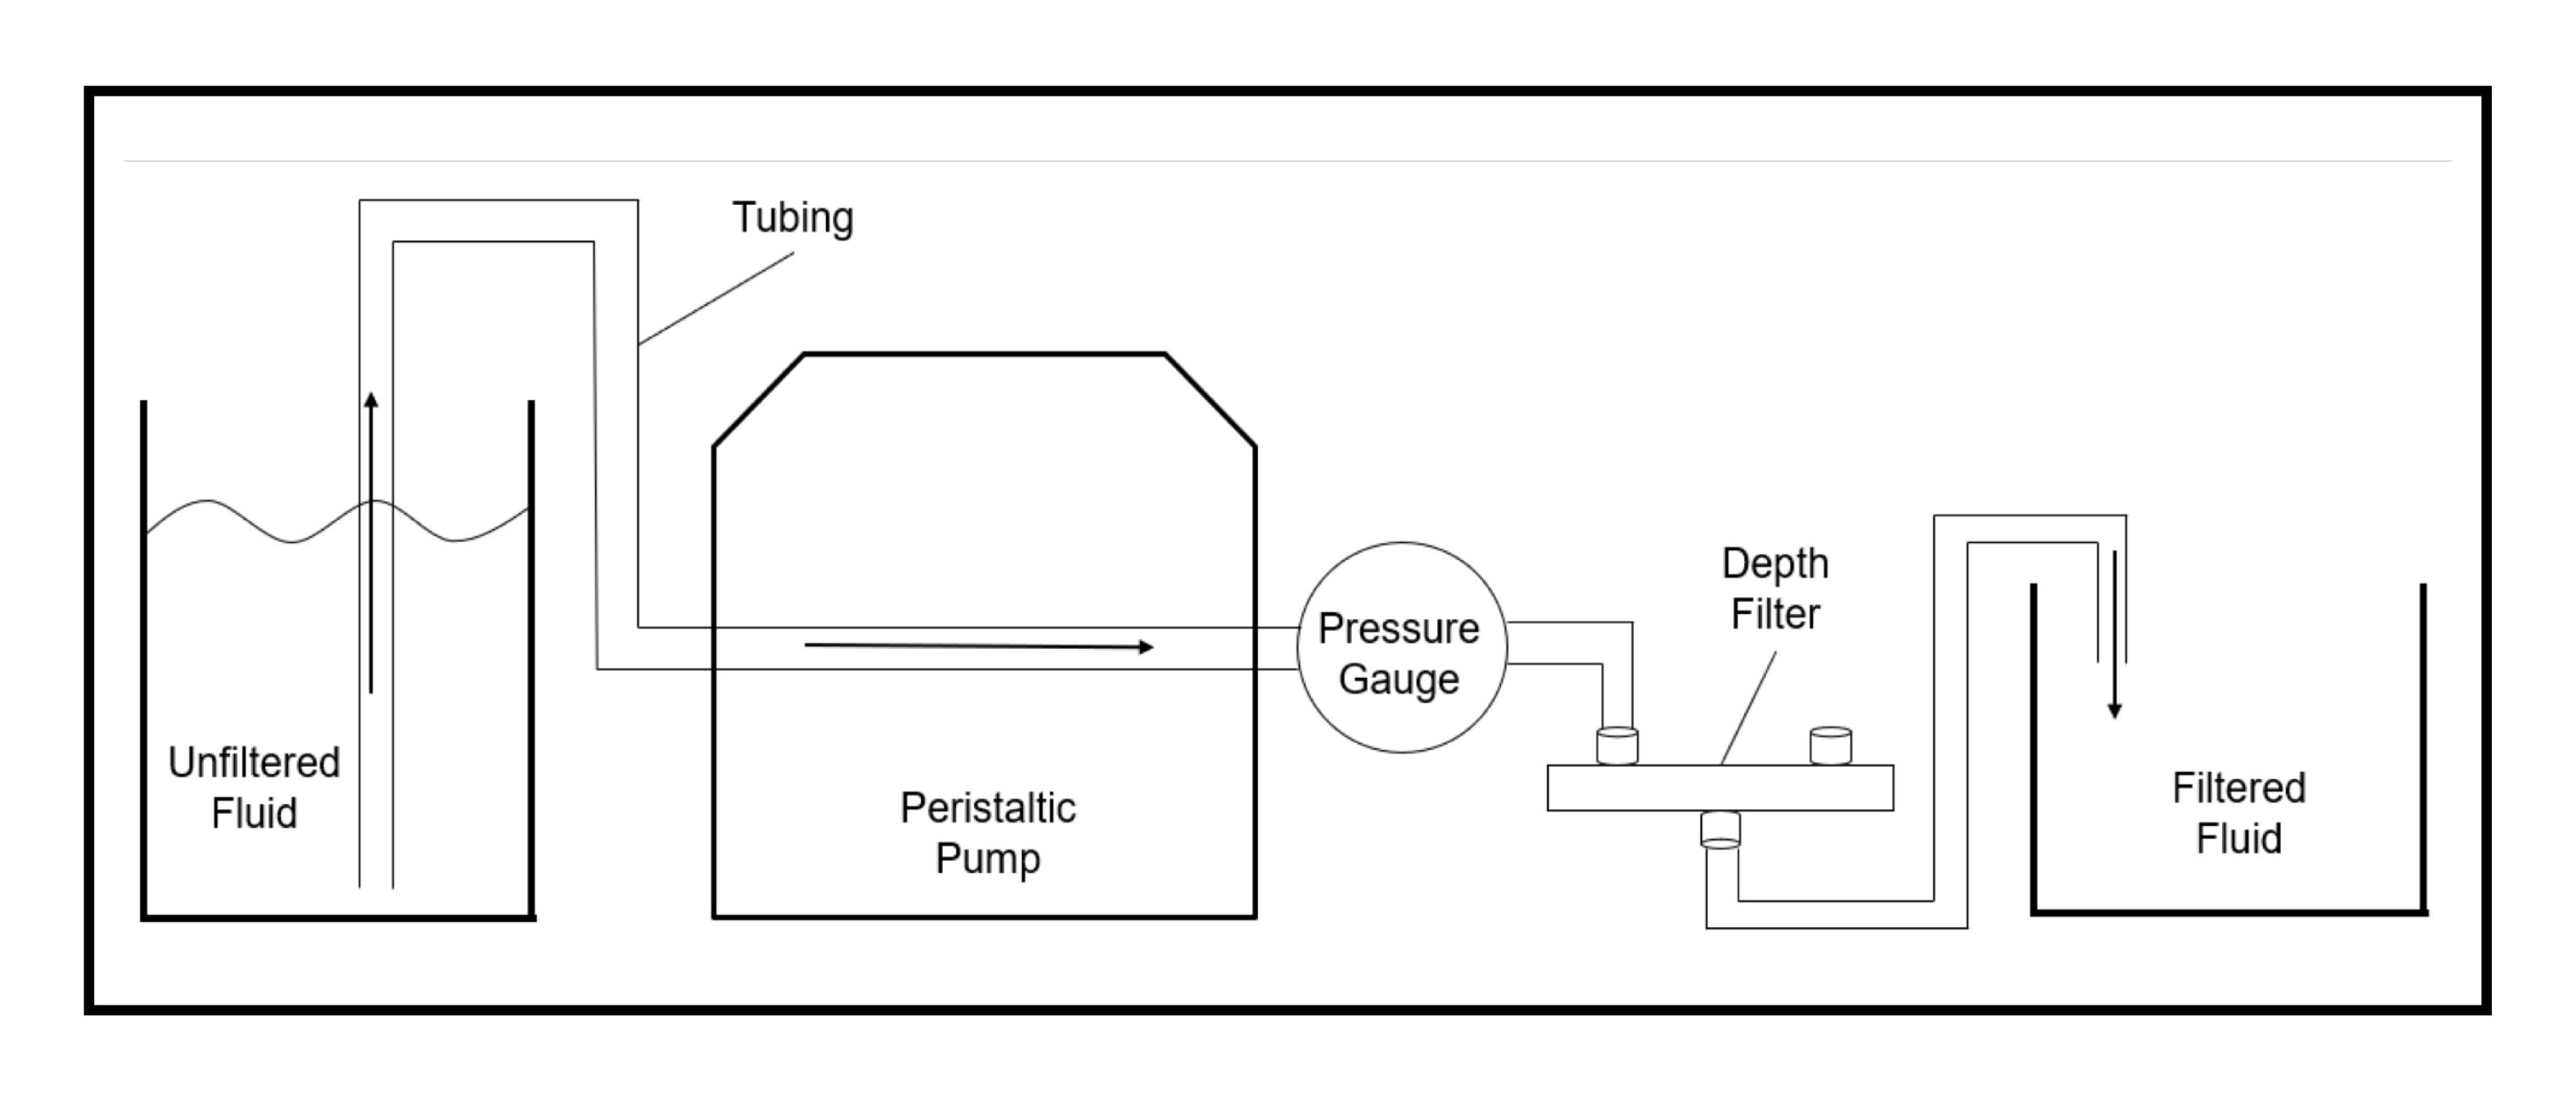
Figura 2: Esquema mostrando a montagem geral do aparelho utilizado para filtração em profundidade. Certifique-se de que o manômetro esteja instalado a montante do filtro em profundidade.
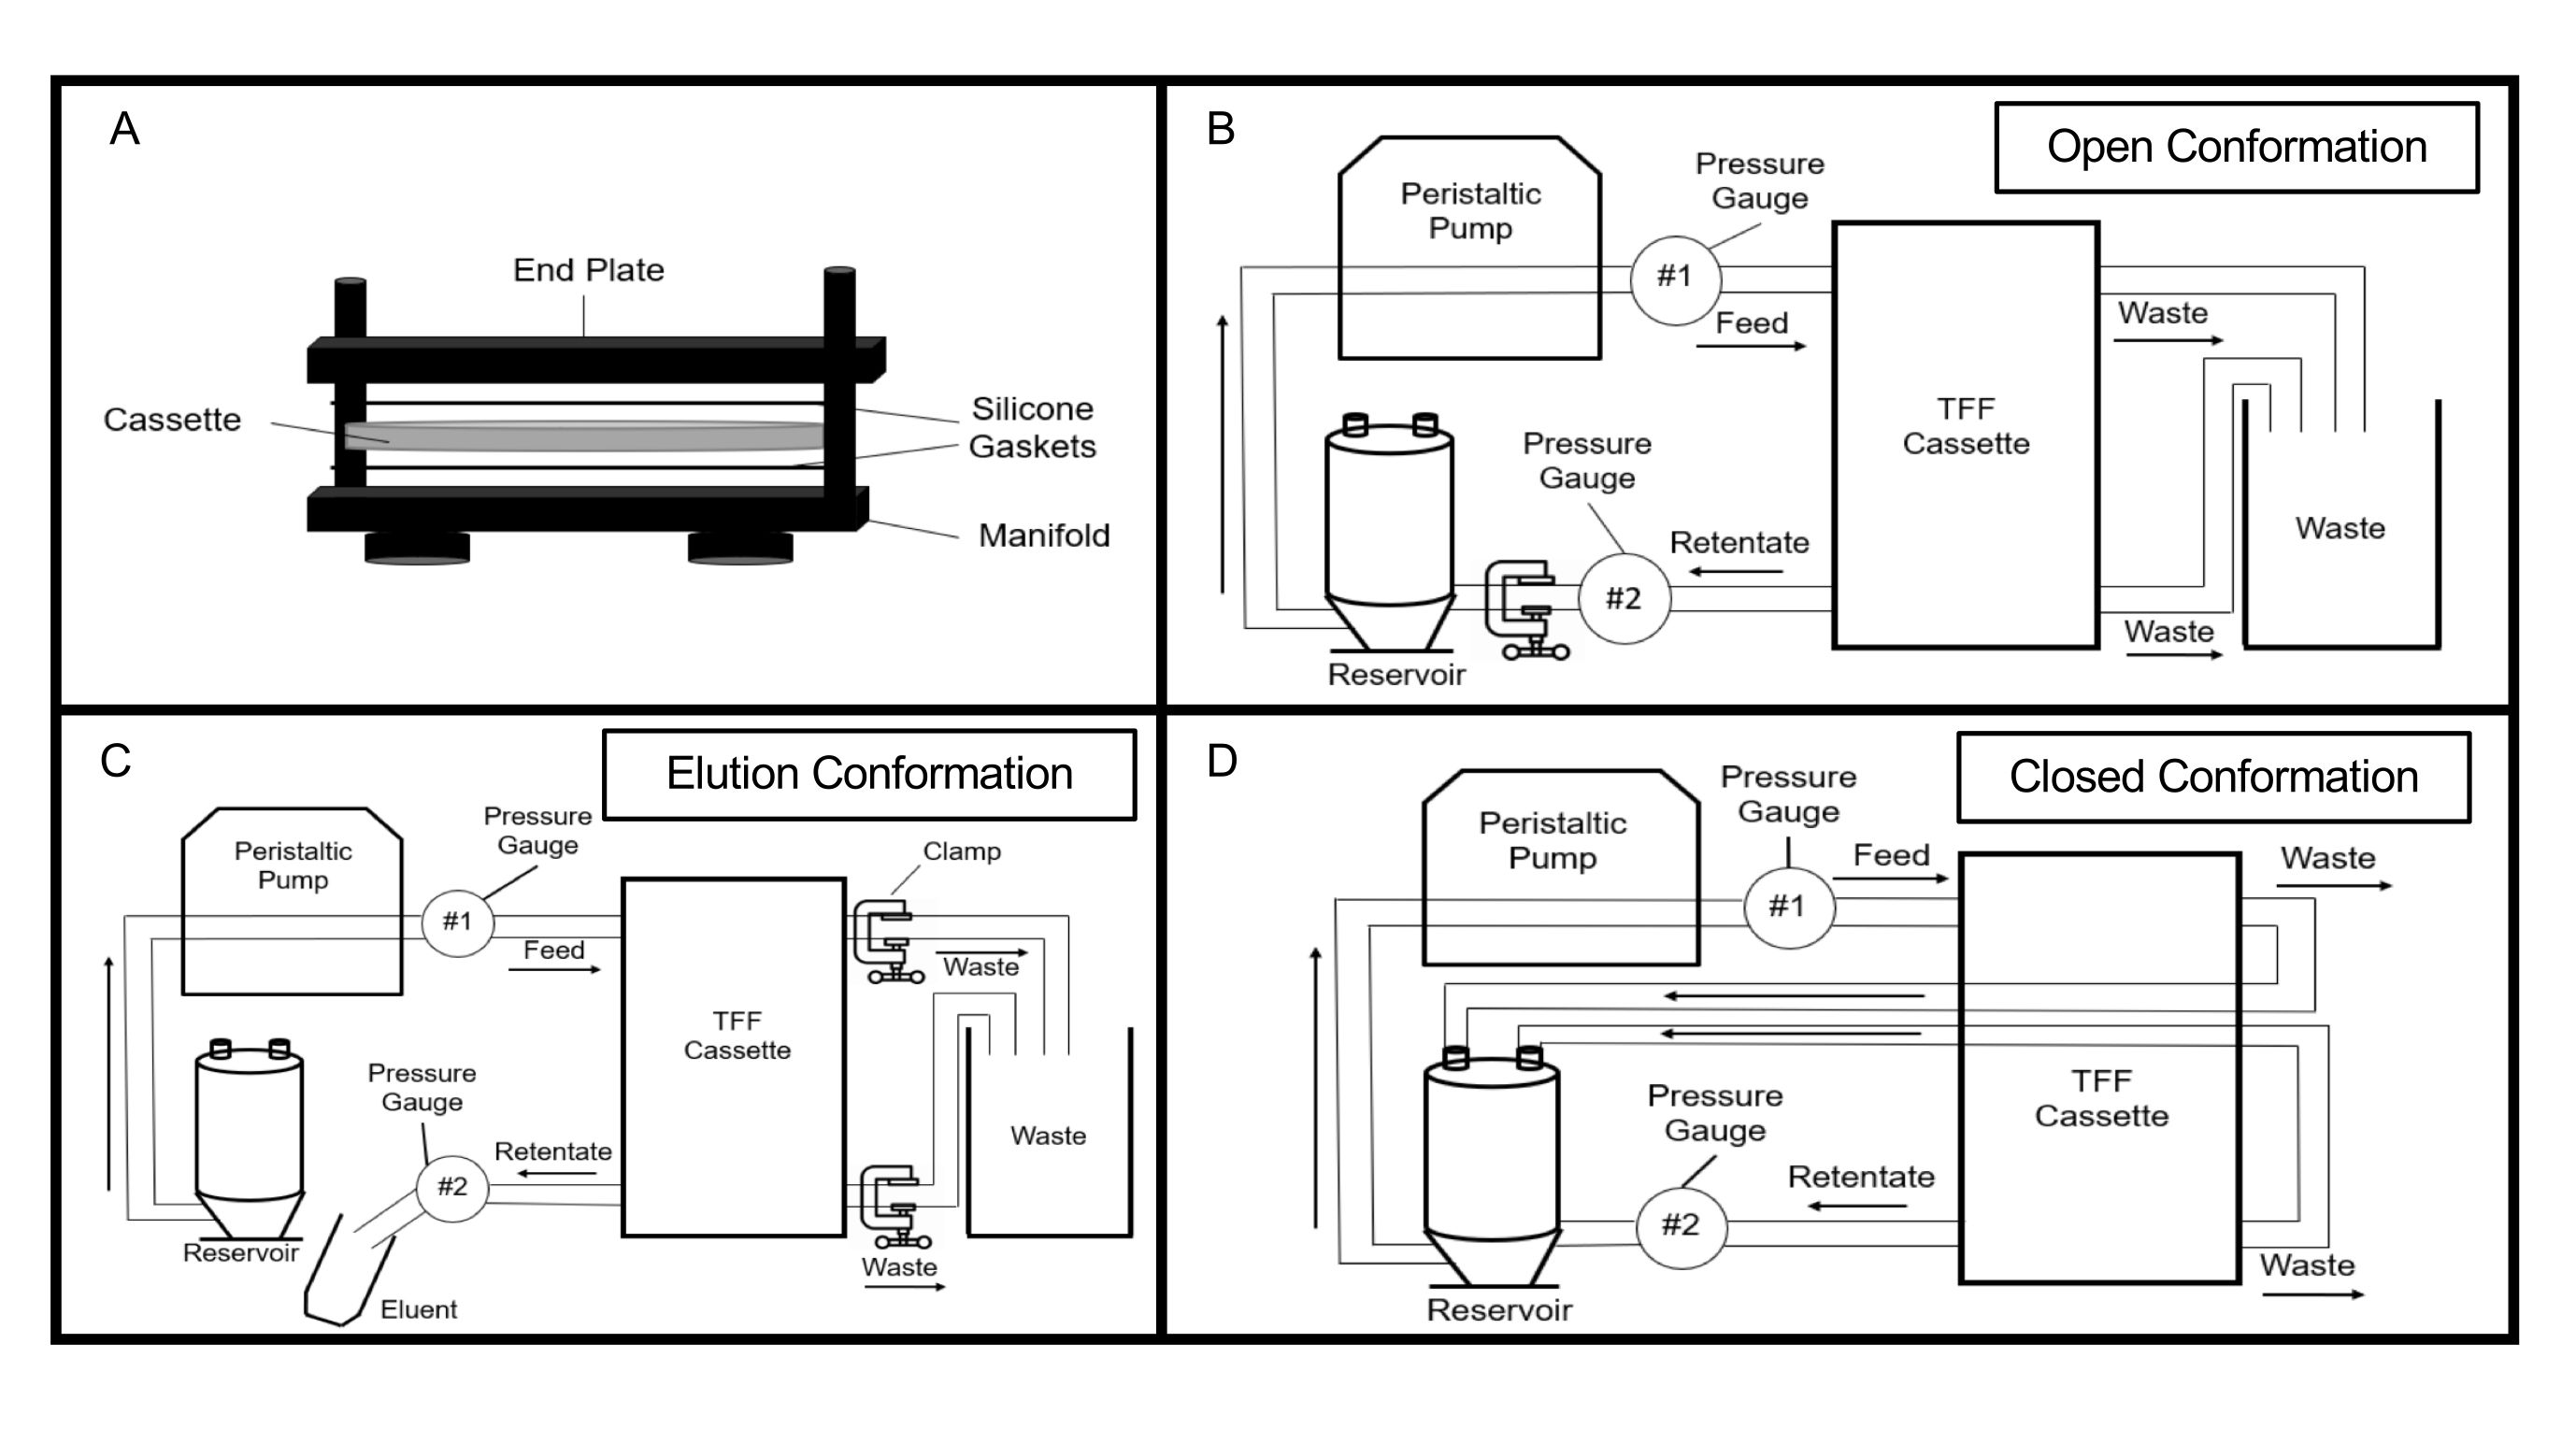
Figura 3: Configuração do sistema de filtração de fluxo tangencial em suas diferentes configurações. As setas indicam a direção do fluxo do fluido. (A) Ilustração de como o cassete de FTF é montado. (B) Esquema do sistema de FTF em sua configuração "aberta", utilizada durante a purificação e concentração do fluido. (C) Esquema da configuração de FTF quando o fluido está sendo eluído do sistema, conforme utilizado durante a eluição do vírus e da solução de limpeza. (D) Esquema do sistema de FTF em sua configuração "fechada", que é usada durante a limpeza do sistema de FTF. Abreviação: FTF = Filtração de fluxo tangencial.
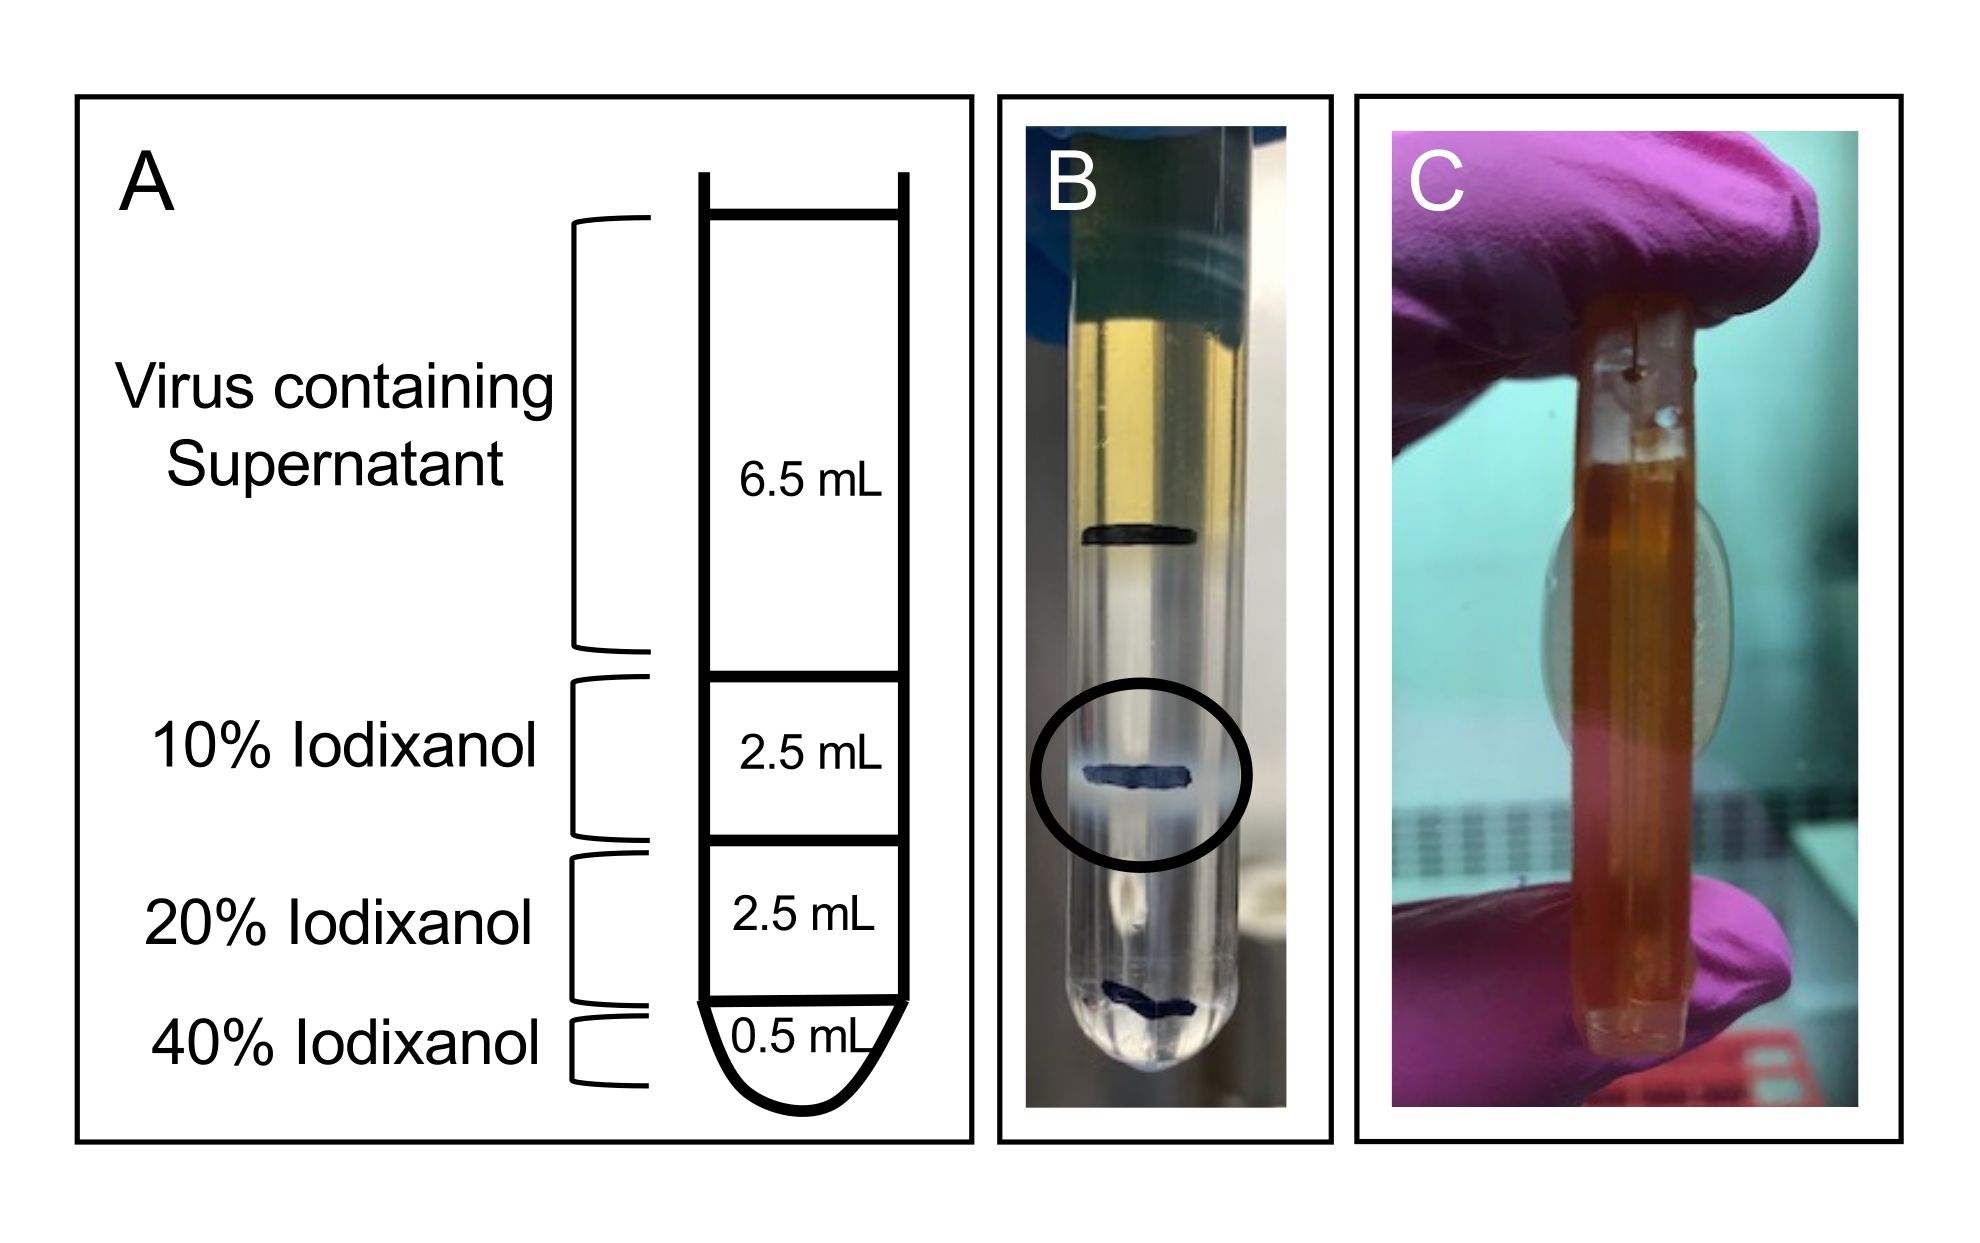
Figura 4: Ultracentrifugação em gradiente de densidade e diálise do vírus concentrado a partir da TFF. (A) Esquema mostrando a composição do gradiente de densidade de iodixanol. (B) Padrão de bandas virais após ultracentrifugação do vírus produzido utilizando o tampão ML durante o processo de purificação. A banda principal contendo o vírus é indicada por uma elipse preta. (C) Tamanho típico de um cassete de diálise carregado com 10 mL de vírus preparado por meio de gradiente de iodixanol ao final do procedimento de diálise. Abreviatura: TFF = Filtração tangencial; ML = Manitol-Lisina.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| seringa com ponta lisa de 1 mL | BD | 309659 | |
| seringa Luer-Lok de 10 mL | BD | 302995 | |
| solução de poviodona-iodo a 10% | LORIS | 109-08 | |
| tubos cónicos de 15 mL | Thermo-Fisher | 14955240 | |
| agulha romba de 18G x 1 1/2 pol. | BD | 305180 | |
| agulha Precision Glide de 18G x 1 1/2 pol. | BD | 305196 | |
| agulha de 25G x 5/8 pol. | BD | 305122 | |
| seringa Luer-Lok de 5 mL | BD | 309646 | |
| ácido acético glacial | Thermo-Fisher | A38-212 | |
| agarose | Froggabio | A87-500G | |
| Alexa-Fluor 488 caprino anti-murino | Invitrogen | A11001 | |
| centrífuga Allegra X-14 | Beckman Coulter | B08861 | |
| persulfato de amónio | BioRad | 161-0700 | |
| água sanitária (5%) | Thermo-Fisher | 36-102-0599 | |
| pinceta de ponta larga sem serrilha | Thermo-Fisher | 09-753-50 | |
| azul de bromofenol | Sigma-Aldrich | 114405-25G | |
| suporte para cassete Centramate | PALL | CM018V | |
| ChemiDoc XRS+ | BioRad | 1708265 | |
| incubadora digital de ovos Sportsman 1502 | Berry Hill | 1502W | |
| D-manitol | Sigma-Aldrich | M4125-500G | |
| candeeiro de ovos | Berry Hill | A46 | |
| etanol (70%) | Thermo-Fisher | BP82031GAL | |
| conexões em T fêmeas roscadas, em náilon, 1/8 pol. NPT(F) | Cole-Parmer | 06349-50 | |
| kit de umidade | Berry Hill | 3030 | |
| iodixanol | Sigma-Aldrich | D1556 | solução a 60% (p/v) de iodixanol em água (esterilizada) |
| cloridrato de L-lisina | Sigma-Aldrich | 62929-100G-F | |
| conexões macho e fêmea Luer-Lok com rosca nacional de 1/8 pol., NPT | Cole-Parmer | 41507-44 | |
| Masterflex L/S Digital Drive | Cole-Parmer | RK-07522-20 | bomba peristáltica com visor digital |
| cabeçote de bomba Masterflex L/S Easy Load para tubos de precisão | Cole-Parmer | RK-07514-10 | |
| tubo de silicone Masterflex (platina) L/S 16 | Cole-Parmer | 96420-16 | silicone curado com platina BioPharm |
| cassete Centramate de membrana Omega LV, 100K | PALL | OS100T02 | |
| ultracentrífuga Optima XE-90 | Beckman Coulter | A94471 | |
| solução PBS 10X | Thermo-Fisher | BP399-20 | |
| poli(óxido de etileno), Mn médio 20.000 | Sigma-Aldrich | 81300-1KG | |
| cassete de diálise Slide-a-lyzer (extraforte), 10.000 MWCO, 0,5-3 mL | Thermo-Fisher | 66380 | |
| hidróxido de sódio (em pellets) | Thermo-Fisher | S318-10 | |
| ovos livres de patógenos específicos | CFIA | NA | o fornecedor varia conforme a localização |
| sacarose | Thermo-Fisher | S5-3 | |
| filtro de profundidade Supracap 50 | PALL | SC050V100P | |
| tesoura cirúrgica | Thermo-Fisher | 08-951-5 | |
| rotor Sw41Ti | Beckman Coulter | 331362 | utilizado na etapa 2.3.1, 2.3.6, 2.3.7 do protocolo |
| rotor SX4750 | Beckman Coulter | 369702 | |
| adaptador SxX4750 para tubos com fundo cónico | Beckman Coulter | 359472 | |
| tubos de centrífuga Ultraclear de parede fina (9/16 pol. x 3 1/2 pol.) | Beckman Coulter | 344059 | |
| braçadeira de tubo com parafuso | PALL | 88216 | |
| manómetros de pressão utilitários | Cole-Parmer | 68355-06 |
