Todos os procedimentos envolvendo modelos animais foram revisados pelo comitê institucional local de cuidados com animais e pelo conselho de revisão veterinária JoVE.
1. Preparação de mídia
- Adicione todos os componentes, conforme descrito na Tabela 1, para tornar o meio básico de coleta de oócitos e o meio de maturação de oócitos. Para o meio de coleta básico, ajuste o pH para 7.4. Tanto para o meio de colheita como para o meio de maturação, adicionar 3 mg/ml de albumina sérica bovina (BSA) e 1 μM de cilostamida no dia da utilização.
2. Preparação de codificação de mRNA para Ypet-3' UTR e mCherry
- Obtenha as sequências 3′ UTR dos mRNAs de interesse.
nota: Para este estudo, as sequências foram obtidas anteriormente do cDNA de oócitos de camundongos.
- Projete primers para amplificar os UTRs alvo 3 'do cDNA do oócito e porções do vetor pcDNA 3.1 contendo uma sequência de codificação Ypet, etiqueta de epítopo V5 e um promotor T7.
- Amplifice usando um kit de DNA polimerase de alta fidelidade. Execute os produtos de reação em cadeia da polimerase (PCR) em um gel para verificar se os fragmentos têm o tamanho correto, corte as bandas e extraia o DNA do gel usando um kit de extração de gel de acordo com as instruções do fabricante.
- Funda os fragmentos de PCR em um vetor usando um kit de clonagem de PCR.
nota: Os fragmentos de PCR foram incubados em gelo por 4 h para facilitar um processo de recombinação mais eficiente. Isso é contrário às instruções do fabricante, que recomendam um tempo de incubação de apenas 45 min.
- Transfecta fragmentos de PCR em bactérias Escherichia coli 5-α competentes.
- Adicione a mistura e o plasmídeo às bactérias e incube no gelo por 30 min.
- Choque térmico da mistura e do plasmídeo colocando a mistura em banho-maria a 42 ° C por 45 s e resfrie imediatamente com gelo por 3 min.
- Adicione 500 μL de caldo Super Optimal com meio de repressão catabólica (SOC) e incube por 1 h a 37 °C.
- Gire para baixo a 7000 × g por 2 min e remova a maior parte do sobrenadante. Ressuspenda e coloque em uma placa de ágar Luria Broth (LB) com o antibiótico de seleção apropriado.
nota: A carbenicilina foi utilizada neste estudo.
- Incubar durante a noite a 37 °C. Isolar as colónias pressionando ligeiramente a ponta de uma pipeta numa das colónias e colocando-a em 3 ml de meio LB com 100 μg/ml de carbenicilina. Incubar durante 12-24 h a 37 °C.
- Extraia o DNA dos plasmídeos usando o kit de isolamento de DNA de plasmídeo de acordo com as instruções do fabricante e confirme as sequências por meio de sequenciamento de DNA.
- Para Ypet/3' UTR:
- Produzir um modelo de PCR linear para transcrição in vitro. Use um primer direto a montante da sequência Ypet e um primer reverso com 20 resíduos de timina adicionais. Consulte a Tabela 2 para a sequência de Ypet/IL-7 3' UTR e as sequências dos primers direto e reverso.
nota: Esses resíduos adicionais de timina adicionarão oligo (A) ao mRNA linear após a transcrição in vitro.
- Transcreva in vitro o produto de PCR usando um kit de transcrição T7 de acordo com as instruções do fabricante.
- Purifique o RNA complementar resultante (cRNA) usando um kit de limpeza de transcrição de acordo com as instruções do fabricante.
- Eluir o cRNA purificado em água livre de RNAse, medir a concentração e avaliar a integridade por eletroforese de agarose. Conservar a -80 °C.
- Para mCherry:
- Produzir um modelo de PCR linear para a transcrição in vitro utilizando uma enzima de restrição de alta fidelidade; utilizar a enzima de restrição mfEI-HF se replicar este exemplo. Digerir num tampão de digestão durante a noite a 37 °C.
- Execute um gel para purificar a amostra e extraia o DNA linear usando um kit de extração de gel de acordo com as instruções do fabricante.
- Transcreva in vitro o produto de PCR usando um kit de transcrição T7 de acordo com as instruções do fabricante.
- Poliadenilato do cRNA (150-200 nucleotídeos) usando um kit de rejeito poli(A) de acordo com as instruções do fabricante.
- Purifique o cRNA resultante usando um kit de limpeza de transcrição de acordo com as instruções do fabricante.
- Eluir o cRNA purificado em água livre de RNAse, medir as concentrações de mRNA e avaliar a integridade da mensagem por eletroforese em gel. Conservar a -80 °C.
3. Procedimento experimental
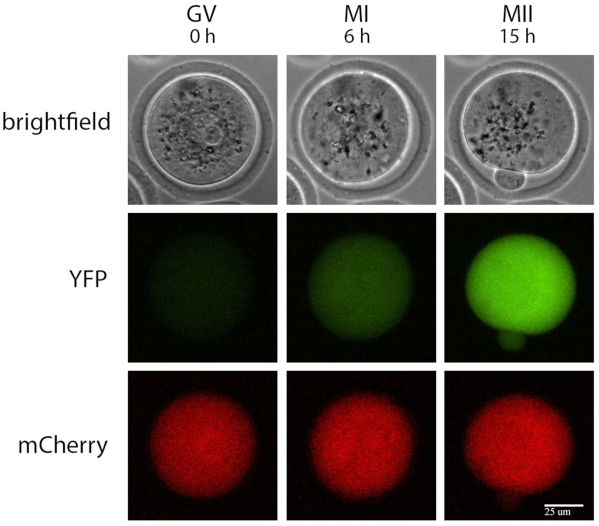
NOTA: Uma visão geral esquemática da microinjeção de oócitos e da microscopia de lapso de tempo subsequente é fornecida na Figura 1.
- Dia 1
- Injete intraperitonealmente camundongos de 21 dias de idade com 5 UI de gonadotrofina sérica de égua prenhe para promover o crescimento do folículo até o estágio antral.
- Dia 3
- Coleta de oócitos
- Abra cuidadosamente os folículos antrais fazendo um pequeno corte na parede do folículo com uma agulha de 26 G. Isole oócitos intactos com cúmulos fechados (COCs) com várias camadas de células do cumulus usando uma pipeta de vidro operada pela boca.
- Use uma pipeta menor (ligeiramente maior que o diâmetro do oócito) e desnude mecanicamente os AOCs por pipetagem repetida.
nota: Como alternativa, execute a microinjeção em COCs intactos.
- Usando uma pipeta maior, aspire os oócitos desnudos e coloque-os em uma placa de Petri com um meio de maturação suplementado com 1 μM do inibidor da fosfodiesterase, cilostamida, para evitar a retomada da maturação meiótica. Coloque o prato na incubadora por 2 h para permitir que os oócitos se recuperem do estresse induzido pelo isolamento dos oócitos dos folículos.
- Microinjeção de oócitos
- Preparar as agulhas de injecção colocando um tubo capilar de vidro borossilicato de 10 cm de comprimento num extrator mecânico. Para uma injeção ideal, dobre a ponta da agulha em um ângulo de 45° usando um filamento aquecido.
- Prepare placas de poliestireno com gotículas de 20 μL de meio básico de coleta de oócitos e cubra as gotículas com óleo mineral leve.
- Prepare uma mistura repórter adicionando 12,5 μg/μL Ypet-3' UTR e 12,5 μg/μL mCherry. Prepare um volume maior e faça alíquotas para experimentos futuros para garantir concentrações semelhantes de repórteres. Armazenar estas alíquotas a -80 °C. Após o descongelamento, primeiro centrifugar a alíquota por 2 min a 20.000 x g e transferir para um novo tubo de microcentrífuga.
nota: Essa centrifugação evitará que a agulha de injeção fique entupida por agregados potenciais na mistura repórter.
- Carregue a agulha de injeção por capilaridade com aproximadamente 0,5 μL de mistura repórter.
- Coloque a pipeta de retenção e a agulha de injeção carregada nos suportes e posicione na gota do meio de coleta de oócitos. Aspire um pouco do meio para a pipeta de retenção.
- Abra a agulha de injeção batendo suavemente contra a pipeta de retenção.
- Coloque os oócitos em uma gota de meio de coleta básico e injete 5-10 pL da mistura repórter.
- Incubar os ovócitos no meio de maturação com 1 μM de cilostamida durante 16 h para permitir que o sinal mCherry se estabilize.
- Preparar uma placa de Petri que será utilizada para microscopia de lapso de tempo com pelo menos duas gotículas de 20 μL de meio de maturação para cada repórter injetado: uma gota com 1 μM de cilostamida para oócitos controlados com prisão de prófase I e uma gota sem cilostamida para oócitos em maturação. Cubra as gotículas com óleo mineral leve e coloque na incubadora.
- Microscopia de lapso de tempo
- Após a pré-incubação, retirar os ovócitos injetados da incubadora e lavá-los quatro vezes em meio de maturação sem cilostamida. Manter alguns ovócitos em meio de maturação com 1 μM de cilostamida como grupo controle de oócitos com parada de prófase I.
- Transfira os oócitos injetados para suas respectivas gotículas na placa de microscópio de lapso de tempo previamente preparada. Agrupe os oócitos usando uma pipeta de vidro fechada (uma pipeta fechada pode ser preparada segurando a ponta em uma chama por alguns segundos).
nota: O agrupamento dos oócitos ajuda a impedir seu movimento durante a gravação.
- Coloque o prato sob o microscópio equipado com um sistema de iluminação de diodo emissor de luz e um estágio motorizado equipado com uma câmara ambiental mantida a 37 ° C e 5% de CO2. Para replicar este estudo, use os seguintes parâmetros: conjunto de filtros: espelho dicróico YFP/CFP/mCherry 69008BS; Canal YFP (Excitação (Ex): S500/20 × 49057; Emissão (EM): D535/30 m 47281), canal mCherry (Ex: 580/25 × 49829; Em: 632/60 m).
- Insira as configurações apropriadas para o experimento de lapso de tempo (consulte a Tabela de Materiais para o software usado neste estudo): Clique em Aplicativos | Aquisição multidimensional. Selecione a primeira guia Principal e selecione timelapse, várias posições de estágio e vários comprimentos de onda.
- Selecione a guia Salvando para inserir o local onde o experimento deve ser salvo.
- Selecione a guia Timelapse para inserir o número de pontos de tempo, duração e intervalo de tempo.
nota: A duração do experimento de lapso de tempo depende da espécie animal estudada, pois o momento da maturação meiótica do oócito difere entre as espécies. Neste experimento com oócitos de camundongos, os oócitos foram registrados a cada 15 min por 16 h.
- Selecione a guia Estágio. Ligue o campo claro e localize a posição dos oócitos abrindo uma nova janela selecionando Adquirir | Adquirir | Show ao vivo. Assim que os oócitos estiverem localizados, volte para a janela Aquisição Multidimensional e pressione + para definir a localização dos oócitos.
- Selecione a guia Comprimentos de onda e defina 3 comprimentos de onda diferentes para campo claro (exposição 15 ms), YFP (exposição 150 ms para Ypet/IL7 3' UTR) e mCherry (exposição 75 ms para Ypet/IL7 3' UTR).
nota: Ajuste a exposição para cada repórter Ypet/3' UTR com base no nível de acúmulo de repórter e no volume injetado. Certifique-se de que o sinal YFP cai no centro da faixa de detecção no início do experimento para evitar subestimação ou saturação em caso de ativação da tradução. Para mCherry, ajuste a exposição para cada lote de mCherry, pois o sinal depende do número de nucleotídeos de adenina que foram adicionados durante o procedimento de poliadenilação. Devido à variação na eficiência da poliadenilação, use o mesmo lote de mCherry em diferentes experimentos para uma melhor comparação entre os experimentos.
- Inicie o experimento de lapso de tempo clicando em Adquirir. Veja a Figura 1 para um exemplo de gravação de lapso de tempo em um único oócito.
- Análise da tradução UTR de Ypet-3'
- Para esta análise (ver Tabela de Materiais para o software utilizado neste estudo), realizar duas medidas de região para cada oócito: o próprio oócito - clique na região da elipse e circunda o oócito - e uma pequena região próxima ao oócito a ser usada para subtração de fundo - clique na região retangular.
nota: Certifique-se de que os oócitos não se movam para fora da região selecionada durante a gravação de lapso de tempo. Preste atenção especial à colocação da medição da região ao redor da extrusão do corpo polar, pois isso causa movimento no oócito e pode distorcer o registro.
- Exporte os dados de medição da região para uma planilha clicando primeiro em Abrir registro e depois em Dados de registro para exportar o software de análise de dados.
- Para cada oócito individual e para todos os pontos de tempo medidos, subtraia a medição da região de fundo da medição da região do oócito. Faça isso para os comprimentos de onda YFP e mCherry separadamente.
Tabela 1: Preparação da mídia. Lista de componentes que precisam ser adicionados para preparar o meio básico de coleta de oócitos e o meio de maturação de oócitos.
| Meio básico de coleta de oócitos | |
| componente | Para 500 mL |
| HEPES modificado Mínimo Essencial Médio Águia | 7,1 gramas |
| bicarbonato de sódio | 252 mg |
| Piruvato de sódio | 1,15 mL |
| Penicilina/Estreptomicina 100x | 5 ml |
| Água destilada ultrapura (Invitrogen, 10977-015) | Até 500 mL |
| Meio de maturação | |
| componente | Para 500 mL |
| MEM alfa 1x | Até 500 mL |
| Piruvato de sódio | 1,15 mL |
| Penicilina/Estreptomicina 100x | 5 ml |
Tabela 2: Exemplo de sequências de repórter e primer Sequência de repórter YFP/IL7 3'UTR e sequências de primers diretos e reversos que foram usados para produzir um modelo de PCR linear para transcrição in vitro.
| seqüenciar |
| Ypet/Interleucina-7 3' UTR | GAGAACCCACTGCTTACTGGCTTATCGAAATTAATACGACTCACTATAGGGAGACCCAAGCTGGCTAGTTAAGTTGGTACCCTCGGATCCACCGGTCGCCACCATGGTGAGCAAAGGCGAAGAGCTGTTCACC
GGCGTGGTGCCCATCCTGGTGGAGCTGGACGGCGACGTGAACGGCCACAAGTTCAGCGTGAGCGGCGAGGGCGAGGGCGACGCCACCTACGGCAAGCTGCTGACCCTGAAGCTGCTGTGCACCACCGGCAAGCTG
CCCGTGCCCTGGCCCACCCTGGTGACCACCCTGGGCTACGGCGTGCAGTGCTTCGCCCGGTACCCCGACCACATGAAGCAGCACGACTTCTTCAAGAGCGCCATGCCCGAGGGCTACGTGCAGGAGCGGA
TCTTCTTCAAGGACGACGGCAACTACAAGACCCGGGCCGAGGTGAAGTTCGAGGGCGACACCCTGGTGAACCGGATCGAGCTGAAGGGCATCGACTTCAAGGAGGACGGCAACATCCTGGGCCACAAGCTGGAG
TACAACTACAACAGCCACAACGTGTACATCACCGCCGACAAGCAGAAGAACGGCATCAAGGCCAACTTCAAGATCCGGCACAACATCGAGGACGGCGGCGTGCAGCTGGCCACCACTACCAGCAGAACACCCCCA
TCGGCGACGGCCGTGCTGCTGCCCCGACAACCACTACCTGAGCTACCAGAGCGCCCTGTTCAAGGACCCCAACGAGAAGCGGGACCACATGGTGCTGCTGGAGTTCCTGCCGCCGCCGGCATCACCGAGGGC
ATGAACGAGCTCTATAAGAGATCTTTCGAAGGTAAGCCTATCCCTAACCCTCTCCTCGGTCTCGATTCTACGCGTACCGGTCATCATCACCATCACCATTGAACAGGACATGTAGTAACAACCTCCAAGAATCTACTGGTT
CATATACTTGGAGAGGTTGAAACCCTTCCAGAAGTTCCTGGATGCCTCCTGCTCAAATAAGCCAAGCAAGCTGAGAAATCTACAGTGAGGTATGAGATGATGGACACAGAAATGCAGCTGACTGCTGCCGTCAGCATATA
CATATAAAGATATCAACTATACAGATTTTTTTGTAATGCAATCATGTCAACTGCAATGCTTTTAAAACCGTTCCAAATGTTTCTAACACTACAAAGTCTACAAAAGCAAGGCTATGAAGATTCAGAGTCACCACTGTTTTCTTTT
AGCAAAATGATGGTATGGTTAAACATTCATTGGTGAACCACTGGGGGAGTGGAACTGTCCTGTTTTAGACTGGAGATACTGGAGGGCTCACGGTGATGGATAATGCTCTTGAAAACAAGAGTATCTTAAAGCAG
CAAAAAGAAGCTTAAGGCACTTAAGGCATCAACAAATGTAGTTAAATATGAATGTATAACACATAACTTCAGTAAAGAGCATAGCAGATATTTTTAAATAAAAGTATTTTTAAAGATAGAAATGCACTTATTCCAAAGATACTGA
ACCTTAGTATTCAGTCGCTTTTTTGACACTTGTGTATAATAAAGCTTATATAACTGAATTTTCAATTTGAAAAGTATATTTTTAAAGAATATATGCTAGACTTTTAATTAATGTATGTTTAATTTTGGCATTCTGTCTGTCTCTCT
CTGTCTCTCTCTCTCTCTCTCTCTCTCTCTCTCTCTCTATCTATCTATCTATATATATATATATTTTCATATACCAATTGCGTACTTTGGATAGTGTCTCTTTTTAACCTAAATGACCTTTTTATTAACACTGTCAGGTTCCCTTACTCTCGAGAG
TGTTCATTGCTGCACTGTCATTTGATCCCAGTTTTTTATTGAACACATATCCTTTAACACACTCACGTCCAGATTTAGCAGGAGACTAGGACCCTATAACTTTGTTAAGAGAGAAAACACTAATTTCTTGTTTTATAGGGTC
TTATTCGTATCTAAGGCAGGCTAGGATTGCAGACATGAGCCAATATGCTTAATTAGAAACATTCTTTTTATGTTAAACTCATGTCTTTTACAAGATGCCTACATATATCCTATGTATGCCTGTTTAAATCCTTTTTTGTAAGGT
CTGCTGTCTTCCTTCAGTTGTAATGGAAAGAAACACTATGTTGTAGAGGCCAAATTTCTGAAAGTGATAAGGGTTTGCTTGTACTGAATTCTCATTCTCCTTGCTTTTTCCAGCCACGTGAGCATCTAGCTATCTATACGCT
GGATGTATTTGACCGATGCCTGCTGCTCCACTGGCACATTGCATGTGTGGTAGCCATGCCTTCTTGCTTCTCCTTTTCCCCAACCTAATGCTCTCTACTCAGTGGTACAGATAGCTGGATTATCACAATTTTGAGAGAAC
ACCAATTGTTTAAAGTTTGTTTCATAATCACCATTTGCCCAGAAAACAGTTCTCTCTCAACTTGTTTGCAACATGTAATAATTTAAGAAACTCAATTTTGTTAATGGACTTTCGATAACTTCCTTAGATATCCCACATCTCCTACGT
GTCAGTCCTTTGTCCTGAGGAACTGGTAAAATGGGTAAGCCCTTAGCTAGCGAACTGAAGGCATTCGCATGTGTAAGATAATCTCTATACCTGCAAGGCTGTCTGGATGGCTCCCTACCAATATTGAACAATATTCTGATT
TTGGCAAAATAAAGGATAATATTTT |
| Primer direto | GAGAACCCACTGCTTAC |
| Primer reverso | TTTTTTTTTTTTTTTTTTTTTTTTAAAATATTATCCTTTTTGCCAAAATC |