O tráfego de membrana envolve o transporte de proteínas da membrana plasmática para o interior da célula (ou seja, endocitose) seguido de tráfego para lisossomos para degradação ou para a membrana plasmática para reciclagem. Os métodos descritos neste artigo são projetados para estudar endocitose e reciclagem de proteínas da membrana plasmática.
Artigo de método
Os ensaios de proteção de L-glutationa baseados em células para estudar endocitose e reciclagem de proteínas da membrana plasmática
Neste artigo
Resumo
Resumo
O tráfego de membrana envolve o transporte de proteínas da membrana plasmática para o interior da célula (ou seja, endocitose) seguido de tráfego para lisossomos para degradação ou para a membrana plasmática para reciclagem. Os ensaios de proteção de L-glutationa baseados em células podem ser usados para estudar endocitose e reciclagem de receptores de proteínas, canais, transportadores e moléculas de adesão localizadas na superfície celular. O ensaio endocítico requer a marcação de proteínas de superfície celular com uma biotina impermeável à membrana celular contendo uma ligação dissulfeto e o éster N-hidroxisuccinimida (NHS) a 4 ºC - uma temperatura na qual o tráfego de membrana não ocorre. A endocitose de proteínas biotiniladas da membrana plasmática é induzida por incubação a 37 ºC. Em seguida, a temperatura é reduzida novamente para 4 ºC para interromper o tráfego endocítico e a ligação dissulfeto na biotina covalentemente ligada a proteínas que permaneceram na membrana plasmática é reduzida com L-glutationa. Nesse ponto, apenas as proteínas endocitadas permanecem protegidas da L-glutationa e, portanto, permanecem biotiniladas. Após a lise celular, as proteínas biotiniladas são isoladas com estreptavidina agarose, eluída da agarose, e a proteína biotinilada de interesse é detectada por western blotting. Durante o ensaio de reciclagem, após a biotinilação, as células são incubadas a 37 °C para carregar as vesículas endocíticas com proteínas biotiniladas e a ligação dissulfeto na biotina covalentemente ligada às proteínas remanescentes na membrana plasmática é reduzida com L-glutationa a 4 ºC, como no ensaio endocítico. Em seguida, as células são incubadas novamente a 37 ° C para permitir que proteínas biotiniladas de vesículas endocíticas se reciclem na membrana plasmática. As células são então incubadas a 4 ºC, e a ligação dissulfeto na biotina ligada a proteínas que se reciclam nas membranas plasmáticas é reduzida com L-glutationa. As proteínas biotiniladas protegidas da L-glutationa são aquelas que não se reciclaram na membrana plasmática.
Introdução
Todas as células vivas processam informações traficando carga, como ligantes extracelulares, microorganismos, nutrientes, proteínas transmembranares e lipídios da membrana plasmática para vesículas endocíticas (ou seja, endocitose). Um processo recíproco chamado reciclagem equilibra a endocitose e retorna grande parte da membrana internalizada e da carga para a superfície celular. O equilíbrio entre endocitose e reciclagem controla a composição da membrana plasmática e fornece às células informações que foram resolvidas no tempo e no espaço. A endocitose e a reciclagem são reguladores mestres de diversas funções celulares, como absorção e metabolismo de nutrientes, desenvolvimento, proliferação, diferenciação e polaridade, reprogramação, migração, adesão e migração celular, citocinese e neurotransmissão1-3. As vias endocíticas e de reciclagem são muito dinâmicas e altamente coordenadas e permitem que as células voltem o equivalente a toda a membrana plasmática 1-5x por hora.
Os ensaios de proteção contra L-glutahiona baseados em células são úteis para estudar a endocitose e a reciclagem de proteínas transmembranares, incluindo receptores, canais, transportadores e moléculas de adesão em células epiteliais e não epiteliais4-8. Estudamos anteriormente a endocitose e a reciclagem do Cystic Fibrosis Transmembrane Conductance Regulator (CFTR) em células epiteliais das vias aéreas humanas e células HEK2939-15. Os ensaios baseados em biotinilação descritos no manuscrito são otimizados para examinar a endocitose e a reciclagem em células epiteliais cultivadas sob condições polarizadoras em suportes de crescimento semipermeáveis. Esses protocolos podem ser modificados para estudar endocitose e reciclagem de proteínas em células epiteliais cultivadas em placas de cultura de tecidos plásticos ou em células não epiteliais. As Figuras 1 e 2 contêm exemplos de ensaios endocíticos e de reciclagem em células epiteliais e não epiteliais.
Os ensaios endocíticos são realizados conforme descrito anteriormente9-15. As células são cultivadas em suportes de crescimento semipermeáveis revestidos de colágeno11,14. Alternativamente, as células podem ser cultivadas em placas de cultura de tecidos plásticos revestidos de colágeno10,15. As células são resfriadas rapidamente a 4 ºC para interromper o tráfego de membrana e as proteínas da membrana plasmática são marcadas a 4 °C com uma biotina impermeável à membrana celular. A biotina reage com ε-amina de resíduos de lisina e a ligação dissulfeto é tiol-clivável. Após a biotinilação, as células são incubadas a 37 ° C para induzir o tráfego de proteínas e carregar vesículas endocíticas por 2,5, 5,0, 7,5 ou 10 min. Posteriormente, as células são resfriadas a 4 ° C e a ligação dissulfeto na biotina covalentemente ligada às proteínas da membrana plasmática é reduzida com L-glutationa (GSH). Neste ponto do protocolo, apenas as proteínas que foram endocitadas da membrana plasmática são protegidas do GSH e, portanto, permanecem biotiniladas. As células que permanecem a 4 °C após a biotinilação sem incubação a 37 ºC ou o tratamento com GSH serviriam para determinar a quantidade de CFTR biotinilada no tempo zero. Células que permanecem a 4 °C após biotinilação sem incubação a 37 ºC, mas com tratamento com GSH, serviriam para determinar a eficiência da redução das ligações dissulfeto. Seguindo os tratamentos descritos acima, as células são lisadas, as proteínas biotiniladas são isoladas por estreptavidina agarose, eluídas em tampão de amostra SDS e separadas por SDS-PAGE. A proteína de interesse é detectada nas amostras biotiniladas por western blotting. A quantidade de proteína biotinilada a 4 ºC no tempo zero (sem o aquecimento de 37 ºC) é considerada 100%. A quantidade de proteína que permanece biotinilada após o tratamento com GSH a 4 ºC é considerada de fundo e é subtraída da quantidade de proteína que permanece biotinilada após o aquecimento a 37 ºC em diferentes pontos de tempo. A endocitose proteica é calculada após subtrair o fundo e é expressa como a porcentagem de proteína biotinilada em cada ponto de tempo após o aquecimento a 37 ºC em comparação com a quantidade de proteína biotinilada presente no tempo zero.
Os ensaios de reciclagem são realizados conforme descrito anteriormente11,16. As células são cultivadas em suportes de crescimento semipermeáveis revestidos de colágeno11. Alternativamente, as células podem ser cultivadas em placas de cultura de tecidos plásticos revestidos de colágeno13. As células são aquecidas a 37 °C após a biotinilação para carregar as vesículas endocíticas com proteínas biotiniladas. O tempo de primeira incubação a 37 ºC é determinado pelo momento em que a endocitose da proteína de interesse atinge o máximo durante o aumento linear do sinal endocítico. O tempo é específico da proteína e pode depender do tipo de célula e das condições de cultura de células. Em nossa experiência, a endocitose de CFTR atingiu o máximo em 5,0 ou 7,5 min13,14 (Figuras 1 e 2). Posteriormente, as células são resfriadas imediatamente a 4 ° C e a ligação dissulfeto na biotina ligada às proteínas da membrana plasmática é reduzida com GSH. Em seguida, as células são lisadas para determinar a quantidade de proteína endocitada de interesse ou aquecidas novamente a 37 ° C por diferentes períodos de tempo para permitir que a proteína biotinilada endocitada de interesse se recicle na membrana plasmática. As células são então resfriadas novamente a 4 ° C, e a ligação dissulfeto na biotina ligada a proteínas recicladas nas membranas plasmáticas é reduzida com GSH. A reciclagem da proteína de interesse é determinada a partir da diferença entre a quantidade de proteína biotinilada após o primeiro e o segundo tratamento com GSH.
A viabilidade dos ensaios endocíticos e de reciclagem depende de vários fatores. Primeiro, a formação de monocamadas celulares é um pré-requisito e as células que não formam monocamadas ou crescem como multicamadas não são adequadas para os ensaios descritos neste manuscrito. Em segundo lugar, a abundância da proteína de interesse na superfície celular e a presença de um anticorpo para detectar a proteína por western blotting são críticas. Recomendamos que a abundância em estado estacionário da proteína seja determinada primeiro em lisados de células inteiras (WCL). Terceiro, a capacidade de biotinilar a proteína específica da superfície celular deve ser testada. A biotina se liga aos resíduos de lisina. Assim, a eficiência da biotinilação depende em parte do número de resíduos de lisina no domínio extracelular da proteína. Assim, recomendamos a triagem da sequência da proteína para determinar se os resíduos de lisina estão presentes no(s) domínio(s) extracelular(is). Nem todos os resíduos de lisina de domínio extracelular podem ser igualmente acessíveis à biotina devido ao dobramento de proteínas. Portanto, a biotinilação de proteínas no estado estacionário seguida de western blotting deve ser realizada para determinar não apenas a abundância em estado estacionário da proteína na superfície celular, mas também para examinar a viabilidade dos ensaios baseados em biotinilação para a proteína de interesse.
Este protocolo é otimizado para examinar a endocitose e reciclagem de CFTR do tipo selvagem em células epiteliais das vias aéreas humanas CFBE41o- cultivadas em suportes de crescimento semipermeáveis de 24 mm na interface ar-líquido9,10,13-15. O CFTR polariza para o domínio da membrana apical; Assim, o protocolo descreve a biotinilação do domínio da membrana apical. A biotinilação do domínio da membrana basolateral será necessária para estudar a endocitose e a reciclagem de proteínas polarizadoras para a membrana basolateral. O protocolo de ensaio endocítico descrito neste manuscrito tem 6 condições: Apenas biotinilado (BT = tempo zero; amostra a); Controle GSH (GSH; amostra b); e os pontos de tempo endocíticos de 2,5, 5,0, 7,5 ou 10 min (amostras c; Tabela 1). O número e/ou duração dos pontos de tempo endocíticos no protocolo pode ser modificado conforme necessário.
O ensaio de reciclagem é realizado após determinar o momento em que a endocitose da proteína de interesse atinge o máximo durante o aumento linear do sinal endocítico. Este ponto de tempo será usado para carregar as vesículas endocíticas com a proteína de interesse antes de induzir a reciclagem. O tempo é dependente da proteína e pode diferir entre os tipos de células e as condições de cultura15. Estabelecemos anteriormente que a endocitose de CFTR atingiu o platô no ponto de tempo de 7,5 minutos em células epiteliais das vias aéreas humanas CFBE41o- expressando CFTR15 de forma estável. Por outro lado, a endocitose de CFTR atingiu o platô no ponto de tempo de 5,0 minutos em células HEK293 expressando CFTR13 de forma estável. O protocolo de ensaio de reciclagem descrito neste manuscrito tem 5 condições: Apenas biotinilado (BT = tempo zero; amostra a); Controle GSH (GSH; amostra b); 5,0 min de endocitose (Endo; amostra c), 5,0 min de endocitose seguida pelos pontos de tempo de reciclagem de 2,5 ou 5,0 min (Rec; amostras d; Tabela 2). O número e/ou a duração dos pontos de tempo de reciclagem no protocolo podem ser modificados conforme necessário.
Protocolo
1. Semeando células
- Pré-trate os filtros de 24 mm com 10% de colágeno I (prepare 10% de colágeno I em meio essencial mínimo (MEM), cubra toda a superfície do filtro com a solução de colágeno, incube sob luz ultravioleta à temperatura ambiente por 30 min e em uma incubadora de cultura de células a 37 ºC por 1 hora, aspire o excesso de colágeno após a incubação).
- Prepare o meio de cultura celular (MEM gaseificado com CO2 por 20 min, soro fetal bovino a 10% (FBS), penicilina 50 U/ml, estreptomicina 50 U/ml, L-glutamina 2 mM, puromicina 0,5 μg/ml)
- Semear células CFBE41o- em seis filtros de 24 mm para endocitose e reciclagem, respectivamente, a 1 x 10⁶/filtro.
- Remova o meio apical no dia seguinte à semeadura e alimente diariamente apenas do lado basolateral.
- Alimentar com meio antibiótico de seleção negativo 24 horas antes do experimento. Realizar experimento em células CFBE41o- 6-10 dias após a semeadura.
2. Preparações antes do experimento (semelhantes para o ensaio de endocitose e reciclagem)
- Configure um espaço de bancada na câmara fria. Os ensaios endocíticos e de reciclagem devem ser realizados na câmara fria, exceto para a incubação a 37 °C. As placas contendo os filtros de 24 mm devem ser colocadas diretamente na bancada da câmara fria.
- Ligue a incubadora a 37 ºC.
- Prepare 500 ml de PBS++, pH 8,2 (solução salina tamponada com fosfato de Dulbecco (PBS), cloreto de magnésio 1 mM e cloreto de cálcio 0,1 mM, pH 8,2) e mantenha 250 ml a 37 °C em uma incubadora e 250 ml a 4 °C na câmara fria.
- Encha os alvéolos numa placa de 6 poços com PBS++, pH 8,2, 37 °C e mantenha na incubadora a 37 °C.
- Encha os alvéolos em outra placa de 6 poços com PBS++, pH 8,2, 4 °C e mantenha na câmara fria a 4 °C.
- Preparar 100 ml de PBS++, pH 8,6 a 4 °C, e conservar em câmara frigorífica.
- Preparar biotina contendo a ligação dissulfeto e o éster NHS a uma concentração de 0,8 mg/ml em PBS++, pH 8,2, 4 °C no prazo de 30 minutos após a fase de biotinilação (o volume do tampão biotina deve cobrir completamente toda a superfície do filtro); recomendamos um filtro de 1,5 ml/24 mm.
- Prepare 100 ml de tampão GSH em água, pH 8,6 e resfrie a 4 ºC (cloreto de sódio 75 mM, cloreto de magnésio 1 mM e cloreto de cálcio 0,1 mM, GSH 50 mM, hidróxido de sódio 80 mM e FBS 10%). GSH e hidróxido de sódio devem ser adicionados imediatamente antes do experimento. Verifique o pH e ajuste para 8,6; O hidróxido de sódio neutraliza os grupos carboxila e desprotona metade dos resíduos de cisteína na glutationa. É fortemente tamponado no pKa desta cisteína, que é 8,64. (Prepare o mesmo volume de tampão GSH para o ensaio de reciclagem).
- Preparar 50 ml de tampão de lise, pH 8,2 e manter a 4 °C (HEPES 25 mM, pH 8,2, Triton X-100 a 1% (v/v), glicerol a 10% (v/v); adicionar o cocktail inibidor de protease completo por 50 ml de tampão de lise e arrefecer a 4 ºC; verificar o pH após a adição de Complete, uma vez que pode ocorrer uma diminuição do pH.
- Prepare o tampão de amostra Laemli com 100 mM DTT.
- Prepare 1x Running buffer (100 ml de 10x Running buffer, 900 ml de água).
- Preparar 1x tampão de transferência e arrefecer a 4 ºC (100 ml de tampão de transferência 10x sem dodecil sulfato de sódio (SDS), 200 ml de metanol, 700 ml de água).
3. Ensaio Endocítico
CFTR polariza para o domínio da membrana apical; assim, o protocolo descreve a biotinilação do domínio da membrana apical. A biotinilação do domínio da membrana basolateral será necessária para estudar a endocitose de proteínas polarizadoras para a membrana basolateral.
Fluxo de trabalho: Biotinilação de proteínas da superfície celular a 4 ºC → Aquecimento a 37 ºC para carregar vesículas endocíticas com proteínas biotiniladas → Resfriamento a 4 ºC para interromper o tráfego endocítico → Redução da ligação dissulfeto na biotina ligada a proteínas que permaneceram na superfície celular → Lise celular → Isolamento de biotinilados (i.e. endocitadas) com estreptavidina agarose → Eluição de proteínas biotiniladas de estreptavidina agarose → Eletroforese de proteínas e western blotting.
- Retirar a placa contendo seis filtros de 24 mm (quadro 1: amostras a-c) da incubadora de cultura celular e transferir rapidamente para a placa cheia de PBS++ frio (4 ºC), pH 8,2 sobre gelo.
- Deixe PBS ++ transbordar a superfície apical para cobrir rapidamente toda a superfície. Leve o prato com gelo para a câmara fria e coloque-o na bancada.
- Remova PBS++ rapidamente virando a placa de cabeça para baixo segurando os filtros no lugar para evitar quedas. Adicionar ~2 ml de PBS++ ao lado apical e basolateral.
- Lave os filtros com ~ 2 ml de PBS ++ frio, pH 8,2 3x por 2 min. Sugue a lavagem de um lado de cada vez, apical ou basolateral e adicione PBS ++ fresco, pH 8,2 de um lado de cada vez.
- Aspirar a última lavagem e adicionar 1 ml de PBS++, pH 8,2 ao lado basolateral. Adicione 1,5 ml do tampão de biotina ao lado apical e incube no escuro por 30 min. Evite derramar tampões para o lado contralateral.
- Sugue o tampão de biotina do lado apical e lave com PBS++, pH 8,2 3x por 2 min.
- Separar dois filtros numa placa diferente (Quadro 1: amostras a e b), adicionar ~2 ml de PBS++, pH 8,2 ao lado apical e basolateral e conservar em câmara frigorífica. Mantenha os 4 filtros restantes em uma placa (Tabela 1: amostras c) e adicione ~ 2 ml de PBS ++ pH 8,2 no lado apical e basolateral de cada filtro. Coloque o prato no gelo e leve para a bancada ao lado da incubadora a 37 ºC.
- Transfira rapidamente os filtros do gelo para a placa na incubadora a 37 ºC cheia de PBS++ pH 8,2 pré-aquecido e incube um filtro cada precisamente por 2,5, 5,0, 7,5 ou 10 min cobrindo toda a superfície de cada filtro com PBS++ pH 8,2 quente.
- Durante a incubação, encher completamente quatro poços na placa sobre gelo com PBS++ frio (4 ºC) pH 8,2.
- Após o tempo de incubação indicado, virar cada filtro de cabeça para baixo para drenar o PBS++ quente (37 ºC), pH 8,2 e transferir para a placa no gelo. Adicione PBS++ frio, pH 8,2 para transbordar o lado apical e cobrir toda a superfície de cada filtro rapidamente.
- Depois de transferir os filtros para o gelo, leve a placa para a câmara fria e coloque-a na bancada.
- Sugem PBS++ de ambos os lados em todos os filtros (amostras a-c) e encha o lado basolateral com 1 ml de PBS++ pH 8,6. Adicionar 1,5 ml de PBS++, pH 8,6, ao lado apical do filtro a (Quadro 1: amostra a).
- Reduzir a ligação dissulfeto na biotina ligada às proteínas da membrana apical com o tampão GSH (pH 8,6) nos filtros b e c (Tabela 1: amostra b e c).
- Adicione 1,5 ml do tampão GSH ao lado apical, incube durante 15 min e repita seis vezes.
- Mantenha 1 ml de PBS++ pH 8,6 no lado basolateral. Evite derramar o tampão para o lado basolateral.
- Depois de concluir o procedimento 3.15, lave todos os filtros (Tabela 1: amostras a, b e c) brevemente com PBS++ pH 8.2 2x, aspire a lavagem do lado apical e basolateral e coloque a placa com filtros em um ângulo de 45° para drenar toda a lavagem e sucção novamente.
- Coloque a placa plana na bancada e adicione 500 μl de tampão de lise ao lado apical de cada filtro e incube na câmara fria agitando por 15 min.
- Raspe as células com um policial de borracha e colete em um tubo Eppendorf de 1,5 ml.
- Gire a 14.000 x g por 10 min a 4 °C.
- Transferir os sobrenadantes para tubos frescos de 1,5 ml e rejeitar os pellets. Os sobrenadantes são agora chamados de lisados de células inteiras (WCL).
- Adicione 100 μl de tampão de amostra Laemli com DTT a 50 μl de WCL (10% de todo o WCL) e incube a 37 ° C por 30 min (amostras WCL).
- Preparar alíquotas de 200 μl de estreptavidina agarose a 50% e remover todo o tampão de lavagem com uma agulha de 27 G ligada a uma sucção: lavar 2x com 1 ml de PBS, grânulos de pellets com centrifugação pulsada entre as lavagens; lavar uma vez com 1 ml de tampão de lise para equilibrar antes de adicionar WCL; secar a agarose por sucção antes de adicionar WCL.
- Incube o WCL restante com estreptavidina agarose lavada (aumente o volume para 1,2 ml com tampão de lise e gire no escuro por pelo menos 2 horas ou O/N na câmara fria).
- Lave os complexos de proteína estreptavidina agarose-biotinilada três vezes com 1 ml de tampão de lise (o tampão de lise não precisa conter Complete durante a lavagem), gire a agarose entre as lavagens e seque por sucção após a última lavagem.
- Incubar os complexos proteicos estreptavidina agarose-biotinilados com 65 μl de tampão de amostra Laemli com DTT a 85 °C durante 5 min.
- Gire o pulso e colete os complexos de proteínas biotiniladas eluídos.
- Carregue géis de 7,5% com 40 μl das amostras WCL e todo o volume das amostras biotiniladas (BT) por poço.
- Execute géis a 120 V em SDS contendo buffer de corrida.
- Transfira proteínas para uma membrana de PVDF a 90-95 V por 1,5 horas (até <400 A) em um tampão de transferência sem SDS.
- Bloqueie o leite desnatado a 5% em TBS-T 0,1% O/N. Seque ambas as membranas com anticorpo monoclonal de camundongo anti-CFTR CFF596 e um anticorpo secundário conjugado com HRP de cabra anti-camundongo .
- Realize quimioluminescência. Limpe novamente ambas as membranas com anticorpo anti-ezrina ou anti-actina.
4. Ensaio de Reciclagem
Fluxo de trabalho: Biotinilação de proteínas da superfície celular a 4 ºC → Aquecimento a 37 ºC para carregar vesículas endocíticas com proteínas biotiniladas → Resfriamento a 4 ºC para interromper o tráfego endocítico → Redução da ligação dissulfeto na biotina ligada a proteínas que permaneceram na superfície celular → Aquecimento a 37 °C para permitir que proteínas biotiniladas de vesículas endocíticas se reciclem na superfície celular → Resfriamento a 4 ºC para interromper o tráfego endocítico → Redução da ligação dissulfeto na biotina ligada a proteínas que se reciclaram na superfície celular → Lise celular → Isolamento de proteínas biotiniladas (ou seja, aquelas que não foram recicladas) com estreptavidina agarose → Eluição de proteínas biotiniladas da estreptavidina agarose → Eletroforese de proteínas e western blotting.
- Biotinilar as proteínas apicais da superfície em cinco filtros de 24 mm (Quadro 2: amostras a-d) seguindo o procedimento descrito no ensaio endocítico (secções 3.1-3.6).
- Na câmara frigorífica, colocar numa nova placa dois filtros (Quadro 2: amostras a e b), adicionar ~2 ml de PBS++, pH 8,2 ao lado apical e basolateral e conservar na câmara frigorífica.
- Manter os restantes 3 filtros numa placa (Quadro 2: amostras c e d) com ~2 ml de PBS++ pH 8,2 no lado apical e basolateral de cada filtro. Coloque a placa com os filtros c e d no gelo e leve para a bancada fora da incubadora a 37 ºC.
- Transfira os filtros rapidamente do prato no gelo para o prato cheio de PBS ++ pH 8,2 pré-aquecido na incubadora e mantenha por 5,0 min.
- Durante a incubação, encha 3 poços da placa em gelo com PBS++ frio (4 ºC) pH 8,2.
- Transferir os filtros após 5,0 min de incubação a 37 ºC para a placa em gelo. Deixe o PBS++ frio pH 8,2 transbordar do lado apical e cobrir toda a superfície de cada filtro rapidamente.
- Leve o prato com gelo para a câmara fria e coloque-o na bancada.
- Sugue PBS++ pH 8,2 de ambos os lados dos filtros a, b, c e d e adicione 1 ml de PBS++ pH 8,6 ao lado basolateral.
- Mantenha os filtros a e b separados dos filtros c e d. Adicione 1 ml de PBS++ pH 8,6 ao lado apical dos filtros a e b.
- Reduzir a ligação dissulfeto na biotina remanescente na superfície celular nos filtros b, c e d seguindo o procedimento descrito no ensaio endocítico (etapas 3.13-3.15).
- Lave os filtros b, c e d brevemente com PBS++ pH 8.2 2x e substitua por PBS++ fresco, pH 8.2. Colocar os filtros d numa nova placa e levar gelo para a bancada fora da incubadora a 37 °C.
- Transfira rapidamente os filtros da placa no gelo para a placa na incubadora preenchida com PBS++ pH 8,2 pré-aquecido e incube um filtro cada precisamente por 2,5 ou 5,0 min, conforme descrito acima nas etapas 4.4-4.9.
- Reduzir a ligação dissulfeto na biotina ligada às proteínas da membrana apical com o tampão GSH após a segunda incubação a 37 ºC nos filtros d, conforme descrito em 4.4, com a exceção de que apenas três incubações de 15 minutos com o tampão GSH serão feitas durante esta etapa. Mantenha os filtros a, b e c em PBS++ pH 8.6 no lado apical e basolateral durante esta etapa.
- Para a lise celular e Western blotting, siga os procedimentos descritos no ensaio endocítico (etapas 3.16-3.31).
Resultados
A endocitose de CFTR foi estudada em células CFBE41o- cultivadas em filtros revestidos com colágeno (Figura 1). O CFTR biotinilado foi visualizado por meio de western blot com anticorpo monoclonal de camundongo, clone 596, e um anticorpo secundário anti-camundongo conjugado à peroxidase do rábano-forrageiro, utilizando o sistema de detecção de western blot seguido por quimiluminescência. A quantificação do CFTR biotinilado foi realizada por densitometria, utilizando exposições dentro da faixa dinâmica linear do filme. A endocitose de CFTR foi calculada após a subtração do fundo e expressa como a porcentagem de CFTR biotinilado em cada ponto de tempo após o aquecimento a 37 ºC em relação à quantidade de CFTR biotinilado presente no tempo zero (Figuras 1A e 1B). A endocitose de CFTR foi linear entre 0 e 7,5 min. Experimentos nos quais o CFTR de fundo era >10% foram excluídos devido ao tratamento ineficiente com GSH (Figura 1D).
O reciclamento do CFTR foi estudado em células HEK293 cultivadas em placas de cultura tecidual revestidas com colágeno (Figura 2). A endocitose do CFTR foi linear entre 0,0 e 5,0 min e atingiu o máximo no ponto temporal de 5,0 min (Figura 2A); portanto, as células foram incubadas a 37 ºC durante 5,0 min para carregar as vesículas endocíticas com proteínas biotiniladas, incluindo o CFTR (Figuras 2B e 2C). O reciclamento do CFTR endocitado foi calculado como a diferença entre a quantidade de CFTR biotinilado após o primeiro e o segundo tratamento com GSH.
Tabela 1. Ensaios endocíticos.
| Endocitose | BT | GSH | Endo-2,5 | Endo-5,0 | Endo-7,5 | Endo-10,0 |
| Amostra | a | b | c2,5 | c5,0 | c7,5 | c10,0 |
| Biotina | + | + | + | + | + | + |
| 37 ºC | (-) | (-) | 2,5 min | 5,0 min | 7,5 min | 10 min |
| GSH | (-) | + | + | + | + | + |
Tabela 2. Ensaio de reciclagem.
| Reciclagem | BT | GSH | Endo-5 | Rec-2,5 | Rec-5,0 |
| Amostra | a | b | c | d2,5 | d5,0 |
| Biotina | + | + | + | + | + |
| 1º 37 ºC | (-) | (-) | 5 min | 5 min | 5 min |
| 1º GSH | (-) | (-) | + | + | + |
| 2º 37 ºC | (-) | (-) | + | + | + |
| 2º GSH | (-) | (-) | (-) | 2,5 min | 5 min |
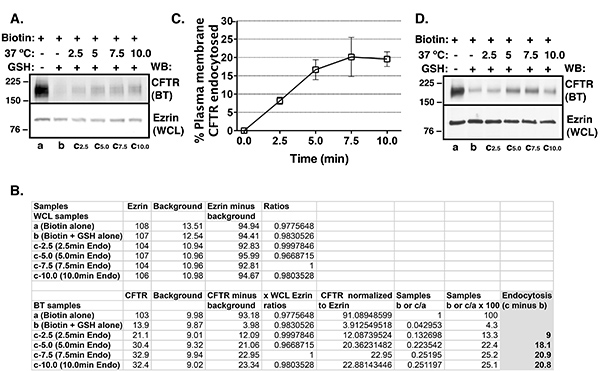
Figura 1. Resumo dos ensaios endocíticos realizados para determinar a endocitose de CFTR em células CFBE41o-. As células foram cultivadas em filtros revestidos com colágeno. Western blots representativos (A), valores representativos de densitometria (B) e resumo dos experimentos (C) demonstram a endocitose de CFTR em função do tempo. A biotinilação seletiva da superfície celular e o western blot foram utilizados para determinar a abundância de CFTR na membrana plasmática. A abundância proteica foi quantificada por densitometria utilizando exposições dentro da faixa dinâmica linear do filme. No tempo zero, a quantidade de CFTR biotinilado (BT) foi considerada 100% (Tabela 1: amostra a). No tempo zero, a quantidade de CFTR BT remanescente após o tratamento com GSH foi considerada um fundo de CFTR (amostra b; observe que este é um fundo diferente daquele subtraído de todas as amostras, conforme mostrado na Figura 1B). O fundo de CFTR foi de 6,7 ± 0,9% (média ± E.P.M.) nos experimentos incluídos para análise. O fundo de CFTR foi subtraído do CFTR BT após o aquecimento de 2,5, 5,0, 7,5 ou 10 min a 37 ºC (amostras c menos amostra b). A endocitose de CFTR foi expressa como a porcentagem de CFTR que permaneceu biotinilada nos pontos de tempo de 2,5, 5,0, 7,5 ou 10 min, após a subtração do fundo de CFTR. A endocitose de CFTR foi linear entre zero e 7,5 min. A abundância de ezrina no lisado total de células (WCL) foi utilizada como controle de carga. Quatro experimentos por grupo. Experimentos nos quais o fundo de CFTR era >10% foram excluídos devido ao tratamento ineficiente com GSH (D). A quantidade de CFTR biotinilado no controle com GSH (amostra b) no experimento excluído foi de 14,5%.
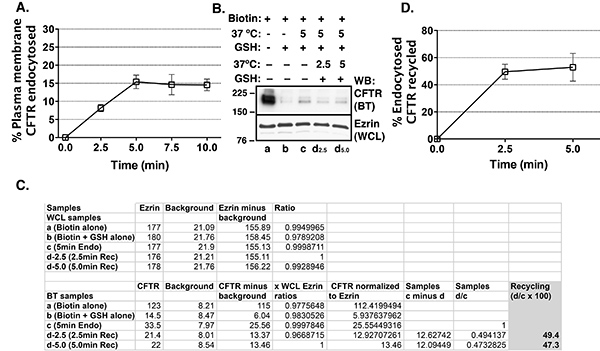
Figura 2. Resumo dos ensaios de endocitose e reciclamento realizados em células HEK293 que expressam estavelmente CFTR. As células foram cultivadas em placas de cultura tecidual revestidas com colágeno. Resumo dos dados demonstrando que a endocitose de CFTR foi linear entre 0-5 min (A). Assim, nos ensaios de reciclamento, as vesículas endocíticas foram carregadas com proteínas biotiniladas (BT), incluindo CFTR, aquecendo-se a 37 ºC por 5 min. A abundância proteica foi quantificada por densitometria utilizando exposições dentro da faixa dinâmica linear do filme. Blot ocidental representativo (B), valores representativos de densitometria (C) e resumo dos experimentos (D) demonstrando o reciclamento de CFTR em função do tempo. No tempo zero, a quantidade de CFTR-BT foi considerada 100% (Tabela 2: amostra a). No tempo zero, a quantidade de CFTR-BT remanescente após o tratamento com GSH foi considerada um valor de fundo de CFTR (amostra b; observe que este é um valor de fundo diferente daquele subtraído de todas as amostras, conforme mostrado em C). Experimentos nos quais o valor de fundo de CFTR era >10% foram excluídos devido ao tratamento ineficiente com GSH. As vesículas endocíticas foram carregadas com proteínas BT, incluindo CFTR, por incubação a 37 ºC por 5 min, seguida pelo tratamento com GSH para clivar a biotina das proteínas remanescentes na membrana plasmática (amostras c e d). A quantidade de CFTR-BT após o aquecimento de 5 min a 37 ºC seguido pelo tratamento com GSH representa o CFTR endocitado (amostra c). Após o aquecimento de 5 min a 37 ºC e o primeiro tratamento com GSH, as células foram novamente aquecidas a 37 ºC por 2,5 ou 5,0 min para permitir que as proteínas endocitadas reciclassem para a membrana plasmática, e a biotina no CFTR reciclado foi removida pelo segundo tratamento com GSH (amostras d). Neste ponto, apenas o CFTR que não reciclou dos endossomos para a membrana plasmática permaneceu biotinilado (amostras d). O reciclamento de CFTR foi calculado como a diferença entre o CFTR-BT após o primeiro tratamento com GSH (amostra c) e o segundo tratamento com GSH aos 2,5 e 5,0 min (amostras d) e foi expresso como porcentagem do CFTR endocitado. O reciclamento de CFTR foi rápido e atingiu o máximo em 2,5 min. A abundância de ezrina no lisado total de células (WCL) foi utilizada como controle de carga. Três experimentos por grupo.
Discussão
O sucesso dos ensaios endocíticos e de reciclagem depende da biotinilação eficiente do CFTR na membrana plasmática. A biotina deve ser preparada imediatamente antes do uso porque a porção éster NHS hidrolisa prontamente e se torna não reativa. Além disso, a etapa de biotinilação requer um controle rigoroso da temperatura a 4 ºC para interromper o tráfego de proteínas. Se a temperatura for aumentada durante a etapa de biotinilação acima de 4 ºC, pode ocorrer tráfego de proteínas, resultando na biotinilação de quantidades variáveis de CFTR.
O sucesso dos ensaios endocíticos e de reciclagem também depende da redução eficiente da ligação dissulfeto no CFTR biotinilado remanescente na membrana plasmática. A quantidade de CFTR remanescente biotinilada após o tratamento com GSH deve ser de <10% do CFTR biotinilado total no tempo zero. Devem ser excluídas as experiências em que a quantidade de CFTR biotinilado é de >10% na amostra de controlo GSH. A Figura 1D demonstra o experimento "fracassado" em que a quantidade de CFTR biotinilada no controle GSH foi de 14,5%. A redução insuficiente da ligação dissulfeto no CFTR biotinilado pode ser secundária a um controlo deficiente da temperatura durante a experiência. Se a temperatura for aumentada durante o tratamento com GSH acima de 4 ºC, pode ocorrer tráfego de proteínas e o CFTR biotinilado endocitado como resultado do aumento não intencional da temperatura aumentará o CFTR de fundo. Alternativamente, a redução insuficiente da ligação dissulfeto no CFTR biotinilado pode resultar da diminuição da meia-vida do GSH em solução aquosa causada pela oxidação no ar ou pelo pH inadequado. Conforme determinado anteriormente, o GSH permanece fortemente tamponado em pH 8,64. Em nossa experiência, seis tratamentos de 15 minutos com o tampão GSH reduziram a ligação dissulfeto em mais de 90%, de forma mais eficiente do que um tratamento de 90 minutos.
A cultura celular requer atenção especial. A biotina deve atingir o domínio da membrana plasmática em células intactas onde a proteína de interesse é expressa. Usamos os ensaios endocíticos e de reciclagem baseados em biotinilação para estudar a endocitose e a reciclagem de CFTR expressa no domínio da membrana apical. Esses ensaios também podem ser usados para estudar o tráfego endocítico de proteínas localizadas no domínio da membrana basolateral em células cultivadas em suportes de crescimento semipermeáveis. As células epiteliais que formam multicamadas não são adequadas para esses ensaios, pois os tampões de biotina e GSH atingirão apenas a camada superior das células para detectar as proteínas da membrana apical ou a camada inferior para detectar as proteínas da membrana basal. As células epiteliais cultivadas em plástico podem ser mais propensas a serem lavadas durante os ensaios. A perda aleatória de células durante o experimento comprometerá os resultados. Recomendamos o exame periódico da integridade da monocamada ao microscópio em experimentos em que as células são cultivadas em placas plásticas de cultura de tecidos. O revestimento de placas de cultura de tecidos com colágeno pode aumentar a adesão celular.
As amostras de proteínas biotiniladas devem ser rotineiramente testadas quanto à contaminação com proteínas intracelulares. A detecção de proteínas intracelulares nas amostras de proteínas biotiniladas pode indicar lavagem insuficiente dos complexos de proteínas estreptavidina-agarose-biotiniladas após incubação com WCL. Assim, o primeiro passo é aumentar a eficiência da lavagem. Além disso, a presença de células com integridade da membrana plasmática comprometida permitirá o acesso da biotina às proteínas intracelulares. O Western blotting para uma proteína expressa exclusivamente em um compartimento intracelular, como o retículo endoplasmático, pode ser usado para detectar a biotinilação de proteínas intracelulares. Alternativamente, proteínas do citoesqueleto, como actina ou ezrina, podem ser usadas para testar a contaminação das amostras de proteínas biotiniladas com proteínas intracelulares. As proteínas do citoesqueleto podem formar complexos com proteínas transmembranares e pequenas quantidades das proteínas do citoesqueleto podem ser detectadas nas amostras de proteínas biotiniladas. No entanto, em nossa experiência, a proporção de ezrina ou actina biotinilada / WCL é de < 1: 1.000 e, portanto, essas proteínas são adequadas para a determinação da integridade da membrana celular nos ensaios baseados em biotinilação.
A reação de biotinilação pode ser extinta com glicina ou Tris para remover o reagente de biotinilação não reagido, conforme relatado anteriormente17. Além disso, o GSH pode ser extinto com iodoacetamida6. Em nossa experiência, o reagente de biotinilação não reagido e o GSH podem ser removidos com eficiência por lavagem suave com PBS++ sem o uso de reagentes de têmpera.
A escolha de estreptavidina vs. neutravidina agarose para isolar os complexos proteicos biotinilados deve ser determinada caso a caso. Em nossa experiência, a estreptavidina agarose fornece isolamento eficiente dos complexos de proteínas biotiniladas com ligação mínima de proteínas não biotiniladas, ao contrário da neutravidina agarose, onde a ligação inespecífica ocorre em níveis que interferem nos resultados do ensaio (observação não publicada).
Divulgações
Os autores declaram que não têm interesses financeiros concorrentes.
Agradecimentos
Este estudo foi apoiado pelos Institutos Nacionais de Saúde dos EUA (NIH) concessões R01HL090767, R01HL090767-02S1, P30 DK06010 e The NepCure Foundation Established Investigator New Direction Grant, (para AS-U.).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Referência de células | 10,11,13,14,15 | ||
| HEK293 referência de células | 13 | ||
| Meio essencial mínimo (MEM) | Gibco | 11095 | |
| L-Glutamina | Cellgro | 25-005-CL | |
| Penicilina | Sigma | P0781 | |
| Estreptomicina | |||
| Puromicina | InvivoGen | ant-pr-1 | |
| PureCol Colágeno Bovino Solução Tipo I | Advanced Biomatrix | 5005-B | |
| Reagentes | |||
| Dulbecco' s Fosfato tampolado com solução salina (PBS) | Gibco | 14190 | |
| Cloreto de cálcio | Sigma | C3306 | |
| Cloreto de magnésio | Sigma | M2670 | |
| Cloreto de sódio | Sigma | S3014 | |
| EZLink Sulfo-NHS-SS-Biotina | Pierce | 21331 | |
| L-glutationa reduzida (GSH) | Sigma | G6529 | |
| Resina de estreptavidina-agarose | Thermo Fisher | 20353 | |
| Hidróxido de sódio | Sigma | 224165 | |
| Soro fetal bovino | Gemini Bioscience | 100-106 | |
| Milli-Q água | Millipore | Advantage System | |
| HEPES | Sigma | H3375 | |
| Triton X-100 | Bio Rad | 161-0407 | |
| Glycerol | FisherScientific | G33 | |
| Laemli Tampão de amostra | BioRad | 161-0737 | |
| Ditiotreitol (DTT) | Sigma | 646563 | |
| Protease Completa Coquetel inibidor | Roche | 1697498 | |
| Streptavidin grânulos | Thermo Scientific | 20353 | |
| Quimioluminescência | Perkin Elmer | NEL104001EA | |
| Reagentes | |||
| Leite em pó desnatado | Cravo N/A | ||
| Tween-20 | BioRad | 170-6539 | |
| Tris-buffered Saline (TBS) | BioRad | 170-6435 | |
| Albumina de Soro Bovino (BSA) | Gibco | 15120 | |
| Primário e secundário | |||
| Anticorpos para Western Blotting | |||
| Mouse monoclonal Anti-CFTR 596 | Cystic Fibrosis Foundation Therapeutics, Inc., Chapel Hill, NC | ||
| Anti-ezrin | |||
| Tampão de corrida 10x | BioRad | 161-0772 | |
| Tampão de transferência 10x( sem SDS) | BioRad | 161-0771 | |
| Metanol | Fisher | A4129 | |
| Contador | Beckman Coulter | Z1Contador de Partículas | |
| Célula Padrão Equipamento de | |||
| Capuz de cultura de células com luz | |||
| Frascos | |||
| Filtros Transwell-24mm | Corning | 3412 | |
| cultura de células de 4 cm | |||
| Medidor | |||
| de pH 15 ml e tubos cônicos de | |||
| 50 mlTubos | |||
| Policial de borracha Câmaras | |||
| frigoríficas | |||
| Baldes de gelo e gelo | |||
| 27 G agulhas | |||
| 37 º C Incubadora | |||
| Termômetro | |||
| Centrífuga | |||
| de bancada Centrífuga resfriada Equipamento | |||
| eletroforese | |||
| Filme de desenvolvedor | |||
| GE Amersham | 28-9068-36 | ||
| Membrana | PVDFMillipore | IPVH00010 | |
| software ImageJ | NIH |
Referências
- Sigismund, S., et al. Endocytosis and signaling: cell logistics shape the eukaryotic cell plan. Physiol. Rev. 92, 273(2012).
- Andersson, E. R. The role of endocytosis in activating and regulating signal transduction. Cell Mol. Life Sci. 69, 1755(2012).
- Grant, B. D., Donaldson, J. G. Pathways and mechanisms of endocytic recycling. Nat. Rev. Mol. Cell Biol. 10, 597(2009).
- Bretscher, M. S., Lutter, R. A new method for detecting endocytosed proteins. EMBO J. 7, 4087(1988).
- Watts, C., Davidson, H. W. Endocytosis and recycling of specific antigen by human B cell lines. EMBO J. 7, 1937(1988).
- Graeve, L., Drickamer, K., Rodriguez-Boulan, E. Polarized endocytosis by Madin-Darby canine kidney cells transfected with functional chicken liver glycoprotein receptor. J. Cell Biol. 109, 2809(1989).
- Garza, L. A., Birnbaum, M. J. Insulin-responsive aminopeptidase trafficking in 3T3-L1 adipocytes. J. Biol. Chem. 275, 2560(2000).
- Le, T. L., Joseph, S. R., Yap, A. S., Stow, J. L. Protein kinase C regulates endocytosis and recycling of E-cadherin. Am. J. Physiol. Cell Physiol. 283, C489(2002).
- Swiatecka-Urban, A., et al. PDZ-domain interaction controls the endocytic recycling of the cystic fibrosis transmembrane conductance regulator. J. Biol. Chem. 277, 40099(2002).
- Swiatecka-Urban, A., et al. Myosin VI Regulates Endocytosis of the Cystic Fibrosis Transmembrane Conductance Regulator. J. Biol. Chem. 279, 38025(2004).
- Swiatecka-Urban, A., et al. The short apical membrane half-life of rescued uF508-CFTR results from accelerated endocytosis uF508-CFTR in polarized human airway epithelial cells. J. Biol. Chem. 280, 36762(2005).
- Swiatecka-Urban, A., et al. Pseudomonas aeruginosa inhibits endocytic recycling of CFTR in polarized human airway epithelial cells. Am. J. Physiol. Cell. Physiol. 290, C862(2006).
- Swiatecka-Urban, A., et al. Myosin Vb is required for trafficking of the cystic fibrosis transmembrane conductance regulator in Rab11a-specific apical recycling endosomes in polarized human airway epithelial cells. J. Biol. Chem. 282, 23725(2007).
- Ye, S., et al. c-Cbl facilitates endocytosis and lysosomal degradation of cystic fibrosis transmembrane conductance regulator in human airway epithelial cells. J. Biol. Chem. 285, 27008(2010).
- Cihil, K. M., et al. Disabled-2 protein facilitates assembly polypeptide-2-independent recruitment of cystic fibrosis transmembrane conductance regulator to endocytic vesicles in polarized human airway epithelial cells. J. Biol. Chem. 287, 15087(2012).
- MacEachran, D. P., et al. The Pseudomonas aeruginosa secreted protein PA2934 decreases apical membrane expression of the cystic fibrosis transmembrane conductance regulator. Infect. Immun. 75, 3902(2007).
- Pagano, A., Crottet, P., Prescianotto-Baschong, C., Spiess, M. In vitro formation of recycling vesicles from endosomes requires adaptor protein-1/clathrin and is regulated by rab4 and the connector rabaptin-5. Mol. Biol. Cell. 15, 4990(2004).
Reimpressões e permissões
