O objetivo deste protocolo é usar titulações redox monitoradas por ressonância paramagnética eletrônica (EPR) para identificar diferentes cofatores de Saccharomyces cerevisiae Nar1. As titulações redox oferecem uma maneira muito robusta de obter potenciais de ponto médio de diferentes cofatores ativos redox em enzimas e proteínas.
É necessária uma assinatura do JoVE para visualizar este conteúdo. Faça login ou inicie seu teste gratuito.
Artigo de método
EPR Monitorado Redox Titulação de cofatores de
Neste artigo
Resumo
Resumo
Ressonância paramagnética eletrônica (EPR) acompanhou titulações redox são um poderoso método para determinar o potencial médio de cofatores em proteínas e de identificar e quantificar os cofatores em seu estado redox detectável.
A técnica é complementar a electroquímica directa (voltametria) aproxima-se, uma vez que não oferece informação sobre as taxas de transferência de electrões, mas não determinar a identidade e estado redox dos cofactores na proteína sob estudo. A técnica é amplamente aplicável a qualquer proteína que contenha uma ressonância paramagnética electrão (EPR) cofactor detectável.
Uma titulação típica requer 2 ml de proteína com uma concentração de co-factor na gama de 1-100 uM. A proteína é titulado com um redutor químico (ditionito de sódio) ou oxidante (ferricianeto de potássio), a fim de poise a amostra a um determinado potencial. Um fio de platina e um eléctrodo de referência de Ag / AgCl são conectados a um voltmedidor para medir o potencial da solução de proteína. Um conjunto de 13 diferentes mediadores redox é usado para equilibrar entre os cofactores redox da proteína e os eléctrodos. As amostras são recolhidas em diferentes potenciais e os espectros de ressonância paramagnética eletrônica, característicos dos diferentes cofatores redox na proteína, são medidos. O gráfico da intensidade do sinal em relação ao potencial da amostra é analisada utilizando a equação de Nernst, a fim de determinar o potencial de meia onda de co-factor.
Introdução
É surpreendente que os processos químicos mais fundamentais que sustentam a vida neste planeta, a fotossíntese, fixação de nitrogênio e respiração, são catalisadas por grandes complexos de proteínas que contêm uma vasta gama de cofatores redox orgânicos e inorgânicos. Estimou-se que aproximadamente 30% de todas as proteínas contêm um ou mais co-factores de metal 1,2. Identificação e caracterização dos cofactores redox pode ser estabelecida utilizando electroquímica directa (por exemplo, proteína película voltametria) ou titulações redox. As duas técnicas são complementares em sua natureza e aplicabilidade. Voltammetry oferece determinação rápida de potenciais médios e cinética de transferência de elétrons de co-fatores que podem reagir com a superfície do eletrodo. 3,4 Geralmente isso funciona bem para proteínas de transferência de elétrons, como citocromo c ou ferredoxin. E, por vezes, trabalha para proteínas mais complexas que foram imobilizadas a uma superfície do eletrodo. O conhecimento detalhado donatureza de cofactores na proteína tem de estar disponível, como o voltamograma não dará nenhuma informação directa sobre a identidade do cofactor. Titulações redox são mais trabalhoso para executar e exigem quantidades mg de proteína. No entanto, eles oferecem informação sobre o potencial de meia onda e a identidade do cofactor. 5 Para além disso, em um único titulação múltiplos cofactores numa proteína pode ser monitorizado.
O princípio de uma titulação redox é que a proteína ou enzima redox activo é quimicamente reduzida ou oxidada. De modo a certificar-se de que os cofactores reagir com os mediadores redox oxidante ou redutor são utilizados. Estes mediadores redox também reagir com um eléctrodo de modo a que o potencial da solução podem ser medidos. Os mediadores actuam como um tampão redox e equilibrar entre os co-factores na proteína e o eléctrodo. Após poising quimicamente o potencial para o valor desejado, uma amostra é retirada e rapidamente congelados em azoto líquido para await posterior análise com técnicas espectroscópicas. Espectroscopia de EPR é particularmente útil a este respeito uma vez que pode ser utilizado para medir quantitativamente centros metálicos paramagnéticos ou radicais orgânicos.
A titulação redox pode ser realizada em duas direções: de baixo para cima ou de cima para baixo potencial médio. A escolha depende da estabilidade dos cofactores em estudo. Muitas vezes, é aconselhável começar pelo baixo potencial e adicionar oxidante para aumentar o potencial de passo a passo. Isso é chamado de titulação oxidativo e é descrito aqui. Aqui nós mostramos a titulação redox do cluster de ferro-enxofre contendo proteína Nar1 de Saccharomyces cerevisiae. Esta proteína está envolvida, provavelmente como uma proteína de andaime, na citosólica ferro-enxofre biossintética aglomerado máquinas (via CIA) 6,7.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Protocolo
1. Preparação da instalação e Soluções
- Preparar a solução de tampão contendo Tris 100 mM, NaCl 250 mM e 10% de glicerol a pH 8,5. Eliminar o ar da tampão lavando com argônio. Introduzir o buffer em uma câmara anaeróbica.
- Divida o tampão em duas porções. A uma porção (tampão A) adicionar 1 mM DL-ditiotreitol (DTT, M r 154,25 g / mol) e 1 mM de L-cisteína. A outra porção (tampão B) não contêm agentes redutores.
- Preparar soluções oxidantes e redutoras. Adicione 1 ml de soluções de 2, 20, e ferricianeto de potássio 200 mM (FIC, M r 329,26 g / mol) e de ditionito de sódio (SD, M r 174,11 g / mol) em tampão B. anaeróbio
- Preparar a mistura mediador como se segue:
- Adicionar 160 | iM de cada um dos seguintes mediadores redox e NaCl a 50 mM para o tampão B: N, N, N ', N' -tetrametil-p-phenylendediamine (TMPD, M r 237,17 g / mol, E '0 0,276 V) , 2,6-diclorofenol indofenol(DCIP, M r 290,08 g / mol, E '0 0,217 V), fenazino etossulfato (PES, M r 334,4 g / mol, E' 0 0,055 V), azul de metileno (M r 319,85 g / mol, E ' 0 0,011 V), Resorufina (Mr 235,17 g / mol, E '0 -0,051 V), Indigodisulphonate (Mr 466,35 g / mol, E' 0 -0,125 V), 2-hidroxi-1,4-naphtaquinone ( M r 174,15 g / mol, E '0 -0,145 V), antraquinona-2-sulfonato de (Mr 328,28 g / mol, E' 0 -0,225 V), Phenosafranin (M r 322,8 g / mol, E '0 -0,252 V), safranina O (Mr 350,84 g / mol, E '0 -0,280 V), vermelho neutro (M r 288,8 g / mol, E' 0 -0,340 V), Benzil viologen (M r 409,4 g / mol, E '0 -0,350 V), e metil viologen (M r 257,16 g / mol, E' 0 -0,440 V).
- Enrole a garrafa em uma folha de alumínio para proteger o mediadors da luz.
- Prepare a 10 mg / ml de S. proteína Nar1 marcado com strep cerevisiae (181? M, M r 55,2 kDa) em tampão A. Expresso S. cerevisiae Nar1 em E. coli como uma proteína marcado com estreptococos utilizando um vector de expressão pET24a. Purifica-se a proteína numa câmara anaeróbica utilizando meios de cromatografia Strep-tactin (IBA) e purifica-se utilizando um sistema de purificação de proteína, tais como purificador Akta (GE Healthcare).
- Preparar a titulação redox configuração numa câmara anaeróbia como se segue:
- Conectar um eléctrodo de referência de Ag / AgCl e um eléctrodo de fio de platina para o recipiente de titulação. Ligue ambos os eletrodos para um voltímetro que pode medir de mV até V.
- Insira uma pequena barra de agitação.
- Coloque o recipiente de titulação acima de um agitador magnético.
- Encher o reservatório de titulação com Tampão B, solução mistura mediador e a solução de proteína até 2 ml, ou seja, para concentrações finais de proteína de 72 uM e 38 uM de cadamediador. Nota: dependendo da concentração de proteína e o mediador necessário concentrações das quantidades dos três soluções deve ser ajustado.
- Agita-se durante 30 min e ligar o voltímetro.
- Prepare 10 de quartzo tubos EPR vidro limpo. Introduzir os tubos na câmara anaeróbia.
- Encha uma pequena (cerca de 200 ml) Dewar nitrogênio líquido com nitrogênio líquido.
2. Execute Redox Titulação
- Espere até que o potencial da solução é estável. Nota: Na prática, isto significa que o potencial trações menos de 1 mV por minuto.
- Anote o potencial dado pelo voltímetro.
- Desenhe a primeira amostra de 200 mL e injetar em um tubo de EPR.
- Tapar o tubo com uma rolha de borracha e retirar o tubo da câmara de anaerobiose.
- Congelar o tubo em azoto líquido como se segue: Cuidado! Isto tem de ser feito lentamente, de outra forma o tubo vai quebrar.
- Primeiro insira o tip do tubo em azoto líquido.
- Espere até que um som de assobio pode ser ouvido. Nota: Isto pode levar até 10 segundos.
- Lentamente inserir o resto do tubo de modo que a parte da amostra está totalmente submerso.
- Adicionar uma pequena alíquota 1-2 ul de solução de 2 mM de SD para a solução no recipiente de titulação, para reduzir o potencial da solução para -0.6 V.
Nota: Se mais do que 10 ul tem que ser adicionado, ligar-se à solução 20 mM. Como é muito difícil poise a um valor potencial específico, os valores reais registadas no voltímetro são anotados e utilizados para construir a curva de titulação. - Desenhe uma amostra conforme descrito na etapa 2,3-2,5.
- Anote o potencial real dado pelo voltímetro.
- Adicionar oxidante até que o potencial aumentou em cerca de 50 mV. Começar por adicionar uma pequena alíquota 1-2 ul da solução FIC 2 mM. Se mais do que 10 ul tem que ser adicionado, ligar-se à solução 20 mM.
- Anote how muito das soluções foi adicionado. Nota: Isto é necessário para corrigir a diluição da amostra durante a titulação.
- Desenhar uma amostra, tal como descrito no 2,3-2,5 passos.
- Anote o potencial real dado pelo voltímetro.
- Repita os passos 2,9 e 2,12, até a faixa de potencial de -0,6 V a 0,2 V tem sido coberto e todos os 10 tubos EPR estão cheios cada um com 200 mL.
Observação: Como o volume com cada retirada é reduzido o posicionamento dos eléctrodos podem necessitar de ser ajustadas ter um bom contacto com a solução sem interferência da agitação. Pode ser difícil medir o potencial após a retirada da última amostra e, portanto, o potencial de que a amostra pode ser menos exactas. - Opcionalmente, armazenar as amostras EPR congelados em nitrogênio líquido até que as medidas de RPE pode ter lugar.
3. medir amostras titulação utilizando EPR Espectroscopia e Análise de Dados
- Grave EPR espectros do diferenteamostras de titulação da seguinte forma:
- Usar uma bomba de alto vácuo para evacuar um criostato de quartzo a <-5 10 bar.
- Ligue o resfriamento de água do ímã EPR. Abra o fluxo de ar seco através da cavidade de RPE.
- Ligue a fonte de alimentação para o ímã e o computador do EPR.
- Executar um programa de calibração de frequência. Defina os parâmetros de medição EPR. Ligue o criostato para o hélio líquido dewar. Arrefecer a cavidade para 9-16 K.
- Introduzir a amostra na cavidade de RPE. Grave o espectro EPR.
- Identificar as diferentes espécies de EPR e utilizar o melhor para quantificar os espectros de sinais. Alcançar EPR quantificação por dupla integração dos espectros e comparação com o espectro de uma solução padrão de cobre externa CuSO 10 mM HCl 10/04 mM / 2 M NaClO4. 8
- Fazer a curva de titulação como se segue:
- Traça-se a amplitude do sinal EPR em um valor de g, que é característica para o parágrafomagnéticos espécies de interesse em relação ao potencial.
- Alterar a escala de amplitude do sinal EPR a um gira / escala molécula usando a quantificação EPR a partir do passo 3.2.
- Corrija a amplitude do sinal de cada amostra para a diluição que ocorreu devido às adições de oxidante ou agente redutor.
- Corrigir o potencial para o potencial de meia onda do eléctrodo de referência de Ag / AgCl.
Nota: O eléctrodo de referência de Ag / AgCl (com KCl saturada) tem um potencial de ponto médio de 0,194 V versus o Hidrogénio eléctrodo padrão (ELA), a 25 ° C. Portanto, se o potencial no voltímetro lê cerca de -0,6 V, com o potencial de referência para a ELA é -0.4 V.
- Montar o sinal para a equação de Nernst como se segue:
Para uma espécie que é paramagnético no estado reduzido: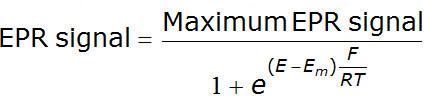
Para uma espécie que é paramagnético para o oestado xidized: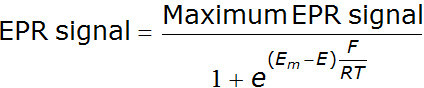
Para uma espécie que é paramagnética em um estado intermediário: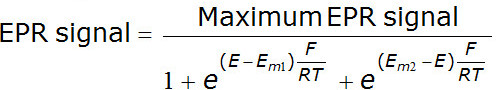
Essas equações são válidas para reacções redox em que um elétron é transferido, então n = 1.
E = potencial em volts
E m = potencial médio em Volt
F = constante de Faraday = 96,480 C · mol -1
R = constante de gás = 8,314 J K -1 · · mol -1
T = Temperatura em Kelvin
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Resultados
A titulação redox do conjunto do ferro-enxofre contendo proteína Nar1 a partir de Saccharomyces cerevisiae resultou na identificação de três diferentes co-factores: Nar1: uma [3fe-4S] de fragmentação, um [4FE-4S] de fragmentação e um centro de Fe mononucleares (Figura 1) . Os sinais de RPE são caracterizados por suas g-valores: para o [3FE-4S] + g z 2.01, 2.00 g de crossover (Figura 1B); para o [4FE-4S] +, z g 2,02 g 1,93 <...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Discussão
A série de 13 mediadores redox permite um equilíbrio redox da solução na gama de 0,3 a -0,45 V versus ELA (Tabela 1 e Figura 3). Bem acima e abaixo destes potenciais mediadores são todos ou completamente reduzida ou completamente oxidada e, consequentemente, não mais de equilíbrio com os centros activos redox da proteína podem ocorrer. Este é um conceito importante, como na literatura, por vezes redox titulações são realizadas com apenas dois ou três mediadores, permitindo apenas uma es...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Divulgações
Os autores não têm nada a revelar.
Agradecimentos
Este trabalho foi financiado por uma bolsa de investigação a partir da combinação Escola Nacional de Pesquisa holandesa, Catalysis Controlled by Design Chemical (NRSC-Catálise). Dr. HY Steensma e Dr. GPH van Heusden da Universidade de Leiden são reconhecidos por seu apoio com a expressão recombinante de S. cerevisiae Nar1.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Eléctrodo de referência (Ag/AgCl) | Radiometer | ||
| Chemicals | Espectrómetro Sigma-Aldrich | ||
| EPR | Bruker | ||
| N,N,N',N' -tetrametil-p-feniledendiamina (TMPD) · (HCl)2 | 637-01-4 | ||
| 2,6-diclorofenol indofenol (DCIP), sal | 620-45-1 | ||
| Fenossulfato de fenazina (PES) | 10510-77-7 | ||
| Azul | 122965-43-9 | ||
| Resorufina, sal | 34994-50-8 | ||
| Indigodissulfonato (índigo carmim) | 860-22-0 | ||
| 2-hidroxi-1,4-nafaquinona | 83-72-7 | ||
| Antraquinona-2-sulfonato Na+ H2O | 153277-35-1 | ||
| Fenosafranina | 81-93-6 | ||
| Safranina O | 477-73-6 | ||
| Vermelho | 553-24-2 | ||
| Benzilo viologen | 1102-19-8 | ||
| Metil viologen | 1910-42-5 |
Referências
- Lippard, S. J., Berg, J. M. Principles of Bioinorganic Chemistry. , University Science Books. (1994).
- Bertini, I. Bioinorganic Chemistry. , University Science Books. 611(1994).
- Leger, C., et al. Enzyme Electrokinetics: Using Protein Film Voltammetry To Investigate Redox Enzymes and Their Mechanisms. Biochemistry. 42, 8653-8662 (2003).
- Hagen, W. R. Direct Electron Transfer of Redox Proteins at the Bare Glassy Carbon Electrode. Eur. J. Biochem. 182, 523-530 (1989).
- Pierik, A. J., et al. Redox Properties of the Iron-Sulfur Clusters in Activated Fe-Hydrogenase from Desulfovibrio vulgaris (Hildenborough). Eur. J. Biochem. 209, 63-72 (1992).
- Balk, J., Pierik, A. J., Netz, D. J., Muhlenhoff, U., Lill, R. The Hydrogenase-like Nar1p is Essential for Maturation of Cytosolic and Nuclear Iron-Sulphur Proteins. EMBO J. 23, 2105-2115 (2004).
- Sharma, A. K., Pallesen, L. J., Spang, R. J., Walden, W. E. Cytosolic Iron-Sulfur Cluster Assembly (CIA) System: Factors, Mechanism, and Relevance to Cellular Iron Regulation. J. Biol. Chem. 285, 26745-26751 (2010).
- Aasa, R., Vänngård, T. EPR Signal Intensity and Powder Shapes. A Reexamination. J. Magn. Reson. 19, 308-315 (1975).
- Balk, J., Pierik, A. J. A., Netz,, J, D., Mühlenhoff, U., Lill, R. Nar1p, a conserved eukaryotic protein with similarity to Fe-only hydrogenases, functions in cytosolic iron-sulphur protein biogenesis. Biochem. Soc. Trans. 33, 86-89 (2005).
- Hennessy, D. J., Reid, G. R., Smith, F. E., Thompson, S. L. Ferene - a new spectrophotometric reagent for iron. Can. J. Chem. 62, 721-724 (1984).
- Flint, D. H., Emptage, M. H., Guest, J. R. Fumarase A from Escherichia coli: purification and characterization as an iron-sulfur cluster containing enzyme. Biochemistry. 31, 10331-10337 (1992).
- Hagedoorn, P. L., Driessen, M. C., Mvd Bosch,, Landa, I., Hagen, W. R. Hyperthermophilic Redox Chemistry: a Re-evaluation. FEBS Lett. 440, 311-314 (1998).
- Tadesse, M. A., D'Annibale, A., Galli, C., Gentili, P., Sergi, F. An assessment of the relative contributions of redox and steric issues to laccase specificity towards putative substrates. Organic & biomolecular chemistry. 6, 868-878 (2008).
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Reimpressões e permissões
