Registrar correntes de Ca2+ na membrana facial de liberação pré-sináptica é a chave para uma compreensão precisa da entrada de Ca2+ e da liberação de neurotransmissores. Apresentamos uma dissociação aguda da medula espinhal da lampreia que produz axônios reticuloespinhais isolados funcionais, permitindo o registro diretamente da membrana facial de liberação de terminais pré-sinápticos individuais.
É necessária uma assinatura do JoVE para visualizar este conteúdo. Faça login ou inicie seu teste gratuito.
Artigo de método
Aguda dissociação de lampreia reticulospinais axônios para permitir a gravação do lançamento Rosto Membrana de terminais pré-sinápticos funcionais individuais
Neste artigo
Resumo
Resumo
A transmissão sináptica é um processo extremamente rápido. O potencial de ação dirigido influxo de Ca2 + para o terminal pré-sináptico, através de canais de cálcio dependentes da voltagem (VGCCs) localizados na membrana rosto lançamento, é o gatilho para a fusão das vesículas e liberação de neurotransmissores. Crucial para a rapidez da transmissão sináptica é a sincronia espacial e temporal entre a chegada do potencial de acção, e a maquinaria VGCCs a libertação de neurotransmissores. A capacidade de gravar diretamente de Ca2 + correntes da membrana rosto liberação de terminais pré-sinápticos individuais é imprescindível para uma compreensão precisa da relação entre pré-sináptica de Ca2 + e liberação de neurotransmissores. Acesso à membrana rosto liberação pré-sináptica para a gravação eletrofisiológico ainda não está disponível na maioria das preparações e Ca 2 + entrada pré-sináptica tem sido caracterizada utilizando técnicas de imagem e MeasureMe atual macroscópicoNTS - técnicas que não têm resolução temporal suficiente para visualizar Ca2 + entrada. A caracterização de VGCCs diretamente nos terminais pré-sinápticos individuais não foi possível nas sinapses centrais e, até agora, foi alcançado com sucesso apenas no tipo cálice sinapse do gânglio ciliar e pinto em cálices de ratos. Temos abordado com sucesso este problema na sinapse reticuloespinhal gigante da lampreia medula espinhal através do desenvolvimento de uma preparação agudamente dissociada da medula espinhal que produz axônios reticulospinais isolados com terminais pré-sinápticos funcionais desprovidas de estruturas pós-sinápticos. Podemos fluorescently rotular e identificar terminais pré-sinápticos individuais e orientá-las para a gravação. Usando esta preparação, caracterizamos VGCCs diretamente para o rosto liberação de terminais pré-sinápticos individuais usando imunohistoquímica e eletrofisiologia abordagens. Ca2 + correntes foram registrados diretamente na membrana o rosto liberaçãoterminais pré-sinápticos individuais de f, o primeiro registo a ser realizada nas sinapses centrais.
Introdução
A transmissão sináptica é um processo extremamente rápido e preciso. Ação potencial invasão do terminal pré-sináptico leva à abertura de VGCCs localizados na membrana rosto liberação, o aumento resultante na pré-sináptica de Ca2 + age como o gatilho para a fusão das vesículas e liberação de neurotransmissores 1. Todos estes passos ocorrem dentro de centenas de microsegundos 2, e, portanto, requerem acoplamento espacial de VGCCs apertado para a vesícula máquinas de fusão 3. Pré-sinápticos de Ca2 + fluxos têm sido caracterizadas principalmente por meio de imagens abordagens utilizando Ca2 + corantes sensíveis 4. Incorporando Ca2 tampões que modulam Ca2 + nos neurónios pré-sinápticos tem sido utilizado para caracterizar indirectamente a relação entre o cálcio pré-sináptico e a neurotransmissão 3. Além disso, a modulação da pré-sináptico livre concentração de Ca2 + por uncaging Ca2 + 5 ou gravação macroscopic correntes de Ca2 + têm sido utilizados em conjunção com medidas de fusão e / ou a libertação de vesículas; como medidas de capacitância 6 ou pós-sinápticos respostas 2 para abordar a mesma questão. No entanto, a caracterização de Ca2 + correntes directamente na face de libertação, a secção especializada da membrana pré-sináptica, onde a despolarização da membrana é convertida em Ca 2 + correntes provocando a fusão das vesículas sinápticas e a libertação de neurotransmissores, é essencial para se obter uma medida precisa do Ca2 requisito para a fusão das vesículas sinápticas. Além disso, a capacidade de caracterizar directamente as correntes de Ca2 + nos terminais pré-sinápticos individuais, acoplado com medições simultâneas precisos de fusão das vesículas e libertação permite uma elucidação preciso da relação de temporização entre o curso do tempo da acção potencial, pré-sináptico corrente 2 + Ca, fusão das vesículas e liberação. Acesso à membrana rosto liberaçãonão está disponível na maior parte dos terminais pré-sinápticos, devido a fechar por aposição dos dendritos pós-sinápticos. Esta inacessibilidade tem sido um grande obstáculo na caracterização de VGCCs uma vez que impede medidas diretas de corrente nos terminais pré-sinápticos individuais. Caracterização direta de pré-sinápticos Ca2 + correntes nos terminais pré-sinápticos individuais, até agora, não foi possível nas sinapses centrais e só foi alcançado em dois terminais pré-sinápticos do tipo coletor; cálice do tipo sinapse do pinto gânglio ciliar 7-10 e rato calyces 11,12. Em todos os outros terminais pré-sinápticos, incluindo a sinapse reticuloespinhal gigante na lampreia medula espinhal 13, a falta de acesso à membrana rosto liberação pré-sináptica exigiu o uso de abordagens indiretas, tais como Ca2 + radiológico para o estudo pré-sinápticos de Ca2 + fluxos.
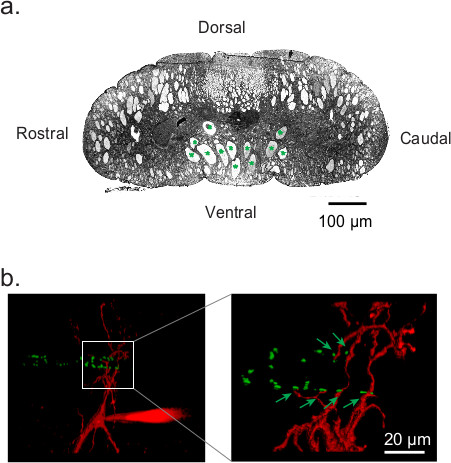 Figura 1 lampreia sinapse reticuloespinhal gigante. (A) Secção transversal da lampreia medula espinhal indicando orientação dorso-ventral. Axônios reticulospinais são marcadas com asterisco verde. (B) reconstrução 3-D da sinapse reticuloespinhal na lampreia medula espinhal mostrando axônio pré-sináptico reticuloespinhal fazendo numerosos en passant contatos (marcado por setas verdes) sobre o neurônio pós-sináptico 13. Terminais pré-sinápticos têm sido marcados com Alexa Fluor 488 conjugado com hidrazida faloidina (verde), enquanto que o neurónio pós-sináptico foi preenchido com Alexa Fluor 568 hidrazida (vermelho).
Lampreia gigantes axônios reticulospinais, localizado na região ventral da medula espinhal paralelo ao eixo Figura 1a rostral-caudal, forma múltipla en passant contatos sinápticos em neurônios doespinhal chifre ventral 14 Figura 1b 13. De célula inteira macroscópica Ca2 correntes foram registadas a partir de axônios reticulospinais na medula espinhal intacta 13,15. No entanto, tentativas anteriores para cegos medição directa de correntes de Ca 2 + em axónios reticulospinais na medula espinhal lampreia intacto usando ligado de células técnica de fixação de membranas 13, não têm tido sucesso, devido à falta de acesso à membrana cara de libertação pré-sináptica devido aos processos de pós-sinápticos opostas Figura 1b. A membrana de libertação cara tenha sido previamente tornado acessível pela remoção do neurónio pós-sináptico 11, perturbação mecânica da sinapse antes da gravação de 12 ou tratamento enzimático acoplado com dissociação mecânica 16. Dada a complexa organização da medula espinhal, que seria extremamente difícil identificar o neurônio pós-sináptico e recolhê-lo mecanicamente ou perturbar ªe sinapse. Por isso, decidimos usar o tratamento enzimático 17 seguido de dissociação mecânica.
Usando essa abordagem, temos desenvolvido uma preparação profundamente dissociada da lampreia medula espinhal que produz axônios reticulospinais isolados viáveis com terminais pré-sinápticos funcionais desprovidas de quaisquer processos de pós-sinápticos, proporcionando assim o acesso irrestrito aos terminais pré-sinápticos individuais. Em conjunto com um microscópio invertido padrão e imagens de fluorescência, que nos permite identificar e alvejar terminais pré-sinápticos fluorescente identificados individualmente, com uma pipeta de patch que contém uma solução de gravação que isola as correntes de Ca2 + 4c figura e Figura 4d, para gravar utilizando célula- ligado técnica tensão-grampo. Ca2 + correntes foram registrados diretamente na membrana rosto liberação pré-sináptica de indivíduo terminais pré-sinápticos Figura 4f. Este é um significant avanço no campo da transmissão sináptica, uma vez que é o primeiro exemplo de gravação a ser realizada nas sinapses centrais.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Protocolo
1: Preparação de poli-D-lisina Hydrobromide
- Prepare 1 mg / ml de bromidrato de poli-D-lisina em tampão borato 0,1 M (pH 8,5).
- Alíquotas e armazenar a -20 ° C.
Revestimento 2 Poli-lisina de Lamelas
Nota: Executar todas as etapas de limpeza e revestimento em uma câmara de fluxo laminar.
- Coloque lamelas em uma placa de Petri contendo 1 N de ácido clorídrico (HCl) durante 2 horas.
- Aspirar todo o HCl e enxágüe com 70% de etanol (EtOH) 2-3x.
- Deixar em EtOH a 70% durante 1 hora.
- Aspirar todo o etanol 70% e enxágüe com 100% EtOH 2-3x.
- Deixar em EtOH a 100% durante 2 horas. Aspirar todo o EtOH.
- Secar com papel de filtro e secar ao ar durante alguns segundos.
- Colocar N em 1 mg de solução de poli-lisina / / ml de S.
- Lavar lamelas dia seguinte com Millipore 4-5x água.
- Ar seco poli-lisina sobre lamelas de vidro revestidas em rolos de uma caixa de Petri limpa.
- Para immunohistochemistry, utilizar 35 × 10 mm tampas prato Petri. Prepare Sylgard (polydimethylsilioxane, PDMS) alinhado pratos vertendo PDMS (elastómero e agente de cura de 10: 1, em peso) para o prato com uma espessura de 0,3 cm, e deixar solidificar a 30 ° CO / N. Uma vez que este se pôs, cortar dois centímetros por 1 centímetro talhado no PDMS. Limpar e revestir a inserção com poli-lisina, seguindo os mesmos passos como mencionado acima para lamelas.
- Armazenar poli-lisina lamelas revestidas e pratos cobertos para dentro da câmara de fluxo laminar, até à sua utilização (cerca de 2 semanas, mas obter melhores resultados através da preparação de adesivos, periodicamente a cada 3-4 dias).
- Prepare um bloco de PDMS, para fixar a medula espinhal no fatiador de tecido vibrando. Elastómero Mistura A e B de elastómero 1: 1 em peso. Verte-se uma placa de Petri de 100 x 15 mm e permite fixar O / N a 30 ° C. Corte um pedaço retangular do PMDS e cola-lo para a placa de base de corte com cola epóxi. Permitir que a cola para definir que fixa os PDMS no lugar e cortar várias seções finas na superfície para obter um apartamentosuperfície para fixar o tecido no.
3. aguda dissociação da Lampreia Medular para produzir isolados reticulospinais Axons
- Anestesiar um ammoecoete ou adulto lampreia (Petromyzon marinus) com metanos tricaina (MS-222; 100 mg / L). Adicionar anestésico dentro da água, em um copo de plástico coberto por uma tampa, contendo a lampreia para ser sacrificado.
- Decapitar lampreia em frio (4 ° C) solução de Ringer com a seguinte composição (em mM): 130 NaCl, 2,1 KCl, 2,6 de CaCl2, 1,8 de MgCl2, 4 de HEPES, 4 dextrose (pH 7,6, osmolalidade 270 mOsm) e remover o corpo músculos da parede para expor a superfície dorsal da espinal-medula.
- Remover meninge Primitiva a partir da superfície dorsal da medula espinal utilizando fórceps finos. Não retire ventral Primitiva meninx nesta fase.
- Corte medula espinhal em um centímetro peças longas.
- Fixar um pedaço da medula espinhal usando finas pinos de insetos, lado dorsal voltada para cima, em um PDMS forrado cortar pla base dete (ver 2.12) numa câmara de tecido de vibração fatiador contendo a solução de Ringer com gelo.
- Retirar uma secção central da coluna dorsal da espinal medula por corte ao longo do eixo rostro-caudal com a lâmina, deixando para trás secções da coluna dorsal intactas no rostral e caudal termina para servir como lida durante o processo de dissociação Figura 2a e a Figura 2b. Use configuração de velocidade mais lenta que permite cortar e uma configuração de profundidade que remove apenas a coluna dorsal deixando a coluna subjacente axônio reticuloespinhal Figura 2b sem danos.
- Incubar cortados pedaços da medula espinal, à TA, durante 45 minutos, em uma mistura de 1 mg / protease ml (Tipo XIV a partir do Streptomyces griseus) e 1 mg / ml de colagenase preparado (Tipo IA a partir de Clostridium histolyticum) em solução de Ringer (adaptado a partir de El Manira & Bussières , 1997 17).
- Pedaços da medula espinhal Pin tratado com enzimas que utilizam pinos finos em um PDMS forrado Petri Conta pratoining solução de Ringer frio (4 ° C).
- Remover ventral Primitiva meninx com uma pinça fina.
- Cortar extensões laterais da medula espinal, com uma lâmina de bisturi, no ponto médio da secção dorsal cortado deixando a coluna central do axónios reticulospinais intactas na medula espinhal A Figura 2d.
- Colocar uma gota de óleo de imersão sobre a lente.
- Coloque a lamela poli-lisina revestido (Figura 3a, parte superior, retângulo vermelho) na ranhura da câmara de gravação Figura 3 e aplique graxa de vácuo para todas as bordas (espaço entre os retângulos vermelhos e azuis na Figura 3a, a fim de facilitar um selo. Parafuso o top no lugar. Coloque a câmara na inserção no equipamento de gravação.
- Adicionar a solução de Ringer na câmara de gravação, utilizando uma pipeta Pasteur.
- Conecte o tubo de saída do frasco contendo solução anticongelante pressão para o tubo de entrada de dispositivo de resfriamento termoelétrico. Conecte o output tubagem do dispositivo de arrefecimento termoeléctrico para a extremidade de entrada da camisa de arrefecimento externo e a extremidade de saída do reservatório para a Figura 3b.
- Coloque um pedaço de medula espinal de cada vez na câmara de gravação e separar cuidadosamente a medula espinhal mantê-la ao longo da lamela em todos os momentos, utilizando fórceps revestidos de Teflon, até axônios são isolados Figura 2e e na Figura 2f.
- Traga a temperatura da solução de gravação e 10 ° C, passando o pressurizado (gás de azoto é empurrado para dentro do frasco) de solução de anticongelante (por deslocamento), por intermédio do dispositivo de arrefecimento termoeléctrico, através da camisa de arrefecimento exterior da câmara de gravação Figura 3b.
- Permitir axónios para se recuperar por 1 h após a dissociação, a 10 ° C.
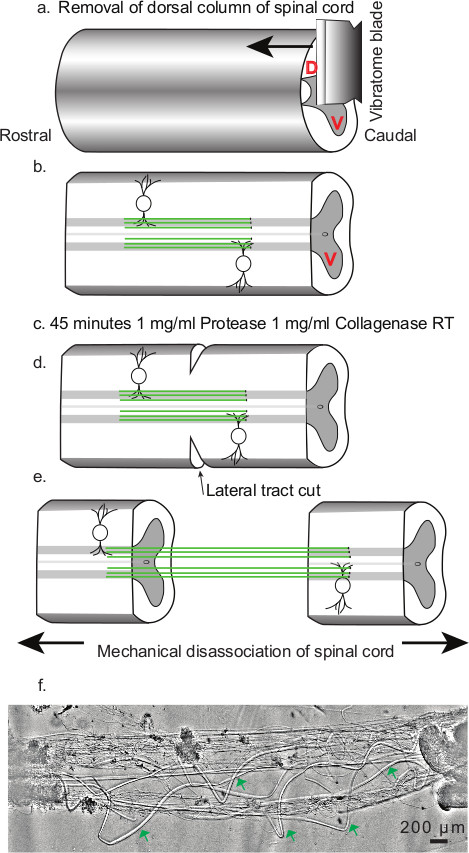
(A) A remoção da coluna dorsal. A seta indica a direcção de corte do tecido. Os cornos dorsais são marcados pelo alfabeto D (cor da fonte vermelho), enquanto os cornos ventrais de o alfabeto V (cor fonte vermelha) (b). Coluna dorsal removida na porção central da medula espinhal expondo os axónios reticulospinais (linhas verdes ). Os cornos ventrais, que permanecem intactos após o processo de corte, são marcadas pelo alfabeto V (cor de fonte vermelha). (C) o tratamento de 45 minutos com protease e colagenase enzimas cocktail (1 mg / ml). (D) Corte de extensões laterais da medula espinal; indicando a posição, a direcção e extensão do corte lateral. (e) dissociação mecânica da medula espinhal. As setas indicam a posição do fórceps e direção da força de separação durante a dissociação. (F) Representative exemplo de preparação dissociada axônio reticuloespinhal. Setas verdes marcar regiões de axônios reticulospinais agudamente dissociadas sem quaisquer processos pós-sinápticos.
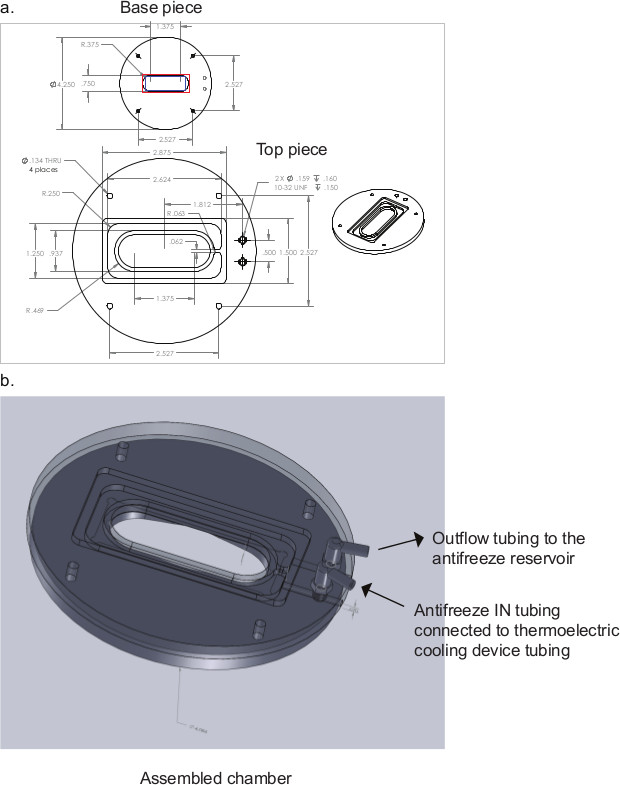
Figura 3 Esquema de câmara para experimentos de eletrofisiologia gravação. Dimensões fornecidas são em polegadas. Retângulo vermelho mostrado no diagrama basepiece (a) indica o posicionamento da lamela no sulco lamela no basepiece. A região entre o rectângulo vermelho e azul, mostrado no diagrama basepiece (a) é o local onde está aplicado o lubrificante alto vácuo. (B) mostra a câmara de gravação montadas.
4. rotulagem e identificação dos terminais pré-sinápticos com FM 1-43
- Rotular terminais pré-sinápticos, incorporando FM 1-43 em vesicles durante sináptica exo-endocitose durante a alta K + despolarização. Perfundir preparação com 5 uM de FM 1-43 (em 5 ml de solução de Ringer contendo KCl 30 mM).
- Perfundir preparação com 1 mg / ml ADVASEP-7 (em 5 ml de solução de Ringer), para remover o excesso de corante FM) 18.
- Perfundir preparação, com a solução de Ringer durante 15 min à lavagem e qualquer corante Remant o ADVASEP.
- Imagem com 100 X lente de imersão em óleo (1,25 NA) num microscópio de fluorescência invertido, em conjunto com uma câmara CCD digital e software de aquisição de imagem micromanager, usando protocolos de imagem de fluorescência padrão.
- Identifique os terminais pré-sinápticos marcados com fluorescência para direcionar para a gravação Figura 4c e 4d Figura.
5. Imunohistoquímica de isolados reticulospinais Axons
- Preencha prato inserção (seção Protocolo de 2.10.) Com bivalente-ion (Ca 2 + e Mg 2 +) livreSolução de Ringer.
- Fabricar pipetas de patch em uma micropipeta extrator P-87. Colocar uma pequena quantidade de cola de sutura numa extremidade de inserção da poli-lisina usando uma pipeta de remendo de 1,5 mm (diâmetro exterior de vidro) e de sucção (tubagem de silicone com um diâmetro interno de 0,89 milímetros com uma ponta de micropipeta ligada à extremidade de aspiração).
- Realizar dissociações utilizando o mesmo procedimento tal como mencionado na secção protocolo 3 Figura 2. Colocar uma extremidade da medula espinal em que a cola de sutura e pressionar suavemente com uma pinça para aderir fortemente à superfície. Colocar uma gota de cola de sutura na outra extremidade da inserção e alongar suavemente a medula espinal até axônios são dissociados e prender a extremidade livre da medula espinal, arrastando-o suavemente sobre a cola de sutura. Fixe no lugar pressionando suave para baixo com a pinça.
- Taxas bivalente libertar solução de Ringer com solução normal de Ringer por perfusão.
- Permitir que os axônios se recuperar por 20 min pós dissociation a 10 ° C.
- Fix axónios dissociados em 4% de paraformaldeído (PFA) {preparado de Tampão Fosfato Salino (PBS (mM) NaCl 137, KCl 2,7, Na 2 HPO 4 10, KH 2 PO 4 a 1,8, pH 7,4)} durante 20 min. Filtre solução PFA antes da utilização através da passagem por um filtro de seringa de 0,2 uM.
- Lavar a PFA irrigando glicina 0,1 M (em PBS) durante 10 min.
- Incubar em 0,1% de Triton-X (em PBS) durante 10 min.
- Lavar irrigando PBS durante 20 min.
- Bloco com 5% de leite desnatado (em PBS) durante 6 horas a 4 ° C.
- Adicionar em anticorpo primário para VGCC de interesse (diluição 1: 200 em PBS) e incuba-se durante 20 horas a 4 ° C.
- Lavar irrigando PBS durante 20 min.
- Bloco com 5% de leite desnatado (em PBS) durante 10 min a 4 ° C.
- Adicionar em anticorpo secundário (1: 400 em PBS) e incuba-se escura durante 2 horas a 4 ° C.
- Lavar irrigando com PBS durante 20 min.
- Bloco com 1% de soro bovino Albumin (em PBS) durante 20 min.
- Adicionar em Alexa Fluor 488 faloidina (5 unidades / ul concentração de trabalho; estoque preparadas em metanol a 200 Unidades / mL).
- Lavar irrigando com PBS durante 20 min.
- Imagem com lente de imersão em água 100X microscópio confocal.
6. eletrofisiológica Recording
- Fabricar pipetas de patch vidro alumino-silicato (resistência pipeta 2-5 mohms) em uma micropipeta extrator P-87. Projeto pipeta patch de tal forma que a ponta da pipeta engloba diâmetro inteiro terminal pré-sináptico.
- PDMS remendo pipetas revestimento por imersão a pipeta de adesivo sob 50-60 psi de pressão em PDMS 23 (juntar um tubo de silicone, 0,89 mm de diâmetro interno, ligada a um cilindro de gás de azoto, para a extremidade traseira da pipeta patch) e secam-se utilizando um calor arma. Como alternativa, o revestimento manualmente pipeta com PDMS, aplicando o revestimento o mais próximo da ponta quanto possível, sob um microscópio composto.
- Incêndio pipetas de patch polonês usando um microforge (um filamento de platina personalizado construído montada no palco de um microscópio composto).
- Identificar axônios isolados demonstrando terminais pré-sinápticos marcados por microscopia de fluorescência.
- Encha solução de gravação (concebido para isolar correntes de Ca 2 +, 10 mM de CaCl 2 ou 90 mM de BaCl2, como portador de carga, tamponada com HEPES, pH 7,6, osmolalidade 270 mOsm) para a pipeta de adesivo utilizando uma seringa.
- Insira remendo pipeta no suporte da pipeta e posição acima do banho usando um MP225 motorizada manipulador. Abaixe cuidadosamente a pipeta de patch para o banho e posição contra o rosto de um terminal pré-sináptico fluorescently identificado.
- Avança a pipeta remendo lentamente até que o contato é feito com a membrana. Neste ponto, conseguir uma vedação gigaohm por sucção boca suave através de um tubo colocado no suporte da pipeta.
- Para atingir os níveis extremamente baixos de ruído de fundo necessários para a gravação de um único canal de Ca2 + correntes, use um Axopatch 200B com um andar de entrada arrefecida para as gravações. Os dados da amostra em 20-50 kHz e filtrar por 5 kHz filtro de Bessel. Realizar aquisição de dados utilizando um Axograph X.
- Use um protocolo passo padrão, em incrementos de 10 mV como estímulo. Incorporar um pré-pulso no protocolo, o protocolo anterior passo, para assegurar activação máxima de canais de Ca 2 +. Incorporar uma mV etapa 10 vazamento no protocolo passo para pós-análise subtração das correntes de fuga.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Resultados
Isso gera protocolo dissociação saudáveis e funcionais axônios reticulospinais isoladas desprovidas de pós-sináptico projeções Figura 2f, mas que, no entanto, manter os terminais pré-sinápticos funcionais capazes de evocado vesículas sinápticas exo-e endocitose Figura 4c e 4d Figura. Secções das regiões isoladas dos axônios reticulospinais podem ser claramente identificados em microscópio de luz para estar livre de quaisquer outros processos neuronais que permitem o a...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Discussão
Nosso protocolo de dissociação é significativo por ceder axônios reticulospinais isoladas desprovidas de pós-sináptico projeções Figura 2f, mas que, no entanto, manter funcional pré-sináptica terminais Figura 4c e 4d Figura. A ausência de processos pós-sinápticos que se opõem ao terminal pré-sináptico permite o acesso a gravação direta para a membrana rosto liberação pré-sináptica nos terminais pré-sinápticos individuais, que não eram possíveis nas sinapses centrais e a...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Divulgações
Os autores não têm interesses financeiros concorrentes ou outros conflitos de interesse a divulgar.
Agradecimentos
Este trabalho foi apoiado pelo NINDS, RO1NS52699 e MH84874 para SA.
Gostaríamos de agradecer ao Dr. Dave Featherstone (Departamento de Ciências Biológicas, Universidade de Illinois em Chicago) por nos fornecer a cola de sutura usada no trabalho de imuno-histoquímica. Agradecemos a Michael Alpert por seus comentários e revisão do manuscrito.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| 0,2 µ m Filtro de seringa | EMD Millipore | SLGV004SL | |
| 22 x 60 mm Lamínulas | Fisherbrand | 12545J | |
| Advasep-7 | Cydex Pharmaceuticals | ADV7 | |
| Alexa Fluor 488 Faloidina | Invitrogen/Life Technologies | A12379 | |
| Alexa-633 anticorpo secundário anti-coelho de cabra conjugado | Invitrogen/Life Technologies | A21070 | |
| Anticongelante | Prestone | ||
| Ácido bórico | Sigma-Aldrich | B7660 | |
| Albumina de soro bovino | Sigma-Aldrich | A7906 | |
| Fonte de luz de campo brilhante | Dolan-Jenner | Fiberlite 180 | |
| Cloreto de cálcio | Sigma Aldrich | C4901 | |
| Colagenase Tipo IA de Cloristridium Histolyticum | Sigma-Aldrich | C9891 | |
| lamínula | Fisher-Scientific | 12-545-J | |
| Dextrose | Sigma-Aldrich | D9559 | |
| Câmera digital CCD | Hamamatsu | C8484-03G01 | |
| Pinça fina de dissecção | Ferramentas de ciência fina | 91150-20 | |
| Pinça de dissecção | Ferramentas de ciência fina | 11251-20 | |
| Microscópio de dissecação | Leica Biosystems | Leica MZ 12 | |
| Tesoura de dissecação | Fine Science Tools | 15025-10 | |
| Tesoura de dissecação fina | Fine Science Tools | 91500-09 | |
| Tesoura de dissecção ultrafina | Fine Science Tools | 15000-08 | |
| FM 1-43 | Invitrogen/Life Technologies | T3163 | |
| Glicina | Sigma-Aldrich | G7126 | |
| HEPES | Sigma-Aldrich | H7523 | |
| Graxa de alto vácuo | Dow-Corning | ||
| Ácido clorídrico | Fisherbrand | SA-56-500 | |
| Óleo de imersão | Fisher-Scientific | M2000 | |
| Tanque de gás nitrogênio de grau industrial | Praxair | UN1066 | |
| Alfinetes de insetos | Fine Science Tools | 26002-10 | |
| Cola de sutura líquida | Braun Veterinary Cair Division | 8V0305 | A cola de sutura que usamos em nossos experimentos nos foi fornecida por outro laboratório. Não é mais fabricado. Nós adquirimos uma cola de sutura Histoacryl para uso futuro da Aesculap (Ts1050071FP) |
| Cloreto | de magnésio Sigma-Aldrich | M2670 | |
| Metanol | Sigma-Aldrich | 154903 | |
| Tecnologia de sinalização celular | de leite em pó desnatado | 9999S | |
| P-87 Extrator de micropipeta | Sutter Instruments | ||
| Paraformaldeído | Sigma-Aldrich | P6148 | |
| Bomba de perfusão | Cole-Palmer | Masterflex C/L | |
| Placa de Petri 100 x 15 mm | Fisher-Scientific | 875712 | |
| Placa de Petri 35 x 10 mm | Fisher-scientific | 875712 | |
| Bromidrato de poli-D-lisina | Sigma-Aldrich | P1024 | MW > 300.000 |
| Cloreto de potássio | Sigma-Aldrich | P9333 | |
| Fosfato de potássio monobásico | Sigma-Aldrich | P5379 | |
| Anticorpos primários Canal de cálcio tipo R | Alomone Labs | ACC-006 | |
| Protease Tipo XIV de Streptomyces Griseus | Sigma-Aldrich | P5147 | |
| World Precision Instruments | 500240 | ||
| Garrafa de pressão Schot Duran | Fisher-Scientific | 09-841-006 | |
| Tubo de silicone para aplicação de cola | Cole-Palmer | 07625-26 | |
| Placa de base de corte | Leica Biosystems | 14046327404 | |
| Câmara de corte | Leica Biosystems | 14046230132 | |
| Cloreto de sódio | Sigma-Aldrich | S7653 | |
| Hidróxido de | S8045 | ||
| Fosfato de sódio dibásico | Sigma-Aldrich | S9763 | |
| Tetraborato de sódio | Sigma-Aldrich | B3545 | |
| Sylgard 160 Kit de elastômero de silicone | Dow Corning | SYLGARD® 160 | Para preparar, misture o elastômero A e o elastômero B 10:1 em peso |
| Sylgard 184 Kit de Elastômero de Silicone | Dow Corning | SYLGARD&nb; 184 | Para preparar, misture elastômero e agente de cura 10: 1 em peso |
| Pinça revestida de Teflon | Ferramentas de Fine Science | 11626-11 | |
| Tricaine metanossulfonato | Sigma-Aldrich | A5040 | |
| Lâminas de vibratomo | World Precision Instruments | LÂMINAS | |
| Lâmpada de xenônio | Nikon |
Referências
- Katz, B., Miledi, R. The timing of calcium action during neuromuscular transmission. Journal of Physiology. 189 (3), 535-544 (1967).
- Sabatini, B. L., Regehr, W. G. Timing of neurotransmission at fast synapses in the mammalian brain. Nature. 384 (6605), 170-172 (1996).
- Augustine, G. J., Adler, E. M., Charlton, M. P. The calcium signal for transmitter secretion from presynaptic nerve terminals. Annals of the New York Academy of Sciences. 635, 365-381 (1991).
- Zucker, R. S. Calcium and transmitter release. Journal of Physiology Paris. 87 (1), 25-36 (1993).
- Delaney, K. R., Shahrezaei, V. Uncaging Calcium in Neurons. Cold Spring Harbor protocols. (12), (2013).
- Paradiso, K., Wu, W., Wu, L. G. Methods for patch clamp capacitance recordings from the calyx. Journal of Visualized Experiments. (6), 244(2007).
- Stanley, E. F. The calyx-type synapse of the chick ciliary ganglion as a model of fast cholinergic transmission. Canadian Journal of Physiology and Pharmacology. 70, S73-S77 (1992).
- Church, P. J., Stanley, E. F. Single L type calcium channel conductance with physiological levels of calcium in chick ciliary ganglion neurons. The Journal of Physiology. 496 (Pt 1), 59-68 (1996).
- Stanley, E. F. Single calcium channels and acetylcholine release at a presynaptic nerve terminal. Neuron. 11 (6), 1007-1011 (1993).
- Weber, A. M., Wong, F. K., Tufford, A. R., Schlichter, L. C., Matveev, V., Stanley, E. F. N-type Ca(2+) channels carry the largest current implications for nanodomains and transmitter release. Nature Neuroscience. 13 (11), 1348-1350 (2010).
- He, L., Wu, X. S., Mohan, R., Wu, L. G. Two modes of fusion pore opening revealed by cell attached recordings at a synapse. Nature. 444 (7115), 102-105 (2006).
- Sheng, J., He, L., et al. Calcium channel number critically influences synaptic strength and plasticity at the active zone. Nature Neuroscience. 15 (7), 998-1006 (2012).
- Photowala, H., Freed, R., Alford, S. Location and function of vesicle clusters, active zones and Ca2+ channels in the lamprey presynaptic terminal. The Journal of Physiology. 569. 569 (Pt 1), 119-135 (2005).
- Rovainen, C. M. Synaptic interactions of reticulospinal neurons and nerve cells in the spinal cord of the sea lamprey. Journal of Comparative Neurology. 154 (2), 207-223 (1974).
- Takahashi, M., Freed, R., Blackmer, T., Alford, S. Calcium influx independent depression of transmitter release by 5 HT at lamprey spinal cord synapses. The Journal of Physiology. 532 (2), 323-336 (2001).
- Stanley, E. F., Goping, G. Characterization of a calcium current in a vertebrate cholinergic presynaptic nerve terminal. The Journal of Neuroscience. 11 (4), 985-993 (1991).
- El Manira, A., Bussières, N. Calcium channel subtypes in lamprey sensory and motor neurons. Journal of Neurophysiology. 78 (3), 1334-1340 (1997).
- Kay, A. R., Alfonso, A., et al. Imaging synaptic activity in intact brain and slices with FM1 43 in C elegans lamprey and rat. 24 (4), 809-817 (1999).
- Betz, W. J., Bewick, G. S. Optical analysis of synaptic vesicle recycling at the frog neuromuscular junction. Science. 255 (5041), 200-203 (1992).
- Bleckert, A., Photowala, H., Alford, S. Dual pools of actin at presynaptic terminals. Journal of Neurophysiology. 107 (12), 3479-3492 (2012).
- Gustafsson, J. S., Birinyi, A., Crum, J., Ellisman, M., Brodin, L., Shupliakov, O. Ultrastructural organization of lamprey reticulospinal synapses in three dimensions. The Journal of Comparative Neurology. 450 (2), 167-182 (2002).
- Broadie, K., Featherstone, D. E., Chen, K. Electrophysiological Recording in the Drosophila Embryo. Journal of Visualized Experiments. (27), (2009).
- Rae, J. L., Levis, R. A. A method for exceptionally low noise single channel recordings. Pflügers Archiv European Journal of Physiology. 420 (5-6), 618-620 (1992).
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Reimpressões e permissões
