Um protocolo baseado em PCR foi adaptado para detectar Cronobacter spp., Salmonella enterica e Listeria monocytogenes de superfícies corporais e canais alimentares de moscas capturadas na natureza. O objetivo deste protocolo é detectar e isolar patógenos bacterianos de insetos individuais coletados como parte de um programa de amostragem ambiental durante investigações de surtos de origem alimentar.
Artigo de método
Detecção de Patógenos alimentares bacterianas de Flies Individual Filth
Neste artigo
Resumo
Resumo
Há um consenso unânime de que os insetos são vetores importantes de patógenos transmitidos por alimentos. No entanto, vincular insetos como vetores do patógeno que causa um surto específico de doença transmitida por alimentos tem sido um desafio. Isso ocorre porque os insetos não estão sendo coletados assepticamente como parte de um programa de amostragem ambiental durante as investigações de surtos transmitidos por alimentos e porque não existe um método padronizado para detectar bactérias transmitidas por alimentos de insetos individuais. Para dar um passo em direção à solução desse problema, adaptamos um protocolo de um sistema baseado em PCR disponível comercialmente que detecta patógenos transmitidos por alimentos em amostras alimentares e ambientais, para detectar patógenos transmitidos por alimentos em moscas individuais. Usando este protocolo padronizado, pesquisamos 100 moscas capturadas na natureza quanto à presença de Cronobacter spp., Salmonella enterica e Listeria monocytogenes e demonstramos que era possível detectar e isolar ainda mais esses patógenos da superfície corporal e do canal alimentar de uma única mosca. Vinte e dois por cento dos canais alimentares e 8% das superfícies corporais de moscas selvagens coletadas foram positivos para pelo menos um dos três patógenos transmitidos por alimentos. A prevalência de Cronobacter spp. em ambas as partes do corpo das moscas foi estatisticamente maior (19%) do que a prevalência de S. enterica (7%) e L. monocytogenes (4%). Não foram observados falsos positivos ao detectar S. enterica e L. monocytogenes usando este sistema baseado em PCR porque as culturas bacterianas puras foram obtidas de todos os resultados positivos para PCR. No entanto, colônias puras de Cronobacter não foram obtidas de cerca de 50% das amostras positivas para PCR, sugerindo que o sistema de detecção baseado em PCR para esse patógeno reage de forma cruzada com outras Enterobacteriaceae presentes entre a microbiota altamente complexa transportada por moscas selvagens. O protocolo padronizado apresentado aqui permitirá que os laboratórios detectem patógenos bacterianos transmitidos por alimentos a partir de insetos coletados assepticamente, dando às autoridades de saúde pública outra linha de evidência para descobrir como o alimento foi contaminado ao realizar investigações de surtos transmitidos por alimentos.
Introdução
Insetos desempenhar um papel importante na transmissão de doenças relacionadas com a alimentação, porque eles podem se espalhar patógenos em superfícies e utensílios um alimento ou contato com alimentos. Entre os insetos, moscas, baratas, formigas e exibem comportamentos que favorecem a propagação de agentes patogénicos de origem alimentar. Estes comportamentos incluem uma associação com a matéria em decomposição, lixo e fezes, (edifícios) que entram endófila e sinantropia (coabitar com os humanos) 2. .. Patogênicas, como Salmonella spp, Listeria monocytogenes, Campylobacter spp, Escherichia coli O157: H7, e membros do gênero Cronobacter (anteriormente Enterobacter sakazakii) foram relatados para ser transmitida por insetos 3-5. Filth sinantrópicos moscas espalhar mecanicamente bactérias de origem alimentar através da transferência de patógenos de suas superfícies corporais contaminados. No entanto, a presença de agentes patogénicos de origem alimentar no canal alimentar de moscas pode ser até três vezesmaior do que a observada em suas superfícies do corpo (corpo, cabeça, pernas e asas) 5. Patogênicas também pode permanecer no canal alimentar da mosca de um maior período de tempo do que na superfície do corpo 6,7 e, em alguns casos, eles são capazes de se multiplicar, colonizando 4,8,9 tracto digestivo da mosca. Isso aumenta o potencial vetor de moscas, porque eles podem se espalhar ainda mais patogênicas através de defecação e regurgitação 10,11.
Hoje em dia, não são melhorados os sistemas de vigilância que são capazes de detectar surtos de doenças transmitidas por alimentos mais rapidamente. Durante a execução de investigações de surtos de origem alimentar, autoridades de saúde pública olhar para a comida que pode ser a fonte (s) ou veículo (s) de infecção. Os investigadores também podem realizar uma avaliação ambiental da instalação (ou instalações) envolvidos para descobrir como o alimento estava contaminado e pode coletar amostras como parte da investigação 12. Despite a grande quantidade de literatura científica sobre os insetos como portadores de agentes patogénicos de origem alimentar, ligando insetos como vetores do patógeno causando um surto de doença de origem alimentar em particular tem sido um desafio. Isto é principalmente porque insetos não estão sendo assepticamente coletadas como parte de programas de amostragem ambiental durante a investigação de surtos de origem alimentar. Para incluir insetos, particularmente aqueles que exibem comportamentos que favorecem a propagação de agentes patogénicos de origem alimentar, como parte de um processo de amostragem ambiental, um protocolo padronizado, rápido, sensível e confiável para detectar agentes patogénicos de origem alimentar a partir de um único inseto precisa estar no lugar.
Chapeamento técnicas tradicionais para a detecção de agentes patogénicos de origem alimentar de insectos são trabalhosos e dependem do crescimento competitivo das bactérias alvo em diferentes meios de cultura para superar o rápido crescimento da microflora comensal inata do insecto. A maioria dos estudos que têm associados insetos com bapatógenos cterial ter aumentado a sensibilidade do método, que congregam vários insetos em vez de identificar a presença de patógenos em uma base por indivíduo. Assim, esses estudos não diferenciar a parte do corpo do inseto, onde os patógenos foram encontrados 13-18. A capacidade de identificar se patogênicas estão localizados na superfície do corpo ou no tubo digestivo de um inseto indivíduo é importante, pois isso pode ter implicações epidemiológicas e podem levar a diferentes estratégias de mitigação. Como vectores mecânicos, que opera em terra alimentar por um curto período de tempo só pode transferir os baixos níveis de bactérias da sua superfície corporal, ao passo que aquelas moscas que regurgitar e defecar sobre os alimentos aumentam a probabilidade de transferência de agentes patogénicos a níveis potencialmente elevados de infecção. Por conseguinte, é importante para estimar a prevalência de um agente patogénico de origem alimentar por um insecto indivíduo e para diferenciar a parte do corpo do referido insecto, onde o p bacteriana athogen está localizado.
Mesmo que o uso de métodos independentes de cultivo para detectar agentes patogénicos de origem alimentar são cada vez mais sendo implementadas, elas não foram comercialmente usado para detectar agentes patogénicos de origem alimentar a partir de um único inseto. Atualmente, existem protocolos validados moleculares que estão comercialmente disponíveis para a rápida detecção de patógenos alimentares de alimentos que estão sendo usadas pela indústria e agências reguladoras. Estes métodos incluem sistemas baseados no ADN para a detecção de agentes patogénicos em uma variedade de amostras de alimentos. Embora os protocolos moleculares são mais rápidos do que os métodos tradicionais de chapeamento, o enriquecimento da amostra continua a ser necessária para obter o nível de sensibilidade de 10 2 unidades formadoras de colónias (UFC) do agente patogénico bacteriano necessário na reacção em cadeia da polimerase (PCR) de métodos baseados em 19. Além disso, o isolamento de colônias de bactérias puras de amostras positivas para a PCR é necessária para confirmar o patógeno através de métodos apropriados.
conteúdo "> O objectivo deste protocolo é de padronizar um sistema baseado em PCR comercialmente disponíveis utilizados para detectar agentes patogénicos em amostras alimentares e ambientais para a detecção de bactérias de origem alimentar a partir da superfície do corpo e do tubo digestivo de uma única mosca e para isolar ainda mais aqueles patogéneos da sensibilidade samples.The do protocolo descrito aqui foi calibrado primeiro criados em laboratório com casa adulto moscas (Musca domestica) que foram experimentalmente alimentados com diluições em série de cada agente patogénico bacteriano. O protocolo padronizado foi subsequentemente utilizada para levantamento 100 selvagens capturados voa para a presença de agentes patogénicos alimentares de suas superfícies corporais e / ou canais alimentares. Este protocolo padronizado permitirá que os laboratórios de saúde pública para detectar ameaças à saúde apresentados por insetos, permitindo a possibilidade de coletá-los como parte do programa de amostragem ambiental durante a execução de origem alimentar investigações de surtos.Protocolo
1. Recolha de moscas
- Recolha moscas estéreis individuais usando redes de varredura entomológicos. Coloque as redes em um refrigerador e transferi-los para o laboratório.
2. Dissection of Flies
- Imobilizar moscas recolhidos assepticamente, colocando-os a -20 ° C durante 5-7 min.
- Utilizando uma pinça estéril lugar uma mosca em um tubo de 2 ml estéril contendo 1 ml de pré-aquecido (37 ° C) de água peptonada tamponada (BPW). Misture o tubo suavemente por inversão durante 2 min. É essencial que todo o corpo da braguilha de estar em contacto com os meios de comunicação de modo que a microbiota presente na superfície do corpo (S) da mosca será transferido para o BPW (BPW-S). Rotular o tubo com um número e parte do corpo da mosca (ou seja, 1 S).
NOTA: Por favor, consulte a Tabela de reagentes específicos / Equipamento para uma descrição detalhada dos materiais e reagentes mencionados neste protocolo. - Utilizando uma pinça estéril remover a voar a partir do media BPW-S e transferência-lo para um tubo vazio e limpo 2 ml para a superfície desinfectar a mosca. Incubar o tubo contendo os meios BPW-S a 37 ° C durante a realização do protocolo de desinfecção e dissecção.
- Superfície-desinfectar a mosca por imersão em 1 ml de etanol a 70% durante 1 minuto, seguido por uma lavagem com água destilada estéril antes de os mergulhar em 1 ml de preparado de fresco 0,05% (v / v) de solução de lixívia. Lavar 3 vezes com água destilada estéril. Transferência de Água do último enxágüe a um tubo esterilizado 2 ml.
NOTA: Retirar o líquido de cada vez utilizando uma micropipeta de 1000 uL ou invertendo o tubo, tornando-se que a mosca permanece no interior do tubo. Misturar suavemente por inversão em cada passo do processo de superfície-a desinfecção. - Para avaliar a eficácia do processo de desinfecção, transferir 100 ul de água a partir da última lavagem a uma placa de agar de tripticase de soja (TSA) e espalhado utilizando um espalhador estéril descartável em forma de L. Incubar a placa a 37 ° C durante 24 horas. Depois de emcubation, cadastre-se a presença de quaisquer colônias bacterianas.
NOTA: A presença de colônias de bactérias nas placas TSA indica um processo de superfície-desinfecção ineficiente. Se isso ocorrer, a presença de patógenos alimentares só devem ser relatados na superfície do corpo da mosca, porque a contaminação cruzada entre a superfície do corpo e do canal alimentar não pode ser descartada.
- Superfície-desinfectar a mosca por imersão em 1 ml de etanol a 70% durante 1 minuto, seguido por uma lavagem com água destilada estéril antes de os mergulhar em 1 ml de preparado de fresco 0,05% (v / v) de solução de lixívia. Lavar 3 vezes com água destilada estéril. Transferência de Água do último enxágüe a um tubo esterilizado 2 ml.
- Após desinfecção da superfície da mosca, transferi-lo para um pedaço de toalha de papel autoclavada para remover o excesso de água e, em seguida, a uma estéril descartável 60 milímetros placa de Petri.
- Coloque a placa de Petri sob um escopo dissecar e identificar a voar para o nível de espécie utilizando chaves dicotômicas para famílias de dípteros 20,21.
- Usando uma pinça de ponta fina autoclavados puxe o ânus e todo o canal alimentar (A) para fora da mosca e assepticamente transferi-lo para outro tubo de 2 ml estéril contendo 1 ml de pré-aquecido (37 ° C) BPW com 0,5 milímetros de zircônia / sílica grânulos (BPW-A). Th rótuloe tubo com o mesmo número seleccionado para a mosca individual e a parte do corpo da mosca (ou seja, 1A).
- Misture o tubo contendo a BPW-A cuidadosamente para 5 - 10 min usando um disruptor de célula. Incubar a 36 ± 1 ° C, enquanto executa o resto do protocolo.
- Para comprovantes e / ou armazenar a amostra para a longo prazo, colocar o restante da mosca num tubo limpo de 2 ml e adicionar 1 - 2 ml de etanol a 95%.
3. Enriquecimento Primário e Secundário
- Rotular todos os tubos de enriquecimento primário e secundário contendo mídia de acordo com o número da amostra e parte do corpo da mosca.
- Dentro de uma câmara estéril, transferir 300 ul de BPW-S (de superfície) para estéril 2 ml tubos contendo as seguintes mídias:
- Para Salmonella, use 1 ml de pré-aquecido (42 ° C) BPW. Incubar em um banho de água em recirculação em 42,5 ° C durante 22-24 horas. Para enriquecimento secundário, transferir 100 ml de BPW enriquecido para 400 & #181; l de (37 ° C) de infusão de cérebro e coração pré-aquecido (BHI) anteriormente colocado em tubos estéreis de fragmentação. Incubar a 37 ° C durante 3 h.
- Para Cronobacter, utilizar 1 ml de pré-aquecido (37 ° C) BPW com novobiocina (10 mg / L; Wallace, M., comunicação pessoal). Como alternativa, use 1 ml da R & F Enterobacter caldo de enriquecimento sakazakii com suplemento (vancomicina e cefsulodina) como enriquecimento primário. Incubar a 37 ° C durante 22-26 horas. Para enriquecimento secundário, transferir 100 ul de BPW enriquecido com novobiocina a 400 ul de pré-aquecido (37 ° C) caldo BHI previamente colocados em tubos estéreis de fragmentação. Incubar a 37 ° C durante 3 h.
- Para L. monocytogenes, use 1 ml de recém-preparados RT 24 Listeria caldo de enriquecimento (24 LEB) com suplemento seletivo. Incubar a 37 ° C durante 44 ± 5 h. Nenhuma enriquecimento secundário é necessário para a detecção de L. monocytogenes.
- Repita os passos 3.2.1 - 3.2.3 utilizando o tubo rotulado como BPW-A.
4. Preparação do Sistema de PCR Baseado em amplificação e detecção do alvo Foodborne Hospedeiro
Passos 4-8 usar um sistema comercial PCR reciclador / detector, uma estação de trabalho do computador, e kits prontos de usar a tela para Salmonella (Salmonella 2 kit ensaio padrão), espécie Cronobacter (E. kit ensaio padrão sakazakii) e Listeria monocytogenes (L. monocytogenes kit ensaio 24E). Os ensaios padrão usam detecção do ponto final PCR. Cada kit contém comprimidos de PCR-pronto com um corante de intercalação que emite um sinal de fluorescência quando a ligação a DNA de cadeia dupla. O sinal é captado durante a fase de detecção, o programa do sistema de PCR, a geração de uma curva de fusão que é interpretado pelo software como positivo ou negativo.
- Prepare os reagentes e equipamentos, conforme especificado pela Fábricasprotocolo de rer por cada patógeno de origem alimentar alvo.
NOTA: Os protocolos para a detecção de Salmonella e Cronobacter requerem um procedimento de lise de um passo enquanto que o protocolo para a detecção de L. monocytogenes requer um procedimento de lise de duas etapas (ver secções 5 e 6, respectivamente). - Ligue o bloco de aquecimento automatizado selecionar o programa específico para o patógeno alvo. Alternativamente, se os blocos de aquecimento são manual, defina temperaturas até 37 ° C (por Salmonella, Cronobacter spp, e L. monocytogenes.) Ou a 55 ± 2 ° C (por L. monocytogenes parte 2 de lise - veja o passo 6.2) e 95 ± 3 ° C.
- Certifique-se de que os blocos de refrigeração ter sido refrigerado O / N, caso contrário, chill-los a 2 - 8 ° C por pelo menos 2 horas.
- Utilizando o software de computador do sistema de detecção com base em PCR, criar um ficheiro rack seguindo as instruções do fabricante.
- Rotular e organizar aglomeradotubos contendo o reagente de lise no bastidor, de acordo com o ficheiro de cremalheira.
- Inicializar o instrumento sistema de detecção com base em PCR.
5. Execute Lise para a detecção de Salmonella e Cronobacter
- Prepare o reagente de lise pela adição de 150 ul de protease para uma garrafa de 12 ml de tampão de lise.
- Transferir 200 uL de reagente de lise a cada um dos tubos de fragmentação, previamente identificados.
NOTA: tubos de cluster contendo o reagente de lise pode ser armazenado a 2-8 ° C por até 2 semanas. - Utilizando pontas longas pipeta, transferir 20 l de amostras enriquecidas secundários (ver passos 3.2.1 e 3.2.2) para tubos de clusters contendo 200 mL de reagente de lise correspondente. Utilize pontas novas para cada amostra.
NOTA: Mantenha tubos de enriquecimento primário e secundário na geladeira (Salmonella) ou à temperatura ambiente (Cronobacter) para análise posterior confirmação de amostras de PCR-positivos / negativos. - Preparar controlos negativos pela adição de 20 ul de meio BHI estéril para tubos de clusters contendo 200 ul de reagente de lise.
- Preparar controlos positivos, adicionando 20 l de o / n culturas bacterianas (cultivadas em BHI) de qualquer Salmonella conhecido ou Cronobacter tensão para tubos de clusters contendo 200 mL de reagente de lise.
- Tubos de cluster Cap e segura firmemente usando a ferramenta de nivelamento.
- Coloque o rack de tubos de fragmentação do bloco de aquecimento automático depois de selecionar o programa específico para o patógeno alvo. Alternativamente, incubar os tubos de fragmentação a 37 ± 2 ° C durante 20 min, seguido de incubação a 95 ± 3 ° C durante 10 min. Finalmente, os tubos de transferência de fragmentação de blocos de arrefecimento (2 - 8 ° C) durante 5 min.
NOTA: tubos Cluster contendo o lisado pode ser armazenado a -20 ° C durante até 2 semanas.
6. Execute Lise para Detecção de L. monocytogenes
- Execute primeira partelise como se segue:
- Adicionar 1,8 ml de água desionizada estéril para o frasco de agente de lise totalmente descongelada 1.
NOTA: Loja agente lise 1 a 2 - 8 ° C até que esteja pronto para uso. Após a abertura e diluição, loja em RT (20-30 ° C) por até 6 meses. - Combinar com agentes de lise 1 e 2 numa proporção de 4: 1 (40 ul de agente de lise diluído 1 e 10 ul de agente de 2 por cada amostra de lise). Transferir 50 uL de os agentes de lise combinados para agrupar os tubos. Use a mistura dentro de 4 horas.
- Adicionar 500 ul de amostra enriquecida primário (ver o passo 3.2.3) para o tubo de aglomerado contendo os 50 ul de os agentes de lise combinados.
- Prepara-se uma testemunha negativa por adição de 500 ul de 24 LEB estéril para 50 mL de os agentes de lise combinados.
- Preparar um controlo positivo através da adição de 500 ul de O / N L. monocytogenes cultura crescida em 24 a 50 ul LEB dos agentes de lise combinados.
- Tampe os tubos de fragmentação, misture delicadamente e lugarno bloco de aquecimento a 37 ± 1 ° C durante 30 min.
NOTA: Manter tubos de enriquecimento primário na geladeira para posterior análise de confirmação de amostras de PCR-positivos / negativos.
- Adicionar 1,8 ml de água desionizada estéril para o frasco de agente de lise totalmente descongelada 1.
- Execute parte 2 de lise da seguinte forma:
- Prepare o reagente de lise como instruído em passos 5.1 e 5.2.
- Usando pontas longas pipeta 20 l de parte um ligado a tubos de clusters contendo 200 mL de reagente de lise. Utilize pontas novas para cada amostra.
- Tubos de cluster Cap e segura firmemente usando a ferramenta de nivelamento.
- Tubos lugar cluster no bloco de aquecimento automatizado selecionando o programa específico de L. monocytogenes. Alternativamente, incubar os tubos de fragmentação a 55 ± 2 ° C durante 30 min, seguido de incubação a 95 ± 3 ° C durante 10 min. Finalmente, os tubos de transferência de fragmentação de blocos de arrefecimento (2 - 8 ° C) durante 5 min.
NOTA: tubos Cluster contendo o lisado pode ser armazenado a -20 ° C durante até 2 semanas.
Tablets 7. Hidrate PCR-Ready
- Escolher um (4 ° C) bloco de arrefecimento PCR gelada e colocar um suporte de tubos de PCR através da inserção.
- Coloque tubos de PCR contendo os tablets PCR-ready (incluídos com cada kit) para o patógeno de origem alimentar alvo no suporte correspondente, de acordo com o arquivo de rack.
- Usando a ferramenta decapping, retire cuidadosamente as tampas de PCR-tubos. Descarte as tampas e verificar se cada tubo contém um tablet.
- Transferir 50 uL (para Salmonella e Cronobacter) ou 30 ul (para L. monocytogenes) de lisado para tubos de PCR específicos. Use novas tampas ópticos e segura firmemente para os tubos de PCR utilizando a ferramenta de nivelamento.
NOTA: Após a adição do lisado para comprimidos prontos-PCR, as amostras devem permanecer arrefecida a 2 - 8 ° C até serem carregadas para o sistema de detecção com base em PCR. Os tubos de PCR pode ser centrifugado a 2500 xg durante alguns segundos, para assegurar que todo o volume é inferior a no tele tubo. - Carregar os tubos de PCR no instrumento sistema de reciclador / detecção por PCR através da abertura da gaveta instrumento.
- Coloque o rack de tubos de PCR para os poços na gaveta e verificar que os tubos estão encaixados corretamente.
- Fechar a gaveta e o início do programa, tal como descrito por protocolo do fabricante.
NOTA: O instrumento baseado no PCR pré-configurou parâmetros de ciclismo para cada patógeno de origem alimentar. - Verifique se a barra de status ciclismo PCR apresenta uma barra azul indicando que a parte de amplificação do programa está em execução.
NOTA: Para os ensaios de PCR padrão, o tempo de processamento de todo o programa (amplificação e de detecção) demora cerca de 3-3,5 horas a completar.
8. Rever Resultados
- Após o processamento estiver concluído, siga as instruções na tela do instrumento sistema baseado em PCR para remover amostras e resultados da revisão.
- Se o agente patogénico de origem alimentar alvo está presente na amostra (ou osuperfície ou o canal alimentar da mosca) o bem é vermelho com um sinal de "mais" (positivo). Se o patógeno está ausente, o bem é verde com um sinal de "menos" (negativo).
- Se o bem é amarelo com uma barra vermelha em todo o centro, ele indica um erro de sinal.
9. Isolamento de Bacteriana Pathogens de resultados PCR-positivos
- Selecione os tubos do primário (para L. monocytogenes) ou secundária (para Salmonella e Cronobacter) enriquecimento dessas amostras PCR-positivo. Além disso, selecione aleatoriamente 3-5% das amostras PCR-negativo e proceda da seguinte forma:
- Para Salmonella:
- Adicionar 100 ul de meios de comunicação de enriquecimento secundário para 10 ml de Rappaport-Vassiliadis (RV) e a forma de 1 ml de tetrationato (TT) caldo. Incubar os tubos a 42,5 ° C num banho de água com recirculação para 22-24 hr.
- Após a incubação, raia uma ansa de 3 mm (10 ul) de cada um, um RVd TT mídia em sulfito de bismuto (BS) agar, xilose lisina desoxicolato (XLD) agar, e Hektoen entérica (HE) agar. Incubar as placas a 35 ± 1 ° C durante 22-24 horas.
- Após a incubação, examinar as placas para a presença de colónias de Salmonella típicos em cada mídia. Se não há colónias isoladas pode ser obtido após vários passos de sub-cultura, considere a amostra como negativa e comunicar como um falso positivo para o sistema com base em PCR.
NOTA: Para colónias de Salmonella típicos em meios específicos ver 22. Selecione cinco colônias de Salmonella típicos presuntivos e subcultura-los em BS, XLD, ou até HE são obtidas culturas puras de isolados / colónias individuais. - Selecione uma colônia pura e identificar Salmonella presuntivo usando testes comerciais bioquímicos, como o cartão de identificação VITEK 2 ou API sistema de identificação bioquímica, seguindo as instruções do fabricante.
- Para Cronobacter:
- Streak uma ansa 3 mm (10 l) da mídia enriquecimento secundário em duas placas de meios de cultura cromogénicas como sakazakii R & F Enterobacter (Cronobacter) médio chapeamento cromogênico, e / ou chromID Sakazakii Agar. Incubar as placas a 35 ° C durante 22-24 horas.
- Após a incubação, examinar as placas para a presença de colônias Cronobacter típicas (azul-preto ao azul-cinza). Selecione 5 colônias Cronobacter presuntivos e subcultura-los para sakazakii R & F Enterobacter (Cronobacter) médio chapeamento cromogênico, chromID Sakazakii Agar, ou TSA até culturas puras de isolados / colónias individuais são obtidos.
NOTA: Se não há colónias isoladas pode ser obtido após vários passos de sub-cultura, considere a amostra como negativa e comunicar como um falso positivo para o sistema de detecção com base em PCR. - Selecione uma colônia pura e identificar Cronobacter presuntivo usando commer bioquímicatestes oficiais, como o cartão de identificação VITEK 2 ou API 20E sistema de identificação bioquímica, seguindo as instruções do fabricante.
- Para L. monocytogenes:
- Streak uma ansa 3 mm (10 l) da mídia enriquecimento primário em duas placas de agar Brilliance Listeria (BLA). Incubar as placas a 36 ± 1 ° C durante 22-26 horas.
- Após a incubação, as placas para analisar a presença de L. presuntivo monocytogenes (azul esverdeado) colônias. Selecione 5 presuntivo L. monocytogenes colônias e subcultura-los em BLA até a obtenção de culturas puras de isolados / colónias individuais. Re-incubar as placas negativas a 36 ± 1 ° C para um adicional de 22 - 26 horas.
- Selecione uma colônia pura e identificar presuntivo L. monocytogenes por meio de testes bioquímicos comerciais, como o cartão de identificação VITEK 2 ou API Listeria sistema de identificação bioquímica, seguindo i do fabricantenstructions.
- Patogênicas presumíveis isolados de insetos deve ser confirmado e serotipados em um laboratório de referência.
Resultados
Este protocolo foi calibrado sobre um primeiro conjunto de criadas em laboratório de moscas domésticas que foram experimentalmente alimentados durante 24 h com alimento líquido mosca (2% de leite em pó) contendo diluições em série (10 fevereiro - 10 agosto CFU / ml) de C. sakazakii, S. enterica, L. monocytogenes, ou C. jejuni (n = 21 para cada agente patogénico bacteriano). Meios de enriquecimento, assim como tempos de incubação e as temperaturas foram ajustados para cada fungo de origem alimentar até que o sistema baseado em PCR foi capaz de detectar os níveis mais baixos de bactérias (2 10 CFU / ml) a partir da superfície do corpo e o tubo digestivo de um único experimentalmente alimentados voar. Usando os meios de comunicação de enriquecimento e condições descritas na seção de protocolo, o sistema baseia-PCR detectou C. sakazakii, S. enterica, e L. monocytogenes a partir da superfície do corpo de 100% de moscas alimentadas com inóculos bacterianos> 10 3 CFU / mL (Figura 1A). Quando as moscas foram alimentados com 102 UFC / ml, a percentagem de detecção de C. sakazakii, S. enterica, e L. monocytogenes a partir da sua superfície corporal foi de 100%, 66%, e 33%, respectivamente (Figura 1A). O sistema baseado em PCR também detectada nestas três patogênicas do canal alimentar de moscas alimentadas com todas as concentrações bacterianas em percentagens ≥33% (Figura 1B). No entanto, a detecção de C. jejuni só foi alcançado quando as moscas foram criadas em laboratório experimental alimentado com alimentos contendo o líquido mais elevado inoculo bacteriano (10 8 UFC / ml). Assim, C. jejuni foi excluído do grupo de agentes patogénicos de origem alimentar que pode ser testado devido à sujidade moscas sinantrópicas indivíduo usando este sistema de detecção com base em PCR.
Com este protocolo padronizado, fomos capazes de determinar a prevalência de Cronobacter spp., S. enterica, e L. monocytogenes da superfície e / ou th corpoe canal alimentar de 100 moscas silvestres que estavam individualmente e de forma asséptica capturados na área de lixo de dez restaurantes urbanos localizados na área metropolitana de Washington, DC 5 Acumulados moscas filth eram representativas de pelo menos seis espécies, incluindo M. domestica (47%), Lucilia cuprina (33%), L. sericata (14%), Cochliomyia macellaria (2%), Sarcophaga haemorrhoidalis (2%), e Ophyra leucostoma (1%). Uma mosca foi identificado apenas a nível de família (Anthomyiidae; 1%). O protocolo de superfície-a desinfecção era eficaz em evitar a contaminação cruzada entre as partes do corpo da mosca porque nenhum crescimento bacteriano foi observado em placas de TSA para a água do último enxaguamento de desinfecção de cada mosca indivíduo. Assim, poderia ser feita uma distinção entre bactérias de origem alimentar presentes nas partes do corpo de cada mosca.
Sem falsos positivos foram detectados a partir de amostras da superfície do corpo e o canal alimentar demoscas individuais quando se utiliza este sistema comercial com base em PCR para a detecção de S. entérica e L. monocytogenes, ea confirmação de patógenos viáveis em placas de agar estava de acordo com os resultados PCR-positivos. No entanto, não foi possível isolar culturas puras de Cronobacter spp. a partir de todas as amostras positivas para a PCR. Assim, a detecção da bactéria por PCR baseada em sistema mostrou falsos positivos a partir da superfície do corpo (50%; 18/09) e do canal alimentar (48%; 16/33) de solteiro moscas selvagens capturados. Amostras de PCR-negativo aleatoriamente selecionados que foram semeadas em meios específicos, confirmou a ausência de agentes patogénicos de origem alimentar. Portanto, não há falsos negativos foram detectados a partir de qualquer das amostras quando se utiliza este sistema baseado em PCR para detectar comercial Cronobacter spp., S. enterica, ou L. monocytogenes.
Apenas as amostras positivas para a PCR, onde o patógeno foi isolado e confirmado foram considerados positivose incluídas para análise estatística. A presença global de agentes patogénicos de origem alimentar no canal alimentar de selvagens capturados moscas filth foi significativamente maior do que na superfície corporal (χ 2 = 6,8772, df = 1, p = 0,0087). 22% dos canais alimentares e 8% das superfícies corporais de moscas selvagens recolhidos foram positivos para pelo menos um dos três agentes patogénicos de origem alimentar (Figura 2). Em geral, a prevalência de Cronobacter spp. em ambos as superfícies do corpo ou canais alimentares de moscas coletadas foi estatisticamente superior (19%; teste exato de Fisher, p = 0,0165) do que a prevalência de S. entérica (7%) e L. monocytogenes (4%). No entanto, não foram observadas diferenças estatísticas ao realizar comparações de pares entre as partes do corpo das moscas para cada patógeno bacteriano (Figura 3; teste exato de Fisher p = 0,1464, p = 0,1184 e p = 0,6212 para Cronobacterspp., S. enterica, e L. monocytogenes, respectivamente). Nenhuma das moscas foram positivos para todos os três agentes patogénicos avaliadas. No entanto, três das moscas (dois L. cuprina e um L. sericata) realizada Salmonella spp. e L. monocytogenes na superfície ou no canal alimentar.
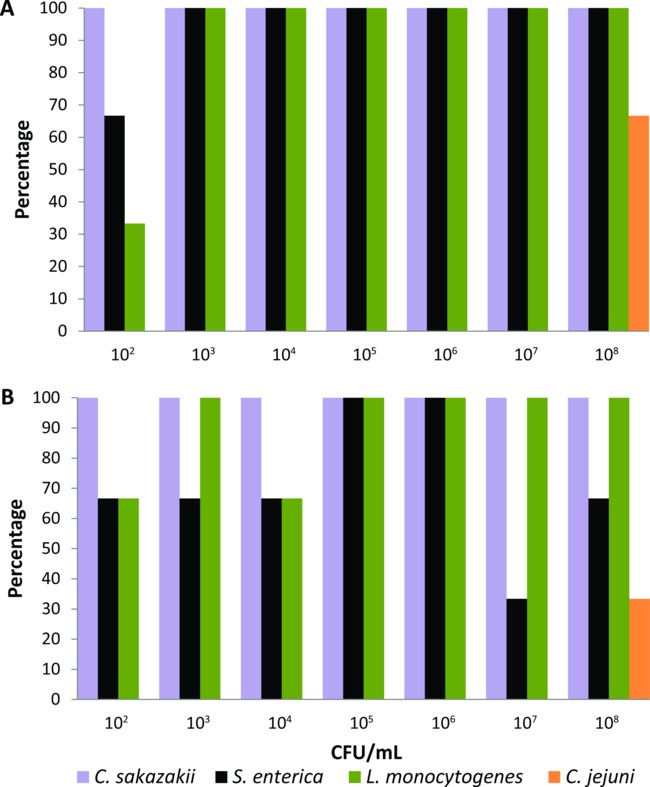
Figura 1. Níveis de detecção de sakazakii Cronobacter, Salmonella enterica, Listeria monocytogenes e Campylobacter jejuni de (A) a superfície do corpo e (B) o canal alimentar de individuais criados em laboratório moscas alimentados com ração contendo líquidos diferentes inóculos bacteriana (n = 21 para cada agente patogénico bacteriano, n = 3 por cada concentração bacteriana).

Figura 2. Percentagem de superfícies do corpo e canais alimentares de moscas individuais positivos para qualquer um dos agentes patogénicos alimentares alvo.
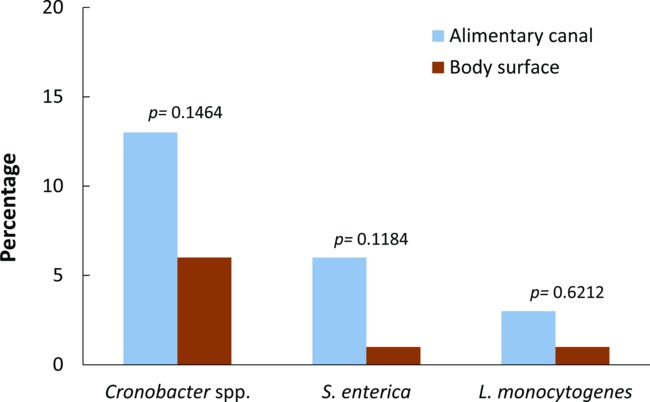
Figura 3. A prevalência de Cronobacter spp., Salmonella enterica, Listeria monocytogenes e da superfície do corpo e o canal alimentar de moscas sinantrópicas selvagens capturados. Os valores de p relatados são a partir de comparações de pares entre a superfície do corpo e do canal alimentar para cada patógeno bacteriano (teste exato de Fisher, p <0,05 indica significância estatística). Copyright © Sociedade Americana de Microbiologia, Journal of Applied and Environmental Microbiology 78 (22): 7891-902, 2012. doi: 10,1128 / AEM.02195-12.
Discussão
Estudos anteriores que detectados patogênicas de insetos selvagens têm utilizado uma grande variedade de protocolos que podem não incluir as informações necessárias para avaliar com precisão o risco alimentar da presença de uma única mosca em alimentos ou em ambientes relacionados com os alimentos 13,15, 23,24. Aqui, demonstramos que a utilização deste protocolo padronizado, é possível detectar e isolar Cronobacter spp., S. enterica, e L. monocytogenes a partir da superfície do corpo e do canal alimentar de moscas individuais capturados na natureza. Dado que os insectos podem levar baixos números de origem alimentar o patógeno alvo e um número elevado de outro microbiota 25,26, este protocolo exige que o enriquecimento principal (e, por vezes, secundário) das amostras em meios de cultura específicos para aumentar a sensibilidade de detecção do agente patogénico alvo de origem alimentar . Os resultados do sistema de detecção à base de PCR foram obtidos dentro de aproximadamente 30 horas (para a detecção de Cronobacter spp. e S. enterica) e 48 horas (para a detecção de Listeria monocytogenes) depois de inicialmente processamento das amostras. Assim, este protocolo é confiável, bem como rápido e sensível o suficiente para rastrear uma única mosca para a presença de agentes patogénicos de origem alimentar.
A confirmação dos resultados de PCR-positivas e isolamento de bactérias viáveis é parte do procedimento de operação padrão de muitos laboratórios. Além disso, para fins epidemiológicos, culturas bacterianas puras de amostras de PCR-positivos são necessários para confirmar ainda mais e sorotipo do patógeno de origem alimentar usando bioquímicas, imunológicas, ou métodos genéticos. Embora não foram observados falsos positivos quando detectar S. entérica e L. monocytogenes de partes do corpo de solteiro moscas silvestres capturados, utilizando este protocolo, encontramos até uma taxa de 50% de falsos positivos para Cronobacter spp. Isto sugere que o sistema de detecção com base em PCR para a Cronobact géneroer podem apresentar reações cruzadas com outros Enterobacteriaceae presente entre a microbiota altamente complexa realizada por moscas. Assim, o isolamento e purificação de colónias puras do Cronobacter género de amostras positivas para a PCR requer chapeamento mais selectivo do que os outros agentes patogénicos avaliadas.
Este protocolo foi essencialmente normalizado para rastrear moscas selvagens apanhados-individuais quanto à presença de Cronobacter spp., S. enterica, e L. monocytogenes, utilizando um sistema de detecção baseado em PCR comercial. No entanto, este protocolo foi também facilmente adaptado para rastrear partes do corpo de moscas individuais quanto à presença de outros agentes patogénicos de origem alimentar, tais como E. coli entero-O157: H7 (usando a E. coli O157: H7 MP kit de ensaio padrão ou a E. coli O157: H7 kit de ensaio em tempo real) e o shiga-toxigénica E. coli (STEC) grupo (usando o tempo real STEC suite), sensibilidades obtenção de> 80% (despublicardados ed). Além disso, este protocolo pode, potencialmente, ser adaptado para detectar agentes patogénicos alimentares de outros insetos que são vetores de doenças (baratas e formigas) conhecidas, mas mais pesquisas nesta área é necessário.
Investigações doença foco de origem alimentar são muito dinâmicas e compreendem um processo de várias etapas que podem variar de acordo com a situação específica eo ambiente local sendo investigada 12,27. Estas investigações são importantes porque fornecem proteção imediatos para a saúde pública, evitando doenças futuras. Além disso, estas investigações podem elucidar novos mecanismos pelos quais os microrganismos de origem alimentar são distribuídos, e levantar questões importantes que levam a novas áreas de investigação 28. Técnicas de investigação, bem como protocolos padronizados, rápidos e sensíveis são necessários para a detecção de patógenos alimentares dos insetos individuais. Este protocolo padronizado abre a oportunidade de coletar assepticamente insetos como moscas, which pode vetor da bactéria patogénica de origem alimentar, como parte de um programa de amostragem ambiental. A informação epidemiológica que pode ser adquirida a partir desta seriam de uso na construção de uma imagem precisa dos mecanismos de transmissão de agentes patogénicos de origem alimentar por insetos (ou seja, a duração do tempo de exposição: uma mosca pousando contra moscas desembarque, defecar, e regurgitando).
Finalmente, embora o sistema de detecção com base em PCR comercial descrito aqui é prático usar e simplifica a amplificação por PCR e a visualização de um amplicão de nível género, não é de modo algum o único sistema adequado. O lisado proveniente de amostras enriquecidas poderiam ser utilizadas em alternativa para rastrear a presença de agentes patogénicos de origem alimentar, utilizando pares de iniciadores específicos de espécie publicamente disponíveis. No entanto, a sensibilidade de detecção deve ser demonstrado antes da sua utilização.
Divulgações
O uso de instrumentação especificada não é um endosso da Food and Drug Administration dos EUA. Os autores certificam que não há conflito de interesses com nenhuma organização financeira em relação ao material discutido neste artigo.
Agradecimentos
Agradecimentos a Ben D. Tall, Yi Chen e Thomas Hammak da Food and Drug Administration (FDA) dos EUA, Centro de Segurança Alimentar e Nutrição Aplicada (CFSAN) pela revisão crítica do manuscrito. Os autores também agradecem a Hannah Lee (programa de estágio de pesquisa, Joint Institute for Food Safety and Applied Nutrition (JIFSAN), University of Maryland) pela assistência laboratorial e David Weingaertner (FDA, CFSAN) por preparar a figura da visão geral esquemática mostrada no vídeo.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Ágar sulfito de bismuto (BS) | Fisher Scientific | R452402 | *Vários fornecedores. |
| Caldo de infusão cérebro-coração (BHI) | Becton, Dickson and Company | 299070 | *Pré-aquecido a 37ºC. Vários fornecedores. |
| Ágar Brilliance Listeria (BLA) | Fisher Scientific | CM1080B | *Vários fornecedores. |
| Água peptonada tamponada (BPW) | Becton, Dickson and Company | 212367 | *Pré-aquecida a 37° C ou 42° C. Vários fornecedores. |
| Ágar Cronobacter Brilliance (formulação Druggan-Forsythe-Iversen / DFI) | Fisher Scientific | CM1055B | * Vários fornecedores. |
| chromID Sakazakii Agar | bioMé rieux | 43741 | *Ligue para informações: 800.682.2666 |
| R & F Enterobacter sakazakii (Cronobacter) Meio de Plaqueamento Cromogênico | R & F Laboratórios | Vários | *Ligue para informações: +1.630.969.530 |
| R & F Enterobacter sakazakiii Caldo de enriquecimento e suplemento | R & F Laboratories | Vários | *Chamada para informações: +1.630.969.530 |
| Ágar Hektoen entérico (HE) | Fisher Scientific | OXCM0419B | *Vários fornecedores. |
| 24 Caldo de enriquecimento de Listeria (24LEB) | Oxóide | CM1107 | *Preparado na hora à temperatura ambiente. Vários fornecedores. |
| Suplemento de enriquecimento seletivo de Listeria | Oxoid | SR0243 | *Vários fornecedores. |
| Novobiocina | Fisher Scientific | OXSR0181E | *Vários fornecedores. Armazene a 2-8 > C |
| Cloridrato de vancomicina | hidrato Sigma Aldrich | 861987 | Armazenar em 2-8 ° C |
| Cefsulodin sodium salt hydrate | Sigma Aldrich | C8145 | Store at 2-8 & C |
| Rappaport-Vassiliadis (RV) médio | Fisher Scientific | CM0669B | *Vários fornecedores. |
| Caldo de tetrationato (TT) | Becton, Dickson and Company | 249120 | *Vários fornecedores. |
| Ágar soja tripticase (TSA) | Becton, Dickson and Company | 236930 | *Vários fornecedores. |
| Xilose lisina desoxicolato (XLD) ágar | Becton, Dickson and Company | 221284 | *Vários fornecedores. |
| API Sistema de identificação bioquímica | bioMé rieux | Vários | *Ligue para informações: +1.800.682.2666 |
| VITEK 2: Product Safety | bioMé rieux | Vários | *Ligue para informações: +1.800.682.2667 |
| BAX System Q7 | DuPont | ||
| BAX E. sakazakii Kit de ensaio padrão | DuPont | D11801836 | |
| BAX L. monocytogenes 24E kit de ensaio | DuPont | D13608125 | |
| BAX Salmonella 2 Kit de ensaio padrão | DuPont | D14368501 | |
| Ferramenta de nivelamento | DuPont | ||
| Ferramenta de decapagem | DuPont | D11134095 | |
| Suporte para tubos de PCR Pinça | DuPont | D12701663 | |
| Featherweight, ponta larga | BioQuip | 4750 | Esterilize antes de usar. Vários fornecedores. |
| Pinça de ponta fina e ponta reta | BioQuip | 4731 | Esterilize antes de usar. Vários fornecedores. |
| Zircônia/esferas de sílica, 0,5 mm | Bio Spec Products, Inc. | 11079105z | Vários fornecedores. |
| Placas de Petri - 60X15mm | Fisher Scientific | 08-772B | Vários fornecedores. |
| Alças de inoculação descartáveis, 10µ L | Fisher Scientific | 22-363-606 | Vários fornecedores. |
| Espalhadores de células em forma de L | Fisher Scientific | 14-665-230 | Vários fornecedores. |
| Tubos de microcentrífuga, 2 ml | Fisher Scientific | Various | Esterilize antes de usar quando necessário. Tampa segura é preferida. Vários fornecedores. |
| Tubos de cluster | Fisher Scientific | 05-500-13 | |
| Tampas de tubos de cluster | Fisher Scientific | 05-500-23 | |
| Hipoclorito de sódio (alvejante à base de cloro líquido) | *Diluir a 0,05% com água. Vários fornecedores. | ||
| deionizada estéril | Vários fornecedores. | ||
| destilada estéril | Vários fornecedores. | ||
| Álcool etílico 190 proof | *Diluir a 70% com água quando necessário. Vários fornecedores. | ||
| Disruptor de células geniais, 120V - para microtubos de 1,5 ml e 2,0 ml | Scientific Industries, Inc. | SI-D238 | Vários fornecedores. |
| Bloco | Vários fornecedores. | ||
| Bloco | Vários fornecedores. | ||
| Banho-maria | Vários fornecedores. | ||
| Microscópio | Vários fornecedores. | ||
| Centrífuga | Vários fornecedores. | ||
| Incubadora | Vários fornecedores. |
Referências
- Voeller, J. G. Wiley Handbook of Science and Technology for Homeland Security. , Wiley Inc. 1-16 (2008).
- Olsen, A. R., Gecan, J. S., Ziobro, G. C., Bryce, J. R. Regulatory action criteria for filth and other extraneous materials V. Strategy for evaluating hazardous and nonhazardous filth. Regulatory Toxicology and Pharmacology. 33 (3), 363-392 (2001).
- Hald, B., Skovgård, H., Pedersen, K., Bunkenborg, H. Influxed insects as vectors for Campylobacter jejuni and Campylobacter coli in Danish broiler houses. Poultry Science. 87 (7), 1428-1434 (2008).
- Kobayashi, M., et al. Houseflies: Not simple mechanical vectors of enterohemorrhagic Escherichia coli O157:H7. American Journal of Tropical Medicine and Hygiene. 61 (4), 625-629 (1999).
- Pava-Ripoll, M., Pearson, R. E. G., Miller, A. K., Ziobro, G. C. Prevalence and relative risk of Cronobacter spp., Salmonella spp., and Listeria monocytogenes associated with the body surfaces and guts of individual filth flies. Applied and Environmental Microbiology. 78 (22), 7891-7902 (2012).
- Hewitt, C. G. Houseflies and how they spread disease. , Cambridge University Press. (1912).
- Rochon, K., Lysyk, T. J., Selinger, L. B. Retention of Escherichia coli by house fly and stable fly (Diptera:Muscidae) during pupal metamorphosis and eclosion. Journal of Medical Entomology. 42 (3), 397-403 (2005).
- Greenberg, B., Kowalski, J. A., Klowden, M. J. Factors affecting the transmission of Salmonella by flies: natural resistance to colonization and bacterial interference. Infection and Immunity. 2 (6), 800-809 (1970).
- Mramba, F., Broce, A. B., Zurek, L. Vector competence of stable flies, Stomoxys calcitrans L. (Diptera:Muscidae), for Enterobacter sakazakii. Journal of Vector Ecology. 32 (1), 134-139 (2007).
- Ekdahl, K., Normann, B., Andersson, Y. Could flies explain the elusive epidemiology of campylobacteriosis. Bmc Infectious Diseases. 5 (11), 11(2005).
- Nayduch, D., Noblet, G. P., Stutzenberger, F. J. Vector potential of houseflies for the bacterium Aeromonas caviae. Medical and Veterinary Entomology. 16 (2), 193-198 (2002).
- Multistate and Nationwide Foodborne Outbreak Investigations: A Step-by-Step Guide. , CDC. Atlanta, GA. Available from: http://www.cdc.gov/foodsafety/outbreaks/investigating-outbreaks/investigations/index.html (2013).
- Sievert, K., Messler, S., Klimpel, S., Feffer, K. Comprehensive study on the occurrence and distribution of pathogenic microorganisms carried by synanthropic flies caught at different rural locations in Germany. Journal of Medical Entomology. 46 (5), 1164-1166 (2009).
- Hernández-Escareño, J. J., et al. Presence of Enterobacteriaceae, Listeria spp., Vibrio spp. and Staphylococcus spp. in house fly (Musca domestica L.), collected and macerated from different sites in contact with a few animals species. Revista Cientifica-Facultad De Ciencias Veterinarias. 22 (2), 128-134 (2012).
- Mian, L. S., Maag, H., Tacal, J. V. Isolation of Salmonella from muscoid flies at commercial animal establishments in San Bernardino county, California. Journal of Vector Ecology. 27 (1), 82-85 (2002).
- Olsen, A. R., Hammack, T. S. Isolation of Salmonella spp. from the housefly, Musca domestica L., and the dump fly, Hydrotaea aenescens (Wiedemann) (Diptera:Muscidae), at caged-layer houses. Journal of Food Protection. 63 (7), 958-960 (2000).
- Holt, P. S., Geden, C. J., Moore, R. W., Gast, R. K. Isolation of Salmonella enterica serovar Enteritidis from houseflies (Musca domestica) found in rooms containing Salmonella serovar Enteritidis-challenged hens. Applied and Environmental Microbiology. 73 (19), 6030-6035 (2007).
- Mramba, F., Broce, A., Zurek, L. Isolation of Enterobacter sakazakii from stable flies, Stomoxys calcitrans L. (Diptera:Muscidae). Journal of Food Protection. 69 (3), 671-673 (2006).
- Koyuncu, S., Andersson, M. G., Haggblom, P. Accuracy and Sensitivity of Commercial PCR-Based Methods for Detection of Salmonella enterica in Feed. Applied and Environmental Microbiology. 76 (9), 2815-2822 (2010).
- Gagné, R. Insect and mite pests in food, an illustrated. 1, U.S. Department of Agriculture and U.S. Department of Health and Human Service. 269-296 (1991).
- Greenberg, B. Flies and disease, Vol I. Ecology, classification and biotic associations. , Princeton University Press. (1971).
- Wallace, H. A., Jacobson, A., Hammack, T. S. Chapter 5 Salmonella. Bacteriological Analytical Manual. , Available from: http://www.fda.gov/downloads/Food/FoodScienceResearch/UCM244774.pdf (2007).
- Barro, N., Aly, S., Tidiane, O. C. A., Sababenedjo, T. A. Carriage of bacteria by proboscises, legs, and feces of two species of flies in street food vending sites in Ouagadougou, Burkina Faso. Journal of Food Protection. 69 (8), 2007-2010 (2006).
- Ugbogu, O. C., Nwachukwu, N. C., Ogbuagu, U. N. Isolation of Salmonella and Shigella species from house flies (Musca domestica L.) in Uturu, Nigeria. African Journal of Biotechnology. 5 (11), 1090-1091 (2006).
- Brownlie, J. C., Johnson, K. N. Symbiont-mediated protection in insect hosts. Trends in Microbiology. 17 (8), 348-354 (2009).
- Feldhaar, H. Bacterial symbionts as mediators of ecologically important traits of insect hosts. Ecological Entomology. 36 (5), 533-543 (2011).
- Foodborne disease outbreaks: Guidelines for investigation and control. , World Health Organization. Available from: http://www.who.int/foodsafety/publications/foodborne_disease/outbreak_guidelines.pdf (2008).
- Wright, A. P., Gould, L. H., Mahon, B., Sotir, M. J., Tauxe, R. V. Overview of the Impact of Epidemic-Assistance Investigations of Foodborne and Other Enteric Disease Outbreaks, 1946-2005. American Journal of Epidemiology. 174, S23-S35 (2011).
Reimpressões e permissões
Explorar mais artigos
Detecção de Patógenos Transmitidos por AlimentosTriagem de Patógenos BacterianosAnálise Individual de MoscasDetecção Baseada em PCRAmostragem da Superfície CorporalExtração do Canal AlimentarEnriquecimento em Caldo NutrientePlaqueamento em Meios SeletivosIsolamento de Colônias PurasVigilância de Moscas Silvestres
