Neste protocolo, descrevemos um método para coleta simultânea de tecido cerebral fetal, bem como soro não hemolisado de alta qualidade do mesmo embrião de camundongo. Utilizamos essa técnica para interrogar como a exposição dietética materna afeta os perfis de macronutrientes e o neurodesenvolvimento fetal em camundongos heterozigotos para Nf1 (Neurofibromatose Tipo 1).
Artigo de método
Coleta Simultânea de Cérebro Murino Fetal e Soro para Avaliar os Efeitos da Dieta Materna na Nutrição e Neurodesenvolvimento na Neurofibromatose Tipo 1
Neste artigo
Resumo
Resumo
Foi demonstrado que a obesidade induzida pela dieta materna altera o neurodesenvolvimento na prole, o que pode levar à redução da capacidade cognitiva, hiperatividade e prejuízos no comportamento social. Pacientes com o distúrbio genético clinicamente heterogêneo Neurofibromatose Tipo 1 (NF1) podem apresentar déficits semelhantes, mas atualmente não está claro se fatores ambientais, como dieta materna, influenciam o desenvolvimento desses fenótipos e, em caso afirmativo, o mecanismo pelo qual tal efeito ocorreria. Para permitir a avaliação de como a exposição à dieta obesogênica materna afeta os fatores sistêmicos relevantes para o neurodesenvolvimento na NF1, desenvolvemos um método para coletar simultaneamente soro não hemolisado e cérebros inteiros ou microdissecados regionalmente de descendentes fetais de mães murinas alimentadas com uma dieta controle versus uma dieta rica em gordura e sacarose. Os cérebros foram processados para criosseccionamento ou congelados rapidamente para uso em subsequente isolamento de RNA ou proteína; A qualidade do tecido coletado foi verificada por imunomarcação. A qualidade do soro foi verificada por meio da análise do perfil de macronutrientes. Usando esta técnica, identificamos que a dieta obesogênica materna aumenta o colesterol sérico fetal de forma semelhante entre filhotes heterozigotos WT e Nf1.
Introdução
A neurofibromatose tipo 1 (NF1) é considerada uma RASopatia, um grupo de distúrbios caracterizados por mutações genéticas germinativas que resultam na ativação da via de sinalização RAS/MAPK (vírus do sarcoma RAt/proteína quinase ativada por mitógeno). Pacientes com a AF1 RASopatia correm o risco de desenvolver muitas manifestações diferentes, incluindo tumores benignos e malignos do sistema nervoso central (glioma da via óptica 1,2, glioma de alto grau 3,4) e periférico (neurofibroma plexiforme 5,6, tumor maligno da bainha do nervo periférico 7,8), bem como displasias ósseas9 e anormalidades pigmentares da pele10 (sardas axilares, máculas café-com-leite). O efeito desse distúrbio na cognição e no neurodesenvolvimento está sendo cada vez mais reconhecido, com pacientes com NF1 apresentando uma incidência aumentada de déficits de aprendizagem, hiperatividade e transtorno do espectro do autismo 11,12,13. No entanto, há uma heterogeneidade significativa no desenvolvimento desses fenótipos entre os pacientes 13,14,15,16,17, e não está claro por que alguns pacientes apresentam deficiências cognitivas significativas enquanto outros não são afetados. A obesidade induzida pela dieta materna demonstrou afetar de forma semelhante o aprendizado e o comportamento na população em geral 18,19,20,21,22,23,24,25,26,27,28 , sugerindo que as exposições dietéticas maternas diferenciais na NF1 podem ser uma fonte dessa heterogeneidade clínica. Em particular, filhos de mães obesas apresentam um risco aumentado de desenvolver hiperatividade 18,19,20,23,25,26, autismo 19,24,27, déficits de funções executivas21,23 e têm escores de QI mais baixos em escala total22,28. No entanto, os pacientes com NF1 apresentam fenótipos metabólicos alterados em comparação com a população em geral, incluindo diminuição da incidência de obesidade e diabetes 29,30,31, não ficando claro se eles responderiam de forma semelhante aos estímulos dietéticos.
Para abordar essas questões, desejamos determinar se as mudanças induzidas pela dieta obesogênica no perfil de macronutrientes na prole fetal com Nf1 contribuíram para as mudanças no neurodesenvolvimento. Anteriormente, coletamos tecido inteiro e microdissecado regionalmente de alta qualidade apropriado para aplicações de neurodesenvolvimento do cérebro fetal32. No entanto, a coleta de sangue fetal é desafiadora devido ao pequeno tamanho corporal e baixo volume sanguíneo33. A coleta de sangue por meio de drenagem auxiliada por gravidade após a decapitação levou a baixos volumes de coleta e hemólise significativa em nossas amostras, o que pode afetar a interpretação da aplicação a jusante. A coleta por aspiração do coração fetal ou dos vasos torácicos, como relatado anteriormente33, foi tecnicamente desafiadora e também resultou em hemólise frequente. Assim, desenvolvemos um método para coleta de soro fetal, que utiliza tubos capilares especializados para permitir uma coleta de maior volume sem estresse de cisalhamento significativo.
Aqui, apresentamos este método para coletar simultaneamente cérebros embrionários e soro fetal de filhotes heterozigotos Nf1 expostos a uma dieta rica em gordura e açúcar versus uma dieta controle no útero (Figura 1 e Tabela Suplementar S1). Os cérebros foram crioincorporados para análise subsequente por imunofluorescência ou microdissecados regionalmente e congelados para uso subsequente em aplicações de biologia molecular. Foi obtido soro de alta qualidade, adequado para aplicações a jusante, como perfil de macronutrientes. Utilizando este método, identificamos que a exposição dietética materna com alto teor de gordura e sacarose leva à elevação dos níveis séricos de colesterol em filhotes heterozigotos WT e Nf1.
Protocolo
Todos os procedimentos em animais neste estudo seguiram as diretrizes do NIH e foram aprovados pelo Comitê Institucional de Cuidados e Uso de Animais da Universidade de Washington em St. Louis. Os animais foram alojados com ciclagem padrão de 12 h claro:escuro e livre acesso a comida e água.
1. Dieta materna
- Coloque os camundongos fêmeas em ração de controle (CD) ou dieta obesogênica (Ob) às 4 semanas de idade.
- Com 8-12 semanas de idade, estabeleça o acasalamento cronometrado monitorando o tampão mucoso da barragem no início da manhã para determinar a idade correta de coleta. Para verificar a obesidade induzida por dieta, pesar as fêmeas no acasalamento.
NOTA: Um intervalo de 8 a 12 semanas foi usado para a configuração inicial do acasalamento para garantir que as fêmeas obesogênicas alimentadas com dieta estivessem acima do peso em comparação com suas contrapartes, o que nem sempre ocorria às 8 semanas de idade. O dia do plug é considerado dia embrionário 1 (E1), e todos os animais utilizados neste estudo foram coletados em E19. O ponto de tempo fetal tardio foi escolhido devido a alterações no neurodesenvolvimento observadas anteriormente neste momento em animais obesogênicos expostos à dieta (dados não mostrados).
2. Remoção do feto da barragem
- Primeiro, certifique-se de que a mãe pareça grávida (forma e plenitude abdominal, palpação abdominal ou movimento fetal). Em caso de dúvida, pese a fêmea novamente para medir o ganho de peso.
NOTA: Camundongos prenhes tardios devem apresentar pelo menos 3-4 g de ganho de peso. Para aumentar a probabilidade de concepção no período de tempo desejado, a serragem suja (contendo urina e feromônio) da gaiola de um macho pode ser adicionada à gaiola da fêmea diariamente por 3 dias antes do acasalamento para induzir o estro34. - Eutanasiar a barragem colocando-a em uma câmara com papel toalha contendo 3 mL de isoflurano, tomando cuidado para evitar o contato direto entre a barragem e a toalha de papel embebida em anestésico. Depois que o animal estiver sedado, coloque-o sobre uma toalha de papel, segure-o pela cauda, coloque uma tesoura de dissecção no pescoço e, em seguida, force a tesoura para cima em direção à cabeça para realizar a luxação cervical. Como alternativa, realize a decapitação após a sedação com isoflurano.
NOTA: O soro pode ser coletado da barragem nesta etapa, usando uma metodologia semelhante à descrita abaixo, mas com tubos capilares maiores. Se isso for desejado, deve-se realizar decapitação em vez de luxação cervical. Deve-se tomar cuidado para garantir que o fenótipo de interesse não seja alterado pela administração de isoflurano imediatamente antes da eutanásia. - Colocar o lado ventral da barragem para cima num prato de 100 mm. Aperte a pele que cobre o abdômen e faça uma incisão na linha média com uma tesoura de dissecação. Faça incisões adicionais perpendiculares à incisão da linha média para criar retalhos de pele para expor o útero que contém os embriões.
- Puxe o útero para fora da cavidade abdominal. Usando uma tesoura, desconecte o útero da barragem. Coloque o saco embrionário intacto ("pérolas em um barbante") contendo os embriões em um prato com solução salina 1x tamponada com fosfato (PBS) estéril e fria. Coloque o prato de fetos no gelo.
NOTA: Como cada ninhada normalmente contém de 6 a 10 filhotes que serão colhidos para o cérebro e o soro, os fetos são mantidos no gelo para evitar a degradação do tecido. Colocar os filhotes no gelo também garante a eutanásia adequada dos filhotes, pois a eutanásia materna por si só nem sempre é suficiente. Se apenas a coleta de soro for desejada, a coleta em temperatura ambiente pode ser preferida.
3. Coleta de soro fetal
- Remova o feto do saco embrionário dissecando cuidadosamente com uma pinça # 5. Transfira o embrião para um prato usando uma pinça curva com 1x PBS fresco e frio estéril.
- Seque suavemente o animal em uma toalha de papel para remover o líquido amniótico residual e o PBS da amostra.
- Segure o animal pelo abdômen. Decapite parcialmente o animal com uma micro tesoura, fazendo uma incisão no pescoço ventral. Certifique-se de que os vasos sanguíneos estejam cortados, mas a pele que mantém a cabeça ainda esteja presa.
NOTA: A cabeça deve permanecer presa para que o sangue possa ser coletado do corpo e da cabeça simultaneamente. - Segure o corpo em um ângulo de 45° com a incisão voltada para baixo. Segure a minivette de 50 μL (tubo capilar) paralela ao local da incisão da barragem, onde o sangue forma uma gotícula. Deixe cuidadosamente o tubo capilar de 50 μL se encher de sangue.
NOTA: Tubo capilar x2 ou tubo capilar de 100 μL pode ser usado para coletar até ~75 μL de sangue. - Coloque a cabeça em um prato fresco de 60 mm contendo PBS 1x frio e estéril para posterior coleta de tecido (seção 4).
- Depois que o sangue estiver dentro do tubo capilar, pressione o êmbolo rapidamente em um tubo de 1,5 mL. Sacuda o tubo ou gire-o rapidamente para se certificar de que o sangue está no fundo do tubo.
- Repita para o restante da ninhada.
NOTA: Manter os filhotes no gelo e mover-se rapidamente entre eles é essencial para reduzir o risco de coagulação post-mortem que limitará o volume de coleta. - Coagular o sangue à temperatura ambiente durante 30 min.
- Centrifugar as amostras de sangue a 4 °C, 16.000 × g durante 20 min.
- Transfira o soro para tubos novos de 500 μL com uma pipeta de 200 μL, sem perturbar o sedimento de células sanguíneas no fundo do tubo.
NOTA: O soro deve ser cor de palha, sem detritos vermelhos. Cada feto deve produzir 15-30 μL de soro. - Conservar o soro recolhido a -80 °C.
4. Coleta de cérebro fetal
- Olhando através do microscópio de dissecação, segure o focinho usando uma pinça curva e use uma pinça # 5 para retirar cuidadosamente a pele da calota craniana, mantendo-a presa no focinho para facilitar a sustentação. Incline a pinça # 5 a 45 ° em relação ao crânio, perfure cuidadosamente a membrana transparente que é o crânio em desenvolvimento, desloque a pinça paralelamente ao crânio, insira-a embaixo da calota craniana e, em seguida, aperte e descasque para um lado. Depois que um lado for removido, segure o lado restante com uma pinça # 5 e descasque para o outro lado.
- Retire delicadamente o cérebro do crânio usando uma micro colher e transfira o cérebro para um prato fresco de 60 mm contendo 1x PBS frio.
NOTA: Neste ponto, cérebros inteiros podem ser fixados e incorporados para imunocoloração. Ver metodologia publicada anteriormente32. - Se o tecido precisar ser congelado para outras aplicações moleculares, subdisseque a área de interesse. O isolamento do tecido periventricular ao redor do lateral, terceiro e quarto ventrículos é descrito a seguir.
- Usando a pinça curva, segure o cérebro na junção do rombencéfalo e do prosencéfalo com a mão não dominante. Com a mão dominante, segure o bisturi com a lâmina paralela à superfície do cérebro. Pressione firmemente a região cortical média (Figura 1).
- Ainda segurando o rombencéfalo, faça uma segunda incisão na frente do rombencéfalo para separá-lo do prosencéfalo (Figura 1). Na seção mais anterior, procure dois pequenos espaços semicirculares localizados no plano horizontal, que são os ventrículos laterais. Use a pinça curva colocada no centro de cada ventrículo para manter o cérebro no lugar, disseque cuidadosamente o revestimento usando uma pinça # 5 e remova para um tubo de microcentrífuga de 1,5 mL limpo e fresco.
- Na seção do meio, procure um pequeno espaço linear na superfície ventral, que é o terceiro ventrículo. Usando uma pinça # 5, aperte cuidadosamente o revestimento em ambos os lados da superfície ventricular e, em seguida, remova-o para um tubo de microcentrífuga de 1,5 mL limpo e fresco.
- Na seção mais posterior, procure um pequeno espaço linear central dentro do rombencéfalo, que é o quarto ventrículo. Disseque o revestimento em ambos os lados usando uma pinça # 5 e, em seguida, remova para um tubo de microcentrífuga limpo de 1,5 mL.
NOTA: Se cortar o rombencéfalo não for um corte limpo, o tecido do quarto ventrículo pode ser obscurecido e / ou destruído. - Para as etapas 4.3.2-4.3.4, imediatamente após o tecido ter sido colocado em tubos de microcentrífuga, coloque os tubos rapidamente em um recipiente criogênico contendo nitrogênio líquido.
NOTA: Os tubos podem ser mantidos em nitrogênio líquido até que as amostras restantes tenham sido dissecadas. CUIDADO: O nitrogênio líquido pode causar queimaduras graves. Não cole as mãos diretamente no nitrogênio líquido e evite respingos. - Coloque o(s) tubo(s) congelado(s) em gelo seco e transfira o tecido congelado para um freezer a -80 °C até o uso.
Resultados
Para ilustrar a qualidade do tecido cerebral obtido por meio dessa técnica, mostramos amostras de cérebros fetais de camundongos Nestin-CFPnuc35, imunomarcados para GFAP por uma técnica relatada anteriormente32. As células Nestin+ são vistas revestindo o ventrículo lateral (Figura 2A), com filamentos GFAP+ estendendo-se da superfície. Não observamos diferenças entre a expressão de Nestin ou GFAP no ventrículo lateral de camundongos DC versus Ob-expostos em cepas heterozigóticas WT ou Nf1 (Figura 2A, B). Em seguida, avaliamos a qualidade do tecido microdissecado. Primeiro realizamos western blotting36 para a proteína de manutenção β-actina no tecido microdissecado isolado dos ventrículos laterais de DC versus camundongos obexpostos. Todas as amostras apresentaram forte expressão de β-actina (Figura 2C), como esperado. Em seguida, isolamos o RNA do tecido microdissecado de acordo com a metodologia relatada anteriormente32. O RNA isolado exibiu alta pureza (260/280 ≥ 2) e integridade (valores de RIN ≥ 9), indicativos de RNA não degradado de alta pureza (Figura 2D).
Em seguida, comparamos os diferentes métodos de isolamento sérico. Usando nosso método minivette, coletamos rotineiramente volumes maiores de soro não hemolisado, enquanto a drenagem por gravidade e a punção torácica resultaram em coleta de volume altamente variável e hemólise em muitas amostras (Figura 3A, B). Para ilustrar a qualidade do soro obtido por meio dessa técnica, medimos os níveis séricos totais de colesterol usando o reagente de colesterol total de acordo com as instruções do fabricante. Os níveis de colesterol fetal estavam dentro da faixa esperada para filhotes no final da gestação com base em estudos anteriores em fetos humanos37. Os níveis foram aumentados em camundongos expostos a Ob em comparação com expostos a CD para filhotes heterozigotos do tipo selvagem (Figura 3C, à esquerda) e heterozigotos Nf1 (Figura 3C, à direita). Observe que o painel direito mostra dados combinados de duas cepas heterozigóticas Nf1 diferentes com mutações germinativas identificadas pelo paciente (R681X, C383X) 32 , 38 , 39 como perfis semelhantes foram observados em ambas as cepas.
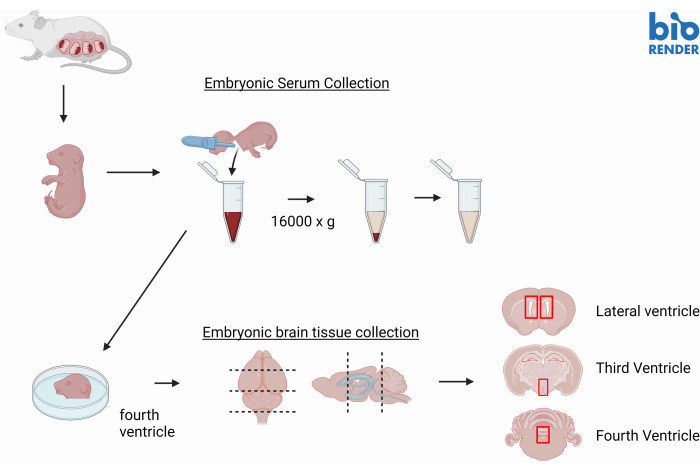
Figura 1: Resumo gráfico do fluxo de trabalho. Os filhotes são isolados primeiro de mães grávidas. O soro é então colhido dos filhotes. Por fim, cérebros inteiros são isolados de filhotes e, se desejado, microdissecados para regiões de interesse. Gráfico criado com BioRender.com. Clique aqui para ver uma versão maior desta figura.
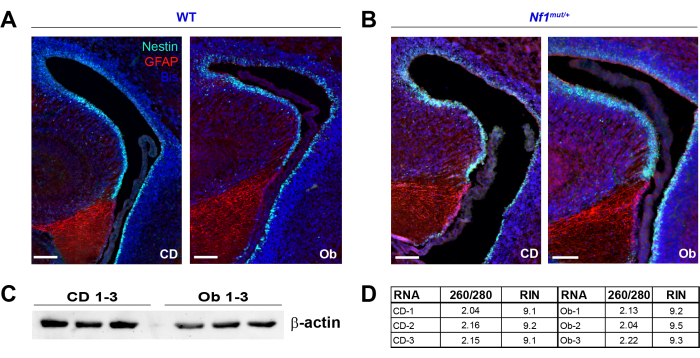
Figura 2: Resultados ilustrativos, tecido cerebral. (A) Cérebros criosseccionados de camundongos Nestin-CFPnuc , que expressam uma proteína fluorescente ciano localizada nuclearmente sob o controle do promotor Nestin, foram colhidos com este método e imunomarcados para GFAP (vermelho) de acordo com a metodologia relatada anteriormente32. As células nestin-positivas são visualizadas por meio da expressão endógena de Nestin-CFPnuc (verde). Os núcleos foram contracorados com bis-benzimida (azul). Não houve diferenças significativas entre os cérebros DC e WT obexpostos. Barra de escala = 100 μm. (B) Nestin-CFPnuc; Os filhotes de Nf1mut/+ foram avaliados de forma semelhante. A distribuição da GFAP e da Nestin-CFP mostrou-se semelhante à WT e não variou com as condições alimentares. Barra de escala = 100 μm. (C) A proteína foi isolada do tecido microdissecado do VE. O Western blotting foi realizado de acordo com a metodologia relatada anteriormente36 com 20 μg de proteína carregada por pista. Forte expressão de β-actina foi detectável em todas as amostras. (D) O RNA foi isolado do tecido microdissecado de acordo com a metodologia relatada anteriormente32. A qualidade do RNA foi avaliada por meio de razões 260/280 e valores de RIN. Todas as amostras apresentaram excelentes razões 260/280 (≥2) e valores de RIN (≥9), indicando bom isolamento de RNA não degradado. Abreviaturas: CFP = proteína fluorescente ciano; GFAP = proteína glial fibrilar ácida; WT = tipo selvagem; VE = ventrículo lateral; RIN = número de integridade do RNA. Clique aqui para ver uma versão maior desta figura.
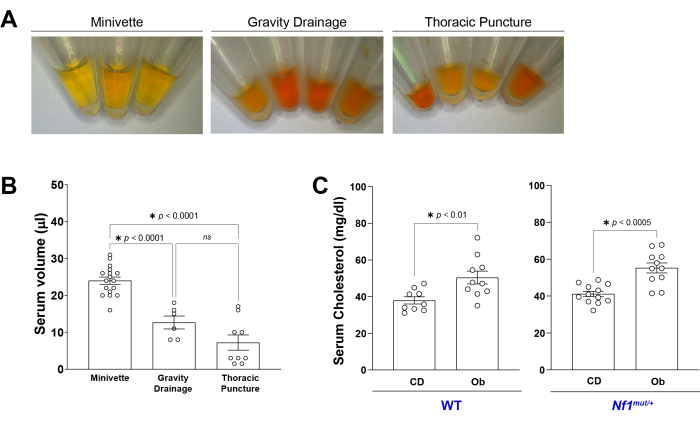
Figura 3: Resultados ilustrativos e soro. (A) O soro foi coletado de cada um dos métodos descritos. A coleta com o minivette permitiu a coleta rotineira de soro não hemolisado em comparação com a drenagem assistida por gravidade e punção torácica. (B) Os volumes típicos de coleta de soro são mostrados. A coleção Minivette permitiu uma coleta mais reprodutível de volumes maiores de soro. Significância estatística determinada por ANOVA one-way com comparações múltiplas. Barras de erro: MEV. (C) O colesterol sérico total foi medido a partir de DC vs WT obexposto (esquerda) e Nf1-heterozigoto (direita) soro fetal combinado; Os animais obexpostos apresentaram colesterol sérico mais elevado em ambos os genótipos. Significância estatística determinada pelo teste t. Barras de erro: SEM. Abreviações: WT = tipo selvagem; CD = dieta controle; Ob = dieta obesogênica. Clique aqui para ver uma versão maior desta figura.
Tabela Suplementar S1: Composições Dietéticas. A composição das dietas controle e obesogênica utilizadas neste manuscrito é mostrada. NOTA: Para uma dieta com baixo teor de gordura e sem sacarose que controla melhor os componentes dietéticos individuais em D12331, a dieta D12328 (researchdiets.com) pode ser preferida. Clique aqui para baixar este arquivo.
Discussão
Os métodos tradicionais de coleta de sangue de camundongos incluem sangramento retrobulbar, da veia da cauda, da veia safena, da veia facial e da veia jugular 40,41,42. Infelizmente, esses métodos não são ideais para coleta de sangue embrionário devido ao tamanho do animal e à vasculatura pequena e delicada. A coleta de sangue por drenagem auxiliada por gravidade após a decapitação levou a baixos volumes de coleta e hemólise significativa em nossas amostras. Protocolos anteriores relataram melhora dos volumes usando uma agulha modificada de 20 G para drenar o sangue dos vasos sanguíneos torácicos33; no entanto, achamos essa técnica tecnicamente desafiadora e observamos altas taxas de hemólise, tornando-a inadequada para muitas aplicações a jusante. Nosso método tem a vantagem de coleta via fluxo sanguíneo passivo, diminuindo o risco de hemólise por estresse puro induzido por aspiração. O êmbolo no tubo capilar também fornece uma maneira rápida e eficiente de fornecer sangue ao tubo de coleta, minimizando a exposição ao ar e limitando a fragmentação de coágulos sanguíneos. É importante ressaltar que o tecido cerebral microdissecado inteiro ou regionalmente pode ser posteriormente coletado do mesmo animal, reduzindo as necessidades totais de animais experimentais.
Este protocolo não é isento de ajustes para otimizar a qualidade e a eficiência da coleta. Para a coleta de soro, é crucial remover suavemente o fluido embrionário e o PBS extra do animal antes da coleta de sangue, pois o excesso de líquido pode tornar o animal escorregadio e aumentar a probabilidade de posicionamento ruim ou instável, afetando negativamente a qualidade da coleta de sangue. Além disso, o posicionamento do dedo enquanto segura o embrião é crítico, pois o sangue grudará em um dedo enluvado durante a coleta se o dedo estiver adjacente ao tubo capilar. Também é importante manter a abertura do tubo capilar adjacente, em vez de submersa, no sangue que flui; A coleta capilar será interrompida se o tubo estiver submerso. Finalmente, deve-se considerar cuidadosamente a aplicação a jusante para otimizar a coleta de soro. Por exemplo, a glicose se degrada ao longo do tempo em tubos não tratados à temperatura ambiente, portanto, a coleta em tubos contendo fluoreto de sódio ou EDTA pode ser necessária para quantificar com precisão os níveis de glicose43,44.
Para a coleta de tecido cerebral, a remoção cuidadosa da pele e do crânio transparente em ambos os lados da cabeça é fundamental para uma extração limpa. Se apenas um lado for dissecado, o cérebro pode grudar no crânio com a tentativa de remoção, resultando em rasgo e distorção do tecido. Para seccionar o cérebro, é importante fazer fatias únicas e limpas para separar o córtex anterior do médio e o córtex médio do rombencéfalo. Ter vários cortes pode interromper a integridade estrutural do tecido ou obscurecer seu ponto de referência para microdissecção subsequente. Finalmente, manter as amostras no gelo até a fixação ou congelamento instantâneo é crucial para evitar a degradação da amostra.
Embora prefiramos esse método devido à coleta rotineira de soro não hemolisado de maior volume, ele não é isento de desvantagens. Embora a hemólise seja reduzida em comparação com outras técnicas, esse método não elimina o risco. O tubo capilar também pode ficar entupido com um coágulo sanguíneo quando o sangue parar de fluir, por isso é importante trabalhar rapidamente após a decapitação para mitigar o risco de falha na coleta devido à coagulação. Manter as amostras no gelo, o que é feito para preservar a integridade da amostra neste protocolo, também pode afetar adversamente alguns fenótipos e pode não ser apropriado para todas as aplicações.
Em conclusão, esta metodologia pode ser usada para isolar simultaneamente cérebros séricos e microdissecados inteiros ou regionalmente do mesmo feto. Essa técnica pode ser utilizada para abordar como fatores sistêmicos, como uma mudança no perfil de macronutrientes induzida pela dieta materna, podem afetar o neurodesenvolvimento na NF1 ou outros distúrbios.
Divulgações
Os autores não têm conflitos de interesse.
Agradecimentos
N Brossier é apoiado pelo Programa Francis S. Collins Scholars em Pesquisa Clínica e Translacional de Neurofibromatose, financiado pelo Programa de Aceleração Terapêutica de Neurofibromatose (NTAP, Grant # 210112). Esta publicação foi apoiada em parte pelo financiamento do NTAP da Escola de Medicina da Universidade Johns Hopkins. Seu conteúdo é de responsabilidade exclusiva dos autores e não representa necessariamente as opiniões oficiais da Escola de Medicina da Universidade Johns Hopkins. Apoio adicional do Hospital Infantil de St. Louis (FDN-2022-1082 para NMB) e do Núcleo de Pesquisa em Diabetes da Universidade de Washington em St. Louis (NIH P30 DK020579). A microscopia foi realizada por meio do uso do Centro de Imagens Celulares da Universidade de Washington (WUCCI), apoiado pela Escola de Medicina da Universidade de Washington, pelo Instituto de Descoberta Infantil da Universidade de Washington e pelo Hospital Infantil de St. Louis (CDI-CORE-2015-505 e CDI-CORE-2019-813) e pela Fundação para o Hospital Barnes-Jewish (3770 e 4642). Os camundongos Nestin-CFPnuc35 foram generosamente fornecidos por Grigori Enikolopov (Renaissance School of Medicine, Stony Brook University, NY), e os camundongos Nf1 heterozigotos para uma mutação germinativa R681X ou C383X 32,38,39 foram generosamente fornecidos por David Gutmann (Washington University School of Medicine, St. Louis, MO). A Figura 1 foi criada com BioRender.com.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| #5/45 Fórceps | Dumont | 11251-35 Forma da | Ponta: Angular 45° |
| 4200 Tapestation | Agilent | G2991BA | Verifique a integridade e a qualidade do RNA, medição dos valores de RIN |
| Recipiente de nitrogênio líquido de bancada | Thermo Fisher | 2122 | Ou outro recipiente crio-seguro |
| Controle Chow | PicoLab | 5053 | Dietas de pesquisa D12328 (baixo teor de gordura, baixo teor de açúcar) também podem ser usadas. |
| Pinça Curvada | Cole Parmer | UX-10818-25 | Forma da ponta: curvada 90° |
| Cabo de lâmina de dissecação | Cole-Parmer Essentials | 10822-20 | SS Siegel-Type, lâminas #10 a #15 |
| Tesoura de Dissecção EMS SuperCut | Microscópio eletrônico sciences | 72996-01 | 5½ " (139,7 mm), anticorpo GFAP reto |
| Abcam | ab7260 | diluído 1:350. Bloco com soro a 10% contendo 0,3 M de glicina. | |
| Lâminas Cirúrgicas de Aço Carbono Glassvan, Tamanho 11 | As lâminas MYCO medical | 2001T-11 | #11 permitem corte reto e plano |
| Colher de laboratório Micro | Scilab | A2Z-VL001 | em aço inoxidável, autoclavável |
| Tesoura Micro | Rubis | 78180-1C3 | modelo 1C300 |
| Minivette POCT neutro | Sarstedt | 17.2111.050 | volume nominal: 50 µ L, sem preparação |
| Nanorop | Thermo Fisher | 13-400-519 | Medir a concentração de RNA, proporções 260/280 |
| Dieta obesogênica | Researchdiets.com | D12331 | com alto teor de gordura e sacarose |
| Thermo Fisher | TR13421 | Detecção colorimétrica | |
| β-anticorpo de actina | Sinalização celular | 8457 | Diluir 1:1.000. |
Referências
- Listernick, R., Darling, C., Greenwald, M., Strauss, L., Charrow, J. Optic pathway tumors in children: the effect of neurofibromatosis type 1 on clinical manifestations and natural history. J Pediatr. 127 (5), 718-722 (1995).
- Fisher, M. J., et al. Integrated molecular and clinical analysis of low-grade gliomas in children with neurofibromatosis type 1 (NF1). Acta Neuropathol. 141 (4), 605-617 (2021).
- Cimino, P. J., et al. Expanded analysis of high-grade astrocytoma with piloid features identifies an epigenetically and clinically distinct subtype associated with neurofibromatosis type 1. Acta Neuropathol. 145 (1), 71-82 (2023).
- Lucas, C. -H. G., et al. Multiplatform molecular analyses refine classification of gliomas arising in patients with neurofibromatosis type 1. Acta Neuropathol. 144 (4), 747-765 (2022).
- Fisher, M. J., et al. Management of neurofibromatosis type 1-associated plexiform neurofibromas. Neuro-Oncol. 24 (11), 1827-1844 (2022).
- Packer, R. J., et al. Plexiform neurofibromas in NF1. Neurology. 58 (10), 1461-1470 (2002).
- Evans, D. G. R., et al. Malignant peripheral nerve sheath tumours in neurofibromatosis 1. J Med Genet. 39 (5), 311(2002).
- Prudner, B. C., Ball, T., Rathore, R., Hirbe, A. C. Diagnosis and management of malignant peripheral nerve sheath tumors: Current practice and future perspectives. Neurooncol Adv. 2, Suppl 1 i40-i49 (2020).
- Ma, Y., et al. A molecular basis for neurofibroma-associated skeletal manifestations in NF1. Genet Med. 22 (11), 1786-1793 (2020).
- Ozarslan, B., Russo, T., Argenziano, G., Santoro, C., Piccolo, V. Cutaneous findings in neurofibromatosis Type 1. Cancers. 13 (3), 463(2021).
- Hyman, S. L., Shores, A., North, K. N. The nature and frequency of cognitive deficits in children with neurofibromatosis type 1. Neurology. 65 (7), 1037-1044 (2005).
- Morris, S. M., et al. Disease burden and symptom structure of autism in neurofibromatosis type 1: a study of the International NF1-ASD Consortium Team (INFACT). JAMA Psychiatry. 73 (12), 1276-1284 (2016).
- Geoffray, M. -M., et al. Predictors of cognitive, behavioural and academic difficulties in NF1. J Psychiatr Res. 140, 545-550 (2021).
- Monroe, C. L., Dahiya, S., Gutmann, D. H. Dissecting clinical heterogeneity in neurofibromatosis type 1. Ann Rev Pathol. 12 (1), 53-74 (2017).
- Kehrer-Sawatzki, H., Mautner, V. -F., Cooper, D. N. Emerging genotype-phenotype relationships in patients with large NF1 deletions. Hum Genet. 136 (4), 349-376 (2017).
- Hou, Y., et al. Predictors of cognitive development in children with neurofibromatosis type 1 and plexiform neurofibromas. Dev Med Child Neurol. 62 (8), 977-984 (2020).
- Biotteau, M., et al. Sporadic and familial variants in NF1: an explanation of the wide variability in neurocognitive phenotype. Front Neurol. 11, 368(2020).
- Rodriguez, A., et al. Maternal adiposity prior to pregnancy is associated with ADHD symptoms in offspring: evidence from three prospective pregnancy cohorts. Int J Obes (Lond). 32 (3), 550-557 (2008).
- Andersen, C. H., Thomsen, P. H., Nohr, E. A., Lemcke, S. Maternal body mass index before pregnancy as a risk factor for ADHD and autism in children). Eur Child Adolesc Psychiatry. 27 (2), 139-148 (2018).
- Pugh, S. J., et al. Gestational weight gain, prepregnancy body mass index and offspring attention-deficit hyperactivity disorder symptoms and behaviour at age 10. Bjog. 123 (13), 2094-2103 (2016).
- Mina, T. H., et al. Prenatal exposure to maternal very severe obesity is associated with impaired neurodevelopment and executive functioning in children. Pediatr Res. 82 (1), 47-54 (2017).
- Oken, E., et al. Analysis of maternal prenatal weight and offspring cognition and behavior: Results from the Promotion of Breastfeeding Intervention Trial (PROBIT) Cohort. JAMA Netw Open. 4 (8), e2121429-e2121429 (2021).
- Buss, C., et al. Impaired executive function mediates the association between maternal pre-pregnancy body mass index and child ADHD symptoms. PLOS ONE. 7 (6), e37758(2012).
- Li, Y. -M., et al. Association between maternal obesity and autism spectrum disorder in offspring: a meta-analysis. J Autism Dev Disord. 46 (1), 95-102 (2016).
- Dow, C., Galera, C., Charles, M. -A., Heude, B. Maternal pre-pregnancy BMI and offspring hyperactivity-inattention trajectories from 3 to 8 years in the EDEN birth cohort study. Eur Child Adolesc Psychiatry. 32 (10), 2057-2065 (2023).
- Fast, K., et al. Prevalence of attention-deficit/hyperactivity disorder and autism in 12-year-old children: A population-based cohort. Devl Med Child Neurol. 66 (4), 493-500 (2023).
- Carter, S. A., et al. Maternal obesity and diabetes during pregnancy and early autism screening score at well-child visits in standard clinical practice. Autism. 28 (4), 975-984 (2023).
- West, Z., et al. Relationships between maternal body mass index and child cognitive outcomes at 3 years of age are buffered by specific early environments in a prospective Canadian birth cohort. J Dev Orig Health Dis. 14 (1), 42-52 (2023).
- Gutmann, D. H., et al. Neurofibromatosis type 1. Nat Rev Dis Primers. 3, 17004(2017).
- Martins, A. S., et al. Lower fasting blood glucose in neurofibromatosis type 1. Endocr Connect. 5 (1), 28-33 (2016).
- Martins, A. S., et al. Increased insulin sensitivity in individuals with neurofibromatosis type 1. Arch Endocrinol Metab. 62 (1), 41-46 (2018).
- Brossier, N. M., Thondapu, S., Cobb, O. M., Dahiya, S., Gutmann, D. H. Temporal, spatial, and genetic constraints contribute to the patterning and penetrance of murine Neurofibromatosis-1 optic glioma. Neuro Oncol. 23 (4), 625-637 (2020).
- de Lurdes Pinto, M., et al. Technical Report: Mouse fetal blood collection taking the best out of the old needle-syringe method. Scandinavian Journal of Laboratory Animal Science. 35 (1), 5(2008).
- Musillo, C., et al. Bdnf-Nrf-2 crosstalk and emotional behavior are disrupted in a sex-dependent fashion in adolescent mice exposed to maternal stress or maternal obesity. Transl Psychiatry. 13 (1), 399(2023).
- Encinas, J. M., Vaahtokari, A., Enikolopov, G. Fluoxetine targets early progenitor cells in the adult brain. Proc Natl Acad Sci U S A. 103 (21), 8233-8238 (2006).
- Anastasaki, C., et al. Human induced pluripotent stem cell engineering establishes a humanized mouse platform for pediatric low-grade glioma modeling. Acta Neuropathol Commun. 10 (1), 120(2022).
- Cai, H. -J., Xie, C. -L., Chen, Q., Chen, X. -Y., Chen, Y. -H. The relationship between hepatic low-density lipoprotein receptor activity and serum cholesterol level in the human fetus. Hepatology. 13 (5), 852-857 (1991).
- Toonen, J. A., et al. NF1 germline mutation differentially dictates optic glioma formation and growth in neurofibromatosis-1. Hum Mol Genet. 25 (9), 1703-1713 (2016).
- Guo, X., Pan, Y., Gutmann, D. H. Genetic and genomic alterations differentially dictate low-grade glioma growth through cancer stem cell-specific chemokine recruitment of T cells and microglia. Neuro Oncol. 21 (10), 1250-1262 (2019).
- Parasuraman, S., Raveendran, R., Kesavan, R. Blood sample collection in small laboratory animals. J Pharmacol Pharmacother. 1 (2), 87-93 (2010).
- Meyer, N., et al. Impact of three commonly used blood sampling techniques on the welfare of laboratory mice: Taking the animal's perspective. PLOS ONE. 15 (9), e0238895(2020).
- Diehl, K. H., et al. A good practice guide to the administration of substances and removal of blood, including routes and volumes. J Appl Toxicol. 21 (1), 15-23 (2001).
- Jung, J., Garnett, E., Rector, K., Jariwala, P., Devaraj, S. Effect of collection tube type on glucose stability in whole blood. Ann Clin Lab Sci. 50 (4), 557-559 (2020).
- Bonetti, G., et al. Which sample tube should be used for routine glucose determination. Prim Care Diabetes. 10 (3), 227-232 (2016).
Reimpressões e permissões
