Strongyloides ratti é um nematóide parasita que causa infecções transitórias em camundongos de laboratório, exibindo estágios de migração de tecidos e vida intestinal. Aqui, apresentamos um protocolo para a manutenção do ciclo parasitário em ratos e infecção experimental de camundongos, incluindo quantificação do parasita na cabeça, pulmão e intestino.
Artigo de método
Infecção experimental de camundongos com o nematóide parasita Strongyloides ratti
Neste artigo
Resumo
Resumo
Strongyloides ratti é um nematóide parasita que infecta naturalmente ratos selvagens. No entanto, a maioria das cepas de ratos e camundongos de laboratório são totalmente suscetíveis à infecção. Camundongos BALB/c e C57BL/6 imunocompetentes terminam infecções por S. ratti dentro de um mês no contexto de uma resposta imune canônica tipo 2 e permanecem semi-resistentes a uma reinfecção. O curso da infecção pode ser dividido em três fases: (a) a fase de migração tecidual das larvas infecciosas do terceiro estágio durante os primeiros dois dias; b) A fase inicial do intestino, incluindo a muda para os parasitas adultos e a sua incorporação na mucosa do intestino nos dias 3 a 6 após a infecção, com reprodução a partir do dia 5 a 6 após a infecção; c) A fase intestinal posterior, terminando com a eliminação completa dos parasitas. Infecções experimentais de camundongos com S. ratti permitem o estudo preciso das interações parasito-hospedeiro ao longo de todo o ciclo de vida nos diferentes locais de infecção, bem como estratégias de evasão imunológica empregadas pelo parasita. O protocolo aqui apresentado descreve a manutenção do parasito em ratos Wistar, a infecção de camundongos de laboratório e a detecção e quantificação de parasitas S. ratti na fase de migração tecidual e durante a fase intestinal.
Introdução
O helminto, transmitido pelo solo, Strongyloides stercoralis, causa estrongiloidíase, uma doença frequentemente referida como a mais negligenciada entre as doenças tropicais negligenciadas1. Estimativas de 2020 sugerem 600 milhões de infecções por S. stercoralis em todo o mundo2. A pesquisa laboratorial baseada em hipóteses sobre S. stercoralis é limitada, uma vez que o helminto não é capaz de se desenvolver além das larvas do terceiro estágio (L3) em camundongos 3,4. Assim, o nematóide específico para roedores Strongyloides ratti é comumente usado para estudos de infecção in vivo em camundongos de laboratório 5,6. S. ratti é um parasita natural de ratos selvagens, mas a maioria das cepas de camundongos de laboratório é totalmente suscetível à infecção7. Isso permite o estudo da interação patógeno-hospedeiro e das respostas imunes em diferentes tecidos e estágios vivos do helminto.
O ciclo laboratorial de S. ratti em camundongos pode ser dividido em três fases principais. Após a injeção subcutânea de um número definido de larvas infecciosas de terceiro estágio (iL3), geralmente de 1000 a 2000, a maioria (cerca de 90%) das L3 sobreviventes migra para a cabeça dos camundongos durante os primeiros dois dias de infecção, e apenas uma fração muito pequena (cerca de 10%) é recuperada no pulmão8. S. ratti penetra ativamente na pele de seu hospedeiro roedor. É possível mimetizar essa via natural de infecção em laboratório, colocando uma gota de água contendo iL3 na pele de camundongos e permitindo infecção percutânea ativa9. No entanto, a eficácia da infecção é muito menor e o controle da dose exata da infecção não é possível. A rota exata de migração percorrida por S. ratti iL3, após infecção percutânea ou subcutânea (s.c.), permanece desconhecida. No entanto, como nenhum DNA de S. ratti pode ser detectado no sangue ou em órgãos bem supridos de sangue, como os rins de camundongos infectados8, a rota de migração primária pode não incluir a corrente sanguínea. Ainda assim, S. ratti não migra aleatoriamente pelos tecidos. Em vez disso, vários estudos usando histologia em camundongos 3,10 e ratos11 ou quantificação de DNA derivado de L3 e S. ratti viável recuperado de vários tecidos8 fornecem evidências de que S. ratti L3 migra do local da infecção diretamente através da pele e do tecido muscular predominantemente para a região nasofrontal da cabeça.
Aproximadamente 10% das larvas injetadas sobrevivem à migração tecidual e atingem a cabeça em camundongos C57BL/6 e BALB/c que exibem números L3 comparáveis no tecido cefálico12. Acredita-se que as larvas sejam engolidas para chegar ao intestino no dia 3 pós-infecção (p.i.). Eles se incorporam à mucosa do intestino delgado, mudam para parasitas fêmeas adultas e começam a se reproduzir por partenogênese no dia 5 ao dia 6 p.i.13. Os ovos, mas principalmente as larvas de primeiro estágio já eclodidas (L1), são liberados no intestino e secretados com fezes. O pico do número de fêmeas adultas é atingido por volta do dia 6 p.i.14. Curiosamente, os camundongos C57BL / 6 exibem uma carga de parasitas intestinais 2 a 5 vezes maior do que os camundongos BALB / c, apesar do número comparável de L3 migratória de tecido na cabeça em ambas as cepas de camundongos12. Durante a primeira semana, a carga parasitária intestinal em camundongos C57BL/6 imunocompetentes e camundongos knock-out (KO) RAG1 que não possuem células B e T é semelhante, sugerindo que o controle parasitário precoce é mediado pela imunidade inata12,15. Na última fase, os parasitas são expelidos do intestino dentro de 2 a 4 semanas p.i. em camundongos imunocompetentes (revisado em6). Os camundongos RAG1 KO não são capazes de eliminar a infecção e contêm baixo número de fêmeas adultas viáveis e reprodutoras no intestino delgado por até 1 ano12.
Após uma primeira infecção resolvida ou imunização com L3 irradiado, os camundongos imunocompetentes C57BL/6 e BALB/c são semirresistentes à reinfecção. Apenas 1% do iL3 inoculado inicial atinge a cabeça, e apenas aproximadamente 1-5 parasitas adultos podem ser recuperados do intestino durante uma segunda infecção8. Assim, o uso da infecção laboratorial de camundongos com S. ratti fornece uma ferramenta para estudar o impacto do sistema imune inato e adaptativo durante o ciclo de vida completo de um nematóide intestinal com fases de migração tecidual.
Neste manuscrito, fornecemos uma descrição detalhada da manutenção do ciclo de vida de S. ratti em ratos Wistar, bem como a infecção experimental de camundongos e a quantificação da carga parasitária nos diferentes locais de infecção. Pela quantificação exata da carga do parasita S. ratti na cabeça e no tecido pulmonar, bem como no intestino de camundongos experimentais, é possível dissecar o papel de certos efetores imunológicos contra a migração de tecidos ou o estágio de vida intestinal desse nematóide parasita. As respostas imunes em camundongos selvagens e camundongos sem células efetoras imunes específicas, receptores ou mediadores de interesse podem ser comparadas conforme explicado em detalhes na discussão 5,6.
Protocolo
Os experimentos com animais foram conduzidos de acordo com a Lei Alemã de Bem-Estar Animal e os protocolos experimentais foram aprovados pela autoridade alemã (Behörde für Gesundheit und Verbraucherschutz) do Estado de Hamburgo. A Figura 1 fornece uma visão geral da manutenção do ciclo de vida de S. ratti em ratos Wistar e da produção de iL3 para infecção de camundongos ou ratos experimentais.
1. Preparação de larvas infecciosas
- Prepare o aparelho de Baermann conforme indicado na Figura 1. Feche a parte inferior da mangueira com um clamp em um ângulo oblíquo e coloque um lenço de papel na peneira. Encha com água morna (cerca de 35-37 °C) até que o crivo esteja coberto de água.
- Encha a peneira com a mistura de fezes e carvão preparada conforme descrito abaixo (etapa 6). A mistura precisa ser completamente coberta por água.
- Ligue a luz diretamente atrás do aparelho Baermann. O iL3 viável migrará ativamente através do wipe.
- Após 30 minutos, as larvas se acomodaram acima da pinça, colete-as em um tubo de 50 mL abrindo a pinça brevemente. Colete o pellet inteiro, mas certifique-se de que o volume seja o menor possível.
- Encha o tubo de 50 mL com PBS contendo 1% de penicilina-estreptomicina (PBS / Pen-Strep) e deixe as larvas assentarem no fundo do tubo por gravidade a 4 ° C por 30 min. Remova cuidadosamente o sobrenadante com uma pipeta e repita a etapa de lavagem 3x.
- Após a terceira etapa de lavagem, ressuspenda o pellet em 30 a 50 mL de PBS/Pen-Strep, dependendo do tamanho do pellet. Transferir 1 μL de gotas da solução para uma lâmina de microscopia. Agite a solução imediatamente antes de pipetar, pois o iL3 se acomoda rapidamente.
- Inspecione as gotículas sob um microscópio inverso com ampliação de 40x. O iL3 deve estar se movendo vividamente. Contar o iL3 por gotícula de 1 μL em 5 a 10 repetições e calcular a média por μL.
2. Infecção de camundongos
NOTA: O iL3 preparado pode ser armazenado em PBS/Pen-Strep a 4 °C em um tubo de 50 mL que deve ser mantido horizontalmente para evitar danos ao iL3. A viabilidade in vitro indicada pelo movimento vívido do iL3 permanece inalterada por até 1 semana em nossas mãos. Como não há comparação sistemática da infectividade de L3 após diferentes tempos de armazenamento, usamos iL3 recém-preparado e iL3 armazenado por no máximo 24 h após a preparação como padrão interno. Infecções com lotes de iL3 mais antigos são possíveis. No entanto, é obrigatório usar o mesmo lote de iL3 para infecção de diferentes grupos dentro de um experimento. As infecções de camundongos devem ser feitas preferencialmente por duas pessoas, com uma pessoa segurando o camundongo e outra realizando a injeção.
- Prepare um tubo de centrifugação de 1,5 ml por ratinho contendo um total de 1000 iL3 (C57BL/6) ou 2000 iL3 (BALB/c) contados conforme descrito acima no passo 1.7 em PBS/Pen-Strep que foram preparados utilizando o aparelho de Baermann conforme explicado acima (passo 1). Agite bem entre as etapas de pipetagem enquanto o iL3 se acomoda rapidamente.
- Deixe o iL3 assentar por gravidade por 20-30 min à temperatura ambiente (RT) e aspire o sobrenadante com uma seringa de 0,5 mL o mais completamente possível, deixando cerca de 30 μL de suspensão de iL3 no tubo. Ressuspenda o iL3 com uma seringa de 0,5 ml (28G) ou sacudindo o tubo e aspire a suspensão restante.
NOTA: O iL3 tem menos probabilidade de aderir ao plástico úmido do que a seringa seca. Portanto, é vantajoso usar a mesma seringa para retirar o sobrenadante. - Os camundongos não precisam ser anestesiados para infecção. Pegue os ratos com a nuca e pegue um pé traseiro dos ratos. Utilizar C57BL/6 feminino e masculino com mais de 8 semanas de idade e pelo menos 20 g de peso. Injete toda a solução contendo o iL3 por via subcutânea na almofada do pé em um ângulo plano. Retraia lentamente a seringa para evitar derramar a suspensão de larvas do local da punção. Uma cúpula muito pequena contendo o líquido se formará. Isso será absorvido por si só.
NOTA: A infecção subcutânea na pata, em vez do flanco ou nuca, imita a infecção natural por iL3, que vive em terra úmida fertilizada com fezes e penetra ativamente na pele intacta. Além disso, o primeiro linfonodo de drenagem (LN) é definido como o linfonodo poplíteo. Este LN pode ser usado para a análise de alterações imunológicas precoces (ou seja, dia 2 p.i.), por exemplo, expansão de células T reguladoras Foxp3+ em resposta à infecção, como mostrado em16.
3. Contagem de iL3 na cabeça e no pulmão de camundongos infectados
- Para análise da carga de larvas no tecido, sacrifique os camundongos no dia 1-3 p.i. como o pico da carga de larvas é no dia 2 p.i.8,12. Realizar a eutanásia por overdose de narcose por CO2. Após a ausência de córnea e reflexos interdigitais, realize a luxação cervical.
- Pulverize o abdômen e o pescoço com um desinfetante comercial e corte a pele sobre o abdômen com uma tesoura. Puxe a pele para trás para revelar a parede abdominal anterior e corte ao longo da linha média para abrir a cavidade peritoneal. Corte o diafragma e abra as costelas em ambos os lados para expor o pulmão na cavidade pleural.
- Colete os lobos pulmonares em uma placa de 24 poços dividida por linhas contendo 1 mL de água da torneira. Desenhe ou imprima as linhas na placa a uma distância de cerca de 4 mm. A distância entre as linhas deve permitir ver as duas linhas ao mesmo tempo com ampliação de 40x.
- Corte todo o pulmão em seis pedaços de aproximadamente 0,75 cm x 0,75 cm.
- Corte a cabeça com uma tesoura de osso. Remova a pele e o pelo usando os dedos. Tente remover o mínimo de tecido muscular possível.
- Disseque toda a cabeça (incluindo cérebro e ossos) em quatro quartos atrás dos olhos e longitudinalmente no meio da cabeça (ver Figura 2C). Coloque os quadrantes anterior e posterior em um poço de uma placa de 6 poços marcada por linhas contendo 2 mL de água da torneira. Coloque o lenço com os cortes voltados para baixo na água.
NOTA: Normalmente, essa abordagem fornece um registro exato do número de larvas migratórias de tecido da cabeça. Se for necessária uma análise separada dos números L3 no cérebro, o passo 3.7 pode ser incluído. - Se uma análise separada do cérebro for desejada, remova a pele da cabeça usando os dedos. Em seguida, use uma tesoura para perfurar a calota craniana entre os olhos. A partir desta incisão, abra a parte superior do crânio sagital com uma tesoura não utilizada ou completamente limpa. Para expor o cérebro, abra as calotas cranianas direita e esquerda com uma pinça. Use uma espátula para levantar o cérebro do lado anterior para cima e os cordões nervosos são cortados com uma tesoura limpa. Remova o cérebro e transfira-o para uma placa de 24 poços marcada por linhas contendo água da torneira.
- Colocar as placas numa incubadora a 37 °C. Incubar durante 3 h enquanto agita as placas a cada hora (h) 10x. Após a incubação, gire uma última vez, remova as partes restantes do tecido com uma pinça dos poços e descarte o tecido.
- Conte completamente todas as larvas na água restante nos poços sob um microscópio invertido com uma ampliação de 40x, movendo-se ao longo das linhas desenhadas no fundo do poço. Conte as larvas migratórias de tecidos no mesmo dia para aumentar a confiabilidade dos resultados.
4. Contagem de parasitas S. ratti no intestino de camundongos infectados
- Para análise da carga parasitária no intestino sacrificar os camundongos no dia p.i. de interesse, use o dia 3-21 p.i. para uma cinética completa. O pico da carga parasitária em camundongos C57BL / 6 e BALB / c no intestino delgado é no dia 6 p.i.14. Realizar a eutanásia por overdose de narcose por CO2 . Após a ausência de córnea e reflexos interdigitais, realize uma luxação cervical.
- Mergulhe a região abdominal dos camundongos em desinfetante e corte a pele sobre o abdômen. Puxe a pele para trás para revelar a parede abdominal anterior e corte ao longo da linha média para abrir a cavidade peritoneal.
- Remova todo o intestino cortando entre o estômago e o duodeno proximal, bem como entre o cólon e o ânus (ver Figura 3B). Retire suavemente o intestino com os dedos e coloque-o em uma placa de Petri contendo água da torneira.
- Corte o intestino longitudinalmente e lave as fezes e o muco agitando vigorosamente em água da torneira por pelo menos 10 s. Uma pequena fração de parasitas adultos e alguns L1 serão eliminados, mas os parasitas L4 viáveis e S. ratti adultos estão embutidos na mucosa do intestino em camundongos do tipo selvagem (WT) e não serão removidos por esta etapa de lavagem.
- Se for de interesse, divida ainda mais o intestino conforme descrito abaixo.
- Isole o duodeno por uma incisão após o segundo remendo de Peyer (aproximadamente 2-3 cm). Isole o íleo por duas incisões, uma na primeira e outra no segundo remendo de Peyer (aproximadamente 1-2 cm). Isole o jejuno após o isolamento do duodeno e do íleo, pois esta é a seção restante.
- Divida o jejuno em três seções iguais para permitir uma definição muito exata da localização do parasita. Isole o ceco entre o íleo e o cólon. Isole o cólon cortando após o ceco. A maioria dos parasitas adultos pode ser encontrada no primeiro terço do intestino delgado (ver Figura 3B).
- Transfira as partes intestinais limpas para tubos de 50 mL contendo 20 mL de água da torneira. Colocar horizontalmente na incubadora a 37 °C durante 3 h. Agite vigorosamente por 10 s a cada hora.
- Após 3 h de incubação, remova o tecido da água. Coloque os tubos verticalmente em RT e os parasitas sedimentam por gravidade em 30 min.
- Remova o sobrenadante até que restem cerca de 5 mL de água. Encha até 25 mL com água da torneira para repetir a etapa de lavagem. Para análise do intestino delgado, repita esta etapa de lavagem outra vez para ter boa visibilidade ao microscópio.
- Quando uma boa visibilidade for alcançada, aspire o sobrenadante até restarem cerca de 5 mL de água e transfira o líquido para dois poços por intestino de camundongo em uma placa de 6 poços marcada por linhas, conforme explicado para contar as larvas na cabeça.
- Conte os parasitas fêmeas adultas sob um microscópio invertido com uma ampliação de 40x, movendo-se ao longo das linhas desenhadas no fundo do poço. Conte os parasitas no dia do sacrifício. Conte os parasitas o mais rápido possível, pois a incubação prolongada na água levará à sua morte e desintegração.
NOTA: Além das larvas do quarto estágio e parasitas adultos, L1 também pode ser detectado aqui por volta do dia 5 p.i. Estes são muito menores e muito mais abundantes do que os parasitas L4 e adultos e devem ser distinguidos facilmente.
5. Manutenção de S. ratti em ratos Wistar
NOTA: As infecções em ratos devem ser feitas preferencialmente por duas pessoas, com uma pessoa segurando os ratos e outra realizando a injeção. Para manter o ciclo parasitário, ratos Wistar de 4 a 8 semanas de idade são infectados.
- Preparar um tubo de centrifugação de 1,5 ml por rato contendo 2500 iL3 em PBS/Pen-Strep utilizando o aparelho de Baermann, conforme explicado anteriormente. Agite bem entre as etapas de pipetagem à medida que as larvas se acomodam rapidamente.
- Deixe as larvas assentarem por gravidade por 20-30 min (RT) e aspire o sobrenadante em uma seringa de 0,5 mL (28G) até que restem cerca de 200 μL de suspensão de larvas.
- Para infecções, coloque os ratos na dobra do braço de uma pessoa e fixe a cabeça com cuidado e cuidado. A outra pessoa agarra suavemente o flanco do rato e injeta a suspensão de iL3 ressuspensa por via subcutânea na dobra nucal.
6. Cultura do carvão vegetal
- Mantenha os ratos infectados em gaiolas contendo várias camadas de celulose e menos cama a partir dos dias 5 e 12 após a infecção. Essa troca de cama por várias camadas de celulose é feita para facilitar a coleta de fezes em comparação com a coleta de fezes da cama
- Nos dias 6-8 e 13-15 p.i., transfira os ratos para uma gaiola nova e colete todas as fezes da gaiola antiga, pegando os pellets de fezes das gaiolas depois de transferir os ratos para gaiolas frescas e agrupá-los de uma gaiola em um tubo de 50 mL. Coletar fezes por 2 semanas p.i. antes do estabelecimento da resposta imune reduz a carga larval nas fezes. Após 2 semanas p.i. os ratos são eutanasiados via narcose por overdose de CO2 . Após a ausência de córnea e reflexos interdigitais, realize uma luxação cervical.
NOTA: Ratos imunocomprometidos e gerbos da Mongólia mantêm infecções por S. ratti por períodos mais longos17,18. Estudando a resposta imune e a imunomodulação durante a infecção por S. ratti, decidimos manter o ciclo em hospedeiros imunocompetentes para manter a pressão de seleção da imunidade intacta do hospedeiro. - Utilizar as amostras de fezes coletadas para preparar culturas de carvão, o que permitirá o desenvolvimento de iL3 a partir da L1 presente nas fezes.
- Mergulhe o carvão com água da torneira. Antes de usar carvão para culturas, encha-o em uma peneira e lave-o em água corrente da torneira até que a água saia limpa. Mantenha o carvão úmido o tempo todo. Deixe o carvão de molho por pelo menos 24 h antes de usar.
- Misture as fezes com carvão ativado pré-embebido em uma proporção de aproximadamente 1:1. Disponha a mistura com um gradiente na diagonal e cubra-a com outra camada de carvão ativado em um copo de vidro plano para obter uma proporção final de 1:2.
NOTA: A incubação das fezes com carvão ativado pré-embebido imita o solo úmido no qual o iL3 se desenvolve na natureza, evitando a contaminação fúngica excessiva. - Cubra o recipiente de vidro com uma película transparente. Certifique-se de que haja alguns orifícios de ar para permitir a circulação de ar.
- Incubar durante 6-7 dias a 25 °C com cerca de 90 % de humidade sem CO2. Certifique-se de que a incubadora contenha um recipiente de água para manter as culturas úmidas. Conservar as culturas durante um período máximo de 14 dias a 25 °C, se necessário. O iL3 se desenvolverá direta ou indiretamente19 e permanecerá preso no estágio iL3 até a infecção.
Resultados
S. ratti migra do local da infecção predominantemente para a cabeça e posteriormente para o intestino em uma rota que não está exatamente definida. Para investigar a localização exata no tecido da cabeça e no intestino, camundongos C57BL / 6 foram infectados com 1000 iL3 na almofada do pé traseiro esquerdo. Os camundongos foram sacrificados no dia 1 ao dia 14 p.i. e os parasitas S. ratti foram quantificados na cabeça anterior e posterior, cérebro e pulmão (Figura 2), bem como no duodeno, jejuno, íleo, ceco e cólon (Figura 3).
No dia 1 p.i., a primeira L3 atingiu a cabeça, mostrando uma distribuição uniforme (Figura 2A). Além disso, uma pequena fração de larvas foi recuperada nos pulmões no dia 1 p.i. (Figura 2B). Os números de L3 aumentaram acentuadamente no dia 2 p.i. para uma média de 174 L3 ± 13 na cabeça e uma média de 17 ± 1,7 no pulmão. Assim, a maior parte da L3 (cerca de 90%) é recuperada da cabeça e apenas cerca de 10% dos pulmões. A maioria das L3 (média de 93 ± 13,3) estava localizada no lado anterior da cabeça, mas também em torno de 41 ± 4,7 larvas L3 estavam localizadas no lado posterior da cabeça e em torno de 39 ± 5,8 no cérebro. Em consonância com essa observação, a presença de L3 no cérebro e no líquido cefalorraquidiano foi relatada em 24 h p.i. e com um máximo em 48 h p.i. em camundongos C57BL/6 após infecção percutânea20. Uma diminuição distinta no número total de L3 foi observada no dia 3 p.i. em comparação com a carga de larvas no dia 2 p.i. e nenhuma L3 foi recuperada do tecido da cabeça no dia 4 p.i. (Figura 2A). Assim, a chegada de parasitas S. ratti foi detectada no intestino no dia 4 p.i. (Figura 3A). Para permitir uma definição precisa da localização do parasito, o intestino foi subdividido em segmentos distintos, ou seja, duodeno, jejuno, íleo, ceco e cólon (Figura 3B). No dia 4, p.i., a maioria dos parasitas de S. ratti estava localizada no duodeno e nos primeiros dois terços do jejuno (Figura 3A). Essa localização foi consistente até o dia 6 p.i. A partir do dia 7 p.i., a maioria dos adultos de S. ratti estava localizada no ceco, onde persistiram até o dia 9 p.i. (Figura 3A). O número de parasitas no ceco caiu no dia 11 p.i. para cerca de 20 e para 0 no dia 14 p.i. Não recuperamos um número significativo de parasitas do cólon remanescente em nenhum momento analisado, exceto aproximadamente 5-11 parasitas no dia 11 p.i. Enquanto a localização dos parasitas S. ratti mudou do dia 4 para o dia 9 p.i. e a maioria dos adultos foi ejetada do intestino delgado após o dia 7 p.i., o número total recuperado de todo o intestino permaneceu constante até o dia 9. A L1 viável não foi quantificada, mas é detectável do dia 4 ao dia 11, com pico no dia 6 (dados não mostrados).

Figura 1: Manutenção do ciclo de vida de S. ratti em ratos e camundongos. Ratos Wistar são injetados s.c. na prega nucal com 2500 iL3. Após 6 a 15 dias, p.i. suas fezes são coletadas, misturadas com carvão ativado embebido em água, dispostas com um gradiente e cobertas com uma película transparente, incluindo orifícios de ar. Esta cultura é incubada por 6-7 dias a 25 °C e 90% de umidade. Os iL3 são isolados usando o aparelho de Baermann e lavados 3x com PBS/Pen-Strep. Camundongos experimentais são injetados com 1000 iL3 por via subcutânea na pata traseira. Criado com BioRender.com. A Figura 1 foi criada no BioRender. Linnemann, L. (2024) https://BioRender.com/g80l370. Clique aqui para ver uma versão maior desta figura.

Figura 2: Quantificação de S. ratti no tecido pulmonar e cefálico ao longo do tempo. Camundongos C57BL/6 foram injetados com 1000 iL3 na pata traseira. Os camundongos foram sacrificados nos pontos de tempo indicados, e os parasitas S. ratti na cabeça (A) e no pulmão (B) foram contados. Cada símbolo representa as contagens L3 de um mouse individual; o gráfico de barras mostra o valor médio e as barras de erro indicam SEM. Os gráficos mostram dados combinados de experimentos individuais. Dia 1: dois experimentos independentes com n=4 por ponto de tempo e experimento; Dia 2: Quatro experimentos independentes com n=4, n=4, n=6 e n=3; Dia 3: dois experimentos independentes com n=4 e n=3; Dia 4: Um experimento com n=5. (C) Desenho esquemático mostrando as regiões individuais da cabeça usadas para isolamento. A linha tracejada vermelha indica o caminho da incisão. A Figura 2C foi criada no BioRender. Linnemann, L. (2024) https://BioRender.com/t83e660. Clique aqui para ver uma versão maior desta figura.
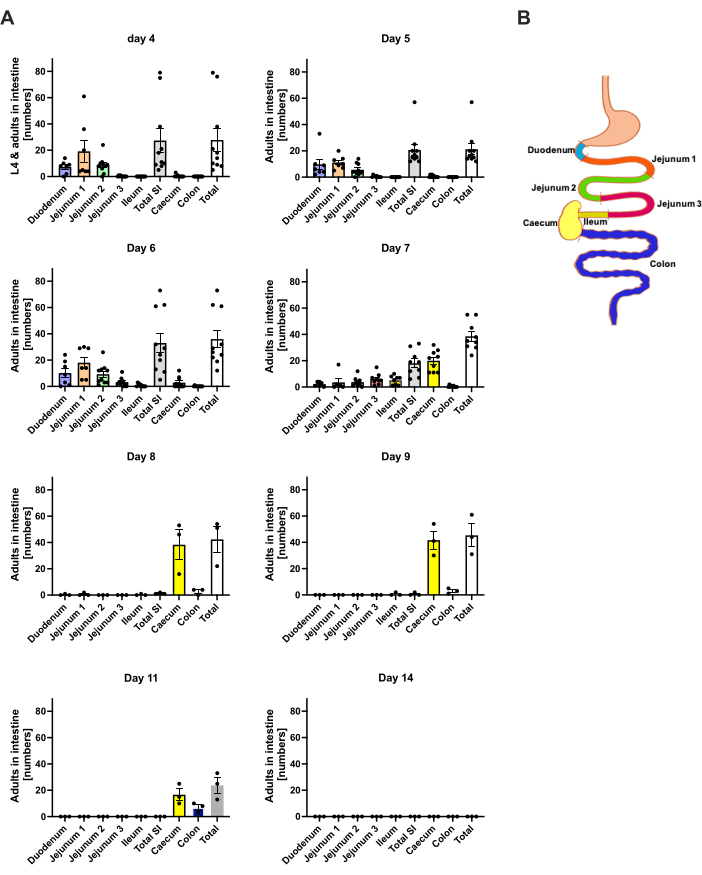
Figura 3: Quantificação de S. ratti nas regiões do intestino ao longo do tempo. Camundongos C57BL/6 machos foram injetados com 1000 iL3 na pata traseira. (A) Os camundongos foram sacrificados nos pontos de tempo indicados, e os parasitas S. ratti , exceto L1, foram contados nas seguintes regiões: duodeno, jejuno 1-3, íleo, ceco e cólon. (B) Visão geral esquemática das diferentes regiões intestinais. Cada símbolo representa a contagem de parasitas de um camundongo individual; o gráfico de barras mostra a média e as barras de erro indicam SEM. São mostrados dados combinados de experimentos individuais. Dia 4: dois experimentos independentes com camundongos n=4 e n=6; Dia 5: dois experimentos independentes com n=4 e n=6; Dia 6: dois experimentos independentes com n=4 e n=6; Dia 7: dois experimentos independentes com n=6 e n=3; Dias 8 a 14: um experimento com n=3. SI: intestino delgado. A Figura 3B foi criada no BioRender. Linnemann, L. (2024) https://BioRender.com/h27y297. Clique aqui para ver uma versão maior desta figura.
Discussão
A infecção de camundongos experimentais com S. ratti representa um excelente modelo para estudar a natureza das respostas imunes protetoras a infecções por helmintos em vários locais e estágios da imunidade. Usando diferentes linhas de camundongos KO e modelos de depleção de células ou citocinas, o papel de células imunes, mediadores ou receptores específicos pode ser estudado em um modelo de infecção por helmintos agudos. A possibilidade de quantificar a carga parasitária na cabeça e no intestino oferece a possibilidade de diferenciar o papel das células imunes e efetores em vários tecidos e fases durante o ciclo de vida do parasita. A depleção de tipos celulares específicos por meio de injeções de anticorpos permite o estudo de seu papel, especificamente durante a resposta imune intestinal, se o tratamento de depleção começar após a conclusão da fase de migração do tecido. Se desejado, o intestino pode ser subdividido em duodeno, jejuno, íleo, ceco e cólon para detectar até mesmo pequenas mudanças na localização do parasita ou na cinética de depuração. Deve-se notar que a variação inter e intraexperimental nesses experimentos de infecção, mesmo em camundongos endogâmicos, é bastante alta, refletindo a variação introduzida pela interação do parasita e do hospedeiro, bem como diferentes lotes de S. ratti L3 exibindo diferentes eficácias de infecção (ver Figura 2 e Figura 3). Para reduzir a variabilidade, a idade e o sexo dos camundongos experimentais devem ser semelhantes. Além disso, se os camundongos KO e WT forem comparados, é altamente recomendável usar controles de ninhada em vez de camundongos WT derivados de uma colônia de reprodução independente. No entanto, se tamanhos de amostra suficientes forem usados, é possível gerar resultados confiáveis comparando a carga parasitária em camundongos deficientes ou competentes para certos efetores, levando a uma imagem clara dos efetores imunológicos envolvidos na resposta imune protetora a S. ratti (revisado em 6).
Uma característica distintiva chave de S. ratti em comparação com outros modelos de infecção por nematóides, como o intimamente relacionado S. venezuelensis ou N. brasiliensis, é a rota única de migração das larvas dentro do hospedeiro. Ao contrário de N. brasiliensis e S. venezuelensis, cujos ciclos de vida contêm uma fase pulmonar 21,22,23 S. ratti contorna principalmente o pulmão e migra através do tecido muscular e cutâneo para a cabeça 8,12. Apenas aproximadamente 10% dos parasitas sobreviventes no dia 2 p.i. são encontrados nos pulmões. Enquanto isso, a localização de S. ratti na cabeça concentra-se na região nasofrontal, em consonância com estudos anteriores8. Essas características tornam S. ratti um modelo valioso para estudar as interações parasita-hospedeiro, especificamente na pele e no tecido muscular, bem como nos linfonodos de drenagem do tecido e permite estudos sobre as respostas imunes que podem ser obscurecidas ou complicadas por um envolvimento pulmonar prolongado como em outros modelos de infecção por nematóides. Surpreendentemente, S. ratti L3 também é recuperado do líquido cefalorraquidiano20 e do cérebro (Figura 2A), embora sintomas neurológicos induzidos por infecção ou morte sejam relativamente raros e nunca tenham sido observados em nosso biotério. Pesquisas futuras podem elucidar se esses parasitas localizados no cérebro estão presos ou se existe um caminho para o intestino.
O gênero Strongyloides também tem a capacidade única de formar gerações de vida livre entre as gerações parasitas24. Este estágio de vida livre de S. ratti, bem como sua reprodução por patogênese, facilita ainda mais a geração de larvas transgênicas. O uso de microinjeções em fêmeas de vida livre permitiu a geração de larvas que expressam antígenos modelo como 2W1S fundidos a uma proteína fluorescente verde. Embora a expressão do epítopo tenha sido perdida durante a muda para adultos, ela permitiu o rastreamento e a caracterização de células T CD4 + específicas para S. ratti no pulmão e nos linfonodos mediastinais de drenagem pulmonar25. Essa abordagem fornece uma excelente ferramenta para estudar a biologia das células T CD4+ no contexto de infecções por helmintos e desenvolvimento de vacinas anti-helmínticas.
S. ratti é um organismo modelo versátil para pesquisa imunológica de helmintos parasitas que apresentam migração de tecidos e estágios de vida intestinal em geral. As infecções humanas por S. stercoralis são marcadas por extrema cronicidade devido à ocorrência de autoinfecção, que também pode levar à síndrome de hiperinfecção em hospedeiros imunossuprimidos, principalmente pacientes em uso de glicocorticoide pós-transplante26. Deve-se notar que esse aspecto da autoinfecção e hiperinfecção é difícil de modelar em camundongos. Nem o RAG1 KO infectado por S. ratti nem os camundongos nus 5,27 são suscetíveis à hiperinfecção. É importante notar que um modelo murino de hiperinfecção por S. stercoralis foi estabelecido usando camundongos gravemente imunocomprometidos tratados com glicocorticosteróides (NOD.Cg-PrkdcscidIl2rgtm1Wjl / SzJ), o que pode permitir a análise de pelo menos aspectos da síndrome de hiperinfecção em camundongos eventualmente28.
No entanto, estudos utilizando a infecção por S. ratti em camundongos demonstraram que eosinófilos e neutrófilos desempenham um papel não redundante na erradicação de larvas migratórias de tecidos. A depleção ou ausência em camundongos geneticamente modificados resultou em números elevados de L3 na cabeça8. Enquanto os mastócitos e granulócitos basofílicos foram dispensáveis durante a fase de migração tecidual, tanto os mastócitos quanto os basófilos contribuíram para o controle da carga parasitária intestinal. Sua ausência não afetou o número de L3 no tecido, mas elevou o número de parasitas adultos de S. ratti no intestino no dia 6 p.i.12,29. Uma análise mais aprofundada revelou que a ausência de basófilos ou mastócitos do tecido conjuntivo seletivamente permitiu o término da infecção com cinética WT. Por outro lado, camundongos sem tecido conjuntivo e mastócitos da mucosa permaneceram infectados por 20 semanas12. Essas descobertas revelaram um papel fundamental para os mastócitos da mucosa na terminação final da infecção, ressaltando o valor desse modelo de infecção na elucidação da função dos mastócitos da mucosa durante a infecção por helmintos. A definição adicional de possíveis alterações na localização intestinal de parasitas S. ratti na ausência de certas células efetoras imunológicas ajudará a definir sua função na imunidade anti-helmíntica com ainda mais precisão.
Além disso, mecanismos imunoevasivos empregados por helmintos para facilitar sua sobrevivência podem ser estudados neste sistema. Foi demonstrado que a depleção de células T reguladoras de Foxp3+ ou a deleção de um receptor regulador nas células T efetoras, ambas induzidas durante a infecção por S. ratti, reduziram a carga parasitária no dia 6 p.i. e a produção larval durante a infecção 15,16,30,31. Além disso, foi possível definir o intestino como o tecido alvo da evasão imune e a ativação de mastócitos mediada por IL-9 como a via imune suprimida. Finalmente, o mecanismo de iniciação mediada por ILC2 da imunidade tipo 2 por citocinas de alarmina derivadas de tecidos, como IL-33, pode ser estudado usando supressores e intensificadores de IL-33 endógena32.
O isolamento de um grande número de iL3 via Baermann apresenta a possibilidade de novos estudos in vitro . Co-culturas de L3 com células imunes ou potenciais candidatos a medicamentos permitem a investigação direta dos efeitos na viabilidade e motilidade de L3. A reestimulação ex vivo de células isoladas de camundongos infectados com lisado de antígeno de S. ratti ou L3 viável fornece uma plataforma para estudar a produção de citocinas em vários tipos de células. Finalmente, frações proteicas e lipídicas de L3 podem ser usadas para a identificação de padrões moleculares associados a patógenos derivados de S. ratti ou moléculas efetoras imunomoduladoras
Como as infecções por helmintos ainda representam um grande fardo para a saúde em todo o mundo, a pesquisa para elucidar ainda mais as respostas imunes induzidas por helmintos e o mecanismo de evasão empregado pelos parasitas continua sendo fundamental para melhorar as opções de tratamento e desenvolver estratégias preventivas, como vacinas. A infecção por S. ratti em camundongos apresenta um modelo versátil para pesquisa sobre interações helminto-hospedeiro durante um modelo de infecção aguda.
Divulgações
Os autores não têm conflito de interesses. O modelo de linguagem Perplexity AI 2024 foi usado para revisar rascunhos de texto e melhorar formulações.
Agradecimentos
Este trabalho foi apoiado pela Fundação Jürgen Manchot e pela Associação Alemã de Pesquisa (Grant BRE 3754/6-1 e BRE 3754/10-1). As Figuras 1, 2C e 3B foram criadas em BioRender.com.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Tubos de 50 ml | Sarstedt, N mbrecht, DE | 6,25,47,254 | 50 ml https://www.sarstedt.com/produkte/labor/reagenz-zentrifugenroehren/roehren/produkt/62.547.254/ |
| BD Micro-Fine U100 Insulina 0,5 ml | BD Bioscience | 7468077 | 0,5 ml https://www.bestimed.de/bd-micro-fine-insulinspritze-05-ml-u100-8-mm-100x05ml-324825.html |
| tubos de centrifugação | Sarstedt, Nü mbrecht, DE | 72.706 | 1,5 ml https://www.sarstedt.com/produkte/labor/mikro-schraubroehren-reagiergefaesse/reagiergefaesse/produkt/72.706/ |
| Carvão Roth | 0998,3 | 5 kg https://www.carlroth.com/de/de/aktivkohle/aktivkohle/p/0998.3 | |
| Falcon 6 poços Clear Flat Bottom, placa de cultura multipoços de células não tratadas, com tampa, | 351146 | Corning estéril6 poços https://www.corning.com/emea/de/search.html?_cookie=false & textoDepesquisa=351146& search-initialcatalog =Corporativo+Comunicações& initialResultType=products | |
| Freezer & Geladeira | Liebherr-Hausgerä te, Rostock, DE | ||
| Greiner Bio-One 24-Well-Platten fü r Zellkulturen aus Polystyrol | Fisher Scientific | 10177380 | 24-well https://www.fishersci.de/shop/products/polystyrene-24-well-cell-culture-multiwell-plate/10177380#?keyword=24-well |
| Incidin Premium Wipes | Ecolab Healthcare | 100 10 279 | |
| https://www.ecolabhealthcare.de/website/seiten/produkte/flaechendesinfektion/tuecher/incidin_premium_wipes.php Incubadora 25° C | Heraeus Instruments, Hanau, DE | ||
| Incubator 37° C | Heraeus Instruments, Hanau, Microscópio DE | ||
| Helmut Hund, Wetzlar, DE | 4 x lente objetiva, 10 x lente ocular | ||
| Parafilm M | Parafilm | 11772644 | 4 pol. X 125 pés https://www.fishersci.de/shop/products/parafilm-m-laboratory-wrapping-film-2/11772644 |
| Penicilina/Estreptomicina (Pen-Strep) | Capricorn | PS-B | 100x https://www.capricorn-scientific.com/en/shop/penicillin-streptomycin-pen-strep-100x~p1205 |
| ROTI Fair 10x PBS 7.4 | Roth | 1105.1 | https://www.carlroth.com/de/de/fertigloesungen-tabletten-portionsbeutel/rotifair-10x-pbs-7-4/p/1105.1 |
Referências
- Olsen, A., et al. Strongyloidiasis - the most neglected of the neglected tropical diseases. Trans Royal Soc Tropical Med Hygiene. 103 (10), 967-972 (2009).
- Buonfrate, D., et al. The global prevalence of Strongyloides stercoralis infection. Pathogens. 9 (6), 468(2020).
- Dawkins, H. J. S., Grove, D. I. Attempts to establish infections with Strongyloides stercoralis in mice and other laboratory animals. J Helminthol. 56 (1), 23-26 (1982).
- Abraham, D., et al. Strongyloides stercoralis: protective immunity to third-stage larvae inBALB/cByJ mice. Exp Parasitol. 80 (2), 297-307 (1995).
- Breloer, M., Abraham, D. Strongyloides infection in rodents: immune response and immune regulation. Parasitology. 144 (3), 295-315 (2017).
- Breloer, M., Linnemann, L. Strongyloides ratti infection in mice: immune response and immune modulation. Philosophical Trans Royal Society B. 379 (1894), 20220440(2024).
- Dawkins, H. J. S., Grove, D. I., Dunsmore, J. D., Mitchell, G. F. Strongyloides ratti: Susceptibility to infection and resistance to reinfection in inbred strains of mice as assessed by excretion of larvae. Int J Parasitol. 10 (2), 125-129 (1980).
- Ehrens, A., et al. Eosinophils and neutrophils eliminate migrating Strongyloides ratti larvae at the site of infection in the context of extracellular DNA trap formation. Front Immunol. 12, 715766(2021).
- Eschbach, M. L., et al. Strongyloides ratti infection induces transient nematode-specific Th2 response and reciprocal suppression of IFN-γ production in mice. Parasite Immunol. 32 (5), 370-383 (2010).
- Dawkins, H., Muir, G., Grove, D. Histopathological appearances in primary and secondary infections with Strongyloides ratti in mice. Int J Parasitol. 11 (1), 97-103 (1981).
- Tada, I., Mimori, T., Nakai, M. Migration route of Strongyloides ratti in albino rats. Jap J Parasit. 28 (4), 219-227 (1979).
- Reitz, M., et al. Mucosal mast cells are indispensable for the timely termination of Strongyloides ratti infection. Mucosal Immunol. 10 (2), 481-492 (2017).
- Viney, M. E., Lok, J. B. The biology of Strongyloides spp. WormBook. , 1-17 (2018).
- Reitz, M., et al. Interleukin-9 promotes early mast cell-mediated expulsion of Strongyloides ratti but is dispensable for generation of protective memory. Sci Rep. 8 (1), 8636(2018).
- Breloer, M., et al. Cutting edge: The BTLA-HVEM regulatory pathway interferes with protective immunity to intestinal Helminth infection. J Immunol. 194 (4), 1413-1416 (2015).
- Blankenhaus, B., et al. Foxp3+ regulatory T cells delay expulsion of intestinal nematodes by suppression of IL-9-driven mast cell activation in BALB/c but not in C57BL/6 mice. PLoS Pathogens. 10 (2), e1003913(2014).
- Niamatali, S., Nolan, T. J., Schad, G. A. Can Autoinfection be Provoked in the Strongyloides ratt/-infected Gerbil, Meriones unguiculatus. 59 (2), 149-152 (1992).
- Gardner, M. P., Gems, D., Viney, M. E. Extraordinary plasticity in aging in Strongyloides ratti implies a gene-regulatory mechanism of lifespan evolution. Aging Cell. 5 (4), 315-323 (2006).
- Viney, M. E. Developmental switching in the parasitic nematode Strongyloides ratti. Proc Biol Sci. 263 (1367), 201-208 (1996).
- Dawkins, H. J., Thomason, H. J., Grove, D. I. The occurrence of Strongyloides ratti in the tissues of mice after percutaneous infection. J Helminthol. 56 (1), 45-50 (1982).
- Takamure, A. Migration route of Strongyloides venezuelensis in rodents. Int J Parasitol. 25 (8), 907-911 (1995).
- Filbey, K., Bouchery, T., Le Gros, G. The role of ILC 2 in hookworm infection. Parasite Immunol. 40 (2), e12429(2018).
- Allen, J. E., Sutherland, T. E. Host protective roles of type 2 immunity: Parasite killing and tissue repair, flip sides of the same coin. Semin Immunol. 26 (4), 329-340 (2014).
- Dulovic, A., Puller, V., Streit, A. Optimizing culture conditions for free-living stages of the nematode parasite Strongyloides ratti. Exp Parasitol. 168, 25-30 (2016).
- Douglas, B., et al. Transgenic expression of a T cell epitope in Strongyloides ratti reveals that helminth-specific CD4+ T cells constitute both Th2 and Treg populations. PLOS Pathogens. 17 (7), e1009709(2021).
- Vadlamudi, R. S., Chi, D. S., Krishnaswamy, G. Intestinal strongyloidiasis and hyperinfection syndrome. Clin Mol Allergy. 4 (1), 8(2006).
- Viney, M., Kikuchi, T. Strongyloides ratti and S. venezuelensis- rodent models of Strongyloides infection. Parasitology. 144 (3), 285-294 (2017).
- Patton, J. B., et al. Methylprednisolone acetate induces, and Δ7-dafachronic acid suppresses, Strongyloides stercoralis hyperinfection in NSG mice. Proc Natl Acad Sci. 115 (1), 204-209 (2018).
- Reitz, M., Brunn, M. L., Voehringer, D., Breloer, M. Basophils are dispensable for the establishment of protective adaptive immunity against primary and challenge infection with the intestinal helminth parasite Strongyloides ratti. PLOS Neglected Trop Dis. 12 (11), e000699(2018).
- Blankenhaus, B., et al. Strongyloides ratti infection induces expansion of Foxp3+ regulatory T cells that interfere with immune response and parasite clearance in BALB/c Mice. J Immunol. 186 (7), 4295-4305 (2011).
- Hartmann, W., Blankenhaus, B., Brunn, M. L., Meiners, J., Breloer, M. Elucidating different pattern of immunoregulation in BALB/c and C57BL/6 mice and their F1 progeny. Sci Rep. 11 (1), 1536(2021).
- Meiners, J., et al. IL-33 facilitates rapid expulsion of the parasitic nematode Strongyloides ratti from the intestine via ILC2- and IL-9-driven mast cell activation. PLOS Pathogens. 16 (12), e1009121(2020).
Reimpressões e permissões
