Esse protocolo fornece uma descrição abrangente de um método para o registro simultâneo de sinais de cálcio de neurônios e astrócitos em múltiplas regiões cerebrais relacionadas à memória e demonstra sua aplicação durante um paradigma de aprendizagem e comportamento da memória.
É necessária uma assinatura do JoVE para visualizar este conteúdo. Faça login ou inicie seu teste gratuito.
Artigo de método
Um método de fotometria de fibra bicolorida para registrar a atividade dos neurônios dos astrócitos em múltiplas regiões cerebrais durante comportamentos de aprendizagem e memória
Neste artigo
Resumo
Resumo
O aprendizado e a memória dependem criticamente da coordenação entre neurônios e astrócitos em regiões cerebrais distribuídas. Os astrócitos modulam a transmissão sináptica e a excitabilidade neuronal, contribuindo assim para a codificação e consolidação de informações dentro dos circuitos relacionados à memória. As correlações intra e inter-regionais entre astrócitos e neurônios são cruciais para entender a memória e os distúrbios cognitivos. No entanto, o monitoramento simultâneo da atividade astrocítica e neuronal em múltiplas regiões durante o comportamento da memória continua sendo tecnicamente desafiador. Aqui, é apresentado um método que facilita o registro concomitante desses sinais de cálcio de astrócitos e neurônios em várias regiões relacionadas à memória. Essa estratégia combina indicadores de cálcio geneticamente codificados (GECIs) específicos de tipo celular, um sistema de fotometria de fibra multicanal e acompanhamento comportamental sincronizado para alcançar o monitoramento em tempo real da atividade neuronal e astrocítica no córtex pré-frontal medial (mPFC), região CA1 do hipocampo e córtex entorhinal medial (MEC). Resultados representativos demonstram dinâmica coordenada do cálcio entre regiões e tipos celulares durante a tarefa de reconhecimento de objetos. Esse método fornece uma estrutura experimental reproduzível e eficiente para investigar as interações astrócito-neurônio subjacentes aos processos de aprendizagem e memória.
Introdução
Aprendizagem e memória são processos cognitivos fundamentais que envolvem adquirir, armazenar e recuperar informações, cruciais para a formação de comportamentos adaptativos. Esses processos sustentam uma variedade de funções complexas, como navegação espacial, reconhecimento de objetos, associação contextual e tomada de decisões. Além disso, doenças disfuncionais cognitivas, incluindo Alzheimer, doenças cognitivas relacionadas à idade e lesão cerebral traumática, apresentam anormalidades na formação damemória 1,2,3. Portanto, uma compreensão abrangente da base neural da aprendizagem e da memória exige elucidar a interação dinâmica entre diferentes tipos celulares. Essa interação ocorre dentro e entre essas regiões durante a codificação e recuperação da informação.
Tradicionalmente, acreditava-se que a formação da memória era predominantemente determinada pela atividade neuronal. No entanto, pesquisas extensas demonstraram que os astrócitos regulam significativamente a codificação, consolidação e recuperação da informação. Eles conseguem isso modulando a transmissão sináptica, regulando a excitabilidade neuronal, liberando gliotransmissores e fornecendo suporte metabólico 4,5,6,7,8. Os astrócitos interagem dinamicamente com os neurônios, e a comunicação bidirecional é coletivamente chamada de "rede astrócito-neurônio"9,10,11. Portanto, compreender as interações coordenadas entre astrócitos e neurônios é crucial para compreender os mecanismos celulares e de rede de aprendizagem e memória.
Aprendizagem e memória dependem da integração dinâmica de informações em múltiplas regiões cerebrais. As interações entre astrócitos e neurônios não se limitam a microcircuitos locais, mas se estendem por regiões cerebrais distribuídas implicadas na memória, incluindo o córtex pré-frontal medial (mPFC), a região CA1 do hipocampo e o córtex entorinal medial (MEC). A mPFC tem sido implicada na consolidação da memória e na regulação da memória de longo prazo; CA1 é central para a codificação e reativação episódica da memória; e o MEC serve como um centro para integração de informações espaciais e multimodais, fornecendo entradas essenciais para o circuito hipocampo-cortical 12,13,14,15,16. Evidências acumuladas sugerem que os astrócitos nessas regiões participam de dinâmicas coordenadas entre regiões com neurônios, desempenhando papéis-chave no fluxo de informação e nas transições de estado durante o aprendizado e a memória17,18.
Embora o reconhecimento da função sinérgica de astrócitos e neurônios no processamento da memória tenha aumentado, um desafio técnico significativo permanece em monitorar simultaneamente a atividade do cálcio tanto em astrócitos quanto em neurônios em múltiplas regiões cerebrais associadas à memória durante o comportamento de animais em movimento livre. A imagem de dois fótons oferece alta resolução espacial, mas é limitada pela profundidade e fixação da cabeça19,20; a eletrofisiologia multicanal permite registros de alta resolução temporal, mas carece de especificidade de tipo celular e não consegue distinguir sinais de cálcio astrocíticos. Assim, foi desenvolvido um método que permite o registro simultâneo de sinais de cálcio astrocítico e neuronal em múltiplas regiões cerebrais relacionadas à memória em camundongos em movimento livre. Indicadores de cálcio geneticamente codificados (GECIs) relatam mudanças conformacionais intracelulares dependentes de Ca2+ a Ca 2+ em CaM/M13 que modulam a fluorescência dos fluoróforos geneticamente codificados. Abordagens GECI de dupla cor utilizam indicadores espectralmente separáveis, como sensores de cálcio verde e vermelho, juntamente com promotores específicos de tipo celular para permitir o registro simultâneo da atividade de Ca2+ astrocítica e neuronal dentro da mesma região cerebral. Ao combinar GECIs de dupla cor específicos para tipo celular (GCaMP6f e jRGECO1a) e um sistema de fotometria de fibras multicanal, foi alcançado o monitoramento em tempo real da atividade de cálcio em neurônios e astrócitos em mPFC, CA1 e MEC. Além disso, tomando como exemplo a nova tarefa de reconhecimento de objetos (NOR), foi demonstrada a dinâmica coordenada do cálcio entre regiões e tipos celulares do cérebro em tarefas de aprendizagem. Esse método é um protocolo reproduzível, confiável e escalável para investigar a atividade do conjunto de neurônios e astrócitos em regiões cerebrais durante o aprendizado e a memória.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Protocolo
Todos os experimentos com animais foram aprovados pelo Comitê de Cuidado e Uso Animal da Terceira Universidade Médica Militar (Aprovação de Ética Animal nº: AMUWEC20230126) e foram realizados de acordo com o Guia da Terceira Universidade Médica Militar para o Cuidado e Uso de Animais de Laboratório, garantindo o tratamento ético dos animais. Os reagentes e os equipamentos utilizados estão listados na Tabela de Materiais.
Para garantir a segurança do experimentador, todos os procedimentos experimentais envolvendo animais vivos e vetores virais foram realizados usando roupas de proteção, luvas estéreis e máscara. Todos os instrumentos foram completamente esterilizados antes do uso, e superfícies experimentais foram limpas com etanol a 70% antes e depois de cada experimento. Os materiais restantes foram descartados de acordo com as regulamentações institucionais de descarte de resíduos. Todos os reagentes e equipamentos eram manuseados para evitar contato direto com pele ou olhos.
1. Preparação de animais e manuseio viral
- Camundongos C57BL/6 de 4 meses (ambos os sexos) em um ciclo de 12 horas claro/escuro com acesso ad libitum a comida e água.
- Descongelar aliquotas de AAV5-GfaABC1D-GCaMP6f ou AAV9-hSyn-jRGECO1a no gelo a 0–4 °C imediatamente antes do uso.
- Conecte uma micropipeta de vidro puxado (diâmetro da ponta 15–25 μm) a uma seringa e monte-a em uma bomba de microinjeção.
- Coloque o rato em uma plataforma cirúrgica estéril e desinfete todos os instrumentos com 70% de etanol.
2. Injeção viral estereotáxica
NOTA: Uma estratégia de injeção viral em duas etapas foi utilizada neste estudo. Sob as condições experimentais atuais, essa estratégia pode ser implementada de forma confiável e estável, e o padrão de expressão resultante é consistente com o perfil esperado de promotor específico para o tipo celular.
- Primeira cirurgia: AAV5-GfaABC1D-GCaMP6f (Título: 7 ×10 12 vg/mL) para astrócitos
- Induza anestesia com 3% de isoflurano em uma câmara, depois mantenha a anestesia com 0,8%–1,2% de isoflurano via cone nasal (seguindo protocolos institucionalmente aprovados).
- Mantenha a temperatura corporal entre 37–38 °C usando uma bolsa térmica e aplique pomada oftálmica para evitar a dessecação da córnea.
- Remova os pelos do couro cabeludo e desinfete bem a pele. Faça uma incisão na linha média para revelar a superfície do crânio.
- Coloque a cabeça no instrumento estereotáxico, ajuste os pontos bregma e lambda para o mesmo plano horizontal e ajuste ainda mais a estrutura para garantir que os pontos laterais de 2 mm em relação ao bregma em ambos os lados fiquem nivelados.
- Identifique coordenadas estereotáxicas usando um atlas cerebral de camundongo, tendo o bregma como ponto de referência.
mPFC: AP +1,8 mm, ML +0,3 mm, DV −3,0 mm
CA1: AP −2,1 mm, ML +1,6 mm, DV −1,2 mm
MEC: AP −4,5 mm, ML −2,9 mm, DV −2,0 mm - Fure uma craniotomia circular de 0,6 mm (diâmetro) acima de cada local, mantenha a dura-máter úmida e intacta após abrir o crânio.
- Encha o vírus GCaMP6f na seringa a 5 nL/s e instale a seringa no braço estereotáxico.
- Abaixe a pipeta devagar, injete 150 nL a 0,6 nL/s, segure por 8 minutos e depois retire a 0,1 mm/s. Repita esse procedimento para todas as regiões.
- Fele a incisão com adesivo de tecido e deixe 2 semanas para a expressão viral.
- Cirurgia secundária: injeção de neurônios AAV9-hSyn-jRGECO1a (Título: 1 × 10¹³ vg/mL).
NOTA: A cirurgia foi realizada 14 dias após a primeira injeção do vírus.- Induzir e manter a anestesia conforme descrito acima (Passo 2.1.1).
- Mantenha a temperatura corporal e proteja os olhos.
- Reabra o couro cabeludo ao longo da linha média e nivele o crânio.
NOTA: O crânio foi nivelado alinhando o bregma e o lambda no mesmo plano horizontal. - Detritos de tecido transparentes nos mesmos locais das janelas de craniotomia da primeira cirurgia, expondo a dura-máter intacta.
- Ajuste as coordenadas usando bregma como ponto de referência, realize injeções estritamente nas mesmas coordenadas e profundidades descritas anteriormente.
- Preencha o vírus jRGECO1a a 5 nL/s e instale a seringa.
- Injete 150 nL a 0,6 nL/s, mantenha por 8 minutos e retire lentamente. Repita esse procedimento para todas as regiões e permita 3 semanas para a expressão viral.
3. Implantação de sonda de fotometria de fibra multi-site
NOTA: Realize imediatamente após a injeção de jRGECO1a.
- Instale a virula de fibra óptica em um suporte estereotáxico.
- Posicione a fibra (1,25 mm de ferrulha, núcleo de 200 μm, NA 0,39) 100–150 μm acima da profundidade de injeção viral:
mPFC: AP +1,8 mm, ML +0,3 mm, DV −2,9 mm
CA1: AP −2,1 mm, ML +1,6 mm, DV −1,1 mm
MEC: AP −4,5 mm, ML −2,9 mm, DV −1,9 mm - Sele a craniotomia com adesivo de tecido e fixe a virula com cimento dentário.
4. Gravação de fotometria de fibra multicanal
NOTA: Para garantir a estabilidade e expressão completa dos dois indicadores de cálcio, foi realizada fotometria de fibra óptica multicanal três semanas após a segunda injeção do vírus para registro.
- Habitue os camundongos ao sistema de fibras e faça a arena uma vez por dia durante três dias.
- Após 3 semanas de expressão viral, anestesie brevemente o camundongo com isoflurano a 3%.
- Conecte uma extremidade da fibra óptica agrupada ao sistema de aquisição de fotometria da fibra.
- Ajuste a luz de excitação para dois comprimentos de onda: 470 nm e 560 nm.
- Defina a frequência de aquisição para 30 Hz.
- Conecte os três ramos na outra extremidade da fibra agrupada a três regiões cerebrais: Canal 1 para mPFC, Canal 2 para CA1, Canal 3 para MEC.
- Coloque os camundongos em uma área aberta com um comprimento lateral de 50 cm e permita a exploração livre.
- Após 10 minutos, desconecte a fibra e leve os ratos de volta para suas gaiolas em casa.
- Gravação de fotometria de fibra durante a Tarefa de Reconhecimento de Objetos Inovadores
NOTA: Limpe a plataforma e os objetos com etanol 75% antes de cada teste.- Coloque dois objetos idênticos em quadrantes diagonalmente opostos.
- Conecte o feixe de fibras em um estado levemente anestesiado.
- Deixe os ratos explorarem objetos por 10 minutos e depois devolva-os às gaiolas sem remover a fibra.
- Realize gravação de fotometria de fibras durante o novo teste de reconhecimento de objetos em camundongos.
NOTA: Exclua o julgamento se artefatos de movimento forem excessivos para dados de registro estáveis.- Ajuste os lasers de estimulação:
470 nm para GCaMP6f (astrócitos)
560 nm para jRGECO1a (neurônios) - Grave sinais de cálcio a 30 Hz, sincronizados com o rastreamento de vídeo a 30 Hz. Posicione um diodo laser dentro do quadro de vídeo (fora do campo visual do mouse) ao iniciar a aquisição para servir como marcador temporal.
- Dez minutos após a fase de aprendizado, substitua um objeto por um novo e coloque o mouse de volta por 10 minutos de exploração enquanto grava.
- Desconecte a fibra com uma virula cerâmica e traga os ratos de volta para as gaiolas de casa.
- Ajuste os lasers de estimulação:
5. Processamento e análise de dados
NOTA: Classifique um transitório de Ca2⁺ em gravações de fotometria de fibra como um sinal genuíno somente se sua amplitude exceder três vezes o desvio padrão da bandade ruído 21,22,23. Protocolo24:D efine do Teste de Reconhecimento de Objetos (NORT) como eventos em que camundongos fazem contato físico com o objeto, seja cutucando-o ou cheirando-o com o nariz. Para quantificação do sinal, defina a linha de base como o sinal médio durante a janela de -2 a -1 s (em relação ao início da interação em t=0). Defina a janela de análise peri-evento para que vá de 2 s antes até 4 s após o início de cada interação com o objeto, seguindo protocolos estabelecidos.
- Importar traços de fluorescência para o software de análise.
NOTA: O processamento de sinais de fluorescência foi realizado usando software de análise proprietário, seguindo fluxos de trabalho padrão de fotometria de fibra. O software em si não é de código aberto e não pode ser compartilhado. Para considerações metodológicas gerais sobre processamento de sinais de fotometria de fibra, veja os relatórios metodológicosrecentes 25. - Realize a correção de linha de base e alinhe os sinais de cálcio ao início da tarefa NOR usando vídeo sincronizado.
- Converter ΔF/F para escores Z para comparações inter-regionais e de dupla cor9:
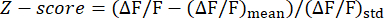
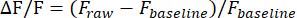
NOTA:
(ΔF/F)média: média de ΔF/F.
(ΔF/F)Padrão: desvio padrão de ΔF/F.
F raw: intensidade de fluorescência bruta.
Linha de base F: intensidade de fluorescência de base (média sobre o período de base predefinido). - Quantifique métricas como área sob a curva (AUC) para as respostas de astrócitos e cálcio neuronal durante a exploração de objetos novos versus familiares.
6. Verificação histológica após registro
- Anestesie o camundongo com uma overdose de pentobarbital até que a perda completa dos reflexos seja confirmada.
- Realize perfusão transcárdica com soro fisiológico normal, seguida de 4% de paraformaldeído (PFA).
- Dissecar o cérebro cuidadosamente e fixá-lo em 4% de PFA a 4 °C por 12–24 horas.
- Transfira o cérebro para 30% de sacarose em PBS a 4 °C até que o tecido afunde para crioproteção.
- Imerga o cérebro em um composto de temperatura de corte ideal, congele-o e corte as seções coronais (40 μm de espessura) usando um criostato.
- Realize coloração por imunofluorescência para verificar a expressão viral e a colocação das fibras.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Resultados
Com base no protocolo descrito acima, foi realizada uma gravação de fibra multi-local em duas cores, direcionada ao mPFC, CA1 e MEC de camundongos C57 de 4 meses de idade. No presente estudo, implementamos uma estratégia de injeção viral em duas etapas para introduzir sequencialmente os dois indicadores. Sob nossas condições experimentais, essa estratégia pode ser implementada de forma confiável e estável, e o padrão de expressão resultante é consistente com o perfil esperado de promotor...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Discussão
Neste estudo, foi desenvolvido um método para o registro simultâneo da atividade calcinal astrocítica e neuronal em múltiplas áreas cerebrais relevantes para a memória de camundongos durante comportamentos de aprendizagem e relacionados à memória. Diferente da imagem de regiãoúnica 28 ou das técnicas eletrofisiológicas, a gravação síncrona multi-região captura dinâmicas coordenadas através de redes de memória distribuída, provando assim ser uma ferramenta poderosa...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Divulgações
Nenhum conflito de interesse, financeiro ou de outra natureza, é declarado pelos autores.
Agradecimentos
A Sra. Jia Lou é reconhecida por sua assistência técnica, e a Sai Te Xin Si (ferramenta de IA) é reconhecida por sua assistência na edição de idiomas. Esse trabalho recebeu apoio da Fundação Nacional de Ciências Naturais da China (bolsa nº 82371485, 82588301, 32400932) e da Fundação de Ciências Naturais de Chongqing, China (bolsa nº CSTB2024NSCQ-JQX0024, 2024NSCQ-MSX1104).
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| 75 RN 5uL SYR W/O NEEDLE | Hamilton | 7634-01 | Conecta-se à micropipeta para injeção viral |
| AAV5-GfaABC1D-GCaMP6f | Addgene | 52925 | Expressão de GCaMP6f específica de astrócitos |
| AAV9-hSyn-NES-jRGECO1a | Addgene | 100854 | Indicador de cálcio neuroespecífico com deslocamento para vermelho |
| Bepanthen Eye and Nasal Ointment | Bepanthen | MA0008 | Previne a secagem da córnea |
| Bundled optical fibers with ceramic sleeves | Inper | BFO-1x3-W1.25 | Conecta as fibras implantadas ao sistema de fotometria |
| Camera | Mind Vision | MV-SUA502C-T | Vídeos comportamentais sincronizados com sinais de cálcio |
| Dental cement | NISSIN | Super-Bond C&B | Usado para fixar ferrules no crânio |
| Ferrule holder | Inper | SCH-1.25 | Mantém a ferrule cerâmica firmemente durante a implantação |
| Isoflurane vaporizer & Anesthesia system | RWD Life Science | R510-29 | Para indução e manutenção da anestesia |
| Multi-channel fiber photometry system | RWD Life Science | R821 | Para gravação de duas cores |
| OFRS software | RWD Life Science | Analisa sinais de cálcio registrados | |
| Optical fibers | RWD Life Science | R-FOC-BL200C-39N | Implantadas na região cerebral alvo |
| Stereotaxic instrument | RWD Life Science | 68801 | Usado para injeção viral precisa e implantação de fibras |
| Syringe pump | KD Scientific | 788130 | Fornece vírus em taxas controladas |
| Tissue glue | 3M Animal Care Products | 1469SB Vetbond | Para fechamento de incisões |
Referências
- Eichenbaum, H. Memory: Organization and Control. Annu Rev Psychol. 68, 19-45 (2017).
- Kamatham, P. T., Shukla, R., Khatri, D. K., Vora, L. K. Pathogenesis, diagnostics, and therapeutics for Alzheimer’s disease: Breaking the memory barrier. Ageing Res Rev. 101, 102481(2024).
- Graff-Radford, J., et al. New insights into atypical Alzheimer’s disease in the era of biomarkers. Lancet Neurol. 20 (3), 222-234 (2021).
- Araque, A., et al. Gliotransmitters travel in time and space. Neuron. 81 (4), 728-739 (2014).
- Khakh, B. S., Sofroniew, M. V. Diversity of astrocyte functions and phenotypes in neural circuits. Nat Neurosci. 18 (7), 942-952 (2015).
- Di Castro, M. A., et al. Local Ca2+ detection and modulation of synaptic release by astrocytes. Nat Neurosci. 14 (10), 1276-1284 (2011).
- Savtchouk, I., Volterra, A. Gliotransmission: Beyond Black-and-White. J Neurosci. 38 (1), 14-25 (2018).
- Perea, G., Navarrete, M., Araque, A. Tripartite synapses: Astrocytes process and control synaptic information. Trends Neurosci. 32 (8), 421-431 (2009).
- Wang, H., et al. Mapping multi-regional functional connectivity of astrocyte-neuronal networks during behaviors. Neurophotonics. 11 (4), 045010(2024).
- Lines, J., Martin, E. D., Kofuji, P., Aguilar, J., Araque, A. Astrocytes modulate sensory-evoked neuronal network activity. Nat Commun. 11 (1), 3689(2020).
- Lines, J., et al. Astrocyte-neuronal network interplay is disrupted in Alzheimer’s disease mice. Glia. 70 (2), 368-378 (2022).
- Brincat, S. L., Miller, E. K. Frequency-specific hippocampal-prefrontal interactions during associative learning. Nat Neurosci. 18 (4), 576-581 (2015).
- DeNardo, L. A., et al. Temporal evolution of cortical ensembles promoting remote memory retrieval. Nat Neurosci. 22 (3), 460-469 (2019).
- Kitamura, T., et al. Engrams and circuits crucial for systems consolidation of a memory. Science. 356 (6333), 73-78 (2017).
- Gonzalo Cogno, S., et al. Minute-scale oscillatory sequences in medial entorhinal cortex. Nature. 625 (7994), 338-344 (2024).
- Roudi, Y., Moser, E. I. Grid cells in an inhibitory network. Nat Neurosci. 17 (5), 639-641 (2014).
- Williamson, M. R., et al. Learning-associated astrocyte ensembles regulate memory recall. Nature. 637 (8045), 478-486 (2025).
- Curreli, S., Bonato, J., Romanzi, S., Panzeri, S., Fellin, T. Complementary encoding of spatial information in hippocampal astrocytes. PLoS Biol. 20 (3), e3001530(2022).
- Oheim, M., Michael, D. J., Geisbauer, M., Madsen, D., Chow, R. H. Principles of two-photon excitation fluorescence microscopy and other nonlinear imaging approaches. Adv Drug Deliv Rev. 58 (7), 788-808 (2006).
- Helmchen, F., Denk, W. Deep tissue two-photon microscopy. Nat Methods. 2 (12), 932-940 (2005).
- Zhang, K., Chen, X. Sensory response in host and engrafted astrocytes of adult brain in vivo. Glia. 65 (12), 1867-1884 (2017).
- Qin, H., et al. A visual-cue-dependent memory circuit for place navigation. Neuron. 99 (1), 47-55.e44 (2018).
- Yao, J., et al. A corticopontine circuit for initiation of urination. Nat Neurosci. 21 (11), 1541-1550 (2018).
- Mirzayi, P., Shobeiri, P., Kalantari, A., Perry, G., Rezaei, N. Optogenetics: Implications for Alzheimer’s disease research and therapy. Mol Brain. 15 (1), 20(2022).
- Simpson, E. H., et al. Lights, fiber, action! A primer on in vivo fiber photometry. Neuron. 112 (5), 718-739 (2024).
- Chen, T. W., et al. Ultrasensitive fluorescent proteins for imaging neuronal activity. Nature. 499 (7458), 295-300 (2013).
- Dana, H., et al. Sensitive red protein calcium indicators for imaging neural activity. Elife. 5, 12727(2016).
- Serikov, A., Martsishevska, I., Shin, W., Kim, J. Protocol for in vivo dual-color fiber photometry in the mouse thalamus. STAR Protoc. 5 (2), 102931(2024).
- Gilbert, C. D. Horizontal integration and cortical dynamics. Neuron. 9 (1), 1-13 (1992).
- de Pasquale, F., Corbetta, M., Betti, V., Della Penna, S. Cortical cores in network dynamics. Neuroimage. 180 (Pt B), 370-382 (2018).
- Suthard, R. L., et al. Engram reactivation mimics cellular signatures of fear. Cell Rep. 44 (10), 116409(2025).
- Sandoval, K. C., Rychlik, J., Choe, K. Y. Calcium dynamics in hypothalamic paraventricular oxytocin neurons and astrocytes associated with social and stress stimuli. eNeuro. 12 (5), (2025).
- Srinivasan, R., et al. Ca(2+) signaling in astrocytes from Ip3r2(-/-) mice in brain slices and during startle responses in vivo. Nat Neurosci. 18 (5), 708-717 (2015).
- Spellman, T., et al. Hippocampal-prefrontal input supports spatial encoding in working memory. Nature. 522 (7556), 309-314 (2015).
- Hu, W., et al. Optogenetics sheds new light on tissue engineering and regenerative medicine. Biomaterials. 227, 119546(2020).
- Liddelow, S. A., et al. Neurotoxic reactive astrocytes are induced by activated microglia. Nature. 541 (7638), 481-487 (2017).
- Shah, D., et al. Astrocyte calcium dysfunction causes early network hyperactivity in Alzheimer’s disease. Cell Rep. 40 (8), 111280(2022).
- Jiménez-Balado, J., Eich, T. S. GABAergic dysfunction, neural network hyperactivity and memory impairments in human aging and Alzheimer’s disease. Semin Cell Dev Biol. 116, 146-159 (2021).
- Lin, R., Guo, Y., Jiang, W., Wang, Y. Advanced technologies for the study of neuronal cross-organ regulation: a narrative review. Adv Technol Neurosci. 1 (2), 166-176 (2024).
- Reitman, M. E., et al. Norepinephrine links astrocytic activity to regulation of cortical state. Nat Neurosci. 26 (4), 579-593 (2023).
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Reimpressões e permissões
