Este protocolo fornece um método reprodutível para gerar iPSCs humanas aneuploides livres de integração a partir de células primárias de líquido amniótico utilizando eletroporação com plasmídeo episomal. Ele otimiza as condições de entrega e cultivo para estabilizar as anormalidades cromossômicas, oferecendo uma plataforma prática para criar modelos específicos de doenças para pesquisas subsequentes e aplicações clínicas.
Artigo de método
Geração de Células-Tronco Pluripotentes Induzidas Humanas Aneuploides a Partir de Células Primárias do Líquido Amniótico via Eletroporação por Plasmídeo Episomal
Neste artigo
Resumo
Resumo
A geração de células-tronco pluripotentes induzidas (iPSCs) específicas de pacientes a partir de células do líquido amniótico (AFCs) portadoras de aneuploidias cromossômicas definidas oferece uma plataforma poderosa para modelar distúrbios genéticos. No entanto, o estabelecimento de um protocolo confiável e reprodutível de reprogramação para AFCs aneuploides permanece tecnicamente desafiador devido à instabilidade genômica intrínseca e à capacidade proliferativa variável dessas células. Aqui, apresentamos um método abrangente e não integrativo para gerar iPSCs humanas aneuploides a partir de AFCs primárias utilizando eletroporação com plasmídeos episomais. Este protocolo detalha todo o fluxo de trabalho, abrangendo o descongelamento e expansão celular com uma estratégia gradual de adaptação ao meio, além da entrega otimizada de plasmídeos via sistema de eletroporação, cultura pós-eletroporação sequencial com mudanças de meio direcionadas à transição mesenquimal para epitelial (MET) e seleção mecânica de colônias com base em critérios morfológicos definidos. Descrevemos ainda procedimentos de validação, incluindo coloração por imunofluorescência para marcadores centrais de pluripotência, análise cariotípica por bandamento G para confirmar a manutenção do cariótipo aneuploide e verificação da eliminação do vetor episomal por PCR. Este protocolo livre de camada de alimentação (feeder-free) e livre de integração gera linhagens de iPSCs aneuploides adequadas para modelagem de doenças, triagem de fármacos e estudos de biologia cromossômica.
Introdução
O advento da tecnologia de células-tronco pluripotentes induzidas transformou a medicina regenerativa, a modelagem de doenças e a descoberta de fármacos, ao permitir a geração de células pluripotentes específicas de pacientes sem os dilemas éticos associados às células-tronco embrionárias humanas (hESCs). A base conceitual do reprogramamento celular surgiu da demonstração de transferência nuclear de células somáticas por Gurdon1, seguida pelo estabelecimento das células-tronco embrionárias2,3,4 e, finalmente, pelo desenvolvimento da pluripotência induzida5 por meio da expressão ectópica de OCT4, SOX2, KLF4 e c-MYC. Desde então, a tecnologia de iPSC tornou-se uma plataforma indispensável para investigar o desenvolvimento humano, distúrbios genéticos e medicina de precisão. Os primeiros métodos de reprogramamento utilizavam vetores retrovirais ou lentivirais, mas os riscos associados à integração limitaram sua aplicação clínica. Consequentemente, o desenvolvimento de métodos de reprogramamento livres de integração tornou-se uma prioridade para a tradução clínica. Esses métodos incluem o uso do vírus Sendai6, mRNA sintético7, vetores episomais baseados no mecanismo oriP/EBNA1 (antígeno nuclear de Epstein-Barr-1)8 e reprogramamento químico9,10,11,12 utilizando apenas compostos de pequenas moléculas.
A aneuploidia é a principal causa de aborto espontâneo e defeitos congênitos em humanos. Compreender os mecanismos celulares e moleculares subjacentes às anomalias do desenvolvimento relacionadas à aneuploidia exige modelos celulares apropriados que recapitulem fielmente o contexto genético dessas condições. As células do líquido amniótico (CLA) representam um material inicial atrativo e eficiente para a geração de iPSCs específicas do paciente13,14,15, particularmente no contexto de distúrbios genéticos diagnosticados pré-natalmente16,17. O líquido amniótico residual obtido durante a amniocentese de rotina permite o acesso a células derivadas do feto sem a necessidade de biópsia invasiva adicional do tecido após o nascimento. Em comparação com células somáticas adultas, as CLA geralmente apresentam maior capacidade proliferativa, telômeros mais longos, menor carga mutacional ambiental acumulada e maior plasticidade de desenvolvimento, características que facilitam a reprogramação celular18,19. De forma importante, as CLA preservam fielmente a constituição cromossômica do feto em desenvolvimento, tornando-se uma fonte ideal para o estabelecimento de modelos de iPSCs específicos para doenças com anomalias cromossômicas, incluindo trissomia 2120, trissomia 1821, síndrome de Turner e síndrome de Klinefelter22.
Este protocolo fornece um guia abrangente para a geração de iPSCs livres de integração a partir de células de líquido amniótico aneuploides utilizando vetores episomais. O método inclui procedimentos detalhados para isolamento celular, reprogramação, seleção de clones e caracterização. Em comparação com outros métodos de reprogramação livres de integração, o sistema de plasmídeos episomais oferece um equilíbrio prático entre segurança genômica, simplicidade técnica e custo-efetividade, tornando-o particularmente adequado para uso rotineiro em laboratório e aplicações de biobancos em larga escala. O protocolo aplica-se tanto a CAFs criopreservadas provenientes de biobancos estabelecidos quanto a amostras frescas residuais de líquido amniótico obtidas durante diagnóstico pré-natal de rotina. Embora as eficiências de reprogramação episomal relatadas para CAFs sejam relativamente baixas, e possa ocorrer recuperação cromossômica espontânea durante a reprogramação ou cultivo prolongado, especialmente em certas aneuploidias, o fluxo de trabalho é facilmente aplicável ao estabelecimento de biobancos de iPSCs específicos para doenças, estudos de biologia cromossômica e desenvolvimento humano inicial, e diferenciação posterior em tipos celulares linhagem-específicos. Esta abordagem é particularmente adequada para gerar linhagens de iPSCs livres de integração e clinicamente relevantes a partir de amostras pré-natais, para modelagem de doenças e estudos mecanicistas de anomalias cromossômicas.
Protocolo
Todos os procedimentos envolvendo amostras de líquido amniótico humano foram conduzidos de acordo com a Declaração de Helsinque e aprovados pelo Comitê de Ética em Pesquisa com Seres Humanos (IRB) do Terceiro Hospital da Universidade de Pequim (Protocolo nº M2023406). As amostras com aneuploidia foram obtidas do Biobanco do Centro de Medicina Reprodutiva do Terceiro Hospital da Universidade de Pequim, um repositório clínico certificado pelo Estado, especializado em recursos humanos relacionados ao desenvolvimento e à reprodução. Esses espécimes consistem em líquido amniótico residual originalmente coletado durante amniocentese de rotina para diagnóstico pré-natal clínico, que de outra forma teria sido descartado. O consentimento informado por escrito foi obtido de todos os doadores antes da coleta, autorizando expressamente o armazenamento das amostras residuais no Biobanco e seu uso posterior para pesquisa. Todas as amostras foram rigorosamente anonimizadas para proteger a privacidade dos pacientes. Foram selecionadas amostras com cariótipos de aneuploidia confirmados por meio de análise clínica de bandas G, incluindo trissomia 21 (síndrome de Down, N = 2), trissomia 18 (síndrome de Edwards, N = 1), monossomia X (síndrome de Turner, N = 1) e síndrome de Klinefelter (N = 2), para a indução de iPSCs. As informações detalhadas sobre as linhagens celulares com aneuploidia utilizadas na reprogramação estão resumidas na Tabela 1.
1. Descongelamento e cultura primária de células de líquido amniótico biobancadas
OBSERVAÇÃO: Esta seção detalha o procedimento padronizado para recuperação e isolamento de CAFs aneuploides do Biobanco. As células cultivadas são expandidas para obter populações suficientes para o subsequente reprogramamento episomal.
- Procedimento padronizado de descongelação
- Equilíbrio do meio: Aqueça o meio completo AmnioType-1 a 37 °C antes do uso.
- Recuperação da amostra: Retire um criotubo contendo aproximadamente 300.000 CAFs criopreservadas em meio de congelamento celular do armazenamento em nitrogênio líquido. Transfira imediatamente o tubo para o laboratório sobre gelo seco para evitar descongelação prematura.
- Descongelação rápida: Mergulhe a metade inferior do criotubo em banho-maria a 37 °C e agite suavemente. Interrompa o processo de descongelação quando restar apenas um pequeno cristal de gelo visível.
NOTA: Evite a descongelação completa. Isso evita que as células sejam expostas aos efeitos tóxicos do DMSO aquecido. - Diluição: Em capela de fluxo laminar, transfira a suspensão celular gota a gota para um tubo cônico de 15 mL contendo 4 mL de meio AmnioType-1 pré-aquecido.
- Centrifugação: Centrifugue a suspensão a 300 × g durante 5 min à temperatura ambiente.
- Plaqueamento: Aspire o sobrenadante e ressuspenda suavemente o pellet celular em 2 mL de meio fresco AmnioType-1. Transfira as células para uma placa de 6 poços ou frasco T25 previamente recoberto com gelatina a 0,1% numa densidade de 30.000–50.000 células/cm².
- Incubação inicial: Coloque as células em incubadora umidificada a 37 °C e 5% CO2. Examine os frascos ao microscópio invertido de contraste de fase no Dia 3 após o plaqueamento para confirmar a adesão inicial das células.
- Expansão e transição de meio de CAFs primárias
- Preparação do meio de cultura de fibroblastos (FC): Para preparar 100 mL de meio de cultura de fibroblastos caseiro, combine 82 mL de DMEM de alta glicose com 15 mL de Soro Bovino Fetal (FBS). Adicione 1 mL de GlutaMAX 100×, 1 mL de Ácidos Aminoácidos Não Essenciais (NEAA) 100× e 1 mL de Penicilina-Estreptomicina (P/S). Filtre o meio por meio de sistema de filtração a vácuo com membrana de 0,22 µm em ambiente estéril.
- Durante a expansão, altere gradualmente o meio das CAFs a cada 3 dias, partindo do meio clínico especializado (AmnioType-1) para um sistema padronizado de cultura de fibroblastos (meio FC, caseiro), a fim de garantir estabilidade metabólica antes da eletroporação.
- Realize uma transição gradual do meio:
- Dia 3 (75% AmnioType-1: 25% FC): Aspire o meio AmnioType-1 existente. Adicione um meio misto composto por 75% de AmnioType-1 e 25% de meio FC.
- Dia 6 (50% AmnioType-1: 50% FC): Aspire e substitua por uma proporção 1:1 de meio AmnioType-1 e meio FC.
- Dia 9 (25% AmnioType-1: 75% FC): Aspire e substitua por uma mistura de 25% de AmnioType-1 e 75% de meio FC.
- Dia 12 (100% FC): Aspire e mude para meio FC a 100%.
NOTA: Essa adaptação gradual reduz o choque celular e evita a dessanexão de clones aneuploides sensíveis.
- Realize uma transição gradual do meio:
- Observe diariamente a morfologia das colônias. O líquido amniótico contém uma população heterogênea de células. Em microscopia de contraste de fase, identifique os dois tipos principais: tipo F (semelhante a fibroblastos, em forma de fuso) e tipo E (semelhante a epitélio, arredondadas). A subpopulação mesenquimal com morfologia de fibroblasto é a mais adequada para reprogramação.
NOTA: Monitore atentamente as células quanto a sinais de senescência.
- Subcultivo de CAFs primárias
- Quando as células atingirem 80%–90% de confluência (geralmente entre o Dia 10–14), aspire o meio do frasco e lave uma vez suavemente com 2 mL de solução salina tamponada com fosfato de Dulbecco (DPBS) sem Ca²⁺/Mg²⁺.
- Adicione 1 mL de solução de Tripsina-EDTA 0,25% para um único poço de uma placa de 6 poços, cobrindo a monocamada celular.
- Incube a 37 °C por 4–5 min até que as células se desprendam completamente.
- Neutralize o reagente de dissociação adicionando 3 mL de meio FC. Transfira a suspensão para um tubo cônico de 15 mL.
- Centrifugue a 300 × g por 5 min à temperatura ambiente.
- Aspire o sobrenadante e ressuspenda o pellet celular em 1 mL de meio FC fresco. Conte as células viáveis utilizando um hemocitômetro ou contador automático de células com exclusão de azul de tripano.
- Plaque as células em um novo frasco T25 numa densidade de 30.000–50.000 células/cm² em meio completo (geralmente numa proporção de 1:2 ou 1:3).
- Expanda as células até a passagem 3–5 antes de utilizá-las para reprogramação. Não utilize células além da passagem 6.
NOTA: A qualidade celular no momento da eletroporação é o fator mais importante para o sucesso da reprogramação. Utilize apenas CAFs do tipo F saudáveis, em fase logarítmica de crescimento, sem sinais de senescência ou morfologia anormal.
2. Eletroporação de plasmídeos episomais em CAFs utilizando um sistema de eletroporação celular
- Revestir os vasos de cultura com matriz da membrana basal
- Descongele a matriz da membrana basal (Matrigel) durante a noite em 4 °C em gelo
- Resfrie esterilmente DPBS ou DMEM/F-12 em gelo. Pré-resfrie ponteiras e tubos em gelo por 30 minutos.
- Dilua a matriz da membrana basal 1:200 em DMEM/F-12 gelado utilizando ponteiras e tubos frios (por exemplo, 30 µL matriz + 6 mL de DMEM/F-12 para uma placa de 6 poços).
- Misture bem, mas suavemente, pipetando para cima e para baixo 5 a 6 vezes. Evite introduzir bolhas de ar.
- Adicione a solução de revestimento diluída aos recipientes de cultura na proporção de 1 mL por poço para uma placa de 6 poços.
- Incubar os recipientes revestidos em 37 °C por pelo menos 1 h, ou à temperatura ambiente por 2 h.
- Aspire a solução de revestimento imediatamente antes do plaqueamento das células. Adicione 2 mL de meio FC sem antibiótico mais 10 μM Y-27632 (inibidor de ROCK) e devolva a placa a um 37 °C incubadora. Não permita que a superfície revestida seque.
OBSERVAÇÃO: As placas revestidas podem ser armazenadas em 4 °C selado com parafilm por até 7 dias. Equilibrar à temperatura ambiente antes do uso.
- Descongele e prepare os plasmídeos de reprogramação episomal
- Seleção de plasmídeos: Utilize os seguintes plasmídeos episomais para reprogramação: pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL e pCXLE-EBNA1.
OBSERVAÇÃO: (Opcional) Para otimização das condições de eletroporação, o pCE-GFP pode ser eletroporado em paralelo nas mesmas condições. A expressão de GFP nas primeiras 48–72 h fornece um indicador conveniente da eficiência de transfeção, enquanto a perda gradual do sinal de GFP durante passagens subsequentes pode ser utilizada para monitorar a diluição transitória do plasmídeo. - Controle de qualidade (QC): Verifique a concentração e pureza do DNA utilizando um espectrofotômetro. Certifique-se de que a razão A260/A280 esteja entre 1,8 e 1,9. Certifique-se de que a concentração de cada plasmídeo seja maior que 1 µg/µL e estéril.
OBSERVAÇÃO: É fundamental garantir que todos os plasmídeos sejam preparados utilizando métodos livres de endotoxinas. Endotoxinas residuais podem causar alta citotoxicidade e eficiência de reprogramação significativamente reduzida. Armazene os plasmídeos em alíquotas pequenas a -20 °C para evitar ciclos repetidos de congelamento e descongelamento. - Para um 100 µL reação, preparar 5 µg da mistura de plasmídeos (razão de peso igual de pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL e pCXLE-EBNA1.
- Seleção de plasmídeos: Utilize os seguintes plasmídeos episomais para reprogramação: pCXLE-hOCT3/4-shp53, pCXLE-hSK, pCXLE-hUL e pCXLE-EBNA1.
- Configure os parâmetros de eletroporação.
- Inicialize o dispositivo de eletroporação. Configure os parâmetros do pulso para a configuração otimizada para células aderentes primárias: Tensão do pulso: 1.200 V; Duração do pulso: 20 ms; Número de pulsos: 2.
- Encha a estação de pipetagem com 2 mL do tampão E, garantindo que o eletrodo esteja completamente submerso.
OBSERVAÇÃO: Se experimentos iniciais apresentarem viabilidade celular abaixo de 50%, considere testar conjuntos alternativos de parâmetros: 950 V / 20 ms / 2 pulsos (mais suave). Essas alternativas sacrificam alguma eficiência em troca de maior sobrevivência.
- Preparar CAFs para eletroporação
- No Dia 0, verifique ao microscópio se as células apresentam morfologia saudável, em forma de fuso, sem sinais de supercrescimento, senescência ou contaminação. Assegure-se de que as células tenham atingido 90% de confluência e estejam na fase logarítmica ativa de crescimento.
- Imediatamente antes do procedimento de eletroporação, aspire o revestimento de Matrigel e substitua por 2 mL de meio pré-aquecido sem antibiótico meio FC mais 10 μM Y-27632 (inibidor de ROCK). Pré-aqueça este meio FC sem antibiótico até 37 °C em um incubador por pelo menos 20 min antes de colher as células para o sistema de eletroporação.
OBSERVAÇÃO: NÃO adicione Penicilina-Estreptomicina (P/S) nem qualquer outro antibiótico a este lote específico de meio. Após a eletroporação, a membrana celular permanece temporariamente permeável e vulnerável. A presença de antibióticos pode levar a um aumento da apoptose. - Aspire o meio dos AFCs para eletroporação e lave a monocamada uma vez com DPBS sem Ca²⁺/Mg²⁺.
- Adicione 2 mL (para frasco T25) da enzima TrypLE Select e incube em 37 °C por 4–5 min.
- Neutralize com 6 mL de meio completo FC e transfira para um tubo cônico de 15 mL. Conte as células utilizando um contador automático de células.
- Centrifugue a 300 × g por 5 min a temperatura ambiente.
- Remova completamente o sobrenadante utilizando um 200 μL ponta de pipeta, tomando cuidado para não perturbar o pequeno pellet celular.
- Resuspenda o pellet celular no Tampão R com uma densidade final de 1,0 × 10⁷ a 1,4 × 10⁷ células/mL
OBSERVAÇÃO: Aspire o sobrenadante tão completamente quanto possível para garantir que o pellet celular esteja seco. O meio de cultura residual pode diluir o tampão de ressuspensão, o que pode reduzir a eficiência da eletroporação. Utilize o Tampão R (para células aderentes) para AFCs. Verifique a seleção do tampão conforme as recomendações do fabricante.
- Realize a eletroporação.
- Alíquota 110 μL da suspensão celular (contendo 1,0–1,4 × 10⁶ células) em um tubo estéril de microcentrífuga de 1,5 mL.
OBSERVAÇÃO: Adicione um extra 10 μL do tampão R até o volume final para garantir uma suspensão celular adequada, o que ajuda a evitar a introdução de bolhas de ar durante a aspiração. - Adicione 5 μg mistura de plasmídeos para o 110 μL alíquota celular. Misture com pipetagem suave por 3 vezes.
- Afixe um estéril 100 μL ponta de eletroporação ao pipetador. Certifique-se de que a ponta clique com segurança.
- Carregar 100 μL da suspensão de células/ADN, garantindo que não haja bolhas de ar visíveis presentes.
OBSERVAÇÃO: Bolhas de ar provocam arco elétrico durante o pulso elétrico, o que mata as células e danifica a ponteira. Se forem visíveis bolhas, expulse a mistura de volta para o tubo e repita a aspiração lentamente. - Insira a pipeta carregada verticalmente no tubo de Tampão na estação até que clique no lugar. Verifique se todos os parâmetros estão corretos na tela de toque, então pressione o botão Iniciar para entregar a sequência de pulsos.
- Aguarde a exibição na tela "Completo" (geralmente dentro de 1–2 s). Remova imediatamente a pipeta da estação e dispense diretamente a suspensão de células eletroporadas em 2–3 poços de uma placa revestida de 6 poços contendo meio FC sem antibiótico pré-aquecido + 10 μM Y-27632
- Descarte a ponteira usada com segurança. Repita os passos para poços adicionais ou réplicas conforme necessário. Coloque a placa de 6 poços em um 37 °C, 5% CO₂₂ incubadora umidificada durante a noite.
- Alíquota 110 μL da suspensão celular (contendo 1,0–1,4 × 10⁶ células) em um tubo estéril de microcentrífuga de 1,5 mL.
3. Cultura de reprogramação pós-eletroporação
OBSERVAÇÃO: Esta seção descreve as mudanças sequenciais de meio e a obtenção do reprogramamento completo de CAFs em iPSCs. A linha do tempo abrange aproximadamente 25 dias, desde a eletroporação até a seleção de colônias.
- Aproximadamente 16–18 h após a eletroporação, aspire cuidadosamente o meio sem desalojar as células aderentes sobreviventes. Adicione suavemente 2 mL de meio FC pré-aquecido (contendo P/S) a cada poço para permitir que as células se estabilizem nas primeiras 24 h. Retorne a placa ao incubador.
- Do Dia 2 ao Dia 6, substitua metade do meio a cada dois dias: aspire cuidadosamente 1 mL do meio usado e adicione 1 mL de meio fresco TeSR-E8 (E8).
NOTA: A troca parcial do meio preserva fatores autócrinos secretados que apoiam os eventos iniciais de reprogramação. Aspire lentamente da borda do poço para minimizar a perturbação das células em transição, que estão fracamente aderidas. - No Dia 7, realize uma troca completa do meio com 2 mL de E8 a cada dois dias.
- Observe diariamente as alterações morfológicas ao microscópio. Espere o aparecimento de agregados parcialmente reprogramados, com aspecto semelhante a calçadas, por volta do Dia 10–14.
NOTA: (Opcional) Suplemente os cultivos com 25–100 μM de butirato de sódio entre os Dias 9–15 se a formação de colônias for fraca23. - Substitua o meio E8 diariamente a partir do Dia 15.
- A partir de aproximadamente Dia 18, inspecione diariamente os poços quanto ao surgimento de colônias verdadeiras de iPSCs. Uma linha do tempo completa do fluxo de trabalho de reprogramação, desde a eletroporação no Dia 0 até a seleção de colônias, é fornecida na Tabela 2.
4. Coleta mecânica de colônias de iPSCs e expansão de linhagens estabelecidas de iPSCs
OBSERVAÇÃO: Distingua colônias verdadeiras de iPSCs de células reprogramadas ou não reprogramadas com base nos critérios morfológicos abaixo. Identifique colônias "ideais" com base nas seguintes características morfológicas: (1) Definição da borda: Busque uma borda nítida, lisa e circular que delimite claramente a colônia das células do líquido amniótico ao redor; (2) Densidade celular: Assegure que as células dentro da colônia sejam pequenas, densamente empacotadas e possuam uma alta razão nucleocitoplasmática com nucléolos proeminentes; (3) Refringência: Colônias de alta qualidade aparecem brilhantes e altamente refringentes em contraste de fase; (4) Planicidade: A colônia deve crescer como uma camada plana e bidimensional, e não como um "agregado" tridimensional. Colônias parcialmente reprogramadas frequentemente aparecem antes das colônias verdadeiras de iPSCs e tendem a ser maiores, mais espessas e mais tridimensionais. Elas se diferenciarão espontaneamente ao serem isoladas e subcultivadas. Não isole colônias que apresentem "vacúolos", bordas irregulares ou sinais de diferenciação central.
- Selecionar e transferir colônias de iPSCs mecanicamente
- Prepare uma placa de 24 poços revestida com Matrigel contendo 0,5 mL por poço de meio E8 suplementado com 10 μM de Y-27632. Mantenha a 37 °C até o uso.
- Coloque a placa de cultura sob um microscópio estereoscópico dentro de uma cabine de segurança biológica Classe II. Esterilize a objetiva e o estágio do microscópio estereoscópico com etanol 70% antes de aproximar a placa do campo de visão.
- Identifique colônias que apresentem morfologia adequada (planas, compactas, com bordas definidas).
- Usando uma ponteira estéril de 10 μL segurada em um ângulo raso (aproximadamente 30° em relação à horizontal), risque suavemente ao redor do perímetro de uma colônia selecionada para delimitar sua borda. Corte a colônia em cerca de 3 fragmentos fazendo incisões paralelas ao longo de seu diâmetro. Use a mesma ponteira para raspar e levantar suavemente os fragmentos da colônia do substrato e transfira-os para um poço da placa de 24 poços preparada.
- Repita os passos para cada colônia, colocando os fragmentos em poços separados.
- Coloque a placa de 24 poços no incubador. Deixe sem perturbação por 24 h para permitir a adesão dos fragmentos.
- A partir do Dia 2 após a seleção, substitua o meio diariamente por meio E8 sem Y-27632.
- Quando as colônias selecionadas atingirem 70–80% de confluência (geralmente em 3–6 dias), faça a passagem utilizando Accutase.
- Passagem e expansão de linhagens estabelecidas de iPSCs
- Aspire o meio do poço contendo iPSCs. Adicione Accutase para cobrir a monocamada. Incube à temperatura ambiente por 2–6 min. Observe as bordas das colônias ao microscópio; as células devem começar a se separar, e surgir espaços entre elas.
- Aspire completamente a solução de Accutase. Adicione 1 mL de meio E8 + 10 μM de Y-27632. Pipete suavemente o meio sobre a superfície das colônias de 5 a 8 vezes usando uma pipeta P1000 para dissociar as colônias em pequenos agregados de 2–8 células.
NOTA: Evite a dissociação excessiva das iPSCs, pois isso reduz drasticamente a sobrevivência. O objetivo é obter agregados pequenos e uniformes, não uma suspensão de células isoladas. - Transfira os agregados com 1 mL de meio E8 + 10 μM de Y-27632 uniformemente para uma placa de 12 poços recém-revestida com Matrigel. Coloque a placa no incubador.
- Substitua o meio diariamente com meio E8 (sem Y-27632 após o Dia 1).
- Continue fazendo passagens a cada 3–4 dias em uma razão de divisão de 1:2 a 1:5, dependendo da confluência.
- Cultive as linhagens de iPSCs por um mínimo de 10 passagens antes de aplicações posteriores para garantir a eliminação estável dos episomos.
5. Caracterização de linhagens iPSC aneuploides
OBSERVAÇÃO: Realize os seguintes ensaios de validação em linhagens de iPSC estabelecidas (passagem 10 ou posterior) para confirmar a pluripotência, a integridade do cariótipo e a eliminação do vetor episomal.
- Confirmar a expressão dos marcadores de pluripotência.
- Validar a expressão dos marcadores centrais de pluripotência utilizando coloração por imunofluorescência, citometria de fluxo ou ambos. Os perfis esperados de marcadores estão resumidos na Tabela 3.
NOTA: Embora a coloração por imunofluorescência forneça uma confirmação inicial da pluripotência, recomenda-se RT-qPCR e RNA-seq para uma avaliação mais ampla da expressão gênica associada à pluripotência, incluindo LIN28A, DPPA4 e KLF4.
- Validar a expressão dos marcadores centrais de pluripotência utilizando coloração por imunofluorescência, citometria de fluxo ou ambos. Os perfis esperados de marcadores estão resumidos na Tabela 3.
- Análise de cariótipo por bandamento G
CRÍTICO: O reprogramamento pode induzir a recuperação da trissomia em um subconjunto de clones. Analisar múltiplos clones (5–10 por linhagem parental) para identificar derivados com manutenção de aneuploidia e aqueles recuperados para euploidia.- Coletar iPSCs na passagem 10–15 com 70%–80% de confluência.
- Adicionar 0,1 μg/mL de colcemida ao meio de cultura. Incubar a 37 °C por 2–4 h para deter as células em metáfase.
NOTA: A colcemida é um veneno mitótico. Manipular com luvas em cabine de segurança biológica. Descartar resíduos contendo colcemida como material perigoso. - Dissociar as células para obter uma suspensão unicelular utilizando Accutase ou equivalente. Centrifugar a 300 × g por 5 min.
- Res suspender o pellet em 5 mL de solução hipotônica pré-aquecida (0,075 M cloreto de potássio). Incubar a 37 °C por 15–20 min.
- Adicionar 1 mL de fixador recém-preparado (metanol:ácido acético, na proporção volumétrica 3:1) ao tubo, misturando suavemente. Centrifugar a 300 × g por 10 min.
- Aspirar o sobrenadante. Adicionar 5 mL de fixador fresco. Misturar suavemente e incubar por 10 min. Centrifugar novamente.
- Repetir a etapa de fixação (Etapa 6) mais uma vez, totalizando 3 fixações.
- Após a última centrifugação, ressuspender o pellet em 0,5–1 mL de fixador fresco para obter uma densidade celular adequada.
- Deixar cair 2–3 gotas da suspensão celular sobre lâminas de vidro limpas e úmidas, de uma altura aproximada de 30 cm. Deixar secar ao ar.
- Incubar as lâminas a 80 °C por 2 h ou a 65 °C durante a noite para envelhecer os cromossomos.
- Realizar o bandamento G: tratar as lâminas com solução de tripsina a 0,025% por 30–60 s, enxaguar e corar com solução de Giemsa a 5% por 1–5 min.
- Analisar pelo menos 20 metáfases bem espalhadas por clone em microscópio de campo claro com imersão em óleo (objetiva 100×).
- Documentar o cariótipo utilizando a nomenclatura ISCN (por exemplo, 47,XX,+21 para trissomia 21 feminina; 45,X para síndrome de Turner).
NOTA: O cariótipo com bandamento G detecta anormalidades cromossômicas maiores, mas possui resolução limitada. Ensaios complementares, como análise de Variação no Número de Cópias (CNV), Sequenciamento do Exoma Inteiro (WES) ou Sequenciamento do Genoma Inteiro (WGS), são recomendados para identificar alterações genéticas submicroscópicas e confirmar a integridade genômica das iPSCs.
- Verificar a eliminação do vetor episomal por PCR.
NOTA: Esta etapa confirma que todos os plasmídeos episomais foram perdidos da linhagem de iPSCs por meio da amplificação por PCR de sequências específicas do vetor.- Extrair DNA genômico de iPSCs (passagem ≥ 10) e de AFCs controle não transfectados utilizando um kit padrão de extração baseado em coluna.
- Preparar uma reação de PCR de 25 μL. Realizar a PCR utilizando os pares de primers Orip/GAPDH sob as condições de ciclagem (94 °C por 2 min; seguido por 35 ciclos de 94 °C por 30 s, 55 °C por 30 s e 72 °C por 30 s; extensão final a 72 °C por 5 min). Incluir controle positivo (modelo de plasmídeo) e controle negativo (DNA genômico de células não transfectadas) em cada corrida de PCR.
- Separar os produtos de PCR em gel de agarose a 2% com um marcador de DNA apropriado.
- Interpretar os resultados: linhagens de iPSCs com episomas eliminados não devem apresentar bandas de amplificação em 544 pb. O controle positivo deve mostrar bandas do tamanho esperado. O controle negativo não deve apresentar bandas.
- Detecção de micoplasma por PCR
- Coletar 0,5–1 mL do sobrenadante do cultivo após pelo menos 24 h de incubação das culturas de iPSCs, antes da troca do meio, e centrifugar a 12.000 × g por 5 min para remover detritos celulares.
- Utilizar o sobrenadante clarificado como molde para PCR com o Kit de Detecção de Micoplasma por PCR, seguindo as instruções do fabricante.
- Separar os produtos de PCR por eletroforese em gel de agarose a 2%. Prosseguir com experimentos subsequentes somente se as culturas de iPSCs forem confirmadas como livres de micoplasma.
NOTA: Se as AFCs parentais não forem obtidas de um biobanco certificado com esterilidade documentada e testagem para micoplasma, recomenda-se fortemente a realização de triagem rotineira para micoplasma antes do reprogramamento como etapa inicial de controle de qualidade.
- Ensaio de potencial de diferenciação trilinhas (Opcional)
- Confirmar a capacidade de diferenciação in vitro utilizando diferenciação direcionada trilinhas ou formação de corpos embrioides (EB), seguida pela análise de marcadores específicos das camadas germinativas. Alternativamente, realizar a formação de teratoma in vivo em camundongos imunodeficientes para validação padrão-ouro da pluripotência.
NOTA: Para protocolos detalhados de ensaio de teratoma ou diferenciação direcionada, consultar procedimentos operacionais padrão publicados24. Esses ensaios são recomendados, mas podem ser omitidos se forem fornecidos dados abrangentes de análise de marcadores in vitro e de diferenciação funcional.
- Confirmar a capacidade de diferenciação in vitro utilizando diferenciação direcionada trilinhas ou formação de corpos embrioides (EB), seguida pela análise de marcadores específicos das camadas germinativas. Alternativamente, realizar a formação de teratoma in vivo em camundongos imunodeficientes para validação padrão-ouro da pluripotência.
6. Derivação e verificação clonal de célula única
OBSERVAÇÃO: Para garantir que cada linhagem de iPSC origine-se de uma única célula, recomenda-se um processo de verificação clonal em duas etapas. Após a seleção mecânica e expansão, recomenda-se um segundo replante de clone em célula única após a confirmação do cariótipo. A verificação de que cada linhagem de iPSC origina-se de uma única célula é um requisito crítico para a geração de iPSCs. Isso assegura a eliminação da mosaicidade somática parental e confirma que a assinatura diagnóstica de aneuploidia é uniforme em toda a população.
- Plaqueamento de célula única
- Dissocie e re-suspenda colônias de iPSCs com cariótipo confirmado em uma suspensão de células isoladas utilizando Accutase por 2–6 min a 37 °C.
- Utilize meio E8 suplementado com 10 µM de Y-27632 para maximizar a sobrevivência das células isoladas. Realize o plaqueamento de célula única utilizando um dos seguintes métodos:
- Diluição limitante: Dilua a suspensão até uma concentração de 0,5–1 célula por 100 µL. Plaque 100 µL em cada poço de uma placa de 96 poços revestida com Matrigel.
- Classificação Fluorescente Ativada por Células (FACS): Ordene diretamente células viáveis únicas nos poços de uma placa de 96 poços revestida com Matrigel.
- Verificação e expansão da monoclonalidade
- Inspeção inicial: Entre 24–48 h após o plaqueamento, utilize um microscópio de contraste de fase de alta resolução para inspecionar cada poço. Marque apenas os poços que contenham um único evento de adesão bem definido. Exclua poços com múltiplos agregados ou sem células.
- Crescimento da colônia: Mantenha as células únicas identificadas em meio E8 sem inibidor de ROCK após as primeiras 24 h.
- Expansão sequencial: Quando a colônia derivada de célula única atingir 70% de confluência, expanda sequencialmente as células da placa de 96 poços para placas de 24, 12 e, finalmente, 6 poços.
NOTA: Em pesquisas com terapia celular, frequentemente é exigida evidência fotográfica do estágio de célula única (Dia 0 ou Dia 1) como parte do Certificado de Análise, a fim de comprovar o status de linhagem pura das linhagens de iPSCs.
As causas potenciais de reprogramação mal-sucedida, formação subótima de colônias e desafios durante o estabelecimento de clones de iPSCs são resumidas juntamente com soluções práticas na Tabela 4.
Resultados
Progressão morfológica durante a reprogramação
As células primárias do líquido amniótico exibiram morfologias heterogêneas, incluindo células do tipo E e do tipo F (Figura 1A). Células do tipo F devem ser expandidas e utilizadas para reprogramação. Após a eletroporação das células do líquido amniótico (AFCs) com plasmídeos episomais Epi5, observa-se uma sequência característica de alterações morfológicas. No dia 0, as AFCs exibem morfologia típica em forma de fuso, semelhante a fibroblastos. Entre os dias 3 e 5, surgem as primeiras evidências morfológicas de reprogramação: pequenos aglomerados de células semelhantes a epiteliais emergem dentro da população de células mesenquimais, marcando o início da transição epitelial-mesenquimal (MET). Essas células transicionais são menores e mais compactas do que as células mesenquimais ao redor. Entre os dias 7 e 10, os aglomerados celulares apresentam maior compactação, refletindo uma transição para uma morfologia epitelial característica. Colônias de iPSCs totalmente reprogramadas começam a surgir entre os dias 14 e 16. Entre os dias 21 e 25, colônias maduras de iPSCs estão prontas para serem isoladas (Figura 1B). O plasmídeo pCE-GFP foi eletroporado em paralelo com os plasmídeos de reprogramação para avaliar a eficiência de entrega do DNA (Figura 1C). A expressão de GFP pode ser usada como um indicador visual de eletroporação bem-sucedida e persistência do plasmídeo durante os primeiros estágios de cultura.
Diferenciação de colônias de iPSCs totalmente reprogramadas da reprogramação parcial
Uma habilidade essencial neste protocolo é a capacidade de distinguir colônias de iPSCs totalmente reprogramadas de colônias parcialmente reprogramadas, pois selecionar estas últimas resulta na falha no estabelecimento de linhagens estáveis de iPSCs. Tabela 5 resume as principais diferenças morfológicas e moleculares entre esses dois tipos de colônia.
Figura 2 ilustra uma comparação lado a lado. Células parcialmente reprogramadas frequentemente formam agregados soltos que carecem de limites definidos. Esses agregados podem apresentar algum grau de compactação, mas normalmente mantêm características mesenquimais ou exibem margens irregulares e "difusas", indicando uma redefinição epigenética incompleta (Figura 2, esquerda). Durante a reprogramação primária, colônias com morfologia típica de iPSCs podem conter áreas de diferenciação espontânea (Figura 2, centro). Regiões indiferenciadas definidas morfologicamente podem ser selecionadas e isoladas manualmente para posterior expansão. Linhagens de iPSCs bem estabelecidas devem exibir a clássica morfologia pluripotente compacta, caracterizada por uma alta razão núcleo-citoplasma, nucléolos proeminentes e junções intercelulares extremamente firmes (Figura 2, direita).
Normalmente, dezenas a centenas de colônias foram observadas após o reprogramamento por eletroporação com 1–2 × 10⁶ AFCs. De cada linhagem de AFCs, 24 colônias individuais foram selecionadas manualmente, resultando em 1-9 clones de iPSCs expansíveis (Tabela 1).
Validação do marcador de pluripotência
Linhas de iPSC estabelecidas devem expressar o conjunto completo de marcadores de pluripotência. Figura 3 mostra resultados representativos de imunofluorescência e FACS para uma linha de iPSC aneuploide com síndrome de Klinefelter (47,XXY) na passagem 15. Os marcadores nucleares OCT4, NANOG e SOX2 mostram expressão uniforme ao longo da colônia, enquanto o marcador de superfície celular TRA-1-60 exibe coloração característica em forma de anel na membrana (Figura 3A). A análise por FACS quantificou ainda altos níveis de expressão de SSEA-4 e TRA-1-81 (Figura 3B). Esses padrões de expressão são compatíveis com os critérios estabelecidos para células-tronco pluripotentes autênticas, confirmando que a aneuploidia não prejudica a aquisição de pluripotência ao nível dos marcadores.
Confirmação do cariótipo de iPSCs aneuploides
A análise do cariótipo por bandamento G é essencial para cada clone de iPSC derivado de células do líquido amniótico aneuploide. Figura 4 mostra resultados representativos do cariótipo.
Um resultado positivo no cariótipo é a identificação de clones de iPSCs com o cariótipo aneuploide esperado, confirmado em pelo menos 20 metáfases. Um resultado negativo é a detecção exclusiva de clones euploides (46,XX ou 46,XY) a partir de uma fonte aneuploide, o que, embora confirme o sucesso do protocolo na geração de iPSCs, indica uma resgate completo da trissomia e exige a repetição da derivação clonal monoclonal ou do reprogramamento para obter linhagens com manutenção da aneuploidia.
Verificação da eliminação do vetor episomal
Os vetores episomais são progressivamente diluídos durante o passagem e tornam-se indetectáveis após cultivo prolongado na maioria das linhagens de iPSCs estabelecidas8,25,26,27. A eliminação do vetor exógeno é uma característica marcante da abordagem de reprogramação não integrante. Um resultado positivo (confirmação da eliminação episomal) é a ausência de bandas de amplificação de oriP (544 pb) na passagem 10 ou posterior. Um resultado negativo (eliminação incompleta) mostra bandas persistentes na passagem 10, o que geralmente se resolve pela passagem 15–20 com passagens contínuas. A amplificação de GAPDH foi utilizada como controle interno para confirmar a integridade do DNA genômico e a amplificação bem-sucedida por PCR (Figura 5A). Casos raros de vetores episomais persistentes além da passagem 20 podem indicar eventos de integração genômica, o que indica que a linhagem deve ser descartada. Para garantir a segurança biológica e a integridade experimental das linhagens de iPSCs aneuploides geradas, recomenda-se fortemente um teste baseado em PCR para detecção de contaminação por micoplasma. Os sobrenadantes do cultivo celular de todas as linhagens monoclonais mantidas devem ser coletados e analisados por meio de PCR utilizando primers específicos para micoplasma. Todas as linhagens monoclonais que apresentarem resultado positivo (por exemplo, Clonagem #7 e #9) devem ser descartadas imediatamente (Figura 5B).
Potencial de diferenciação trilinage in vitro
A confirmação do potencial de diferenciação trilinhal é um critério obrigatório para validar linhagens de iPSCs. Figura 6 mostra resultados representativos da diferenciação in vitro em corpos embrionários de uma linhagem de iPSCs com trissomia do cromossomo 18. A expressão de PAX6 (ectoderma), T-Brachyury e TBX6 (mesoderma), GATA6 e SOX17 (endoderma) confirma a capacidade dos iPSCs aneuploides de se diferenciarem nas três camadas germinativas (Figura 6).
Derivação e verificação clonal de célula única
Para estabelecer modelos de iPSCs aneuploides de alta fidelidade, foi implementado um fluxo de trabalho de derivação e verificação em duas rodadas de célula única para minimizar a heterogeneidade celular e excluir possíveis casos de quimerismo. Após a expansão inicial, clones com cariótipo normal foram dissociados e resemados em densidade de célula única. A inspeção microscópica em 24–48 h confirmou a presença de eventos de adesão derivados de célula única, que subsequentemente foram expandidos para estabelecer linhagens monoclonais validadas (Figura 7A).
Um resultado positivo é a expansão bem-sucedida de uma única colônia a partir de uma única célula em uma placa de 96 poços, confirmada pelo monitoramento microscópico diário que mostra apenas uma colônia por poço (Figura 7B). Após a expansão, a reconfirmação do cariótipo e dos marcadores de pluripotência deve corresponder à linhagem original. Um resultado negativo é a observação de múltiplas colônias por poço ou a falha das células individuais em sobreviver e se expandir.
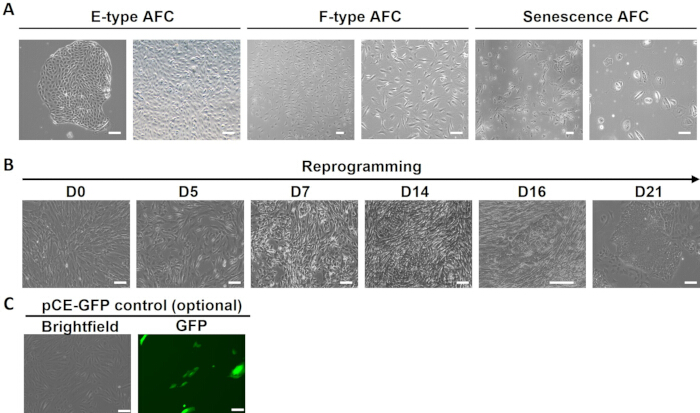
Figura 1: Progressão morfológica da reprogramação de células do líquido amniótico utilizando plasmídeos episomais Epi5. Imagens representativas mostrando a morfologia de diferentes tipos de CFA primárias e o procedimento de reprogramação em pontos temporais-chave. (A) Imagens de contraste de fase mostrando as três morfologias primárias do material inicial: tipo epitelial (tipo E), tipo fibroblasto (tipo F) e CFA senescentes. (B) Imagens representativas da evolução temporal do processo de reprogramação do Dia 0 ao Dia 21, mostrando a transição de CFA primárias para o surgimento de colônias compactas semelhantes a iPSCs. Dia 0: CMM-AF antes da eletroporação, exibindo morfologia mesenquimal alongada típica. Dias 3–5: Estágio inicial de MET; células com morfologia epitelial aparecem em aglomerados entre células mesenquimais residuais. Dias 7–10: Células primárias de reprogramação emergem. Dias 14–16: Colônias primárias de reprogramação (colônias MET) com morfologia semelhante a paralelepípedos, mas com limites mal definidos. Dias 21–25: Colônias de iPSCs totalmente reprogramadas emergem com células planas, densamente empacotadas, bordas bem definidas, alta razão núcleo-citoplasma e nucléolos proeminentes. (C) Imagens representativas de fluorescência mostrando a expressão de GFP após eletroporação de CFA com pCE-GFP. A barra de escala representa 100 µm. Clique aqui para visualizar uma versão maior desta figura.
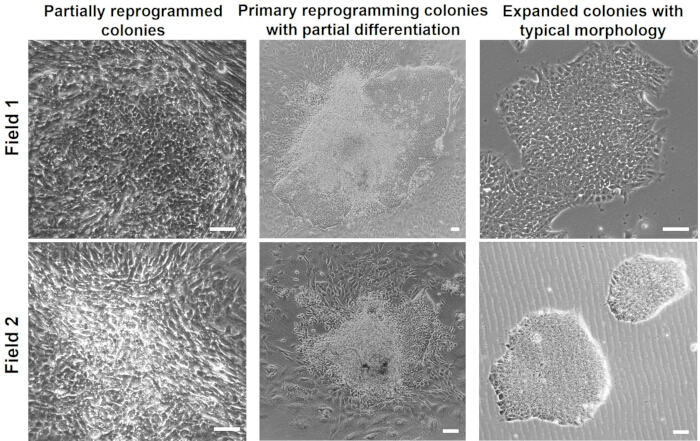
Figura 2: Comparação entre colônias totalmente reprogramadas e parcialmente reprogramadas. Esquerda: Colônias parcialmente reprogramadas exibindo agregados soltos e bordas irregulares. Centro: Colônias primárias de reprogramação com regiões típicas semelhantes a iPSCs acompanhadas por áreas de diferenciação espontânea. Direita: Colônias expandidas com morfologia típica de iPSCs. Barras de escala, 100 µm. Clique aqui para visualizar uma versão maior desta figura.
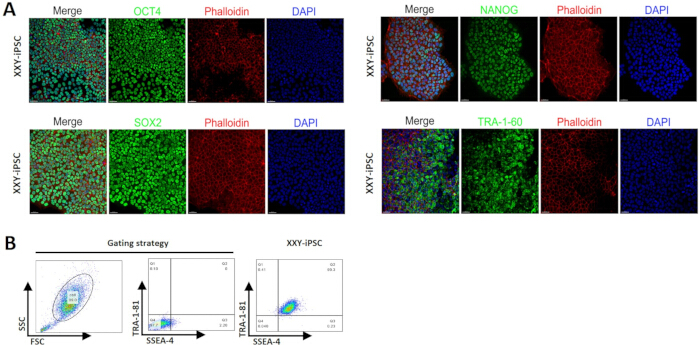
Figura 3: Análise por imunofluorescência de marcadores de pluripotência em iPSCs aneuploides. (A) Coloração por imunofluorescência de iPSCs XXY para marcadores centrais de pluripotência, incluindo OCT4, SOX2, NANOG e TRA-1-60 (verde). A estrutura do citoesqueleto é visualizada com Faloídim (vermelho) e os núcleos com DAPI (azul). A barra de escala representa 50 µm. (B) Análise por citometria de fluxo (FACS) mostrando a estratégia de seleção de eventos e a expressão quantitativa de SSEA-4 e TRA-1-81 na linhagem de iPSCs XXY. Clique aqui para visualizar uma versão maior desta figura.
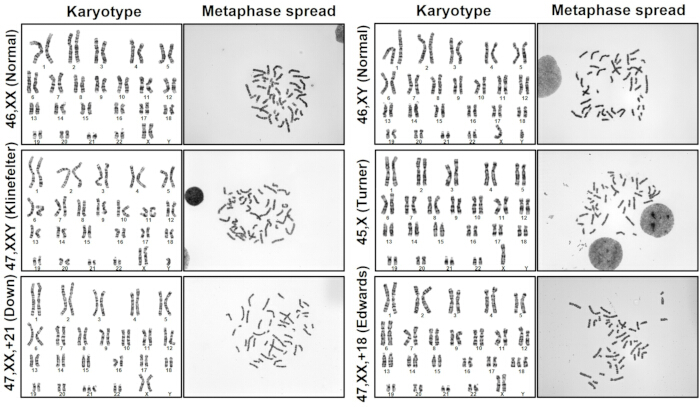
Figura 4: Análise cariotípica por bandas G de linhagens iPSC aneuploides. Análise cariotípica com bandas G e respectivos espalhamentos em metáfase confirmando a manutenção estável de anormalidades cromossômicas em linhagens geradas, incluindo 46,XX (fêmea normal), 46,XY (macho normal), 47,XXY (síndrome de Klinefelter), 45,X (síndrome de Turner), 47,XX,+21 (síndrome de Down) e 47,XX,+18 (síndrome de Edwards). Clique aqui para visualizar uma versão maior desta figura.
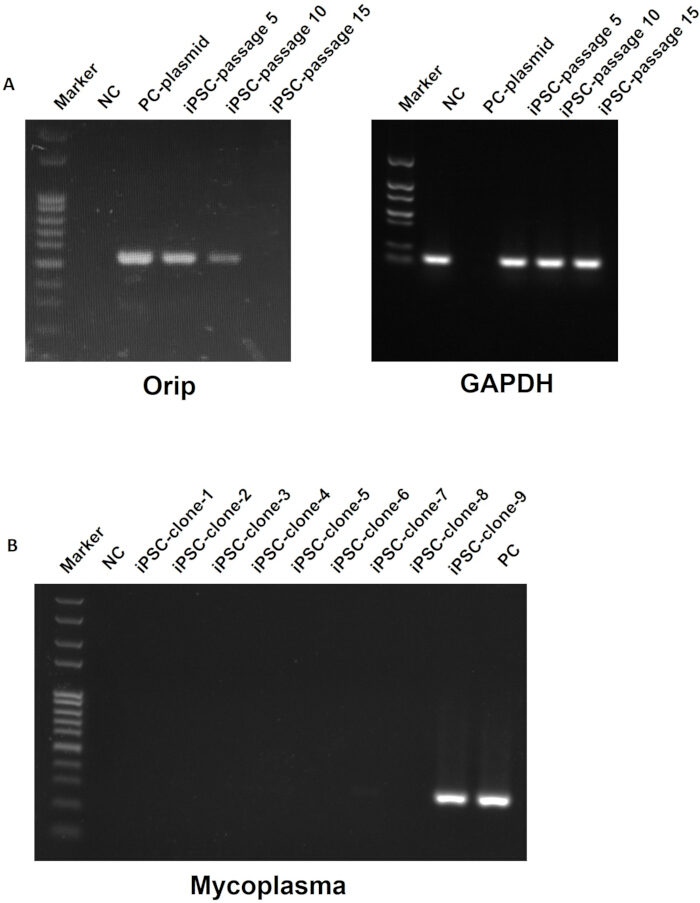
Figura 5: Detecção por PCR da eliminação do vetor episomal e teste de micoplasma em linhagens de iPSC aneuploides. Eletroforese em gel de agarose (2%) de produtos de PCR amplificados com conjunto de iniciadores oriP/GAPDH ou para micoplasma. (A) Eliminação total do vetor na linhagem de iPSC em diferentes passagens. (B) Detecção por PCR de contaminação por micoplasma em 9 linhagens independentes. As linhagens #7 (fraca) e #9 (intensa) apresentam contaminação por micoplasma e devem ser descartadas. PC, controle positivo; NC, controle negativo. Clique aqui para visualizar uma versão ampliada desta figura.
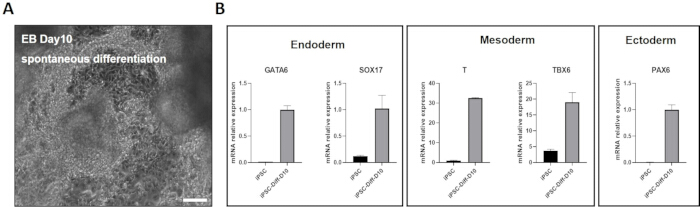
Figura 6: Diferenciação trilinageada in vitro de iPSCs aneuploides. (A) Micrografia em contraste de fase ilustrando a morfologia de corpos embrioides (EB) no Dia 10 durante o processo de diferenciação espontânea após adesão a uma superfície revestida com gelatina. A barra de escala representa 100 µm. (B) Análise por RT-qPCR quantificando a saída da pluripotência e o subsequente comprometimento com linhagens. Os resultados mostram um aumento significativo na expressão relativa de mRNA dos marcadores característicos das três camadas germinativas embrionárias no Dia 10 em comparação com iPSCs indiferenciadas: Endoderma (GATA6, SOX17), Mesoderma (T, TBX6) e Ectoderma (PAX6). Os dados são apresentados como média ± DP. Clique aqui para visualizar uma versão maior desta figura.
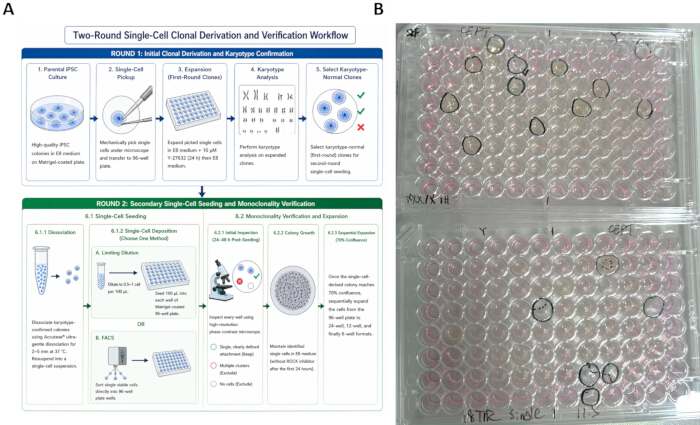
Figura 7: Fluxo de trabalho de derivação clonal de célula única para linhagens de iPSC aneuploides. (A) Esquema do fluxo de trabalho ilustrando a Rodada 1 (derivação inicial e confirmação do cariótipo) e a Rodada 2 (semeadura secundária de célula única por diluição limitante ou FACS para garantir a monoclonalidade) do processo de verificação clonal. Estágio 1: Coleta mecânica de colônias individuais de iPSC, expansão em placas de 6 poços e verificação do cariótipo. Estágio 2: Para clones aneuploides com cariótipo confirmado, semeadura de célula única por diluição limitante ou FACS em placas de 96 poços para assegurar origem clonal a partir de uma única célula. Apenas poços com crescimento de uma única colônia são expandidos. (B) Imagem representativa de placas de 96 poços durante a fase de expansão clonal, com colônias derivadas de célula única identificadas e circuladas para expansão sequencial. Clique aqui para visualizar uma versão ampliada desta figura.
| Origem genética | Cariótipo | Número de linhagens AFC testadas | Número de colônias individuais selecionadas após reprogramação | Número de clones iPSC estabelecidos com sucesso |
| Trissomia 21 | 47,XX,+21 | 2 | 48 | 9 |
| Trissomia 18 | 47,XX,+18 | 1 | 24 | 8 |
| Síndrome de Klinefelter | 47,XXY | 2 | 48 | 6 |
| Monossomia X | 45,X | 1 | 24 | 1 |
| Feminino normal | 46,XX | 1 | 24 | 2 |
| Masculino normal | 46,XY | 2 | 48 | 6 |
| Colônias individuais foram selecionadas manualmente com base na morfologia das colônias após a reprogramação e expandidas para caracterização adicional. O número de clones iPSC estabelecidos com sucesso indica colônias que puderam ser expandidas e mantidas após a seleção. | ||||
Tabela 1: Detalhes das linhagens de CAF utilizadas no reprogramamento de células somáticas.
| Dia | Composição do Meio | Observação Principal |
| 0 | Meio FC sem antibiótico + Y27632 | Eletroporação |
| 1 | Meio FC | As células sobreviventes iniciam a recuperação |
| 2 – 6 | FC para E8 (mudança parcial) | O MET inicia; as células tornam-se mais compactas; aparecem células menores e arredondadas em aglomerados |
| 7 – 8 | E8 (mudança completa a cada dois dias) | Formação inicial de colônias |
| 9 – 14 (opcional) | E8 (+ 25 μM NaB) | Aglomerados com aspecto de pavimento, com bordas indistintas; tamanhos variáveis |
| 15–18 | E8 (diariamente) | Emergem colônias verdadeiras de iPSCs (Dias 18–25): colônias planas, densamente empacotadas, com bordas nítidas e alta razão núcleo-citoplasma |
| 19 – 25 | E8 (diariamente) | Colônias ultrapassam 400 μm de diâmetro; morfologia plana e uniforme; prontas para seleção |
Tabela 2: Resumo da linha do tempo completa de reprogramação do Dia 0 à seleção de colônias.
| Marcador | Localização Celular | Método de Detecção |
| OCT4 | Nuclear | Imunofluorescência / Citometria de fluxo |
| NANOG | Nuclear | Imunofluorescência / Citometria de fluxo |
| SOX2 | Nuclear | Imunofluorescência / Citometria de fluxo |
| SSEA-4 | Superfície celular | Imunofluorescência / Citometria de fluxo |
| TRA-1-60 | Superfície celular | Citometria de fluxo / Coloração vital |
| TRA-1-81 | Superfície celular | Citometria de fluxo / Coloração vital |
Tabela 3: Perfis esperados de expressão de marcadores de pluripotência em clones de iPSC estabelecidos.
| Problema | Causa possível | Solução |
| Baixa viabilidade celular (< 40%) após eletroporação | 1. Parâmetros do pulso muito intensos para esta linhagem celular | 1. Testar parâmetros mais suaves |
| 2. Células excessivamente confluentes (> 90%) | 2. Garantir confluência entre 75–90% no Dia 0 | |
| 3. Bolhas de ar causaram arco elétrico | 3. Aspirar lentamente; inspecionar a ponta quanto a bolhas antes do pulso | |
| 4. Tampão de ressuspensão degradado ou incorreto | 4. Usar tampão R fresco do kit | |
| 5. Qualidade celular inadequada antes da eletroporação | 5. Utilizar apenas células P3–P5 com morfologia saudável | |
| Nenhuma colônia de iPSC observada até o Dia 25 | 1. Meio inativo | 1. Utilizar E8 recém-preparado; adicionar NaB na concentração de 25–100 μM do Dia 9 ao Dia 14 |
| 2. DNA plasmidial degradado ou descongelado incorretamente | 2. Verificar a integridade do plasmídio em gel de agarose | |
| 3. Células diferenciadas contaminantes superando o crescimento | 3. Remover manualmente áreas diferenciadas antes que se espalhem; repicar as células para reduzir a densidade | |
| 4. Revestimento da matriz falhou ou se deteriorou | 4. Preparar um novo revestimento; mantê-lo sob refrigeração | |
| Colônias de iPSC diferenciam espontaneamente após a seleção | 1. Colônias selecionadas muito cedo (antes do Dia 18) | 1. Aguardar colônias > 400 μm com morfologia plana e madura |
| 2. Revestimento da matriz insuficiente ou degradado | 2. Garantir revestimento fresco; não deixar secar antes do uso | |
| 3. Repicagem como células isoladas sem inibidor de ROCK | 3. Utilizar sempre Y-27632 nas primeiras 24 horas após a repicagem | |
| Cariótipo mostra perda da aneuploidia esperada (recuperação da trissomia) | 1. Eliminação espontânea de cromossomos inerente ao processo de reprogramação | 1. Selecionar múltiplos clones (≥ 5–10) por linhagem; clones recuperados servem como controles euploides isogênicos |
| 2. Células iniciais de passagem tardia mais suscetíveis à recuperação | 2. Utilizar apenas células P3–P5 com morfologia saudável | |
| PCR detecta sequências episomais em passagens tardias (P10+) | 1. Poucas repicagens desde a reprogramação | 1. Continuar repicando até P15–P20; retestar por PCR |
| 2. Expressão persistente de EBNA-1 mantendo os plasmídeos | 2. Cultivo prolongado geralmente resolve; monitorar a cada 5 passagens | |
| 3. Falso-positivo devido à contaminação residual de plasmídio na preparação | 3. Incluir controles negativos adequados; usar purificação de DNA com coluna | |
| Arco elétrico/faísca durante o pulso de eletroporação | 1. Bolhas de ar aprisionadas na ponta | 1. Aspirar a mistura lentamente; bater no tubo para liberar bolhas antes do carregamento |
| 2. Alta concentração de sal na amostra de DNA | 2. Utilizar preparação de plasmídio livre de endotoxinas | |
| 3. Debris celular obstruindo a abertura da ponta | 3. Filtrar a suspensão celular através de peneira de 40 μm | |
| 4. Ponta danificada ou reutilizada além do limite | 4. Usar cada ponta no máximo 2 vezes; inspecionar quanto a danos |
Tabela 4: Guia de solução de problemas para questões comuns durante a reprogramação AFC e o estabelecimento de clones de iPSC.
| Característica | Colônias Parcialmente Reprogramadas | Colônias de iPSCs Totalmente Reprogramadas |
| Tempo de surgimento | Aparece cedo (Dia 7–10) | Variável, geralmente aparece mais tarde (Dia 14–18) |
| Borda da colônia | Extremidades irregulares | Extremidades nítidas e bem definidas |
| Morfologia celular | Células maiores, heterogêneas | Pequenas, uniformes, alta razão núcleo-citoplasma |
| Empacotamento celular | Empacotamento frouxo | Empacotamento denso, tipo calçamento |
| Nucleolos | Pouco evidentes | Nucleolos proeminentes |
| Marcadores de pluripotência | Negativos ou fracos/focais | Fortes, uniformes |
| Estabilidade da colônia | Degeneram ou diferenciam após passagem | Estáveis, expansíveis |
Tabela 5: Características distintivas de colônias totalmente reprogramadas vs. parcialmente reprogramadas.
Discussão
Este protocolo descreve um método não integrador e livre de células alimentadoras para gerar iPSCs humanas aneuploides a partir de células do líquido amniótico utilizando plasmídeos episomais entregues via eletroporação. Várias etapas críticas determinam o sucesso do reprogramamento. Primeiro, a qualidade da população inicial de CLAs é fundamental. Em laboratórios clínicos de citogenética, as CLAs são normalmente expandidas em meio visando acelerar a proliferação celular para análise de cariótipo pré-natal, em vez de cultivo de longo prazo. O impacto sobre a eficiência subsequente de geração de iPSCs ainda não é completamente compreendido. Portanto, a composição do meio de cultura deve ser considerada durante o preparo da amostra, e populações de CLAs com baixo número de passagens e alta proliferação devem ser enriquecidas após o descongelamento para garantir qualidade celular ideal antes da eletroporação. Segundo, as condições de eletroporação devem ser otimizadas para maximizar a entrega de DNA preservando a viabilidade celular. No presente protocolo, a eletroporação em 1200 V, 20 ms e 2 pulsos consistentemente produziu eficiência satisfatória de transfeção e formação reprodutível de colônias. Pequenas otimizações podem ocasionalmente ser necessárias para amostras de doadores individuais. A morte celular excessiva durante as primeiras 24–48 h após a eletroporação está frequentemente associada à baixa qualidade inicial das células, remoção incompleta do meio de cultura residual antes da ressuspensão no tampão de eletroporação ou manipulação prolongada durante a eletroporação. Terceiro, o momento da seleção das colônias é crítico: colônias que aparecem antes do Dia 14 são tipicamente parcialmente reprogramadas, enquanto colônias verdadeiras de iPSCs emergem entre os Dias 15 e 25 e exibem a morfologia característica plana, compacta e com bordas bem definidas. A diferenciação espontânea após o surgimento das colônias é comumente causada pela seleção prematura das colônias, substituição tardia do meio ou densidade excessiva de colônias, e a seleção oportuna das colônias ajuda a manter sua qualidade. Além disso, o butirato de sódio pode ser incluído como uma otimização opcional entre os Dias 9 e 15 para linhagens de CLAs que apresentam desempenho relativamente pobre no reprogramamento23. Finalmente, a clonagem de célula única via diluição limitante ou FACS em placas de 96 poços é necessária após a verificação inicial do cariótipo para garantir origem clonal.
O papel do p53 no reprogramamento depende da metodologia. No reprogramamento episomal baseado em OSKM, a supressão transitória do p53 melhora a sobrevivência celular durante a resposta inicial ao estresse e facilita o MET27, enquanto o p53 atua como um mecanismo de proteção genômica no reprogramamento químico28. Considerando a eficiência do reprogramamento OSKM baseado em eletroporação para amostras clínicas raras, essa abordagem permanece valiosa. Para minimizar riscos genômicos potenciais, linhagens estabelecidas de iPSCs devem passar por cariotipagem de rotina e, quando apropriado, análise de CNV e WES/WGS antes das aplicações subsequentes.
Uma limitação particularmente importante para a geração de iPSCs aneuploides é o fenômeno da correção da trissomia durante o reprogramamento. Akutsu et al.29 demonstraram que a frequência de correção varia drasticamente conforme o tipo cromossômico. Essa variabilidade significa que, para certas aneuploidias, um grande número de clones deve ser analisado por cariótipo para identificar aqueles que mantiveram a anomalia cromossômica original. Por outro lado, o mesmo fenômeno pode ser explorado para gerar linhagens de controle euploides isogênicas a partir do mesmo experimento de reprogramamento, fornecendo um controle interno poderoso para o estudo de fenótipos específicos da aneuploidia.
O protocolo descrito aqui fornece uma plataforma robusta e reprodutível para o estabelecimento de linhagens de iPSCs aneuploides específicas do paciente a partir de amostras residuais de diagnóstico pré-natal. Essas linhagens celulares podem ser aplicadas em estudos de biologia cromossômica, mecanismos de desenvolvimento, modelagem de doenças, genômica funcional, edição do genoma e triagem de fármacos em alta produtividade após diferenciação direcionada em tipos celulares relevantes para a doença. Na medicina regenerativa, os iPSCs livres de transgênos atendem aos requisitos de segurança para uma possível tradução clínica futura. Este protocolo, ao fornecer um fluxo de trabalho padronizado e reprodutível, facilita a adoção mais ampla da tecnologia de iPSCs aneuploides em diversas aplicações.
Divulgações
Os autores declaram que não possuem interesses financeiros concorrentes. A ilustração esquemática na Figura 7A foi gerada usando ferramentas assistidas por IA e posteriormente revisada e modificada pelos autores.
Agradecimentos
Este trabalho foi apoiado pelo Programa Nacional de Pesquisa e Desenvolvimento Fundamental da China (número do convênio 2022YFA0913300) e pelo Projeto Clínico Fundamental do Hospital Terceiro da Universidade de Pequim (número do convênio BYSY2022054), concedidos a Jianying Guo.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Tripsina-EDTA 0,25% | Thermo Fisher (Gibco) | 25200056 | Dissociação celular para passagem de AFC |
| Escada de DNA 100 pb Plus II | TransGen Biotech | BM321-01 | Escada de DNA |
| Freezer a -80 °C | Thermo Fisher | FDE60086fv | Armazenamento de longo prazo de DNA plasmidial e amostras |
| Solução de Dessociação Celular Accutase | StemCell Technologies | 07920 | Dissociação suave de iPSCs em pequenos agregados |
| Ácido acético (glacial) | Sigma-Aldrich | 338826 | Componente do fixador para cariótipo (MeOH:AcOH 3:1) |
| Agarose | Sigma-Aldrich | A9539 | Eletroforese em gel para produtos de PCR (2%) |
| Meio AmnioType-1 | VivaCell BIOSCIENCES | C3620-0100 | Meio de cultura primário para AFC |
| Contador Automatizado de Células / Hemocitômetro | Countstar | TC20 | Contagem de células viáveis com exclusão por azul de tripano |
| Microscópio de Campo Claro (100x com óleo) | Zeiss | Axiovert5 | Análise de metáfase para cariótipo |
| Centrífuga (rotor de balde oscilante) | Eppendorf | 5810R | Pelotização celular a 300 × g |
| Cabinet de Biossegurança Classe II | ESCO | AC2-4S8-CN | Área de trabalho estéril para todas as operações de cultura celular |
| Incubadora de CO₂ (umidificada) | Thermo scientific | 3131 | Manutenção do ambiente a 37 °C e 5% de CO₂ |
| Colcemid (10 µg/mL) | Capricorn scientific | COL-H | Arresto em metáfase para cariótipo (0,1 µg/mL, 2-4 h) |
| Meio de Congelamento Celular CryoStor CS10 | STEMCELL Technologies | 07959 | Meio de congelamento celular |
| DAPI | Merck Millipor | 10236276001 | Coloração nuclear |
| DMEM (glicose alta) | Thermo Fisher (Gibco) | 11965092 | Base para meio de cultura de fibroblastos (FC) |
| DMEM/F-12 | Thermo Fisher (Gibco) | 11330032 | Tampão para diluição de Matrigel (1:200) |
| DPBS sem Ca²⁺/Mg²⁺ | Thermo Fisher (Gibco) | 14190250 | Tampão de lavagem |
| Plasmídeo episomal (pCE-GFP) | Addgene | #41858 | Vetor de reprogramação não integrante (controle GFP) |
| Plasmídeo episomal (pCXLE-hOCT3/4-shp53-F) | Addgene | #27077 | Vetor de reprogramação não integrante (OCT4 + shp53) |
| Plasmídeo episomal (pCXLE-hSK) | Addgene | #27078 | Vetor de reprogramação não integrante (SOX2 + KLF4) |
| Plasmídeo episomal (pCXLE-hUL) | Addgene | #27080 | Vetor de reprogramação não integrante (L-MYC + LIN28) |
| Soro Bovino Fetal | HyClone | SH30071.03 | Suplemento sérico para expansão de AFC (meio FC, 15%) |
| Microscópio de Fluorescência | Leica | Sp8 | Visualização de coloração viva e IF para TRA-1-60/81 |
| Sistema de Eletroforese em Gel | Bio-Rad | 164-5056 | Análise em gel de agarose de produtos de PCR |
| Gelatina (0,1%) | Sigma-Aldrich | G1393 | Revestimento de recipiente de cultura para adesão de AFC |
| Kit de Extração de DNA Genômico | TIANGEN | 4992199 | Isolamento de DNA de qualidade para PCR a partir de iPSCs |
| Solução de Corante Giemsa | Sigma-Aldrich | GS500 | Corante de bandamento G cromossômico (5%) |
| GlutaMAX (100x) | Thermo Fisher (Gibco) | 35050061 | Suplemento para meio FC |
| Microscópio Invertido de Contraste de Fase | Zeiss | Axiovert5 | Monitoramento diário da cultura e morfologia de colônias |
| Tanque de Armazenamento em Nitrogênio Líquido | Thermo Scientific | CY50985 | Criopreservação de células |
| Matriz da Membrana Basal Matrigel | Corning | 354230 | Revestimento de recipiente de cultura para adesão de iPSCs |
| Metanol (anidro) | Sigma-Aldrich | 34860 | Componente do fixador para cariótipo (MeOH:AcOH 3:1) |
| Anticorpo NANOG (Coelho) | Abcam | ab109250 | Imunofluorescência; marcador nuclear de pluripotência |
| Kit de Eletroporação Neon NxT (100 µL) | Thermo Fisher (Invitrogen) | N10025 | Eletroporação; contém os tampões R, T, E e ponteiras de 100 µL |
| Sistema de Eletroporação Neon NxT | Thermo Fisher (Invitrogen) | NEON18S | Entrega de plasmídeos episomais por eletroporação |
| Aminoácidos Não Essenciais (NEAA, 100x) | Thermo Fisher (Gibco) | 11140050 | Suplemento para meio FC |
| Anticorpo OCT4 (Coelho) | Abclonal | A7920 | Imunofluorescência; marcador nuclear de pluripotência |
| PCR Master Mix (alta fidelidade) | TIANGEN | 4992920 | Verificação da eliminação episomal por PCR |
| pCXWB-EBNA1 | Addgene | #37624 | Expressão episomal não replicante de EBNA1 |
| Anticorpo PE anti-humano TRA-1-81 | BioLegend | 330708 | Coloração de pluripotência |
| Penicilina-Estreptomicina (100x) | Thermo Fisher (Gibco) | 15140122 | Suplemento antibiótico (NÃO utilizado após eletroporação) |
| Reagente Phalloidin-iFluor 647 | Abcam | ab176759 | Marcação de F-actina (filamentos de actina) |
| Cloreto de potássio (KCl) | Sigma-Aldrich | P5405 | Solução hipotônica para cariótipo (0,075 M) |
| Sistema de PCR em Tempo Real | Thermo Fisher Scientific | QuantStudio3 | qPCR para verificação de genes marcadores |
| Butirato de sódio (NaB) | Sigma-Aldrich | B5887 | Inibidor de HDAC; 25-100 µM para melhorar a reprogramação |
| Anticorpo SOX2 (Rato) | R&D Systems | MAB2018 | Imunofluorescência; marcador nuclear de pluripotência |
| Anticorpo SSEA-4 | BioLegend | 330408 | Imunofluorescência; marcador de superfície celular de pluripotência |
| Stereo microscópio | Nikon | SMZ745 | Coleta mecânica de colônias sob ampliação |
| TeSR-E8 | STEMCELL Technologies | 05990 | Meio de manutenção de iPSCs sem células de apoio |
| Anticorpo TRA-1-60 | Merck Millipor | MAB4360 | Coloração de pluripotência |
| Trans DNA Marker II | TransGen Biotech | BM411-01 | Escada de DNA |
| Kit de Detecção de Micoplasma TransDetect PCR | TransGen Biotech | FM311-01 | Teste de micoplasma |
| Enzima TrypLE Select (1x) | Thermo Fisher (Gibco) | 12563011 | Dissociação suave de AFCs aderentes |
| Tripsina (0,025%) | Sigma-Aldrich | T4799 | Pré-tratamento para bandamento G de lâminas (30-60 s) |
| Ciclador Térmico VeritiPro de 96 poços | Thermo Fisher Scientific | A48141 | PCR para verificação da eliminação episomal |
| Banho-maria (37 °C) | Shanghai Zhixin Experimental Instrument Technology Co., Ltd. | ZX-S22 | Descongelação de meios e reagentes |
| Y-27632 Dicloridrato (inibidor de ROCK) | Tocris | 1254 | Melhora a sobrevivência de iPSCs após dissociação (10 µM) |
Referências
- Gurdon JB. The developmental capacity of nuclei taken from intestinal epithelium cells of feeding tadpoles. Development. 1962;10(4):622-640.
- Evans MJ, Kaufman MH. Establishment in culture of pluripotential cells from mouse embryos. Nature. 1981;292(5819):154-156.
- Martin GR. Isolation of a pluripotent cell line from early mouse embryos cultured in medium conditioned by teratocarcinoma stem cells. Proc Natl Acad Sci U S A. 1981;78(12):7634-7638.
- Thomson JA, Itskovitz-Eldor J, Shapiro SS, Waknitz MA, Swiergiel J, et al. Embryonic stem cell lines derived from human blastocysts. Science. 1998;282(5391):1145-1147.
- Takahashi K, Tanabe K, Ohnuki M, Narita M, Ichisaka T, et al. Induction of pluripotent stem cells from adult human fibroblasts by defined factors. Cell. 2007;131(5):861-872.
- Fusaki N, Ban H, Nishiyama A, Saeki K, Hasegawa M. Efficient induction of transgene-free human pluripotent stem cells using a vector based on Sendai virus, an RNA virus that does not integrate into the host genome. Proc Jpn Acad Ser B Phys Biol Sci. 2009;85(8):348-362.
- Warren L, Manos PD, Ahfeldt T, Loh YH, Li H, et al. Highly efficient reprogramming to pluripotency and directed differentiation of human cells with synthetic modified mRNA. Cell Stem Cell. 2010;7(5):618-630.
- Yu J, Hu K, Smuga-Otto K, Tian S, Stewart R, et al. Human induced pluripotent stem cells free of vector and transgene sequences. Science. 2009;324(5928):797-801.
- Hou P, Li Y, Zhang X, Liu C, Guan J, et al. Pluripotent stem cells induced from mouse somatic cells by small-molecule compounds. Science. 2013;341(6146):651-654.
- Guan J, Wang G, Wang J, Zhang Z, Fu Y, et al. Chemical reprogramming of human somatic cells to pluripotent stem cells. Nature. 2022;605(7909):325-331.
- Liuyang S, Wang G, Wang Y, He H, Lyu Y, et al. Highly efficient and rapid generation of human pluripotent stem cells by chemical reprogramming. Cell Stem Cell. 2023;30(4):450-459.e9.
- Wang Y, Peng F, Yang Z, Cheng L, Cao J, et al. A rapid chemical reprogramming system to generate human pluripotent stem cells. Nat Chem Biol. 2025;21(7):1030-1038.
- Li C, Zhou J, Shi G, Ma Y, Yang Y, et al. Pluripotency can be rapidly and efficiently induced in human amniotic fluid-derived cells. Hum Mol Genet. 2009;18(22):4340-4349.
- Slamecka J, Salimova L, McClellan S, van Kelle M, Kehl D, et al. Non-integrating episomal plasmid-based reprogramming of human amniotic fluid stem cells into induced pluripotent stem cells in chemically defined conditions. Cell Cycle. 2016;15(2):234-249.
- Li Q, Fan Y, Sun X, Yu Y. Generation of induced pluripotent stem cells from human amniotic fluid cells by reprogramming with two factors in feeder-free conditions. J Reprod Dev. 2013;59(1):72-77.
- Crosland BA, Hedges MA, Ryan KS, D'mello RJ, Mccarty OJT, Amniotic fluid: its role in fetal development and beyond. J Perinatol. 2025 Aug;45(8):1163-1170. doi: 10.1038/s41372-025-02313-1. Epub 2025 May 8. PMID: 40341778; PMCID: PMC12354197.
- Liu L, et al. Amniotic fluid stem cells in birth defects: integrated roles in disease modeling, prenatal diagnosis, and therapy. Stem Cell Rev Rep. 2026. doi:10.1007/s12015-026-11161-1.
- Antonucci I, Provenzano M, Rodrigues M, Pantalone A, Salini V, et al. Amniotic fluid stem cells: a novel source for modeling of human genetic diseases. Int J Mol Sci. 2016;17(4):607.
- Guillot PV. Induced pluripotent stem (iPS) cells from human fetal stem cells. Best Pract Res Clin Obstet Gynaecol. 2016;31:112-120. doi:10.1016/j.bpobgyn.2015.08.007.
- Lu HE, Yang YC, Chen SM, Su HL, Huang PC, et al. Modeling neurogenesis impairment in Down syndrome with induced pluripotent stem cells from trisomy 21 amniotic fluid cells. Exp Cell Res. 2013;319(4):498-505.
- Lee CC, et al. Establishment of a human trisomy 18 induced pluripotent stem cell line from amniotic fluid cells. Stem Cell Res. 2018;29:115-119.
- D'Aurora M, et al. Modeling Klinefelter syndrome using induced pluripotent stem cells reveals impaired germ cell differentiation. Front Cell Dev Biol. 2020;8:567454.
- Mali P, Chou BK, Yen J, Ye Z, Zou J, et al. Butyrate greatly enhances derivation of human induced pluripotent stem cells by promoting epigenetic remodeling and the expression of pluripotency-associated genes. Stem Cells. 2010;28(4):713-720.
- Guo J, Lee Q, Qiu H, Wei Y, Zhu X, et al. Patient-derived neural organoids reveal developmental impairments associated with a novel GJB1 mutation in X-linked Charcot-Marie-Tooth disease. Neurobiol Dis. 2026;220:107299.
- Nanbo A, Sugden A, Sugden B. The coupling of synthesis and partitioning of EBV's plasmid replicon is revealed in live cells. EMBO J. 2007;26(19):4252-4262.
- Chou BK, Mali P, Huang X, Ye Z, Dowey SN, et al. Efficient human iPS cell derivation by a non-integrating plasmid from blood cells with unique epigenetic and gene expression signatures. Cell Res. 2011;21(3):518-529.
- Okita K, Matsumura Y, Sato Y, Okada A, Morizane A, et al. A more efficient method to generate integration-free human iPS cells. Nat Methods. 2011;8(5):409-412.
- Cheng L, Wang Y, Yang Z, Cao J, Peng F, et al. p53 safeguards chemical reprogramming of human somatic cells toward pluripotency. Cell. 2026. doi:10.1016/j.cell.2026.03.038.
- Akutsu SN, Miyamoto T, Oba D, Tomioka K, Ochiai H, et al. iPSC reprogramming-mediated aneuploidy correction in autosomal trisomy syndromes. PLoS One. 2022;17(3):e0264965.
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve