Загрязнение подготовки эукариотических рибосом очищают традиционными методами путем совместной очистки нуклеаз и протеаз отрицательно влияет на течение биохимических и структурных анализов. Быстрый и простой хроматографический метод очистки используется для решения этой проблемы с помощью дрожжей рибосомы в качестве модельной системы.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Хроматографической очистки высокоактивной рибосомы дрожжей
В этой статье
Краткое содержание
Аннотация
Эукариотической рибосомы являются гораздо более лабильны по сравнению с их эубактерий и archael коллег, что создает серьезную проблему для исследователей. Особенно беспокойство тот факт, что лизис клетки-релизы большое количество протеаз и нуклеаз, которые могут ухудшить рибосом. Таким образом, важно, чтобы отдельные рибосом из этих ферментов как можно быстрее. К сожалению, обычные методы дифференциального центрифугирования листьев рибосомы подвергаются воздействию этих ферментов для неприемлемо длительных периодов времени, воздействуя на их структурной целостности и функциональности. Для решения этой проблемы, мы используем хроматографический метод с использованием цистеин взимается Sulfolink смолы. Это простое и быстрое применение значительно снижает совместно очистки протеолитических и nucleolytic деятельность, производя высокие урожаи нетронутыми, высоко биохимически активные рибосомы дрожжей. Мы полагаем, что этот метод должен быть применим и к млекопитающим рибосом. Простотаметод, и расширение чистоты и активности хроматографически очищенный рибосома представляет собой значительный технический прогресс в изучении эукариотических рибосом.
Протокол
1. Подготовка цистеина взимается Sulfolink смолы
- Подготовка Sulfolink смолы (Pierce) при комнатной температуре.
- Место в общей сложности 10 мл 50% суспензии Sulfolink связи гель, поставляемые производителем в двух 10 мл пластиковые пробирки с 5 мл распределяется в каждом флаконе.
- Кратко центрифуги флаконах по 850 мкг и осторожно удалите супернатанты.
- Вымойте гель три раза в связи буфера (50 мМ Трис, рН 8,5, 5 мМ ЭДТА) по ресуспендирования бусин в 5 мл, центрифугирование кратко при 850 мкг и удаление супернатант пипетки.
- Добавьте пять мл 50 мМ раствора L-цистеина в связи буфера в каждую пробирку и смешать суспензию в течение 1 часа при 25 ° C.
- Удаление остаточного L-цистеин промывкой, как описано в пункте 1.4 выше.
- Ресуспендируют гель в 10 мл буфера для связывания [20 мМ HEPES, рН 7,6, 5 мМ Mg (OAc) 2, 60 мМ NH 4 Cl, 2 мМ DTT], и равновесие смолы промывкой в 10 мл буфера для связывания3 раза, как описано в пункте 1.4. Декантировать смолы в 10 мл центрифугу колонка, шапка и хранили при температуре 4 ° С. Смола потенциал для связывания РНК ~ 20 260 единиц на мл.
2. Хроматографическая очистка рибосом использованием цистеин взимается Sulfolink смолы
Примечание: При работе со штаммом, где протеазы деятельности оказывается вопрос, коктейли протеазы торможение может быть использована во всех последующих буферов.
- Поддерживать все компоненты на льду и подготовить все решения с использованием РНКазы без воды и стерильной фильтрации.
- Расти дрожжевых клеток в течение ночи с середины логарифмической фазы (OD 595 = 0,6 - 1,2) в соответствующих средствах массовой информации. Гранул клетки центрифугированием и вымыть 1 грамм клетки в связывании буфера и центрифуге при 3700 мкг в течение 5 минут при температуре 4 ° C.
- Ресуспендируют клеток в 1 мл буфера для связывания к приближенному общем объеме 2 мл, и сорвать использованием равным объемом 0,5 бисером мм стекло охлажденным до 4 ° С сопеть БИОСПЕК Мини-бусинки колотушки (Bartlesville, OK). Образцы могут быть разбита на несколько труб по мере необходимости.
- Удалить непрерывной клетки, органеллы и клеточное мусора путем центрифугирования при 30000 мкг в течение 30 минут в Beckman Coulter Optima-Макс E ультрацентрифуге (Фуллертон, Калифорния).
- Непосредственно перед использованием, гранул смолы в течение одной минуты при 1000 мкг для удаления решение для хранения данных. Два мл смолы используется для каждого одного грамма клеток.
- Удалить надосадочную жидкость Клеточный лизат из 30 000 мкг спина (S30), с учетом необходимости минимизации загрязнения либо из липидной фракции на самом верху или клетка мусора в нижней части трубы, и поместить непосредственно в заряженной Sulfolink суспензии. Липидного слоя можно избежать, либо путем удаления или при нажатии из пипетки после кончик уже не перешла в супернатант.
- Выдержите смесь S30/Sulfolink на льду без перемешивания в течение 15 минут.
- Место столбцов в 15 мл конические пробирки и центрифуги в 1000 XG длят за одну минуту.
- Место flowthrough фракций обратно в столбцах, перемешать вручную, и выдержать в течение еще 15 минут на льду.
- Место столбцов в 15 мл конические пробирки и центрифуге при 1000 мкг в течение одной минуты. Отменить flowthrough.
- Cap колонн и добавляют 5 мл буфера для связывания. Смешайте столбцов вручную до ресуспендировали, удалять шапки, и центрифуга столбцов центрифуге при 1000 мкг в течение одной минуты. Повторите эту стиральную протокол еще два раза.
- Добавить 1,5 мл элюирующего буфера (20 мМ HEPES-KOH, рН 7,6, 10 мМ Mg (OAc) 2, 500 мМ KCl, 2 мМ ДТТ, 0,5 мг / мл гепарина) для каждого столбца. Смешайте растворы вручную, и инкубировать на льду в течение 2 минут
- Место столбцов в новые 15 мл конические пробирки и центрифуге при 1000 мкг на 1 минуту. Сбор элюата. Повторите элюирования шаг еще раз, так что окончательные объединенные объемы образца ~ 3 мл. Используется смолы можно мыть элюции буфера без гепарина и затем уравновешивания с обязательным buffeг, и хранится в 10 мл объема буфера для связывания при 4 ° С для повторного использования в последующем.
3. Пуромицин лечения
Примечание: альтернативный метод для удаления загрязняющих тРНК видов заключается в переходе от глюкозы богатых глюкозой обедненного СМИ для продвижения рибосомы стока. Однако это изменение метаболического статуса дрожжевых клеток, которые могут повлиять на функции рибосом и концентрации.
Для того, чтобы лишить рибосом из эндогенных пептидил-тРНК, лечение пуромицин не выполняется.
- Нейтрализовать до рН 7,5 100 Решение пуромицин мМ, добавляя по каплям 1М КОН при комнатной температуре.
- Добавить нейтрализованы пуромицин решение ~ 1 мМ конечной концентрации в элюата.
- Добавьте 100 мМ GTP к конечной концентрации 1 мМ.
- Инкубировать 30 минут при 30 ° C.
4. Очистка рибосом путем осаждения через глицерина подушки
- Поместите один млподушки буфера (20 мМ HEPES, рН 7,6, 10 мМ Mg (OAc) 2, 500 мМ KCl, 2 мМ DTT, 25% глицерина) в 4 мл объема трубки ультрацентрифуге поликарбоната.
- Осторожно слой пуромицин лечение элюирования фракций в верхней части подушки, а также центрифуги образцов при 100 000 мкг на ночь при 4 ° C.
- Удалить трубы из ротора центрифуги, и аспирата супернатанты.
- Вымойте гранулы содержащие очищенные рибосомы в два раза с 1 мл подушки буфера.
- Ресуспендируют рибосом в 100 мкл буфера подушки, осторожно нарушение использованием стеклянной палочкой.
- После нарушения, крышка труб с парафильмом и трясти с умеренной скоростью в холодной комнате вихрь на один час.
- Передача содержимого микроцентрифужных трубки, центрифуги в течение 5 минут на максимальной скорости при температуре 4 ° С, и удалить супернатанты на свежий труб.
- Повторите шаги с 4,1 до 4,7 с использованием 2 мл буфера подушки и, кроме того, что 100 мкл хранения буфера (50 мМ HEPES-КОН рН 7,6, 50 мМ NH 4 Cl, 5 мМ Mg(OAc) 2, 1 мМ DTT, 25% глицерина) используется с шагом 4,4 и 4,5 вместо подушки буфера.
- Количественная очищенные рибосомы спектрофотометрически (1 260 = 20 пмоль рибосомы дрожжей), и хранят при температуре -80 ° C. Типичные результаты с 1 грамм дрожжей 300-400 пмоль рибосом.
5. Представитель результаты:
Например видов РНК, выделенная из каждого из трех основных этапов протокола показан на рисунке 2. Хотя рРНК являются основными видами настоящее время в общей сложности лизатов клетки (Т), они также содержат большое количество других видов РНК. Рибосомы очищенный от колонки Sulfolink (SL) также содержат большое количество тРНК из-за высокого сродства колонке кровать для этих видов. Лечение этой фракции с пуромицином приводит гидролиз пептидов из пептидил-тРНК, и способствует диссоциации этих видов из рибосом. Пуромицин обработанные образцы (Pm) отсутствие совместного purifyinг тРНК видов, и, следовательно, представляют собой совершенно чистой рибосом. Как сообщалось ранее 8, эти рибосомы сильно повреждена и биохимически активны, что делает их идеальным субстратом для подробного функционального и структурного анализа.
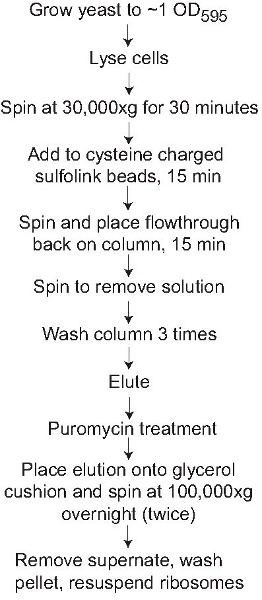
Рисунок 1. Метод блок-схем. Хроматографическая очистка рибосом использованием цистеина связаны sulfolink смолы изображен.
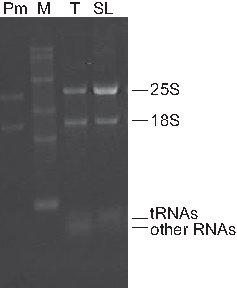
Рисунок 2. Представитель Анализ препаратов рибосом. Всего видов РНК были извлечены из общего лизатов клетки (Т), Sulfolink очищенные рибосомы (SL) и Sulfolink очищенные рибосомы впоследствии обработанные пуромицин и отложившейся за глицерина подушке (ТЧ). Лейн М представляет маркеров РНК размером. Группы представляют 25S и 18S рРНК, а также тРНК и другие виды РНК указаны. Всеполосы были загружены с 2 мкг РНК.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Рибосома протоколы очистки в основном связаны с лизису клеток, уборка цитозольного фракции низкой скорости вращения, а затем гранулирования рибосомы высокой скорости центрифугирования 1. Хотя несколько новых методов были использованы для очистки бактериальных рибосом, то же не было верно для эукариот 2-4. Хотя дополнительные шаги, которые были добавлены на протяжении лет, например, моет соль, глицерин и подушки (см., например, 5), биохимические и структурные исследования рибосомы дрожжей...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Нет конфликта интересов объявлены.
Благодарности
Мы хотели бы поблагодарить всех членов лаборатории Dinman, в том числе Эштон Белью, Карен Джек, Sharmishtha Musalga, Сергей Сулима, Шивани Редди, и Майкл Родин за их помощь и информацию по этому проекту. Эта работа была поддержана грантами А. М. от Американской ассоциации сердца (AHA 0630163N) и JDD из Национального института здоровья (5R01 GM058859-12). JAL была поддержана американской реинвестирования и восстановлению Закон 2009 года дополнением к родителю гранта (3R01GM058859-11S1).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Название реагента | Компания | Номер по каталогу | |
| Sulfolink Муфта смолы | Прокалывать | 20402 | |
| Мини шарик для взбивания 16 | БИОСПЕК | 607 | |
| Оптима Макс E ультрацентрифуге | Beckman Coulter | ||
| Легенда РТ | Sorvall | ||
| 0,5 мм Стеклянные бусы | БИОСПЕК | 11079105 | |
| Трис | Sigma-Aldrich | 252859 | |
| ЭДТА | Sigma-Aldrich | E9884 | |
| DTT | Sigma-Aldrich | 43815 | |
| HEPES | Sigma-Aldrich | 54459 | |
| NH 4 Cl | Sigma-Aldrich | A9434 | |
| KCl | Sigma-Aldrich | 60128 | |
| Mg (OAc) 2 | Sigma-Aldrich | M5661 | |
| КОН | Sigma-Aldrich | 221473 | |
| Глицерин | Sigma-Aldrich | G5516 | |
| Пуромицин | Sigma-Aldrich | P7255 | |
| GTP | Fermentas | R0461 |
Ссылки
- Palade, G. E., Siekevitz, P. Liver microsomes; an integrated morphological and biochemical study. J. Biophys. Biochem. Cytol. 2, 171-200 (1956).
- Fabry, M., Kalvoda, L., Rychlik, I. Hydrophobic interactions of Escherichia coli ribosomes. Biochim. Biophys. Acta. 652, 139-150 (1981).
- Jelenc, P. C. Rapid purification of highly active ribosomes from Escherichia coli. Anal. Biochem. 105, 369-374 (1980).
- Le goffic, F., Moreau, N., Chevelot, L., Langrene, S., Siegrist, S. Purification of bacterial ribosomes using chloramphenicol and erythromycin columns. Biochimie. 62, 69-77 (1980).
- Meskauskas, A., Petrov, A. N., Dinman, J. D. Identification of functionally important amino acids of ribosomal protein L3 by saturation mutagenesis. Mol. Cell Biol. 25, 10863-10874 (2005).
- Algire, M. A. Development and characterization of a reconstituted yeast translation initiation system. RNA. 8, 382-397 (2002).
- Maguire, B. A., Wondrack, L. M., Contillo, L. G., Xu, Z. A novel chromatography system to isolate active ribosomes from pathogenic bacteria. RNA. 14, 188-195 (2008).
- Leshin, J. A., Rakauskaite, R., Dinman, J. D., Meskauskas, A. Enhanced purity, activity and structural integrity of yeast ribosomes purified using a general chromatographic method. RNA. Biol. 7, 354-360 (2010).
- Triana, F., Nierhaus, K. H., Chakraburtty, K. Transfer RNA binding to 80S ribosomes from yeast: evidence for three sites. Biochem. Mol. Biol. Int. 33, 909-915 (1994).
- Azzam, M. E., Algranati, I. D. Mechanism of puromycin action: fate of ribosomes after release of nascent protein chains from polysomes. Proc. Natl. Acad. Sci. U. S. A. 70, 3866-3869 (1973).
- Nathans, D. Puromuycin inhibition of protein synthesis: incorporation of puromycin into peptide chains. Proc. Natl. Acad. Sci. U. S. A. 51, 585-592 (1964).
- Rabinovitz, M., Fisher, J. M. A dissociative effect of puromycin on the pathway of protein synthesis by Ehrlich ascites tumor cells. J. Biol. Chem. 237, 477-481 (1962).
- Allen, D. W., Zamecnik, P. C. The effect of puromycin on rabbit reticulocyte ribosomes. Biochim. Biophys. Acta. 55, 865-874 (1962).
- Yarmolinsky, M. B., Haba, G. L. Inhibition by puromycin of amino acid incorporation into protein. Proc. Natl. Acad. Sci. U. S. A. 45, 1721-1729 (1959).
- Becker-Ursic, D., Davies, J. In vivo and in vitro phosphorylation of ribosomal proteins by protein kinases from Saccharomyces cerevisiae. Biochemistry. 15, 2289-2296 (1976).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
