Мембранный транспорт включает в себя транспортировку белков из плазматической мембраны внутрь клетки (т.е. эндоцитоз) с последующим перемещением в лизосомы для деградации или в плазматическую мембрану для переработки. Методы, описанные в данной статье, предназначены для изучения эндоцитоза и рециркуляции белков плазматической мембраны.
Методическая статья
Клеточная L-глутатион Защита Анализы по изучению эндоцитоза и утилизации белков плазматической мембраны
В этой статье
Краткое содержание
Аннотация
Торговля Мембрана включает транспорт белков из плазматической мембраны к внутренней клеток (т.е. эндоцитоза) с последующим оборотом в лизосомы для деградации или плазменной мембраны для переработки. Ячейки на основе анализа защиты L-глутатиона может быть использован для изучения эндоцитоз и утилизации белковых рецепторов, каналов, транспортеров и молекул адгезии, локализованных на поверхности клеток. Эндоцитотический анализ требует маркировки белков клеточной поверхности с клеточной мембраны непроницаемой биотина, содержащей дисульфидную связь и N-гидроксисукцинимид (NHS) эфир на 4 º C - температуры, при которой торговля мембраны не происходит. Эндоцитоза биотинилированных белков плазматической мембраны индуцируется путем инкубации при 37 ° С. Затем температуру снова снизилась до 4 º C, чтобы остановить эндоцитического с торговлей людьми и дисульфидные связи в биотина ковалентно присоединенную к белкам, которые остались в плазматической мембране уменьшается с L-glutathiодин. В этот момент только белки, которые были эндоцитарных остаются защищенными от L-глутатиона и, таким образом, остаются биотинилированного. После лизиса клеток, биотинилированные белки, изолированные со стрептавидин агарозы, элюировали из агарозы, и биотинилированный интерес белок обнаружен с помощью вестерн-блоттинга. В ходе анализа переработки, после биотинилирования клетки инкубируют при 37 ° С, чтобы загрузить эндоцитотических везикулы с биотинилированных белков и дисульфидной связи в биотина, ковалентно присоединенных к белкам оставшихся на плазматической мембране уменьшается с L-глутатиона на 4 ° С, как в эндоцитоза анализа . Далее, клетки инкубируют еще раз при 37 ° С, чтобы позволить биотинилированные белки эндоцитотических пузырьков рециркулировать к плазматической мембране. Клетки затем инкубировали при 4 ° С, а дисульфидной связи в биотина присоединены к белкам, которые возвращают в плазматических мембран уменьшается с L-глутатиона. Биотинилированные белки защищенные от L-глутатиона являются те, которые не переработать в плазме мembrane.
Введение
Все живые клетки обрабатывают информацию, транспортируя грузы, такие как внеклеточные лиганды, микроорганизмы, питательные вещества, трансмембранные белки и липиды от плазматической мембраны к эндоцитарным везикулам (т.е. эндоцитоз). Обратный процесс, называемый рециркуляцией, уравновешивает эндоцитоз и возвращает большую часть интернализованной мембраны и груза на поверхность клетки. Баланс между эндоцитозом и рециркуляцией контролирует состав плазматической мембраны и предоставляет клеткам информацию, которая была разрешена во времени и пространстве. Эндоцитоз и рециркуляция являются основными регуляторами различных клеточных функций, таких как поглощение питательных веществ и метаболизм, развитие, пролиферация, дифференцировка и полярность, перепрограммирование, миграция, адгезия и миграция клеток, цитокинез инейротрансмиссия. Эндоцитарные и рециркуляционные пути очень динамичны и высоко координированы, что позволяет клеткам переворачивать эквивалент всей плазматической мембраны 1-5 раз в час.
Клеточные анализы защиты L-глутахиона полезны для изучения эндоцитоза и рециркуляции трансмембранных белков, включая рецепторы, каналы, транспортеры и молекулы адгезии в эпителиальных и неэпителиальных клетках4-8. Ранее мы изучали эндоцитоз и рециркуляцию трансмембранного регулятора проводимости муковисцидоза (CFTR) в эпителиальных клетках дыхательных путей человека и клетках HEK2939-15. Описанные в рукописи анализы на основе биотинилирования оптимизированы для изучения эндоцитоза и рециркуляции в эпителиальных клетках, культивируемых в поляризационных условиях на полупроницаемых поддержках для роста. Эти протоколы могут быть модифицированы для изучения эндоцитоза и рециркуляции белков в эпителиальных клетках, культивируемых в пластиковых чашках для культуры тканей или в неэпителиальных клетках. На рисунках 1 и 2 приведены примеры эндоцитарных и рециркуляционных анализов в эпителиальных и неэпителиальных клетках.
Эндоцитарные анализы выполняются, как описано ранее9-15. Клетки культивируются на покрытых коллагеном полупроницаемых опорах роста11,14. В качестве альтернативы клетки могут культивироваться в пластиковых чашках для культивирования тканей, покрытых коллагеном10,15. Клетки быстро охлаждают до 4 ºC, чтобы остановить мембранный транспорт, а белки плазматической мембраны помечают при 4 °C непроницаемым для клеточной мембраны биотином. Биотин реагирует с ε-амин остатков лизина, а дисульфидная связь является тиол-расщепляемой. После биотинилирования клетки инкубируют при 37 °С, чтобы индуцировать транспорт белка и загрузить эндоцитарные везикулы на 2,5, 5,0, 7,5 или 10 минут. Затем клетки охлаждают до 4 °C, а дисульфидная связь в биотине, ковалентно прикрепленном к белкам плазматической мембраны, восстанавливается с помощью L-глутатиона (GSH). На этом этапе протокола только белки, которые были эндоцитозированы из плазматической мембраны, защищены от GSH и, таким образом, остаются биотинилированными. Клетки, оставшиеся при 4 °C после биотинилирования без инкубации при 37 ºC или обработки GSH, будут служить для определения количества CFTR биотинилированного в нулевой момент времени. Клетки, оставшиеся при 4 °C после биотинилирования без инкубации при 37 ºC, но с обработкой GSH, могут служить для определения эффективности восстановления дисульфидных связей. После описанных выше методов лечения клетки лизируют, биотинилированные белки выделяют стрептавидином агарозой, элюируют в буфер для образцов SDS и разделяют с помощью SDS-PAGE. Представляющий интерес белок обнаруживается в биотинилированных образцах методом вестерн-блоттинга. Количество биотинилированного белка при 4 ºC в нулевой момент времени (без потепления на 37 ºC) считается 100%. Количество белка, оставшегося биотинилированным после обработки GSH при 4 ºC, считается фоновым и вычитается из количества белка, остающегося биотинилированным после нагревания до 37 ºC в разные моменты времени. Белковый эндоцитоз рассчитывается после вычитания фона и выражается в процентах биотинилированного белка в каждый момент времени после нагревания до 37 ºC по сравнению с количеством биотинилированного белка, присутствующего в нулевой момент времени.
Анализы переработки проводятся как описано ранее11,16. Клетки культивируются на покрытых коллагеном полупроницаемых опорах роста11. В качестве альтернативы клетки могут быть культивированы на пластиковых чашках для культивирования тканей, покрытых коллагеном13. После биотинилирования клетки нагревают до 37 °C для загрузки эндоцитарных везикул биотинилированными белками. Время первой инкубации при 37 ºC определяется временем, когда эндоцитоз исследуемого белка достигает максимума при линейном повышении эндоцитарного сигнала. Время зависит от белка и может зависеть от типа клетки и условий клеточной культуры. По нашему опыту, эндоцитоз CFTR достигал максимума при 5,0 или 7,5 мин13,14 (рис. 1 и 2). Затем клетки немедленно охлаждают до 4 °C, а дисульфидная связь в биотине, прикрепленном к белкам плазматической мембраны, восстанавливается с помощью GSH. Затем клетки либо лизируют для определения количества эндоцитозированного белка, представляющего интерес, либо снова нагревают до 37 °C в течение различных периодов времени, чтобы эндоцитозированный биотинилированный белок, представляющий интерес, мог вернуться в плазматическую мембрану. Затем клетки снова охлаждают до 4 °C, и дисульфидная связь на биотине, прикрепленная к белкам, рециркулирующим в плазматических мембранах, восстанавливается с помощью GSH. Рециркуляция интересующего белка определяется по разнице между количеством биотинилированного белка после первой и второй обработки GSH.
Целесообразность эндоцитарных и рециркуляционных анализов зависит от нескольких факторов. Во-первых, образование монослоев клеток является необходимым условием, и клетки, которые не образуют монослой или растут как многослойные, не подходят для анализов, описанных в этой рукописи. Во-вторых, обилие интересующего белка на поверхности клетки и наличие антитела для обнаружения белка с помощью вестерн-блоттинга имеют решающее значение. Мы рекомендуем сначала определить равновесное содержание белка в цельноклеточных лизатах (WCL). В-третьих, следует проверить способность биотинилировать специфический белок клеточной поверхности. Биотин присоединяется к остаткам лизина. Таким образом, эффективность биотинилирования частично зависит от количества остатков лизина во внеклеточном домене белка. Соответственно, мы рекомендуем провести скрининг последовательности белка, чтобы определить, присутствуют ли остатки лизина во внеклеточном домене (доменах). Не все остатки лизина внеклеточного домена могут быть одинаково доступны для биотина из-за сворачивания белка. Следовательно, биотинилирование белка в равновесном состоянии с последующим вестерн-блоттингом должно быть выполнено не только для определения содержания белка в стационарном состоянии на поверхности клетки, но и для изучения возможности проведения анализов на основе биотинилирования для интересующего белка.
Этот протокол оптимизирован для исследования эндоцитоза и рециркуляции CFTR дикого типа в эпителиальных клетках дыхательных путей человека CFBE41o-, культивируемых на полупроницаемых поддержках роста 24 мм в воздушно-жидкостном интерфейсе9,10,13-15. CFTR поляризуется к апикальному мембранному домену; Таким образом, протокол описывает биотинилирование апикального мембранного домена. Биотинилирование домена базолатеральной мембраны потребуется для изучения эндоцитоза и рециркуляции белков, поляризующихся к базолатеральной мембране. Протокол эндоцитарного анализа, описанный в данной рукописи, имеет 6 условий: только биотинилированный (BT = нулевое время; образец a); контроль ГСГ (ГСГ; образец б); и эндоцитарные временные точки за 2,5, 5,0, 7,5 или 10 минут (образцы c; Таблица 1). Количество и/или длина эндоцитарных временных точек в протоколе могут быть изменены по мере необходимости.
Анализ рециркуляции проводится после определения момента времени, когда эндоцитоз исследуемого белка достигает максимума во время линейного увеличения эндоцитарного сигнала. Этот момент времени будет использоваться для загрузки эндоцитарных везикул интересующим белком перед индуцированием рециркуляции. Время зависит от белка и может отличаться в зависимости от типа клеток и условий культивирования15. Ранее нами было установлено, что эндоцитоз CFTR достиг плато в момент времени 7,5 мин в эпителиальных клетках дыхательных путей человека CFBE41o-, стабильно экспрессирующих CFTR15. Напротив, эндоцитоз CFTR достиг плато в 5,0 мин в клетках HEK293, стабильно экспрессирующих CFTR13. Протокол анализа рециркуляции, описанный в данной рукописи, имеет 5 условий: только биотинилированный (BT = нулевое время; образец a); контроль ГСГ (ГСГ; образец б); 5,0 мин эндоцитоза (Endo; образец c), 5,0 мин эндоцитоза с последующим временем рециркуляции 2,5 или 5,0 мин (Rec; образцы d; Таблица 2). Количество и/или продолжительность временных точек переработки в протоколе могут быть изменены по мере необходимости.
Протокол
1. Затравка ячеек
- Предварительно обработайте фильтры 24 мм 10% коллагеном I (приготовьте 10% коллагена I в минимальной эфирной среде (MEM), покройте всю поверхность фильтра раствором коллагена, инкубируйте под ультрафиолетовым светом при комнатной температуре в течение 30 мин и в инкубаторе для клеточных культур при 37 ºC в течение 1 часа, отсосите излишки коллагена после инкубации).
- Приготовьте питательную среду для клеточных клеток (МЭМ, газообразныйСО2 в течение 20 мин, 10% фетальная сыворотка крупного рогатого скота (FBS), 50 Ед/мл пенициллин, 50 Ед/мл стрептомицина, 2 мМ L-глутамина, 0,5 мкг/мл пуромицина)
- Зародышевые CFBE41o-клетки на шести 24 мм фильтрах для эндоцитоза и рециркуляции, соответственно, при 1 х 106/фильтр.
- Удаляйте верхушечную среду на следующий день после посева и ежедневно подкармливайте только с базолатеральной стороны.
- Скармливать с отбором антибиотика отрицательной средой за 24 часа до начала эксперимента. Эксперимент проводят на клетках CFBE41o- через 6-10 дней после посева.
2. Препараты перед экспериментом (аналогично анализу эндоцитоза и рециркуляции)
- Обустройте место для скамейки в холодильной камере. Эндоцитарный анализ и анализ рециркуляции следует проводить в холодильной камере, за исключением инкубации при 37 °C. Планшеты, содержащие фильтры диаметром 24 мм, должны быть размещены непосредственно на столе в холодильной камере.
- Включите инкубатор при температуре 37 ºC.
- Приготовьте 500 мл PBS++, pH 8,2 (фосфатно-солевой буфер Dulbecco's Buffered (PBS), 1 мМ хлорида магния и 0,1 мМ хлорида кальция, pH 8,2) и выдержите 250 мл при 37 °C в инкубаторе и 250 мл при 4 °C в холодильной камере.
- Заполните лунки в 6-луночной пластине PBS++, pH 8,2, 37 °C и держите в инкубаторе при температуре 37 °C.
- Заполните лунки в другой 6-луночной пластине PBS++, pH 8,2, 4 °C и держите в холодном помещении при температуре 4 °C.
- Приготовьте 100 мл PBS++, pH 8,6 при 4 °C и храните в холодном помещении.
- Биотин, содержащий дисульфидную связь и NHS-эфир, приготовьте в концентрации 0,8 мг/мл в PBS++, pH 8,2, 4 °C в течение 30 минут после стадии биотинилирования (объем биотинового буфера должен полностью покрывать всю поверхность фильтра); мы рекомендуем фильтр 1,5 мл/24 мм.
- Приготовьте 100 мл буфера GSH в воде, pH 8,6 и охладите до 4 ºC (75 мМ натрия хлорида, 1 мМ магния хлорида и 0,1 мМ кальция хлорида, 50 мМ GSH, 80 мМ натрия гидроксида и 10% FBS). ГШ и гидроксид натрия следует добавлять непосредственно перед экспериментом. Проверьте pH и отрегулируйте до 8,6; Гидроксид натрия нейтрализует карбоксильные группы и депротонирует половину остатков цистеина в глутатионе. Он сильно буферизован на pKa этого цистеина, который составляет 8,64. (Приготовьте такой же объем буфера GSH для анализа вторичной переработки).
- Приготовьте 50 мл буфера для лизиса, pH 8,2 и поддерживайте при температуре 4 °C (25 mM HEPES, pH 8,2, 1% (v/v) Triton X-100, 10% (v/v) глицерин); добавьте коктейль ингибиторов протеазы Complete на 50 мл буфера для лизиса и охладите до 4 ºC; проверьте pH после добавления Complete, так как может произойти падение pH.
- Приготовьте буфер для проб Laemli с 100 мМ DTT.
- Приготовьте 1x Running buffer (100 мл 10x Running buffer, 900 мл воды).
- Приготовьте 1x Transfer buffer и охладите до 4 ºC (100 мл 10x Transfer buffer без додецилсульфата натрия (SDS), 200 мл метанола, 700 мл воды).
3. Эндоцитарный анализ
CFTR поляризуется к апикальному мембранному домену; таким образом, протокол описывает биотинилирование апикального мембранного домена. Для изучения эндоцитоза белков, поляризующихся к базолатеральной мембране, потребуется биотинилирование домена базолатеральной мембраны.
Рабочий процесс: Биотинилирование белков клеточной поверхности при 4 ºC → Нагревание до 37 ºC для загрузки эндоцитарных везикул биотинилированными белками → Охлаждение до 4 ºC для остановки эндоцитарного транспорта → Уменьшение дисульфидной связи в биотине, прикрепленном к белкам, оставшимся на поверхности клетки → Лизис клетки → Выделение биотинилированных (т.е. эндоцитозные) белки со стрептавидином агарозой → элюирование биотинилированных белков из стрептавидина агарозы → электрофорез белков и вестерн-блоттинг.
- Выньте планшет с шестью фильтрами 24 мм (Таблица 1: образцы a-c) из инкубатора для клеточных культур и быстро переложите в планшет, наполненный холодным (4 ºC) PBS++, pH 8,2 на льду.
- Дайте PBS++ переполнить апикальную поверхность, чтобы быстро покрыть всю поверхность. Принесите тарелку со льдом в холодильную камеру и установите на столешницу.
- Быстро снимите PBS++, перевернув пластину вверх дном, удерживая фильтры на месте для предотвращения выпадения. Добавьте ~2 мл PBS++ на апикальную и базолатеральную сторону.
- Промойте фильтры ~2 мл холодного PBS++, pH 8,2 3x в течение 2 мин. Отсасывайте смывку с одной стороны за раз, апикальной или базолатеральной и добавляйте свежий PBS++, pH 8,2 с одной стороны за раз.
- Отсасывайте от последнего смывателя и добавьте 1 мл PBS++, pH 8,2 на базолатеральную сторону. Добавьте 1,5 мл биотинового буфера на апикальную сторону и выдерживайте в темноте в течение 30 минут. Избегайте разлива буферов на контрлатеральную сторону.
- Отсосите биотиновый буфер с апикальной стороны и промойте PBS++, pH 8,2 3x в течение 2 минут.
- Отложите в другую тарелку два фильтра (Таблица 1: образцы а и б), добавьте ~2 мл PBS++, pH 8,2 на апикальную и базолатеральную сторону и храните в холодном помещении. Храните оставшиеся 4 фильтра в одной тарелке (Таблица 1: образцы c) и добавьте ~2 мл PBS++ pH 8,2 с апикальной и базолатеральной стороны каждого фильтра. Поставьте тарелку на лед и поставьте на столешницу рядом с инкубатором с температурой 37 ºC.
- Быстро перенесите фильтры со льда на тарелку в инкубаторе с температурой 37 ºC, заполненном предварительно подогретым PBS++ pH 8,2, и инкубируйте по одному фильтру с точностью до 2,5, 5,0, 7,5 или 10 минут, покрывая всю поверхность каждого фильтра теплым PBS++ pH 8,2.
- Во время инкубации заполните полностью четыре лунки в тарелке на льду с холодным (4 ºC) PBS++ pH 8,2.
- По истечении указанного времени инкубации переверните каждый фильтр вверх дном, чтобы слить теплый (37 ºC) PBS++, pH 8,2 и переложите на тарелку на лед. Добавьте холодный PBS++, pH 8,2, чтобы перелить апикальную сторону и быстро покрыть всю поверхность каждого фильтра.
- После переноса фильтров на лед отнесите тарелку в холодильную камеру и установите на столешницу.
- Отсасывайте PBS++ с двух сторон во всех фильтрах (образцы a-c) и заполняйте базолатеральную сторону 1 мл PBS++ pH 8,6. Добавьте 1,5 мл PBS++, pH 8,6 на апикальную сторону фильтра a (Таблица 1: образец a).
- Уменьшите дисульфидную связь в биотине, прикрепленном к белкам апикальной мембраны, с помощью буфера GSH (pH 8,6) в фильтрах b и c (Таблица 1: образец b и c).
- Добавьте 1,5 мл буфера GSH на апикальную сторону, инкубируйте в течение 15 минут и повторите шесть раз.
- Держите 1 мл PBS++ pH 8,6 на базолатеральной стороне. Избегайте рассыпания буфера на базолатеральную сторону.
- После выполнения процедуры 3.15 кратковременно промойте все фильтры (Таблица 1: образцы a, b и c) PBS++ pH 8.2 2x, отсосите промывку с апикальной и базолатеральной стороны и установите пластину с фильтрами под углом 45°, чтобы снова слить всю промывку и всасывание.
- Поставьте планшет на столешницу и добавьте 500 μл буфера для лизиса на апикальную сторону каждого фильтра и инкубируйте в холодной комнате, встряхивая, в течение 15 минут.
- Соскребите ячейки резиновым полицейским и соберите в пробирку Эппендорфа объемом 1,5 мл.
- Вращайте при 14 000 x g в течение 10 минут при температуре 4 °C.
- Переложите надосадочную жидкость в свежие пробирки объемом 1,5 мл и выбросьте гранулы. Надосадочная жидкость теперь называется лизатами цельных клеток (WCL).
- Добавьте 100 мкл буфера для проб Laemli с DTT к 50 мкл WCL (10% от всего WCL) и инкубируйте при 37 °C в течение 30 мин (образцы WCL).
- Приготовьте 200 μл аликвот 50% стрептавидина агары и удалите весь буфер для промывки с помощью иглы 27 G, прикрепленной к всасыванию: промойте 2 раза 1 мл PBS, гранулированные шарики с импульсным вращением между промывками; промойте один раз 1 мл буфера для лизиса для равновесия перед добавлением WCL; высушите агарозу на всасывании перед добавлением WCL.
- Инкубируйте оставшуюся ВКЛ с промытым стрептавидином агарозой (доведите объем до 1,2 мл с помощью буфера для лизиса и поворачивайте в темноте не менее 2 ч или Н/Н в холодном помещении).
- Трижды промойте стрептавидин агарозно-биотинилированные белковые комплексы с 1 мл буфера для лизиса (буфер для лизиса не обязательно должен содержать Complete во время промывки), импульсно отжимайте агарозу между стирками и высушите после последнего мытья.
- Инкубировать страптавидина агарозно-биотинилированные белковые комплексы с 65 мкл буфера для проб Laemli с DTT при 85 °C в течение 5 мин.
- Пульсируйте, крутите и собирайте элюированные биотинилированные белковые комплексы.
- Загрузите в 7,5% гели 40 мкл образцов WCL и весь объем биотинилированных (BT) образцов в лунку.
- Запустите гели при напряжении 120 В в SDS, содержащем буфер для работы.
- Перенесите белки на мембрану PVDF при напряжении 90-95 В в течение 1,5 часов (при <400 А) в буфере для переноса без SDS.
- Заблокируйте 5% обезжиренного молока в TBS-T 0,1% O/N. Промокните обе мембраны мышиным моноклональным антителом CFF596 против CFTR и козьим HRP-конъюгированным вторичным антителом.
- Проводят хемилюминесценцию. Промокните обе мембраны либо анти-эзрином, либо анти-актиновым антителом.
4. Анализ вторичной переработки
Рабочий процесс: Биотинилирование белков клеточной поверхности при 4 ºC → Нагревание до 37 ºC для загрузки эндоцитарных везикул биотинилированными белками → Охлаждение до 4 ºC для прекращения эндоцитарного транспорта → Уменьшение дисульфидной связи в биотине, прикрепленном к белкам, оставшимся на поверхности клетки → Нагревание до 37 °C для рециркуляции биотинилированных белков из эндоцитарных везикул на поверхность клетки → Охлаждение до 4 ºC для остановки эндоцитарного транспорта → Уменьшение дисульфидной связи в биотине, прикрепленном к белкам, которые вернулись на поверхность клетки → Лизис клетки → Выделение биотинилированных белков (т.е. тех, которые не были переработаны) стрептавидина агарозой → Элюирование биотинилированных белков из стрептавидина агарозы → Электрофорез белков и вестерн-блоттинг.
- Биотинилирование апикальных поверхностных белков в пяти фильтрах 24 мм (Таблица 2: образцы a-d) в соответствии с процедурой, описанной в Эндоцитарном анализе (раздел 3.1-3.6).
- В холодильной камере установить в новую тарелку два фильтра (Таблица 2: образцы а и б), добавить ~2 мл PBS++, pH 8,2 с апикальной и базолатеральной стороны и держать в холодильной камере.
- Оставшиеся 3 фильтра храните в одной тарелке (Таблица 2: образцы c и d) с ~2 мл PBS++ pH 8,2 на апикальной и базолатеральной стороне каждого фильтра. Поместите пластину с фильтрами c и d на лед и поднесите к стенду снаружи инкубатора при температуре 37 ºC.
- Быстро перенесите фильтры с тарелки на лед на тарелку, наполненную предварительно подогретым PBS++ pH 8,2 в инкубатор и выдержите 5,0 мин.
- Во время инкубации заполните 3 лунки планшета на льду холодным (4 ºC) PBS++ pH 8,2.
- После 5,0 мин инкубации при 37 ºC переложите фильтры на пластину на лед. Дайте холодному PBS++ pH 8,2 переполнить апикальную сторону и быстро покрыть всю поверхность каждого фильтра.
- Принесите тарелку со льдом в холодильную камеру и установите на столешницу.
- Отсасывайте PBS++ pH 8,2 с обеих сторон фильтров a, b, c и d и добавьте 1 мл PBS++ pH 8,6 с базолатеральной стороны.
- Храните фильтры a и b отдельно от фильтров c и d. Добавьте 1 мл PBS++ pH 8,6 на апикальную сторону фильтров a и b.
- Уменьшите дисульфидную связь в биотине, остающуюся на поверхности клетки в фильтрах b, c и d, следуя процедуре, описанной в эндоцитарном анализе (шаги 3.13-3.15).
- Кратковременно промойте фильтры b, c и d PBS++ pH 8,2 2x и замените свежими PBS++, pH 8,2. Поместите фильтры d в новую тарелку и принесите лед на столешницу снаружи инкубатора с температурой 37 ºC.
- Быстро перенесите фильтры с тарелки на лед на тарелку в инкубаторе, заполненном предварительно подогретым PBS++ pH 8,2 и инкубируйте по одному фильтру точно в течение 2,5 или 5,0 мин, как описано выше в шагах 4.4-4.9.
- Уменьшите дисульфидную связь в биотине, прикрепленном к белкам апикальной мембраны, с помощью буфера GSH после второй инкубации при 37 °C в фильтрах d, как описано в 4.4, за исключением того, что на этой стадии будут проведены только три 15-минутные инкубации с буфером GSH. На этом этапе поддерживайте фильтры a, b и c в PBS++ pH 8,6 на апикальной и базолатеральной стороне.
- Для лизиса клеток и вестерн-блоттинга следуют процедурам, описанным в эндоцитарном анализе (шаги 3.16-3.31).
Результаты
Эндоцитоз CFTR изучали в клетках CFBE41o-, культивируемых на фильтрах, покрытых коллагеном (Рисунок 1). Биотинилированный CFTR визуализировали методом вестерн-блоттинга с использованием мышиных моноклональных антител (клон 596) и антител к мышиному пероксидазе хрена с применением системы детекции вестерн-блоттинга с последующей хемолюминесценцией. Количественное определение биотинилированного CFTR проводили методом денситометрии, используя экспозиции в пределах линейного динамического диапазона пленки. Эндоцитоз CFTR рассчитывали после вычитания фонового сигнала и выражали как процент биотинилированного CFTR в каждой временной точке после нагрева до 37 ºC по сравнению с количеством биотинилированного CFTR в момент времени ноль (Рисунки 1A и 1B). Эндоцитоз CFTR был линейным в интервале 0-7,5 мин. Эксперименты, в которых фоновый уровень CFTR составлял >10%, были исключены из-за неэффективной обработки GSH (Рисунок 1D).
Рециклинг CFTR изучали в клетках HEK293, культивируемых в чашках для культивирования тканей с коллагеновым покрытием (Рисунок 2). Эндоцитоз CFTR был линейным в интервале 0,0-5,0 мин и достиг максимума в точке 5,0 мин (Рисунок 2A), поэтому клетки инкубировали при 37 ºC в течение 5,0 мин для заполнения эндоцитозных везикул биотинилированными белками, включая CFTR (Рисунки 2B и 2C). Рециклинг эндоцитированного CFTR рассчитывали как разность между количеством биотинилированного CFTR после первой и второй обработки GSH.
Таблица 1. Анализы эндоцитоза.
| Эндоцитоз | BT | GSH | Endo-2.5 | Endo-5.0 | Endo-7.5 | Endo-10.0 |
| Образец | a | b | c2.5 | c5.0 | c7.5 | c10.0 |
| Биотин | + | + | + | + | + | + |
| 37 ºC | (-) | (-) | 2.5 min | 5.0 min | 7.5 min | 10 min |
| GSH | (-) | + | + | + | + | + |
Таблица 2. Анализ рециркуляции.
| Переработка отходов | БТ | ГСГ (глутатион) | Эндо-5 | Rec-2.5 | Rec-5.0 |
| Образец | a | b | с | Вы предоставили только одну букву «d». Пожалуйста, введите текст, который необходимо перевести.2.5 | д5.0 |
| Биотин | + | + | + | + | + |
| 1-й этап при 37 ºC | (-) | (-) | 5 мин | 5 мин | 5 мин |
| 1-й GSH | (-) | (-) | + | + | + |
| 2-й этап при 37 ºC | (-) | (-) | + | + | + |
| 2-й GSH | (-) | (-) | (-) | 2,5 мин | 5 мин |
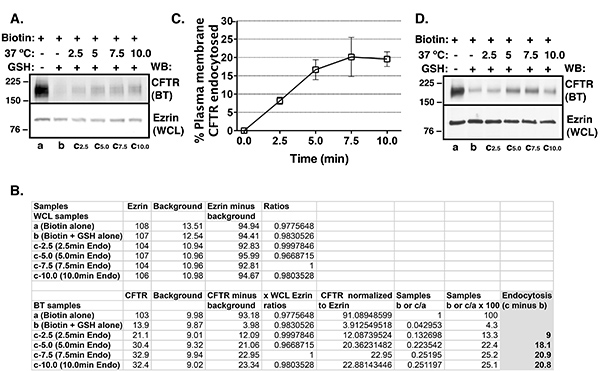
Рисунок 1. Сводные данные анализов эндоцитоза, проведенных для определения эндоцитоза CFTR в клетках CFBE41o- . Клетки культивировали на фильтрах, покрытых коллагеном. Репрезентативные вестерн-блоты (A), репрезентативные значения денситометрии (B) и сводные данные экспериментов (C), демонстрирующие эндоцитоз CFTR в зависимости от времени. Для определения количества CFTR в плазматической мембране использовали селективное биотинилирование клеточной поверхности и вестерн-блоттинг. Количество белка определяли методом денситометрии, используя экспозиции в пределах линейного динамического диапазона пленки. В момент времени ноль количество биотинилированного (BT) CFTR принимали за 100% (Таблица 1: образец a). В момент времени ноль количество BT CFTR, оставшееся после обработки GSH, считалось фоновым уровнем CFTR (образец b; пожалуйста, обратите внимание, что этот фон отличается от того, который вычитался из всех образцов, как показано на Рисунке 1B). Фоновый уровень CFTR в экспериментах, включенных в анализ, составил 6,7 ± 0,9% (среднее ± S.E.M.). Фоновый уровень CFTR вычитали из BT CFTR после согревания в течение 2,5, 5,0, 7,5 или 10 min при 37 ºC (образцы c минус образец b). Эндоцитоз CFTR выражали как процент CFTR, остающегося биотинилированным в точках 2,5, 5,0, 7,5 или 10 min после вычитания фонового CFTR. Эндоцитоз CFTR был линейным в интервале от 0 до 7,5 min. Количество эзрина в лизате всей клетки (WCL) использовали в качестве контроля загрузки. 4 эксперимента на группу. Эксперименты, в которых фоновый уровень CFTR был >10%, были исключены из-за неэффективной обработки GSH (D). Количество биотинилированного CFTR в контроле GSH (образец b) в исключенном эксперименте составило 14,5%.
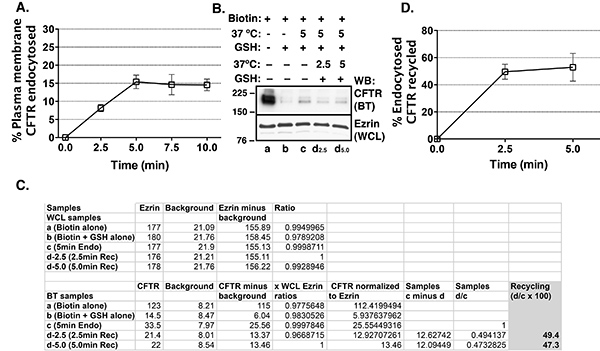
Рисунок 2. Сводные данные анализов эндоцитоза и рециклинга, проведенных в клетках HEK293 со стабильной экспрессией CFTR. Клетки культивировали в планшетах для культура тканей, покрытых коллагеном. Сводные данные демонстрируют линейный характер эндоцитоза CFTR в интервале 0–5 мин (A). Таким образом, в анализах рециклинга эндоцитозные везикулы нагружали биотинилированными (BT) белками, включая CFTR, путем нагревания при 37 ºC в течение 5 мин. Количество белка определяли методом денситометрии, используя экспозиции в пределах линейного динамического диапазона пленки. Репрезентативный вестерн-блот (B), репрезентативные значения денситометрии (C) и сводка экспериментов (D), демонстрирующие рециклинг CFTR в зависимости от времени. В момент времени ноль количество BT CFTR принимали за 100% (Table 2: образец a). В момент времени ноль количество BT CFTR, оставшееся после обработки GSH, считали фоном CFTR (образец b; обратите внимание, что этот фон отличается от того, который вычитали из всех образцов, как показано на C). Эксперименты, в которых фон CFTR составлял >10%, исключали из-за неэффективности обработки GSH. Эндоцитозные везикулы нагружали BT-белками, включая CFTR, путем инкубации при 37 ºC в течение 5 мин с последующей обработкой GSH для отщепления биотина от белков, оставшихся на плазматической мембране (образцы c и d). Количество BT CFTR после 5 мин нагревания при 37 ºC с последующей обработкой GSH представляет собой эндоцитозированный CFTR (образец c). После 5 мин нагревания при 37 ºC и первой обработки GSH клетки снова нагревали при 37 ºC в течение 2,5 или 5,0 мин, чтобы эндоцитозированные белки могли рециклировать на плазматическую мембрану; биотин на рециклировавшем CFTR восстанавливали второй обработкой GSH (образцы d). На этом этапе биотинилированным оставался только тот CFTR, который не рециклировал из эндосом на плазматическую мембрану (образцы d). Рециклинг CFTR рассчитывали как разницу между BT CFTR после первой обработки GSH (образец c) и второй обработки GSH через 2,5 и 5,0 мин (образцы d) и выражали в процентах от эндоцитозированного CFTR. Рециклинг CFTR происходил быстро и достигал максимума к 2,5 мин. Количество эзрина в полном клеточном лизате (WCL) использовали в качестве контроля загрузки. 3 эксперимента в группе.
Обсуждение
Успех эндоцитарных и рециркуляционных анализов зависит от эффективного биотинилирования CFTR на плазматической мембране. Биотин необходимо готовить непосредственно перед использованием, потому что эфирная часть NHS легко гидролизуется и становится неактивной. Кроме того, этап биотинилирования требует строгого контроля температуры на уровне 4 ºC, чтобы остановить транспортировку белка. Если температура во время стадии биотинилирования поднимается выше 4 ºC, может произойти транспортировка белка, что приведет к биотинилированию переменных количеств CFTR.
Успех эндоцитарных анализов и анализов на рециркуляцию также зависит от эффективного восстановления дисульфидной связи в биотинилированном CFTR, остающемся на плазматической мембране. Количество CFTR, остающегося биотинилированным после обработки GSH, должно составлять <10% от общего биотинилированного CFTR в нулевой момент времени. Следует исключить эксперименты, в которых количество биотинилированного CFTR составляет >10% в контрольном образце GSH. На рисунке 1D показан «неудачный» эксперимент, в котором количество биотинилированного CFTR в контроле GSH составило 14,5%. Недостаточное восстановление дисульфидной связи в биотинилированном CFTR может быть вторичным по отношению к плохому контролю температуры во время эксперимента. Если температура во время лечения GSH поднимается выше 4 ºC, может произойти транспорт белка и биотинилированный эндоцитоз CFTR, в результате непреднамеренного повышения температуры будет увеличен фоновый CFTR. С другой стороны, недостаточное восстановление дисульфидной связи в биотинилированном CFTR может быть результатом снижения периода полувыведения GSH в водном растворе, вызванного окислением на воздухе, или неподходящим pH. Как было установлено ранее, GSH остается сильно буферизированным при pH 8,64. По нашему опыту, шесть 15-минутных обработок с использованием буфера GSH снижали дисульфидную связь более чем на 90%, более эффективно, чем одна 90-минутная обработка.
Особого внимания требует культура клеток. Биотин должен достигать домена плазматической мембраны в интактных клетках, где экспрессируется интересующий белок. Мы использовали эндоцитарные анализы и анализы рециркуляции, основанные на биотинилировании, для изучения эндоцитоза и рециркуляции CFTR, экспрессируемых в домене апикальной мембраны. Эти анализы также могут быть использованы для изучения эндоцитарного транспорта белков, расположенных в домене базолатеральной мембраны в клетках, культивируемых на полупроницаемых поддержках для роста. Эпителиальные клетки, образующие многослойные клетки, не подходят для этих анализов, так как биотин и буферы GSH достигают только верхнего слоя клеток для обнаружения белков апикальной мембраны или нижнего слоя для обнаружения белков базальной мембраны. Эпителиальные клетки, культивируемые на пластике, могут быть более склонны к смыванию во время анализов. Случайная потеря клеток во время эксперимента поставит под угрозу результаты. Мы рекомендуем периодическое исследование целостности монослоя под микроскопом в экспериментах, где клетки культивируются в пластиковых чашках для культивирования тканей. Покрытие чашек для культивирования тканей коллагеном может привести к повышению адгезии клеток.
Образцы биотинилированных белков должны регулярно проверяться на контаминацию внутриклеточными белками. Обнаружение внутриклеточных белков в образцах биотинилированных белков может свидетельствовать о недостаточной промывке стрептавидина агарозно-биотинилированных белковых комплексов после инкубации с WCL. Таким образом, первым шагом является повышение эффективности стирки. Кроме того, наличие клеток с нарушенной целостностью плазматической мембраны позволит получить доступ биотина к внутриклеточным белкам. Вестерн-блоттинг для белка, экспрессируемого исключительно во внутриклеточном компартменте, таком как эндоплазматический ретикулум, может быть использован для обнаружения биотинилирования внутриклеточных белков. В качестве альтернативы, цитоскелетные белки, такие как актин или эзрин, могут быть использованы для тестирования на контаминацию биотинилированных образцов белков внутриклеточными белками. Цитоскелетные белки могут образовывать комплексы с трансмембранными белками, и небольшие количества белков цитоскелета могут быть обнаружены в образцах биотинилированных белков. Однако, по нашему опыту, соотношение биотинилированного/WCL эзрина или актина составляет <1:1000, и, таким образом, эти белки пригодны для определения целостности клеточной мембраны в анализах, основанных на биотинилировании.
Реакцию биотинилирования можно погасить глицином или трисом для удаления непрореагировавшего реагента биотинилирования, как сообщалось ранее17. Более того, ГСГ можно гасить йодоацетамидом6. По нашему опыту, непрореагировавший реагент биотинилирования и GSH могут быть эффективно удалены путем щадящей промывки PBS++ без использования реагентов для гашения.
Выбор стрептавидина по сравнению с нейтравидином агарозой для выделения биотинилированных белковых комплексов должен определяться в каждом конкретном случае. По нашему опыту, стрептавидина агароза обеспечивает эффективное выделение биотинилированных белковых комплексов с минимальным связыванием небиотинилированных белков, в отличие от нейтравидина агарозы, где неспецифическое связывание происходит на уровнях, которые влияют на результаты анализа (неопубликованное наблюдение).
Раскрытие информации
Авторы заявляют, что у них нет конкурирующих финансовых интересов.
Благодарности
Это исследование было поддержано грантами Национальных институтов здравоохранения США (NIH) R01HL090767, R01HL090767-02S1, P30 DK06010, и грантом The NepCure Foundation Established Investigator New Direction, (to A.S.-U.).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| CFBE41o-клетки | референс10,11,13,14,15 | ||
| HEK293 клетки | референс13 | ||
| Minimal Essential Medium (MEM) | Gibco | 11095 | |
| L-глутамин | Cellgro | 25-005-CL | |
| пенициллин | Sigma | P0781 | |
| стрептомицин | |||
| Пуромицин | ИнвивоГен | ant-pr-1 | |
| PureCol Бычий коллаген Решение | Тип I Усовершенствованный биоматрикс | 5005-B | |
| Культуральные реагенты | |||
| Дульбекко ' s Фосфатно-солевой буфер (PBS) | Gibco | 14190 | |
| Хлорид кальция | Sigma | C3306 | |
| Хлорид магния | Sigma | M2670 | |
| Хлорид натрия | Sigma | S3014 | |
| EZLink Sulfo-NHS-SS-Биотин | Пирс | 21331 | |
| L-глутатион восстановлен (GSH) | Sigma | G6529 | |
| Стрептавидин-агарозная смола | Thermo Fisher | 20353 | |
| Гидроксид натрия | Sigma | 224165 | |
| Фетальная бычья сыворотка | Gemini Bioscience | 100-106 | |
| Milli-Q вода | Millipore | Advantage System | |
| HEPES | Sigma | H3375 | |
| Triton X-100 | Bio Rad | 161-0407 | |
| Глицерин | FisherScientific | G33 | |
| Laemli Буфер для образцов | BioRad | 161-0737 | |
| Дитиотреитол (DTT) | Sigma | 646563 | |
| Complete Protease Коктейль ингибиторов | Roche | 1697498 | |
| Стрептавидиновые шарики | Thermo Scientific | 20353 | |
| Хемилюминесценция | Perkin Elmer | NEL104001EA | |
| Реагенты | |||
| Обезжиренное сухое молоко | Гвоздика | N/A | |
| Tween-20 | BioRad | 170-6539 | |
| Трис-буферный физиологический раствор (ТБС) | BioRad | 170-6435 | |
| Бычий сывороточный альбумин (BSA) | Gibco | 15120 | |
| Первичный и вторичный | |||
| Антитела для Western Blotting | |||
| Mouse monoclonal Anti-CFTR 596 | Cystic Fibrosis Foundation Therapeutics, Inc., Chapel Hill, NC | ||
| Anti-ezrin | |||
| Буфер ходовой 10x | BioRad | 161-0772 | |
| Буфер передаточный 10x ( без SDS) | BioRad | 161-0771 | |
| Метанол | Fisher | A4129 | |
| Coulter counter | Beckman Coulter | Z1Coulter Particle Counter | |
| Standard Cell Оборудование | |||
| Колпак для клеточных культур с ультрафиолетовым излучением | |||
| Колбы | |||
| Фильтры Transwell - 24 мм | Corning | 3412 | |
| 4 см Чашки | |||
| pH-метр | |||
| 15 мл и 50 мл конические пробирки | |||
| 1,5 мл Eppendorf Tubes Резиновый | |||
| полицейский | |||
| Холодная комната | |||
| Ведра для льда и лед | |||
| 27 G иглы | |||
| 37 º C Инкубатор | |||
| Термометр | |||
| Настольная центрифуга | |||
| Охлаждаемая центрифуга | |||
| электрофореза | |||
| Пленка проявителя | |||
| GE Amersham | 28-9068-36 | ||
| PVDF мембрана | Программное обеспечение Millipore | IPVH00010 | |
| ImageJ | NIH |
Ссылки
- Sigismund, S., et al. Endocytosis and signaling: cell logistics shape the eukaryotic cell plan. Physiol. Rev. 92, 273(2012).
- Andersson, E. R. The role of endocytosis in activating and regulating signal transduction. Cell Mol. Life Sci. 69, 1755(2012).
- Grant, B. D., Donaldson, J. G. Pathways and mechanisms of endocytic recycling. Nat. Rev. Mol. Cell Biol. 10, 597(2009).
- Bretscher, M. S., Lutter, R. A new method for detecting endocytosed proteins. EMBO J. 7, 4087(1988).
- Watts, C., Davidson, H. W. Endocytosis and recycling of specific antigen by human B cell lines. EMBO J. 7, 1937(1988).
- Graeve, L., Drickamer, K., Rodriguez-Boulan, E. Polarized endocytosis by Madin-Darby canine kidney cells transfected with functional chicken liver glycoprotein receptor. J. Cell Biol. 109, 2809(1989).
- Garza, L. A., Birnbaum, M. J. Insulin-responsive aminopeptidase trafficking in 3T3-L1 adipocytes. J. Biol. Chem. 275, 2560(2000).
- Le, T. L., Joseph, S. R., Yap, A. S., Stow, J. L. Protein kinase C regulates endocytosis and recycling of E-cadherin. Am. J. Physiol. Cell Physiol. 283, C489(2002).
- Swiatecka-Urban, A., et al. PDZ-domain interaction controls the endocytic recycling of the cystic fibrosis transmembrane conductance regulator. J. Biol. Chem. 277, 40099(2002).
- Swiatecka-Urban, A., et al. Myosin VI Regulates Endocytosis of the Cystic Fibrosis Transmembrane Conductance Regulator. J. Biol. Chem. 279, 38025(2004).
- Swiatecka-Urban, A., et al. The short apical membrane half-life of rescued uF508-CFTR results from accelerated endocytosis uF508-CFTR in polarized human airway epithelial cells. J. Biol. Chem. 280, 36762(2005).
- Swiatecka-Urban, A., et al. Pseudomonas aeruginosa inhibits endocytic recycling of CFTR in polarized human airway epithelial cells. Am. J. Physiol. Cell. Physiol. 290, C862(2006).
- Swiatecka-Urban, A., et al. Myosin Vb is required for trafficking of the cystic fibrosis transmembrane conductance regulator in Rab11a-specific apical recycling endosomes in polarized human airway epithelial cells. J. Biol. Chem. 282, 23725(2007).
- Ye, S., et al. c-Cbl facilitates endocytosis and lysosomal degradation of cystic fibrosis transmembrane conductance regulator in human airway epithelial cells. J. Biol. Chem. 285, 27008(2010).
- Cihil, K. M., et al. Disabled-2 protein facilitates assembly polypeptide-2-independent recruitment of cystic fibrosis transmembrane conductance regulator to endocytic vesicles in polarized human airway epithelial cells. J. Biol. Chem. 287, 15087(2012).
- MacEachran, D. P., et al. The Pseudomonas aeruginosa secreted protein PA2934 decreases apical membrane expression of the cystic fibrosis transmembrane conductance regulator. Infect. Immun. 75, 3902(2007).
- Pagano, A., Crottet, P., Prescianotto-Baschong, C., Spiess, M. In vitro formation of recycling vesicles from endosomes requires adaptor protein-1/clathrin and is regulated by rab4 and the connector rabaptin-5. Mol. Biol. Cell. 15, 4990(2004).
Перепечатки и разрешения
