Целью этого протокола является использование окислительно-восстановительных титрований, контролируемых электронным парамагнитным резонансом (ЭПР), для идентификации различных кофакторов Saccharomyces cerevisiae Nar1. Редокс-титрование предлагает очень надежный способ получения средних потенциалов различных редокс-активных кофакторов в ферментах и белках.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
ЭПР Контролируемый окислительно-восстановительного титрования из кофакторами
В этой статье
Краткое содержание
Аннотация
Электронного парамагнитного резонанса (ЭПР) мониторинг окислительно-восстановительные титрования являются мощным средством для определения средней точки потенциал кофакторов в белках и для выявления и количественной оценки кофакторов в их обнаруживаемого окислительно-восстановительного состояния.
Техника является дополнением к прямому электрохимии (вольтамперометрии) подходы, как это не предоставляет информации о темпах переноса электронов, но установить личность и окислительно-восстановительного состояния сомножителей в белке в стадии изучения. Техника широко применяется для какого-либо белка, содержащего электронного парамагнитного резонанса (ЭПР) выявляемого кофактор.
Типичный титрования требуется 2 мл белка с концентрацией кофактора в диапазоне 1-100 мкМ. Белок титруют с химическим восстановителем (дитионит натрия) или окислителем (феррицианид кали), с тем чтобы пуаз образца на определенном потенциале. Платиновой проволоки и электрода сравнения Ag / AgCl подключены к вольтСчетчик для измерения потенциала раствора белка. Набор 13 различных медиаторов редокс используется для уравновешивания между окислительно-восстановительных кофакторов белка и электродов. Образцы взяты на разных потенциалов и спектров электронного парамагнитного резонанса, характерных для различных кофакторов окислительно-восстановительных в белке, измеряются. Участок интенсивности сигнала от потенциала образца анализируют с помощью уравнения Нернста для того, чтобы определить среднюю точку потенциал кофактора.
Введение
Поразительно, что наиболее фундаментальные химические процессы поддерживая жизнь на этой планете, фотосинтез, фиксация азота и дыхания, катализируют крупных белковых комплексов, содержащих широкий спектр органических и неорганических окислительно-восстановительных кофакторов. Было подсчитано, что примерно 30% всех белков содержать один или несколько металлов кофакторов. 1,2 идентификации и характеристике окислительно-восстановительные кофакторы может быть установлена с помощью прямого электрохимии (например, белок, пленка вольтамперометрии) или окислительно-восстановительные титрования. Два метода дополняют друг друга по своей природе и применимости. Вольтамперометрия обеспечивает быструю определение средней точки потенциалов и переноса электронов кинетики кофакторов, которые могут реагировать с поверхностью электрода. 3,4 Обычно это хорошо работает для электронного переноса белков, таких как цитохром с и ферредоксин. И это иногда работает в более сложных белков, которые были иммобилизованных на поверхности электрода. Детальное знаниеприрода кофакторов в белке должна быть доступна, как вольтамперограмма не даст никакого прямую информацию о личности кофактора. Окислительно-восстановительные титрования более трудоемкий для выполнения и требует мг количества белка. Тем не менее, они дают информацию о средней точке потенциала и идентичности кофактора. 5 Кроме того, в одном титрования несколько кофакторов в белке можно контролировать.
Принцип окислительно-восстановительным титрованием в том, что окислительно-восстановительный активный белок или фермент, химически восстановлении или окислении. Для того, чтобы убедиться, что алгебраические реагируют с восстановителем или окислителем окислительно-восстановительных посредников используются. Эти окислительно-восстановительные медиаторы также реагировать с электродом так, что потенциал раствора можно измерить. Медиаторы действуют в качестве буфера окислительно-восстановительного и равновесие между кофакторов в белке и электродом. После химически poising потенциал до желаемой величины, выборка и быстро замораживали в жидком азоте, чтобы AWгаются дальнейшего анализа с методами спектроскопии. ЭПР является особенно полезным в этом отношении, как он может быть использован для количественного измерения металлические центры парамагнитные или органические радикалы.
Окислительно-восстановительное титрование может быть осуществлено в двух направлениях: от низкой до высокой или от высокой к низкой средней точки потенциала. Выбор зависит от стабильности сомножителей при исследовании. Часто имеет смысл начать с низким потенциалом и добавить окислитель для ступенчатого повышения потенциала. Это называется окислительного титрования и описано здесь. Здесь мы показываем, окислительно-восстановительного титрования железа серы кластера, содержащего белок Nar1 из Saccharomyces CEREVISIAE. Этот белок участвует, скорее всего, в качестве белка лесов, в цитозоле Железосерные кластеры биосинтеза машин (ЦРУ путь). 6,7
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
1. Подготовка установки и решения
- Подготовка буферного раствора, содержащего 100 мМ Трис, 250 мМ NaCl и 10% глицерина при рН 8,5. Воздух из буфера продувкой аргоном. Представьте буфер в анаэробной камере.
- Разделить буфер на две части. Для одной порции (буфер А) добавляют 1 мМ DL-дитиотреитола (ДТТ, M R 154,25 г / моль) и 1 мМ L-цистеин. Другая часть (буфер Б) не содержит восстановителей.
- Подготовка окислителя и восстановителя решения. Сделать 1 мл растворов 2, 20 и 200 мМ калий феррицианид (FIC, M R 329,26 г / моль) и дитионит натри (SD, M R 174,11 г / моль) в анаэробной буфере В.
- Подготовка медиаторов смесь следующим образом:
- Добавить 160 мкМ каждого из следующих окислительно-восстановительных медиаторов и 50 мМ NaCl буфера В: N, N, N ', N' тетраметил-п-phenylendediamine (TMPD, M R 237,17 г / моль, E '0 0,276 В) , 2,6-дихлорфенол индофенол(DCIP, M г 290,08 г / моль, Е '0 0,217 V), феназинэтосульфата (PES, M г 334,4 г / моль, Е' 0 0,055 V), метиленовый синий (M R 319,85 г / моль, Е ' 0 0,011 В), ресоруфина (М г 235,17 г / моль, Е '0 -0,051 В), Indigodisulphonate (М г 466,35 г / моль, Е' 0 -0,125 В), 2-гидрокси-1,4-naphtaquinone ( M R 174,15 г / моль, Е '0 -0,145 V), Антрахинон-2-сульфонат (M R 328,28 г / моль, Е' 0 -0,225 V), Phenosafranin (M R 322,8 г / моль, Е '0 -0,252 V), сафранин О (М г 350,84 г / моль, Е '0 -0,280 В), нейтральный красный (М г 288,8 г / моль, Е' 0 -0,340 В), бензил виологен (М г 409,4 г / моль, Е '0 -0,350 V), и метилвиологену (M г 257,16 г / моль, Е' 0 -0,440 V).
- Оберните бутылку в алюминиевой фольгой для защиты посредникас от света.
- Подготовка 10 мг / мл S. Cerevisiae септический тегами Nar1 белка (181 мкМ, M R 55,2 кДа) в буфер А. Экспресс S. Cerevisiae Nar1 в E. палочки, как стрептококковой с метками белка с использованием вектора экспрессии pET24A. Очищают белка в анаэробной камере с помощью Стрептококковое-tactin хроматографии массовой информации (МБА) и очистить с помощью системы очистки белка, такие как AKTA очиститель (GE Healthcare).
- Подготовка установки окислительно-восстановительным титрованием в анаэробной камере следующим образом:
- Подключение электрод Ag / AgCl и платиновый проволочного электрода к титрования. Подключите оба электрода к вольтметру, который может измерять от мВ до V.
- Вставьте небольшую мешалки.
- Поставьте сосуд для титрования над магнитной мешалкой.
- Заполните сосуд для титрования с буфером B, раствор медиатором смеси и раствора белка до до 2 мл, т.е. до конечной концентрации 72 мкМ белка и 38 мкМ каждогопосредник. Примечание: в зависимости от концентрации белка и требуемое медиатором концентраций суммы трех растворов должна быть отрегулирована.
- Перемешивают в течение 30 мин и включить вольтметр.
- Подготовка 10 чистых кварцевых стекольных ЭПР трубы. Представьте трубки в анаэробной камере.
- Заполните небольшой (около 200 мл) жидкий азот Дьюара с жидким азотом.
2. Выполните окислительно-восстановительного титрования
- Подождите, пока потенциал раствора не является стабильным. Примечание: На практике это означает, что потенциал дрейфует менее 1 мВ на минуту.
- Запишите потенциалом при вольтметром.
- Нарисуйте первый образец 200 мкл и вводят в ЭПР трубы.
- Закройте пробирку крышкой с резиновой пробкой и снимите трубку от анаэробной камере.
- Замораживание трубку в жидком азоте следующим образом: Внимание! Это должно быть сделано медленно, в противном случае трубка сломается.
- Сначала вставьте тф трубки в жидкий азот.
- Подождите, пока шипение не может быть услышан. Примечание: Это может занять до 10 секунд.
- Медленно вставьте остальную часть трубки так, чтобы образец часть полностью погружен в воду.
- Добавить Небольшую аликвоту 1-2 мкл раствора 2 мМ SD к раствору в сосуд для титрования, чтобы понизить потенциал раствора до -0,6 В.
Примечание: Если больше чем 10 мкл должен быть добавлен, перейти к раствору 20 мМ. Как это очень трудно, чтобы балансировать на определенный потенциальную ценность, фактические значения, записанные на вольтметра записываются и используются для построения кривой титрования. - Нарисуйте образец, как описано в шаге 2,3-2,5.
- Запишите реальный потенциал, данное вольтметра.
- Добавить окислитель, пока потенциал не вырос на почти 50-мВ. Начало добавлением небольшого аликвоту 1-2 мкл раствора 2 мМ FIC. Если более чем 10 мкл должен быть добавлен, перейти к раствору 20 мМ.
- Запишите хоW много решений была добавлена. Примечание: Это необходимо для коррекции разведения образцов в процессе титрования.
- Нарисуйте образец, как описано в шагах 2,3-2,5.
- Запишите реальный потенциал, данное вольтметра.
- Повторите шаги 2,9 и 2,12 до потенциального диапазоне от -0,6 В до +0,2 V была закрыты, а все 10 ЭПР трубы заполнены каждый с 200 мкл.
Примечание: В объем с каждым выводом уменьшается расположение электродов может возникнуть необходимость отрегулировать имеют хороший контакт с раствором без вмешательства перемешивании. Это может быть трудно измерить потенциал после вывода последнего образца и, следовательно, потенциал этого образца может быть менее точной. - Возможно, хранить замороженные образцы ЭПР в жидком азоте до измерения ЭПР не может иметь место.
3. Измерьте титрования проб с использованием ЭПР-спектроскопии и анализа данных
- Запись спектров ЭПР отличаетсяОбразцы титрования следующим образом:
- Используйте насоса высокого вакуума для вакуумирования кварцевый криостат <10 -5 бар.
- Включите водяного охлаждения магнита ЭПР. Открыть поток сухого воздуха через полость ЭПР.
- Включите источник питания к магниту и компьютером ЭПР.
- Запустите программу калибровки частоты. Установите параметры измерения ЭПР. Подключите криостат жидкого сосуде Дьюара гелия. Охладите полости 9-16 К.
- Представьте образец ЭПР в полости. Запишите спектр ЭПР.
- Определение различных ЭПР видов и использовать лучшие спектры для количественного определения сигналов. Достижение ЭПР количественного двойным интегрированием спектров и сравнения со спектром внешнего меди стандартного раствора 10 мМ CuSO 4/10 мМ HCl / 2 M NaClO 4. 8
- Сделайте кривую титрования следующим образом:
- Участок амплитуду сигнала ЭПР в г-значение, которое характерно для парамагнитные видов интерес в отношении потенциала.
- Изменить ЭПР масштаб амплитуды сигнала спинов / масштаб молекул с помощью ЭПР количественную, начиная с шага 3.2.
- Откорректируйте амплитуды сигнала каждого образца для разбавления, что произошло из-за добавок окислительной или восстанавливающего агента.
- Исправьте потенциал для средней точки потенциала электрода сравнения Ag / AgCl.
Примечание: электрод сравнения Ag / AgCl (насыщенным KCl) имеет среднюю точку потенциал V 0,194 по сравнению с стандартной водородного электрода (она) при 25 ° С. Таким образом, если потенциал на вольтметра около -0,6 В, потенциал со ссылкой на она -0,4 В.
- Установить сигнал к уравнению Нернста следующим образом:
Для вида, парамагнитен в восстановленном состоянии: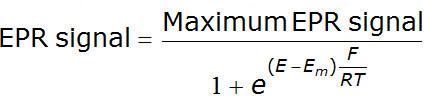
Для вида, парамагнитен в Oxidized состояние: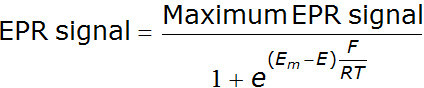
Для вида, парамагнитен в промежуточном состоянии: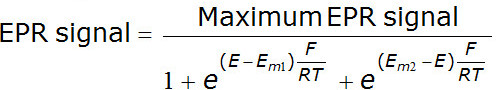
Эти уравнения действительны для окислительно-восстановительных реакций, в которых один электрон переходит, так что N = 1.
E = потенциал в вольтах
E M = середина потенциал в вольтах
F = постоянная Фарадея = 96480 C · моль -1
R = газовая постоянная = 8,314 Дж · K -1 · моль -1
T = температура в градусах Кельвина
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Окислительно-восстановительный титрование Железосерные кластеры, содержащие белок Nar1 из Saccharomyces CEREVISIAE привело к идентификации трех различных кофакторов: Nar1: [3FE-4S] кластеров, [4Fe-4S] кластеров и мононуклеарных Fe-центр (Рисунок 1) , Сигналов ЭПР характеризуются их г-значений: для [3FE-4S] + г г 2,01 г кроссовер 2,00 (рис 1B); Для [4Fe-4S] +, г г 2,02 г 1,93 г, 1,82 г х (фиг С)...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Серия 13 окислительно-восстановительных посредников позволяет окислительно-восстановительный баланс в растворе в диапазоне от -0,45 до +0,3 против SHE (таблица 1 и рисунок 3). Хорошо выше и ниже этих потенциалов все медиаторы или полностью уменьшен или полностью окисляется и, следовательно, не может иметь место независимо от того равновесия с окислительно-восстановительных активных центров белка. Это является важным понятием, как и в литературе иногда окислительно-восстановительные титр...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы не имеют ничего раскрывать.
Благодарности
Эта работа была выполнена при финансовой поддержке исследовательского гранта от комбинации Голландский Национальный исследовательский школе, катализа Управляется химической дизайна (NRSC-катализа). Д-р HY Steensma и д-р GPH ван Heusden из Лейденского университета признаны за их поддержку с рекомбинантной экспрессии S. Cerevisiae Nar1.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Электрод сравнения (Ag/AgCl) | Радиометр | ||
| Химикаты | Sigma-Aldrich | ||
| EPR спектрометр | Bruker | ||
| N,N,N',N' -тетраметил--фениллендиамин (TMPD) · (HCl)2 | 637-01-4 | ||
| 2,6-дихлорфенолиндофенол (DCIP), натриевая соль | 620-45-1 | ||
| Феназин этосульфат (PES) | 10510-77-7 | ||
| Метиленовый синий | 122965-43-9 | ||
| Резоруфин, натриевая соль | 34994-50-8 | ||
| Индигодисульфонат (индигокармин) | 860-22-0 | ||
| 2-гидрокси-1,4-нафтахинон | 83-72-7 | ||
| Антрахинон-2-сульфонат Na+ H2O | 153277-35-1 | ||
| Феносафранин | 81-93-6 | ||
| Сафранин O | 477-73-6 | ||
| Нейтральный красный | 553-24-2 | ||
| Бензил виологен | 1102-19-8 | ||
| Метилвиологен | 1910-42-5 |
Ссылки
- Lippard, S. J., Berg, J. M. Principles of Bioinorganic Chemistry. , University Science Books. (1994).
- Bertini, I. Bioinorganic Chemistry. , University Science Books. 611(1994).
- Leger, C., et al. Enzyme Electrokinetics: Using Protein Film Voltammetry To Investigate Redox Enzymes and Their Mechanisms. Biochemistry. 42, 8653-8662 (2003).
- Hagen, W. R. Direct Electron Transfer of Redox Proteins at the Bare Glassy Carbon Electrode. Eur. J. Biochem. 182, 523-530 (1989).
- Pierik, A. J., et al. Redox Properties of the Iron-Sulfur Clusters in Activated Fe-Hydrogenase from Desulfovibrio vulgaris (Hildenborough). Eur. J. Biochem. 209, 63-72 (1992).
- Balk, J., Pierik, A. J., Netz, D. J., Muhlenhoff, U., Lill, R. The Hydrogenase-like Nar1p is Essential for Maturation of Cytosolic and Nuclear Iron-Sulphur Proteins. EMBO J. 23, 2105-2115 (2004).
- Sharma, A. K., Pallesen, L. J., Spang, R. J., Walden, W. E. Cytosolic Iron-Sulfur Cluster Assembly (CIA) System: Factors, Mechanism, and Relevance to Cellular Iron Regulation. J. Biol. Chem. 285, 26745-26751 (2010).
- Aasa, R., Vänngård, T. EPR Signal Intensity and Powder Shapes. A Reexamination. J. Magn. Reson. 19, 308-315 (1975).
- Balk, J., Pierik, A. J. A., Netz,, J, D., Mühlenhoff, U., Lill, R. Nar1p, a conserved eukaryotic protein with similarity to Fe-only hydrogenases, functions in cytosolic iron-sulphur protein biogenesis. Biochem. Soc. Trans. 33, 86-89 (2005).
- Hennessy, D. J., Reid, G. R., Smith, F. E., Thompson, S. L. Ferene - a new spectrophotometric reagent for iron. Can. J. Chem. 62, 721-724 (1984).
- Flint, D. H., Emptage, M. H., Guest, J. R. Fumarase A from Escherichia coli: purification and characterization as an iron-sulfur cluster containing enzyme. Biochemistry. 31, 10331-10337 (1992).
- Hagedoorn, P. L., Driessen, M. C., Mvd Bosch,, Landa, I., Hagen, W. R. Hyperthermophilic Redox Chemistry: a Re-evaluation. FEBS Lett. 440, 311-314 (1998).
- Tadesse, M. A., D'Annibale, A., Galli, C., Gentili, P., Sergi, F. An assessment of the relative contributions of redox and steric issues to laccase specificity towards putative substrates. Organic & biomolecular chemistry. 6, 868-878 (2008).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
