Запись токов Ca2+ на лицевой мембране пресинаптического высвобождения является ключом к точному пониманию входа Ca2+ и высвобождения нейротрансмиттеров. Мы представляем острую диссоциацию спинного мозга миноги, которая дает функциональные изолированные ретикулоспинальные аксоны, позволяющие регистрировать непосредственно из высвобождаемой лицевой мембраны отдельных пресинаптических окончаний.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Острая Диссоциация миноги ретикулоспинальных Аксоны активировать запись от выпуска Face мембраны отдельных функциональных пресинаптических окончаниях
В этой статье
Краткое содержание
Аннотация
Синаптической передачи является чрезвычайно быстрый процесс. Действие потенциал приводом приток Са 2 + в пресинаптических окончаний, через напряжения закрытого кальциевых каналов (VGCCs), расположенных в релизе лица мембраны, является триггером для слияния пузырьков и высвобождение нейромедиаторов. Решающее значение для быстроты синаптической передачи является пространственная и временная синхронизация между прибытием потенциала действия, VGCCs и высвобождение нейромедиатора машин. Возможность напрямую записывать Ca 2 + токи от выпуска номинальной мембраны отдельных пресинаптических окончаний необходимо для точного понимания взаимосвязи между пресинаптической Са 2 + и высвобождения нейромедиатора. Доступ к пресинаптической релиз лица мембраны для электрофизиологические записи не доступен в большинстве препаратов и пресинаптической Са 2 + запись была охарактеризована с помощью методов визуализации и макроскопического тока MeasureMeНТС - методы, которые не имеют достаточного временное разрешение для визуализации запись Ca 2 +. Характеристика VGCCs непосредственно на отдельных пресинаптических окончаний не удалось в центральных синапсах и до сих пор успешно достигнуто только в чашечки типа синапса куриного мерцательной ганглии и в крысиных чашечек. Мы успешно решили эту проблему в гигантском ретикулоспинальных синапса миноги спинного мозга, разработав остро диссоциированную подготовку спинного мозга, что дает отдельные ретикулоспинальных аксоны с функциональными пресинаптических окончаниях, лишенных постсинаптических структур. Мы можем флуоресцентно маркировать и идентифицировать отдельные пресинаптические терминалы и нацелить их для записи. Использование этого препарата, мы охарактеризовали VGCCs непосредственно на выпуск лице отдельных пресинаптических терминалов, использующих иммуногистохимии и электрофизиологии подходы. Ca 2 + токи были записаны непосредственно на выпуск лица мембраны OF отдельные пресинаптические терминалы, первый такой записи будет осуществляться в центральных синапсах.
Введение
Синаптической передачи является чрезвычайно быстрый и точный процесс. Действие потенциал вторжение в пресинаптических окончаний приводит к открытию VGCCs расположенных в релиз лица мембраны, что привело к росту пресинаптической Са 2 +, действующей в качестве триггера для слияния пузырьков и высвобождение нейромедиаторов 1. Все эти шаги происходят в течение сотен микросекунд 2, и, следовательно, требуют жесткой пространственной сцепление VGCCs в слияния пузырьков машин 3. Пресинаптические Са 2 + потоки были, прежде всего, характеризуется через визуализации подходов с использованием Са 2 + чувствительные красители 4. Включение Са 2 + буферы, которые модулируют Са 2 + в пресинаптических нейронов был использован, чтобы косвенным образом характеризует соотношение между кальцием и пресинаптических нервных импульсов 3. Кроме того, модуляции пресинаптическое бесплатно Ca 2 + концентрации по uncaging Са 2 + 5 или записи macroscopiС Са 2 + токи были использованы в сочетании с мерами слияния пузырьков и / или высвобождения; такие как измерения емкости 6 или постсинаптические ответы 2 для решения тот же вопрос. Однако, характеризуя Ca 2 + токи непосредственно на выпуск лица, специализированный раздел пресинаптической мембраны, где деполяризация мембраны переводится в Са 2 + токи вызове синаптических везикул слияние и высвобождение нейромедиаторов, является неотъемлемой точно измерить в Са 2 + Требование синаптических пузырьков слияния. Кроме того, способность непосредственно характеризуют Ca2 + токи на отдельных пресинаптических окончаний, в сочетании с точной одновременных измерений слияния пузырьков и выпуска позволяет точным выяснение временной зависимости между временем ходе потенциала действия, пресинаптического Ca2 + тока, слияния пузырьков и релиз. Доступ к релиз лица мембраныне доступен в большинстве пресинаптических окончаний за счет близко друг к другу на постсинаптических дендритов. Это недоступность является одним из основных препятствий в характеристике VGCCs так как это предотвращает прямые измерения тока на отдельных пресинаптических окончаний. Прямая характеристика пресинаптических Ca 2 + токов в отдельных пресинаптических окончаний до сих пор не удалось в центральных синапсах и удалось осуществить только в двух пресинаптических окончаний calyceal типа; Чашечка типа синапса из куриных мерцательная ганглий 7-10 и крысы чашечек 11,12. Во всех других пресинаптических окончаний включая гигантского ретикулоспинальных синапса в миноги спинного мозга 13, отсутствие доступа к пресинаптической релиз лица мембраны потребовало использование непрямых подходов, таких как изображения Ca 2 + до изучения пресинаптические Ca 2 + потоков.
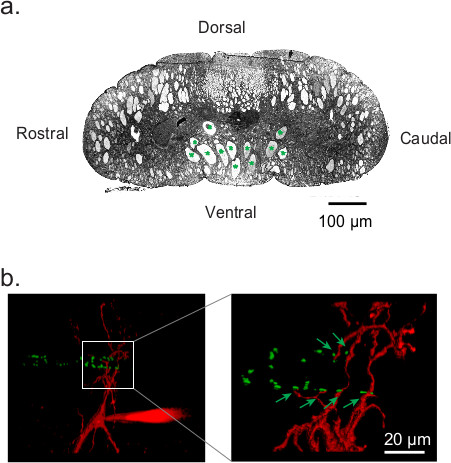 Рис.1 миноги гигант ретикулоспинальных синапс. (А) Сечение миноги спинного мозга с указанием Dorso-вентральной ориентацию. Ретикулоспинальных аксоны выделены зеленым звездочкой. (Б) 3-D реконструкция ретикулоспинальных синапса в миноги спинного мозга, показывая пресинаптическое ретикулоспинальных аксон делает многочисленные мимоходом контактов (отмечены зелеными стрелками) на постсинаптического нейрона 13. Пресинаптические терминалы были помечены с Alexa Fluor 488 гидразида с сопряженными фаллоидином (зеленый), в то время как постсинаптического нейрона была заполнена Alexa Fluor 568 гидразида (красный).
Минога гигантские ретикулоспинальных аксоны, расположенные в брюшной области спинного мозга параллельно ростральной-каудальной оси рисунке 1a, образованию многочисленных мимоходом синаптических контактов на нейронахспинного вентральной рог 14 Рисунок 1б 13. Макроскопическая цельноклеточные Са 2 + токи были записаны с ретикулоспинальных аксонов в неповрежденной спинного мозга 13,15. Тем не менее, предыдущие слепые попытки прямого измерения Са 2 + токи в ретикулоспинальных аксонов в неповрежденной миноги спинного мозга с использованием методики патч зажим клеток-прилагается оказались безуспешными 13 в связи с отсутствием доступа к пресинаптической релиз лица мембраны вследствие противостоящих постсинаптических процессов Рисунок 1б. Высвобождение лицо мембраны были ранее доступны удалением постсинаптического нейрона 11, механическое возмущение синапсе перед записью 12 или ферментативной обработки в сочетании с механической диссоциации 16. Учитывая сложный организация спинного мозга, было бы оказаться чрезвычайно трудно определить постсинаптического нейрона и убрать его механически или возмутить гоэ синапс. Таким образом, мы решили использовать ферментативную обработку 17 с последующим механической диссоциации.
Используя этот подход, мы разработали остро диссоциированную подготовку миноги спинного мозга, что дает жизнеспособные изолированных ретикулоспинальных аксоны с функциональными пресинаптических окончаниях, лишенных любых постсинаптических процессов, тем самым обеспечивая неограниченный доступ к отдельным пресинаптических окончаний. В сочетании со стандартным перевернутый микроскоп и флуоресцентных изображений, это позволяет нам выявить и против отдельных флуоресцентно-определены пресинаптические терминалы, с помощью патча пипетки, содержащую раствор записи, который изолирует Ca 2 + токи Фиг.4С и рисунок 4d, для записи с помощью сотового прилагается метода фиксации. Са 2 + токи были записаны непосредственно на пресинаптической релиз лица мембраны индивидуального пресинаптических окончаний рисунке 4е. Это significaнт прорыв в области синаптической передачи, так как это первый такой записи будет осуществляться в центральных синапсах.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
1 Получение поли-D-лизина гидробромида
- Подготовка 1 мг / мл поли-D-лизина гидробромид в 0,1 М боратного буфера (рН 8,5).
- Алиготе и хранить при температуре -20 ° С.
2 Поли-лизин Покрытие покровные
Примечание: Выполняйте все чистящие и покрытий шаги в камере ламинарного потока.
- Место покровные в чашку Петри, содержащую 1N хлористоводородной кислотой (HCl) в течение 2 часов.
- Аспирируйте все HCl и промыть 70% этанола (этанол) 2-3x.
- Оставьте в 70% EtOH в течение 1 часа.
- Аспирируйте все 70% этанола и промыть 100% этанола 2-3x.
- Оставьте в 100% EtOH в течение 2 часов. Аспирируйте все этанола.
- Промокните насухо фильтровальной бумаги и высохнуть в течение нескольких секунд.
- Место O / N в концентрации 1 мг / мл поли-лизин раствор.
- Промыть покровные следующий день с Millipore воды 4-5x.
- Воздух сухой поли-лизин покрытием покровные стекла на роликах в чистую чашку Петри.
- Для immunohistochemistrу, использовать 35 х 10 мм чашки Петри крышками. Подготовка Sylgard (polydimethylsilioxane, ПДМС) вдоль блюда путем заливки PDMS (эластомер и отвердитель 10: 1 по весу) в чашку до толщины 0,3 см и позволяют устанавливать при 30 ° CO / N. Как только это установлено, вырезать 2 см на 1 см вставка в PDMS. Чистый и пальто вставка с полилизином используются те же шаги, как упоминалось выше для покровные.
- Храните поли-лизин покрытием покровные и блюда покрыты внутри камеры ламинарного потока до использования (до 2 недель, но достижения наилучших клейкие результаты по подготовке периодически раз в 3-4 дня).
- Подготовьте PDMS блок, к контакту спинной мозг в вибрирующей ткани слайсер. Смесь резина и резина B 1: 1 по весу. Налейте в 100 х 15 мм чашки Петри и позволяют установить O / N при 30 ° С. Отрежьте прямоугольный кусок из PMDS и приклейте ее к нарезки опорной плите с помощью эпоксидного клея. Разрешить клей для установки крепления PDMS в месте и нарезать несколько тонких срезов с поверхности, чтобы получить квартируповерхность, чтобы прикрепить ткань на.
3 Острая Диссоциация Минога спинного мозга уступать Изоляты ретикулоспинальных аксонов
- Обезболить в ammoecoete или взрослых минога (Petromyzon Маринус) с Tricaine метансульфоната (MS-222; 100 мг / л). Добавить анестетика в воду, в пластмассовой чашке, покрытой крышкой, содержащий минога в жертву.
- Обезглавить минога в холодной (4 ° С) раствор Рингера следующего состава (в мм): 130 NaCl, 2,1 KCl, 2,6 CaCl 2, 1,8 MgCl 2, 4 HEPES, 4 декстрозы (рН 7,6, осмолярность 270 мОсм) и удалить тела настенные мышцы выставить спинной поверхности спинного мозга.
- Удалить Meninx Primitiva от спинной поверхности спинного мозга с использованием тонких щипцов. Не снимайте вентральной Meninx Primitiva на данном этапе.
- Вырезать спинного мозга в 1 см длинные куски.
- Закрепление спинного мозга кусок с использованием тонких насекомых булавками, спинной стороной вверх, на PDMS выстроились нарезки базовый плаТе (см 2,12) в вибрирующей ткани среза камеру, содержащую ледяной раствор Рингера.
- Снимите центральную секцию колонны спинной части спинного мозга, нарезая вдоль ростро-хвостовой оси с лезвием, оставляя позади неповрежденных сегментах колонн спинной на ростральнее и каудального концов в качестве ручки во время процесса диссоциации Рисунок 2а и рис 2b. Используйте медленный скоростной режим, который позволяет нарезки и глубина охвата, который удаляет только спинной колонки оставляя нижние ретикулоспинальных столбца аксонов повреждены Рисунок 2b.
- Выдержите нарезанные позвоночника кусочки мозга на КТ в течение 45 мин в коктейле 1 мг / мл протеазы (Тип XIV от Streptomyces пзеиз) и 1 мг / мл коллагеназы подготовленного (типа IA от Clostridium histolyticum) в растворе Рингера (взято из Эль Manira & Bussieres , 1997 17).
- Pin ферментов лечение позвоночника частей мозга с использованием тонких флажки в PDMS выстроились Петри Contaтка холодной (4 ° С) раствор Рингера.
- Удалить вентральной Meninx Primitiva с тонким пинцетом.
- Вырезать боковые участки спинного мозга с лезвием скальпеля в средней точке нарезанный спинной секции, оставляя центральную колонну ретикулоспинальных аксонов интактных в спинном мозге рисунке 2d.
- Поместите каплю иммерсионного масла на объективе.
- Поместите покрытием покровное поли-лизин (рисунок 3а, верхнюю часть, красный прямоугольник) в слот записи камеры рисунке 3 и применять вакуумную смазку на всех ребер (пространство между красными и синими прямоугольниками на рисунке 3а, чтобы облегчить печать. Винт верхняя на место. Поместите камеру на вставке на записи вышке.
- Добавить раствор Рингера в записывающую камеру с помощью пипетки Пастера.
- Подключите отток трубки бутылки давления, содержащей антифриз решение термоэлектрического ввода труб устройства охлаждения. Подключите OUTPут трубки термоэлектрического устройства охлаждения до входного конца к наружному кожуху охлаждения и выходной конец резервуара рисунке 3b.
- Поместите один кусок спинного мозга в то время, в записи камеры и осторожно отделить спинной мозг, поддерживая его вместе покровного стекла во все времена, используя щипцы с тефлоновым покрытием до аксоны не изолированы Рисунок 2е и рис 2F.
- Доведите температуру раствора записи до 10 ° С при пропускании под давлением газообразного азота (вставляется в бутылку) антифризом (по перемещению), с помощью термоэлектрического устройства охлаждения, с помощью внешней охлаждающей рубашке записи камеры рисунке 3b.
- Разрешить аксоны для восстановления в течение 1 ч после диссоциации при 10 ° С.
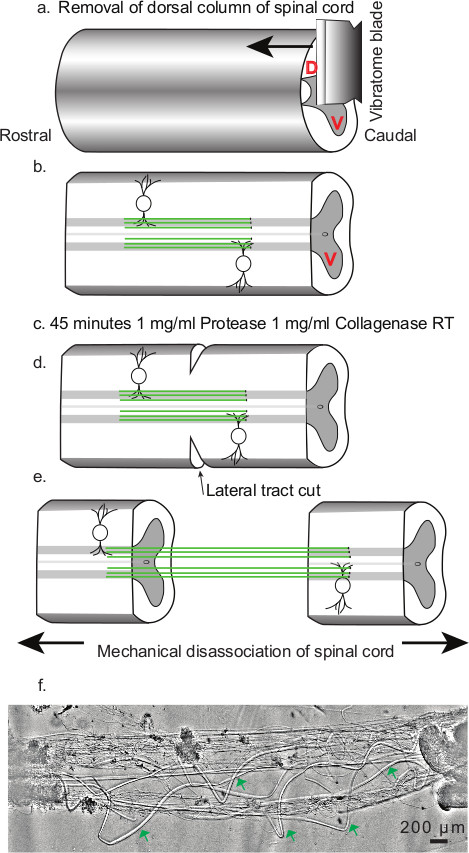
(А) Удаление столбца спинной. Стрелка указывает направление нарезки ткани. Спинной рога отмечены алфавита D (красный цвет шрифта), в то время как брюшные рога алфавитом V (красный цвет шрифта). (Б) Спинной колонки удален в центральной части спинного мозга подвергая ретикулоспинальных аксоны (зеленые линии ). Брюшной рога, которые остаются нетронутыми после процесса нарезки, отмечены алфавите V (красный цвет шрифта). (С) 45 мин лечение протеазы и коллагеназы ферментов коктейль (1 мг / мл). (Г) Резка боковых путей спинного мозга; указывает положение, направление и степень боковой порез. (е) Механическая диссоциация спинного мозга. Стрелки указывают положение щипцов и направлении разделения силы во время диссоциации. (Е) Representatiве пример диссоциации ретикулоспинальных подготовки аксона. Зеленые стрелки отмечают регионы остро диссоциированных ретикулоспинальных аксонов без постсинаптических процессов.
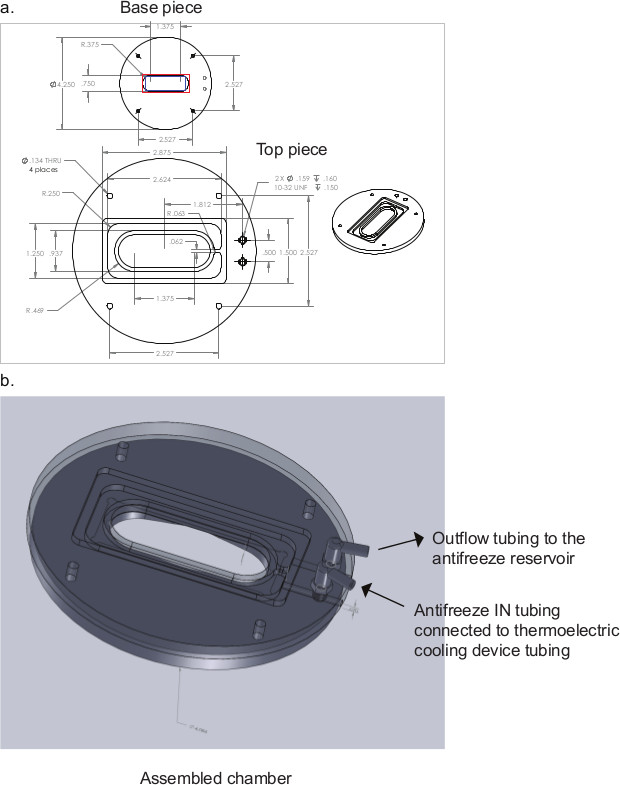
Рисунок 3 Схема записи камеру для электрофизиологических экспериментов. Размеры, предлагаемые в дюймах. Красный прямоугольник показан на basepiece диаграмме (а) указывает позиционирование покровного в покровного паз в basepiece. Область между красным и синим прямоугольником, как показано в схеме basepiece (а), где высокого вакуума смазка наносится. (Б) показывает собранный записи камеры.
4 Маркировка и идентификация пресинаптических окончаний с FM 1-43
- Этикетка пресинаптические терминалы, путем включения FM 1-43 в Vesicles во синаптической экзо-эндоцитоза в высокий K + деполяризации. Заливать подготовку с 5 мкМ FM 1-43 (в 5 мл раствора Рингера, содержащем 30 мМ KCl).
- Заливать подготовку с 1 мг / мл Advasep-7 (в 5 мл раствора Рингера) для удаления избытка FM краситель) 18.
- Заливать препарат с раствором Рингера в течение 15 мин, чтобы вымывания любой remant краситель и Advasep.
- Изображение с 100 X иммерсионным объектива (NA 1.25) на перевернутой флуоресцентного микроскопа, в сочетании с цифровой камеры CCD и захвата изображений программного обеспечения Микроменеджер, используя стандартные протоколы флуоресцентной томографии.
- Определить флуоресцентно меченных пресинаптические терминалы для целевых для записи Фиг.4С и рис 4d.
5 Иммуногистохимия изолированных ретикулоспинальных Аксоны
- Заполните блюдо вставку (Протокол раздел 2.10.) Двухвалентным-иона (Са 2 + и Mg 2 +) бесплатноРаствор Рингера.
- Изготовление патч пипетки в P-87 пипетки съемник. Поместите небольшое количество шовного клея на одном конце поли-лизин вставке с использованием пипетки патч (1,5 мм стекла наружный диаметр) и всасывание (с использованием силиконовой трубки 0,89 мм Внутренний диаметр с наконечником пипетки, прикрепленной к концу всасывающего).
- Провести диссоциации, используя ту же процедуру, как указано в разделе протокола 3 Рисунок 2. Поместите один конец спинного мозга на шовного клея и аккуратно нажмите щипцами придерживаться его сильно на поверхность. Поместите еще одну каплю шовного клея на другом конце вставке и осторожно растянуть позвоночник, пока аксоны не разобщены и придерживаться свободного спинного конец шнура, перетащив его мягко по шовного клея. Fix на месте нежный нажимая пинцетом.
- Обмен двухвалентного освободить раствор Рингера с раствором регулярного Рингера по перфузии.
- Разрешить аксоны восстановиться в течение 20 мин после dissocтельная при 10 ° С.
- Закрепить разложенных аксонов в 4% параформальдегида (PFA) {приготовленного в фосфатно-буферном физиологическом растворе (PBS, (мм) NaCl 137, KCl 2,7, Na 2 HPO 4, 10 KH 2 PO 4 1,8, рН 7,4)} в течение 20 мин. Фильтр решение PFA перед использованием путем пропускания через шприцевой фильтр 0,2 мкм.
- Промыть PFA путем перфузии 0,1 М глицин (в PBS) в течение 10 мин.
- Инкубировать в 0,1% Тритон-X (в PBS) в течение 10 мин.
- Промыть путем перфузии PBS в течение 20 мин.
- Блок 5% обезжиренного молока (в PBS) в течение 6 ч при 4 ° С.
- Добавить в первичных антител к VGCC интереса (разведение 1: 200 в ЗФР) и инкубировали в течение 20 ч при 4 ° С.
- Промыть путем перфузии PBS в течение 20 мин.
- Блок 5% обезжиренного молока (в PBS) в течение 10 мин при 4 ° С.
- Добавить в вторичным антителом (разведение 1: 400 в ЗФР) и инкубировали в темноте в течение 2 ч при 4 ° С.
- Промыть путем перфузии с PBS в течение 20 мин.
- Блок 1% бычьего сывороточного Альбумин (в PBS) в течение 20 мин.
- Добавить в Alexa Fluor 488 фаллоидином (5 ед / мкл рабочей концентрации; складе получают в метаноле 200 единиц / мл).
- Промыть путем перфузии с PBS в течение 20 мин.
- Изображение с помощью 100X погружения в воду объектив на конфокальной микроскопии.
6 электрофизиологические записи
- Изготовление алюмосиликатного стекла патч пипетки (пипетки сопротивления 2-5 МОм) в P-87 пипетки съемник. Дизайн патч пипетки таким образом, что пипетки охватывает весь диаметр пресинаптических окончаний.
- PDMS пальто патч пипетки погружением патч пипетки под 50-60 давлением пси в PDMS 23 (прикрепить силиконовые трубки, 0,89 мм внутренний диаметр, подключенный к газообразного азота цилиндра, к задней части патч-пипетки) и насухо тепло пистолет. С другой стороны, вручную пальто пипетки с PDMS, применяя покрытие как можно ближе к кончику, насколько это возможно, под сложным микроскопом.
- Своих ногтей патч пипетки с использованием MICRoforge (индивидуальному заказу платиновая нить установлен на сцену сложным микроскопом).
- Определить изолированные аксоны, демонстрирующие меченых пресинаптические терминалы с помощью флуоресцентной микроскопии.
- Заполните решение для записи (для изоляции Ca 2 + токи 10 мМ CaCl 2 или 90 мм BaCl 2 в качестве носителя заряда, HEPES буфером рН 7,6, осмолярности 270 мОсм) в патч пипетки с помощью шприца.
- Вставьте патч пипетки в держатель пипетки и положение над ванной с помощью моторизованного манипулятора MP225. Аккуратно опустите патч пипетки в ванну и позиции против лице флуоресцентно определены пресинаптических окончаний.
- Авансовые патч пипетки медленно, пока контакт не сделан с мембраной. В этот момент достижения gigaohm уплотнение при осторожном всасывания через рот трубкой, прикрепленной к держателю пипетки.
- Для достижения чрезвычайно низкие уровни фоновых шумов, необходимые для записи одного канала Ca 2 + токи, использовать Axopatch 200B с охлаждаемым headstage для записей. Пример данных в 20-50 кГц и фильтр с использованием 5 кГц фильтр Бесселя. Провести сбор данных, используя Axograph X.
- Используйте стандартный шаг протокол, с шагом в 10 мВ, как стимул. Включить предварительный импульс в протоколе, предшествующий шаг протокол, чтобы обеспечить максимальную активацию каналов Ca 2 +. Включить в 10 мВ шаг просочиться в шаге протокола для пост-анализа вычитания утечки токов.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Это дает протокола диссоциации здоровые и функциональные изолированные ретикулоспинальных аксоны лишенные постсинаптической прогнозы рис 2F, но которые тем не менее сохраняют функциональные пресинаптические терминалы, способные вызвала синаптических пузырьков экзо-и эндоцитоза рисунке 4с и рис 4d. Разделы изолированных регионах ретикулоспинальных аксонов могут быть четко определены при световой микроскопии быть ясно из любых других нейронных процессов, позволяющих неогр...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Наш протокол диссоциации Показательно, уступая изолированных ретикулоспинальных аксоны лишенные постсинаптической прогнозы рис 2F, но которые тем не менее сохраняют функциональную пресинаптическое терминалы Рисунок 4с и рисунок 4d. Отсутствие постсинаптических процессов противоположных пресинаптический терминал позволяет прямой доступ записи к пресинаптической релиз лица мембраны в отдельных пресинаптических окончаний, ранее не возможно в центральных синапсах и успешно ...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы не имеют каких-либо конкурирующих финансовых интересов или других конфликтов интересов, которые можно было бы раскрыть.
Благодарности
Эта работа была поддержана NINDS, RO1NS52699 и MH84874 to SA.
Мы хотели бы поблагодарить доктора Дэйва Фезерстоуна (факультет биологических наук, Университет Иллинойса в Чикаго) за предоставление нам шовного клея, используемого в работе по иммуногистохимии. Мы благодарим Майкла Алперта за его комментарии и корректуру рукописи.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 0,2 & микро; m Шприцевой фильтр | EMD Millipore | SLGV004SL | |
| 22 x 60 мм Покровные стекла | Fisherbrand | 12545J | |
| Advasep-7 | Cydex Pharmaceuticals | ADV7 | |
| Alexa Fluor 488 Фаллоидин | Invitrogen/Life Technologies | A12379 | |
| Alexa-633 конъюгированное козье антитело против кролика вторичное антитело | Invitrogen/Life Technologies | A21070 | |
| Антифриз | Престоун | ||
| Борная кислота | Sigma-Aldrich | B7660 | |
| Бычий сывороточный альбумин | Sigma-Aldrich | A7906 | |
| Источник яркого поля света | Dolan-Jenner | Fiberlite 180 | |
| Хлорид кальция | Sigma Aldrich | C4901 | |
| Коллагеназа типа IA от Cloristridium Histolyticum | Sigma-Aldrich | C9891 | |
| Покровное скольжение | Fisher-Scientific | 12-545-J | |
| Декстроза | Sigma-Aldrich | D9559 | |
| Цифровая ПЗС-камера | Hamamatsu | C8484-03G01 | |
| Тонкие щипцы для рассечения | Fine Science Tools | 91150-20 | |
| Щипцы для рассечения | Fine Science Tools | 11251-20 | |
| Диссекционный микроскоп | Leica Biosystems | Leica MZ 12 | |
| Диссекционные ножницы | Fine Science Tools | 15025-10 | |
| Диссекционные ножницы тонкие | Fine Science Tools | 91500-09 | |
| Диссекционные ножницы ультратонкие | Fine Science Tools | 15000-08 | |
| FM 1-43 | Invitrogen/Life Technologies | T3163 | |
| Глицин | Sigma-Aldrich | G7126 | |
| HEPES | Sigma-Aldrich | H7523 | |
| Высоковакуумная смазка | Dow-Corning | ||
| Соляная кислота | Fisherbrand | SA-56-500 | |
| Погружное масло | Fisher-Scientific | M2000 | |
| Промышленный азотный газовый бак | Praxair | UN1066 | |
| Булавки от насекомых | Fine Science Tools | 26002-10 | |
| Жидкий шовный клей | Braun Veterinary Cair Division | 8V0305 | Шовный клей, который мы использовали в наших экспериментах, был предоставлен нам другой лабораторией. Он больше не производится. Мы получили гистакриловый шовный клей для будущего использования от Aesculap (Ts1050071FP) |
| Хлорид магния | Sigma-Aldrich | M2670 | |
| Метанол | Sigma-Aldrich | 154903 | |
| обезжиренное сухое молоко | Технология клеточной сигнализации | 9999S | |
| P-87 Съемник микропипеток | Sutter Instruments | ||
| Параформальдегид | Sigma-Aldrich | P6148 | |
| Перфузионный насос | Cole-Palmer | Masterflex C/L чашка | |
| Петри 100 x 15 мм | Чашка Петри Fisher-Scientific | 875712 | |
| 35 x 10 мм | Fisher-scientific | 875712 | |
| Поли-D-лизина гидробромид | Sigma-Aldrich | P1024 | МВт > 300 000 |
| хлорид калия | Sigma-Aldrich | P9333 | |
| Фосфат калия одноосновной | Sigma-Aldrich | P5379 | |
| Первичные антитела R-типа кальциевого канала | Alomone | Labs ACC-006 | |
| Протеаза типа XIV от Streptomyces Griseus | Sigma-Aldrich | P5147 | |
| Лезвия скальпеля | World Precision Instruments | 500240 | |
| Бутылка давления Schot Duran | Fisher-Scientific | 09-841-006 | |
| Силиконовая трубка для нанесения клея | Cole-Palmer | 07625-26 | |
| Нарезка опорной плиты | Leica Biosystems | 14046327404 | |
| Камера для нарезки | Leica Biosystems | 14046230132 | |
| хлорида натрия | Sigma-Aldrich | S7653 | |
| Гидроксид | S8045 | ||
| Двухосновной фосфат | натрия Sigma-Aldrich | S9763 | |
| Тетраборат натрия | Sigma-Aldrich | B3545 | |
| Sylgard 160 Набор силиконовых эластомеров | Dow Corning | SYLGARD® 160 | Для приготовления смешайте эластомер А и эластомер В 10:1 по весу |
| Sylgard 184 Набор силиконовых эластомеров | Dow Corning | SYLGARD® 184 | Для приготовления смешайте эластомер и отвердитель в соотношении 10:1 по весу |
| Щипцы с тефлоновым покрытием | Fine Science Tools | 11626-11 | |
| Трикейн метансульфонат | Sigma-Aldrich | A5040 | |
| Вибратомные лезвия | World Precision Instruments | ЛЕЗВИЯ | |
| ксеноновой лампы | Nikon |
Ссылки
- Katz, B., Miledi, R. The timing of calcium action during neuromuscular transmission. Journal of Physiology. 189 (3), 535-544 (1967).
- Sabatini, B. L., Regehr, W. G. Timing of neurotransmission at fast synapses in the mammalian brain. Nature. 384 (6605), 170-172 (1996).
- Augustine, G. J., Adler, E. M., Charlton, M. P. The calcium signal for transmitter secretion from presynaptic nerve terminals. Annals of the New York Academy of Sciences. 635, 365-381 (1991).
- Zucker, R. S. Calcium and transmitter release. Journal of Physiology Paris. 87 (1), 25-36 (1993).
- Delaney, K. R., Shahrezaei, V. Uncaging Calcium in Neurons. Cold Spring Harbor protocols. (12), (2013).
- Paradiso, K., Wu, W., Wu, L. G. Methods for patch clamp capacitance recordings from the calyx. Journal of Visualized Experiments. (6), 244(2007).
- Stanley, E. F. The calyx-type synapse of the chick ciliary ganglion as a model of fast cholinergic transmission. Canadian Journal of Physiology and Pharmacology. 70, S73-S77 (1992).
- Church, P. J., Stanley, E. F. Single L type calcium channel conductance with physiological levels of calcium in chick ciliary ganglion neurons. The Journal of Physiology. 496 (Pt 1), 59-68 (1996).
- Stanley, E. F. Single calcium channels and acetylcholine release at a presynaptic nerve terminal. Neuron. 11 (6), 1007-1011 (1993).
- Weber, A. M., Wong, F. K., Tufford, A. R., Schlichter, L. C., Matveev, V., Stanley, E. F. N-type Ca(2+) channels carry the largest current implications for nanodomains and transmitter release. Nature Neuroscience. 13 (11), 1348-1350 (2010).
- He, L., Wu, X. S., Mohan, R., Wu, L. G. Two modes of fusion pore opening revealed by cell attached recordings at a synapse. Nature. 444 (7115), 102-105 (2006).
- Sheng, J., He, L., et al. Calcium channel number critically influences synaptic strength and plasticity at the active zone. Nature Neuroscience. 15 (7), 998-1006 (2012).
- Photowala, H., Freed, R., Alford, S. Location and function of vesicle clusters, active zones and Ca2+ channels in the lamprey presynaptic terminal. The Journal of Physiology. 569. 569 (Pt 1), 119-135 (2005).
- Rovainen, C. M. Synaptic interactions of reticulospinal neurons and nerve cells in the spinal cord of the sea lamprey. Journal of Comparative Neurology. 154 (2), 207-223 (1974).
- Takahashi, M., Freed, R., Blackmer, T., Alford, S. Calcium influx independent depression of transmitter release by 5 HT at lamprey spinal cord synapses. The Journal of Physiology. 532 (2), 323-336 (2001).
- Stanley, E. F., Goping, G. Characterization of a calcium current in a vertebrate cholinergic presynaptic nerve terminal. The Journal of Neuroscience. 11 (4), 985-993 (1991).
- El Manira, A., Bussières, N. Calcium channel subtypes in lamprey sensory and motor neurons. Journal of Neurophysiology. 78 (3), 1334-1340 (1997).
- Kay, A. R., Alfonso, A., et al. Imaging synaptic activity in intact brain and slices with FM1 43 in C elegans lamprey and rat. 24 (4), 809-817 (1999).
- Betz, W. J., Bewick, G. S. Optical analysis of synaptic vesicle recycling at the frog neuromuscular junction. Science. 255 (5041), 200-203 (1992).
- Bleckert, A., Photowala, H., Alford, S. Dual pools of actin at presynaptic terminals. Journal of Neurophysiology. 107 (12), 3479-3492 (2012).
- Gustafsson, J. S., Birinyi, A., Crum, J., Ellisman, M., Brodin, L., Shupliakov, O. Ultrastructural organization of lamprey reticulospinal synapses in three dimensions. The Journal of Comparative Neurology. 450 (2), 167-182 (2002).
- Broadie, K., Featherstone, D. E., Chen, K. Electrophysiological Recording in the Drosophila Embryo. Journal of Visualized Experiments. (27), (2009).
- Rae, J. L., Levis, R. A. A method for exceptionally low noise single channel recordings. Pflügers Archiv European Journal of Physiology. 420 (5-6), 618-620 (1992).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
