Перенос лимфоцитов bm12 реципиенту C57BL/6 является установленной моделью системной красной волчанки. Здесь мы опишем, как инициировать заболевание с помощью этой модели и как охарактеризовать Т-фолликулярные хелперы, В-клетки зародышевого центра и плазматические клетки с помощью проточной цитометрии.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
BM12 Индуцибельная Модель волчанка (СКВ) в C57BL / 6 мышей
В этой статье
Краткое содержание
Аннотация
Системная красная волчанка (СКВ) — это аутоиммунное заболевание с разнообразными клиническими и иммунологическими проявлениями. Несколько спонтанных и индуцируемых животных моделей отражают общие компоненты болезней человека, включая модель переноса bm12. После переноса спленоцитов bm12 или очищенных CD4 Т-клеток у мышей C57BL/6 быстро развиваются большие частоты Т-фолликулярных хелперов (Tfh), В-клеток зародышевого центра (GC) и плазматических клеток, за которыми следует высокий уровень циркулирующих антинуклеарных антител. Поскольку в этой модели используются мыши на чистом фоне C57BL/6, исследователи могут быстро и легко изучить прогрессирование заболевания у трансгенных или нокаутных линий мышей за относительно короткий период времени. Здесь мы описываем протоколы индукции модели и количественного определения Tfh, GC B-клеток и плазматических клеток с помощью многоцветной проточной цитометрии. Важно отметить, что эти протоколы также могут быть использованы для характеристики заболевания в большинстве мышиных моделей СКВ и идентификации Tfh, GC B-клеток и плазматических клеток в других моделях заболевания.
Введение
Системная красная волчанка (СКВ) является сложным аутоиммунным заболеванием характеризуется прототипически анти-ядерных антител (ANA) производства и гломерулонефрит. Многочисленные другие последствия, в том числе кожных, сердечно-легочная и печеночные поражения, связанные с болезнью в некоторых лиц. Оценки распространенности в США широко варьироваться, от 150,000-1,500,000 1,2, с особенно высокой заболеваемости у женщин и меньшинств 3. Хотя этиология СКВ было трудно различить, что, как полагают, является результатом взаимодействия различных генетических и экологических факторов, которые достигают высшей точки в системной аутоиммунной реакции.
Многочисленные модели на животных были использованы для изучения факторов, ведущих к начала заболевания и прогрессии. Классические модели мыши СКВ включают генетически предрасположенных линий мышей в том числе NZB х модели NZW F1 и его производных, в NZM / LPR деформации MLR, и штамма BXSB / Yaa и индуцируемых систем, таких, как рristane и хронический трансплантат-против-хозяина (cGVHD) модели 4. Ранние сообщения о аутоантител в моделях РТПХ использовали различные штаммы мыши или хомяка штаммов для родителей в F1 переводов 5 - 8; более общие методы, используемые для изучения красная, как болезнь в настоящее время включают в себя DBA / 2 родителя → (C57BL / 6 х DBA / 2) F1, и модель передачи BM12, описанной здесь. Каждая модель имеет свои собственные предостережения, но они, как правило имеют общий набор функций, которые коррелируют с клиническими особенностями заболевания человека. Наиболее часто сообщают параметры в мышиных моделях включает спленомегалия, лимфаденопатии, нефрит, ANA производства и на клеточном уровне, расширение Т-клеток-хелперов фолликулярных (TFH), зародышевых центров (GC) В-клеток и клеток плазмы.
Индуцируемый модель BM12 достигается приемных передачи лимфоцитов от ИА BM12 B6 (C) - Н2 - Ab1 BM12 / BM12 KhEgJ () мышей, штамм яdentical в C57BL / 6 на 3 аминокислотных замен на МНС класса II, за исключением, в IA б C57BL / 6 (В6) мышей. Alloactivation донорских лимфоцитов CD4 получателем БТР приводит к cGVHD с симптомами, напоминающие СКВ тесно. В частности, к ним относятся расширение донорской полученных ЦГВЗ, расширение получателей полученных GC-клеток и клеток плазмы, и производство НАНА включая анти-двухцепочечной ДНК, анти-одноцепочечной ДНК, анти-хроматина, и анти-RBC антител 9. Со временем, мыши-реципиенты развивать гломерулонефрит, связанный с IgG депозитов в клубочковой, интерстициальный и сосудистых регионах почек 10. Недавно мы показали, что подобно болезни человека, существует также критически роль IFN типа I в этой модели 11. Примечательно, что определяющие критерии для человека СКВ включают разработку нефрит, совместимый с СКВ в присутствии уровнем антител против дцДНК 12, оба из которых являются характерные особенности этой модели мыши.
Есть себеVeral преимущества BM12 модели за спонтанных моделей. Классические модели, которые развиваются СКВ, как признаки спонтанно либо полагаться на гибридных штаммов мыши, инбредных линий мышей не на B6 фоне, или большой генетических локусов на фоне B6, которые делают, пересекающих нокаут или иначе генетически модифицированных мышей сложным и трудоемким. С BM12 индуцибельного модели, генетически модифицированные мыши могут служить либо донора или получателя, что позволяет более быструю идентификацию сотового отсека, в котором конкретные гены могут иметь важное значение для болезни. Кроме того, развитие болезни в модели BM12 гораздо быстрее, не требуя всего 2 недели до появления НАНА, по сравнению с несколько месяцев для наиболее спонтанных моделей. Кроме того, в отличие от спонтанных моделей, которые развиваются болезни на разных временных точках, начало заболевания и прогрессирования в BM12 → B6 модели высоко синхронизированы. Это позволяет для генерации соответствующего размера когорт, которые могут бе используется для интервенционных или терапевтических стратегий на любой стадии развития заболевания.
Далее следует подробное протокол инициирования SLE, как аутоиммунные заболевания с приемной передачи BM12 лимфоцитов в C57BL / 6 мышей, или генетических вариантов на B6 фоне. Кроме того, мы опишем протокол окрашивания проточной цитометрии для перечисления TFH, GC-клетки, а также типы плазматические клетки-клеток, связанная с заболеванием человека. Важно отметить, что эти протоколы могут быть также использованы для описания болезни в большинстве мышиных моделях СКВ и определить TFH, GC-клетки и плазматические клетки в других моделях болезни.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Работа животных проводили в специфических патогенов без условий, в соответствии с руководящими принципами, установленными ассоциацией по оценке и аккредитации содержания лабораторных животных Care International и нашего Институциональные животных уходу и использованию комитета (IACUC).
ПРИМЕЧАНИЕ: Включение мышей, экспрессирующих маркер конгенных, такие как CD45.1 по обе донора или животных-реципиентов, если это возможно, потому что это позволяет для мониторинга эффективности донорской трансплантата и конкретного расширения донорской CD4 Т-клеточной популяции. Если рассматривать использование в противном случае генетически модифицированных мышей, как донор или получателей, обеспечить штамм правильно возвратное скрещивание с B6 фоне или переданные клетки могут быть отклонены-это будет решаться в более подробно в представительных результатов и обсуждение разделов.
ПРИМЕЧАНИЕ: Следующие процедуры объемы подробно для уборки 4 донора BM12 мышей, которые должны дать достаточно клеток для введения 12-16 мышей. Шестьдо двенадцати недельных мышей BM12 дают примерно 100-140 млн лимфоцитов с примерно 25% CD4 Т-клеток. Если, начиная с различных номеров мышей, или различных штаммов мыши, объемы масштабных вверх или вниз соответственно. Мыши C57BL / 6 обычно дают аналогичные урожайности с ближе к только 20% лимфоцитов CD4.
ПРИМЕЧАНИЕ: Выполните все шаги при комнатной температуре и использовать RT СМИ, чтобы избежать тепла и холода шок, который может нарушить долгосрочную жизнеспособность лимфоцитов. Выполните тканевой сбор и шаги ткани обработки в капот культуры ткани, используя асептики. Все средства массовой информации в этом протоколе является IMDM с 10% инактивированной нагреванием FBS, если не указано иное, и будет обозначен просто как "полной среды."
1. Новый метод для генотипирования BM12 мышей
ПРИМЕЧАНИЕ: краткое ограничение дайджест основе протокола для генотипирования предоставляется, как простой и недорогой альтернативы последовательности, которая в настоящее время публикуется только метод генотипированиядля этих мышей.
- Изолировать геномной ДНК из хвостов мышей. Пожалуйста, обратитесь к предыдущей статье Юпитер подробные протоколы на хвост мыши отсечения и генерации кДНК из хвоста переваривает 13.
- Выполнение обратной транскриптазы полимеризованный цепной реакции (ПЦР) 14, чтобы усилить общую 474 п.о. фрагмента ДНК из МНС-II IA б и IA BM12 с использованием праймеров и условия термоциклирования, перечисленные в таблице 1.
- Выполнение ограничение переварить на ~ 7 мкл ПЦР-продукта с использованием фермента PsuI, или один из его isoschizomers (BstX2I, BstYI, MflI или XhoII), который сокращает дикого типа IA В, но не мутантного И.А. BM12. Последующие переварить протокол, предоставляемого изготовителем, который укажет смесь воды, буфера и фермента, и инкубации в течение 5 мин. до нескольких часов при 37 ° С 15.
- Загрузите переварить продукт и на 1% -ном полиакриламидном геле с бромистым этидием 14 в течение 30-45 мин. на 150В, хотя оптимальные настройки напряжения и время будет изменяться в зависимости от аппарата, используемого для ПЦР гель. Представьте полос ДНК с УФ-осветителя. Типичные результаты показаны на рисунке 1.
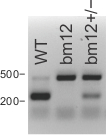
Рисунок 1. Представитель BM12 результатов генотипирования.
Чтобы определить мышей, гомозиготных по И.А. BM12 / BM12, хвост ДНК подвергают скринингу для BM12 с помощью ПЦР / ограничение переварить генотипирования (шаг 1). Гомозиготные дикого типа (И.А. б / б) ДНК дает две полосы на 227 и 247 б.п. (представленных в одной толстой полосы на ~ 250 б.п.); гомозиготных BM12 (И.А. BM12 / BM12) дает одну полосу ДНК на 474 б.п.; и гетерозиготных (И.А. BM12 / б) ДНК дает две полосы на ~ 250 и 474 б.п.. Пожалуйста, нажмите здесь, чтобы посмотреть большую версию этой фигуры.
2. Сбор донорскойЯчейки
- Мышей Жертва доноры, использующие Уходу за животными и использованию комитета (IACUC) -approved первичные и вторичные методы эвтаназии. Например, усыпить мышей от удушья с CO 2 с последующим смещением шейных позвонков.
- С помощью асептической техники, урожай селезенки и лимфатических узлов (шейные, поверхностные нижней челюсти, плечевой, подмышечные, мезентериальные и паховых) в 15 мл пробирки, содержащие 10 мл полной среды, как в 11-13.
ПРИМЕЧАНИЕ: Обратитесь к предыдущих докладах для детального лимфатических узлов протоколов 16 - 18. Эта модель также успешное использование только спленоцитов мышей для передачи, но добавление лимфатических узлов значительно снижает необходимое количество мышей-доноров. - Создание одного суспензии клеток по затирания лимфоидные ткани, собранные в шаге 2.2 через 70 мкм ячейки сита, используя поршень из шприца. Для лучшего урожайности, не перегружайте фильтры назначения ~ 6 фильтры для каждых 4мышей обрабатываются, и промыть фильтры часто во время обработки. Смешайте ткани от 4 мышей на две 50 мл конические пробирки, затем центрифуги клетки в течение 5 мин при 400 х г и декантируют супернатант.
- Ресуспендируют клетки с обеих конических труб в 50 мл полной среды и перехода на новую коническую трубку. Держите эту трубку при комнатной температуре.
Примечание: Жир прилипает к стенкам пробирки, и если трубка не будет заменен, окончательные клеточные выходы могут страдать.
3. Донор клеток Подсчет
ПРИМЕЧАНИЕ: Чтобы сохранить высокий жизнеспособность, красных кровяных клеток (эритроцитов) лизис всей выборки не рекомендуется.
- Смешайте клеточной суспензии с шага 2.4 и удалите 1 мл и перенести его в отдельную конической 50 мл. Отложите оставшиеся нетронутыми клетки (49 мл) при комнатной температуре при подсчете.
- Добавить 3 мл хлорид аммония на основе буфера для лизиса клеток красных кровяных к образцу 1 мл донорских клеток. Осторожно перемешать в течение 1 мин. покачиванием, а затем заполнить до 50 мл полной среды, вй центрифуги в течение 5 мин. 400 мкг и декантации надосадочной жидкости.
- Ресуспендируют РБК-лизируют клетки в 10 мл полной среды и количества (например, с помощью трипанового синего гемоцитометр). Умножьте результат на 49-это общее количество клеток, оставшихся в не лизируют образца, который был установлен в сторону. Отменить РБК-лизируют клетки.
4. Донор мечения клеток и / или Т-клеток CD4 Очистка
- При желании, очистить лимфоцитов CD4 на этой стадии, хотя это не является необходимым. Кроме того, при желании, на этикетке клетки с CFSE, как в 19 или другие красители отслеживания клеток, пример которого показан на рисунке 4 результатов разделе представительной.
ПРИМЕЧАНИЕ: Для CD4 Т-клеток очистки, отрицательное магнитное выбор рекомендуется, так как она может достичь высокой чистоты и оставляет нетронутыми клетки с высокой жизнеспособностью, как описано в 20. Важно, чтобы эндотоксина буферы используются; Поэтому, вместо того, BSA, сделать разделительную буфера остроумиеч 2% FBS и рекомендуемое содержание ЭДТА.
5. Введение донорских клеток BM12
- После подсчета лимфоцитов доноров на этапе 3 (и очищенный или помечены как на шаге 4, по желанию), центрифуги клетки в течение 5 мин при 400 х г в. Слейте супернатант и ресуспендирования клеток в PBS в 120 млн лимфоцитов на мл (или 30 млн очищенных CD4 Т-клеток на мл). Передача клетки в стерильную 5 мл с круглым дном трубки или другой стерильной пробирке, который легко вмещает 1 мл шприц, снабженный 27,5 г х 13 мм иглы.
- Перед инъекцией, отложите небольшую выборку из донорских клеток из стадии 5.1 при 4 ° С в течение окрашивания потока, чтобы определить, процент CD4 Т-клеток в образцах доноров. Пятно эти образцы, как описано в шаге 8, с использованием минимального панель антител (таблица 2).
ПРИМЕЧАНИЕ: Если клетки из различных штаммов мыши используются в качестве отдельных доноров, это является важным фактором, и если лимфоцитов CD4 проценты существенно различаются, PURфикация может потребоваться. - Смешайте клетки мягко, но тщательно. Это может быть сделано с помощью пипетки клетки вверх и вниз с помощью 1 мл шприц без прикрепленной иглой. После смешивания, рисовать клеток в 1 мл шприца. Прикрепите иглу после удаления пузырьков воздуха. Ведение иглы выключить, а грунтования шприц помогает поддерживать жизнеспособность клеток.
- Вводят 250 мкл на мышь (который равен 30 млн лимфоцитов, или 7,5 млн очищенных лимфоцитов CD4 на мышь) внутрибрюшинно, как описано в 21.
Примечание: В экспериментах, показанных здесь и в предшествующих работ 11 каждой мыши вводили 30 миллионов полных лимфоцитов доноров BM12, а не 100 млн общего спленоцитов, традиционно используемых. В неопубликованных данных нашей лаборатории, никакой разницы не наблюдалось в сыворотке анти-двухцепочечной ДНК в 14 дня, следующего инъекций 30 или 100 миллионов лимфоцитов на мышь. Хотя это значительно снижает количество мышей, необходимых для экспериментов, развитие нефрита именноч это число клеток не была оценена.
6. Определите эффективность прививки
Примечание 1: Этот раздел описывает, как определить степень донорских клеток прививки у реципиента в день 3 в целях выявления любых мышей, которые, возможно, получили неоптимальные инъекции (например, трансплантат в одном мыши <10%, что видел в Все остальные мышей из той же группы). Эти данные также могут помочь определить, является ли клетки из генетически модифицированного штамма мыши отклонены на более поздних временных точках (подробности см представительные результаты раздел, рисунок 6).
ПРИМЕЧАНИЕ 2: В этом разделе можно только, если доноры и получатели от мышей на разных конгенных фоны, например, при использовании CD45.1 BM12 доноров и CD45.2 C57BL / 6 получателей, или когда донорские клетки помечены красителем клеток отслеживания. Важно отметить, что через 3 дня после инъекции, лимфоциты CD4 претерпели минимальное разложение (SEе представителем раздел Результаты, рисунок 4), так что наблюдаемые различия в степени прививки обусловлены изменчивостью инъекций, не расширение.
- Обезболить мышей с 4% изофлуран или другой IACUC-утвержденного метода. Проверьте задние ноги рефлексы, обеспечивающие мышь правильно наркозом, прежде чем приступить к ничьей крови.
- Урожай 100-200 мкл крови, используя IACUC утвержденных способом, таким как ретроорбитального прокола, как в 22. Собирают кровь в отдельных 0,5 мл микроцентрифужных пробирках, содержащих антикоагулянт, например, труб для сбора плазмы, упомянутых в таблице материалов, которые содержат лиофилизировали дикалий ЭДТА. После сбора крови, нежный давление на глаза мыши, используя стерильный полотенце или марлю, чтобы кровотечение не остановится, а затем поместить мышь обратно в клетку, где он будет оставаться до тех пор, урожая окончательного ткани (шаг 7).
ПРИМЕЧАНИЕ: Не оставляйте без присмотра, пока мышей мышей не восстановили достаточно сознаниеподдерживать брюшной лежачее положение, и не вернуться мышей в компании других до полного восстановления. - Принесите объем крови 500 мкл 21 ° C PBS и трансфер в конической нижней трубки микроцентрифужных, затем медленно легли в основу 200 мкл 21 ° C решения разделения клеток высокой плотности с 200 мкл пипетки, стараясь свести к минимуму смешивание между двумя фазами ( см Материалы Стол для рекомендуемых решений). Центрифуга клетки при 700 мкг в течение 20 мин при 20-25 ° С с центрифуги тормозных колодок с низким.
- Удалить верхний слой, содержащий лимфоциты с пипеткой 1 мл и переносят в новый микроцентрифужную пробирку, содержащую 800 мкл холодного полный СМИ. Аккуратно вихрь, чтобы смешать клетки. Центрифуга клетки при 700 мкг в течение 5 мин при 4 ° С и декантации надосадочной жидкости.
- Ресуспендируют клеток в 200 мкл полной среды, переход на 96-луночный U-нижней пластине, и пятно на проточной цитометрии, как описано в шаге 8, с использованием минимального панель антител (таблица 2), чтобы определить, тон относительное обилие клеток трансплантата CD4 Т-в процентах от МПК.
7. Заключительный ткани урожая
ПРИМЕЧАНИЕ: Эксперименты, описанные в разделе результатов собирали через 14 дней после инъекции донорских клеток (или, в некоторых случаях меньше времени), так как они сосредоточены на первоначальную разработку ЦГВЗ клеток и клеток плазмы; Однако, так как эта модель является модель хронического РТПХ СКВ, болезнь можно контролировать в более поздних временных точках. Оптимальный срок будет зависеть от исследовательской поставленный вопрос в каждом отдельном эксперименте.
- В заранее определенный момент времени после инъекции клеток BM12 доноров (этап 5.4), пожертвовать мышей с использованием утвержденных IACUC метод эвтаназии. Удушье СО 2 с последующим кровопусканием рекомендуется. Дислокации шейных позвонков может функционировать в качестве вторичного метода эвтаназии, но это может снизить урожайность забор крови.
- Намочите живот мыши слегка с распылитель, содержащей 70%спирт этиловый. Сделайте небольшой надрез, поверхностное с хирургическими ножницами примерно 1 см выше гениталий. Нарисуйте назад кожу живота по направлению к грудине, будьте осторожны, чтобы держать брюшную фасцию нетронутыми.
ПРИМЕЧАНИЕ: Больные мыши, как правило, поступают с 0,5-3 мл асцита в 14 день, который, хотя и это еще не хорошо характеризуется, могут быть измерены и проанализированы в качестве дополнительного параметра болезни. - Установите 5 мл шприц с иглой 18 G. Вставьте иглу в нижнем правом квадранте брюшной полости с иглой направленной вверх к голове животного и при 15 ° углом к плоскости панели. Расположите кончик иглы около слепой кишки, чтобы помочь предотвратить иглы от засорения кишечника с в то время как аспирационных асцит.
- Осторожно вращайте мышь на его стороне, затем медленно привлечь асцит в шприц. После асцит была возвращена, удалить шприц и записывать объем аспирации, на основании маркировкой по объему на стороне syriНге.
- Разрядные асцит в 5 мл с круглым дном трубки и хранить на льду для последующей обработки.
- Урожай в крови с помощью жеребьевки из нижней полой вены (НПВ) существенно, как в 22. Использование тусклые щипцов, осторожно двигаться кишечник левой стороне мыши, раскрывая IVC. Вставка 27,5 г иглу, установленное на 1 мл шприца в НПВ и медленно обратить 400-500 мкл крови.
- Чтобы свести к минимуму гемолиз, медленно вдохнуть кровь в 0,5 мл микроцентрифужных сыворотки или плазмы трубки сбора. Для последующего анализа сыворотки НАНА путем ELISA, держать кровь на льду.
- Рассеките и получить соответствующую дополнительную тканей (селезенки и, при желании, лимфатических узлов и почек, особенно если собирать на более поздних временных точках и гломерулонефрит будет забито). Удалить селезенки, осторожно размещения кишечник обратно к правой стороне животного, и потянув на поджелудочную железу, которая первичной соединительной ткани селезенки в.
- Удалите оставшуюся поджелудочную железу, затем взвеситьселезенке на высокой точности баланса сразу после вскрытия, а валовая спленомегалия обычно сообщают параметр в моделях мыши СКВ. Поместите лимфоидных тканей в отдельные 1,5 мл пробирки, наполненные 1 мл полной среды на льду. Fix почки в 10% нейтральном формалине с буфером или оснастки заморозить почки для последующего гистологического исследования, как в 23.
- Центрифуга крови в пределах 2 ч сбора в течение 3 мин. при 10000 мкг (4 ° C). Удалить сыворотку и хранят при -80 ° С для последующего анализа с помощью ELISA ANA. См предыдущих докладах подробно для протоколов Ана Элиса 24,25. Хранить сыворотку в нескольких аликвотах 10-20 мкл, чтобы минимизировать циклов замораживания / оттаивания, и позволить большее количество будущих анализов.
- Центрифуга асцита 400 мкг в течение 5 мин. Удалить супернатант с пипеткой 1 мл аликвоты и на несколько 0,5 мл пробирок. Замораживание супернатант при -80 ° С в течение последующих анализов анти-ядерных антител (НАНА) или других растворимых медиаторов воспаления.
- Ресуспендируют клеточный fract иона в примерно 1 мл полной среды и передачи 200 мкл на 96-луночные U-нижней пластине для окрашивания потока (как в шаге 8).
- Разомните каждый селезенки через 70 мкм ячейки сита в отдельные пробирки и промойте полных СМИ. Ресуспендируют спленоцитов с 1 мл холодного буфера для лизиса эритроцитов в течение 1 мин. и аккуратно перемешать покачиванием. Принесите объем до 10 мл холодной полной средой и центрифуги в течение 5 мин при 400 мкг и переливать супернатант.
- Ресуспендируют осадок клеток в 5 мл полной среды и рассчитывать с помощью гемоцитометра. Регулировка громкости, так что 200 мкл полной СМИ содержит 1-3 миллионов клеток. Начните окрашивания для проточной цитометрии (этап 8), используя расширенную панель (таблица 2) для количественного доноров лимфоцитов CD4 и получатель B дифференциации и расширения клеток.
ПРИМЕЧАНИЕ: В зависимости от того, что лазер, ФЭУ комбинации (ФЭУ), и набор фильтров доступны, отделяя панель анализа Т-клеток и В в нескольких панелей может быть необходимым.
- Передача 1-3 млн спленоцитов в 200 мкл полной среды в отдельных 5 мл с круглым дном трубки, или на отдельные лунки 96-луночного U-нижней пластине.
ПРИМЕЧАНИЕ: Использование 96-луночного планшета является эффективным способом, чтобы окрасить несколько образцов, но позаботиться, чтобы тарелка образцы в любой другой скважины, чтобы предотвратить перекрестное загрязнение. Один 96-луночный планшет может соответственно провести 24 образцов. - Центрифуга пластины при 500 мкг в течение 3 мин., Затем щелчок супернатант из пластины в соответствующем (биологической) контейнера.
- Ресуспендируют ячейки гранул с 100 мкл буфера потока (1% FBS в PBS), содержащим, закрепляемых на жизнеспособность красителя рекомендованной изготовителем концентрации и очищают анти-CD16 / анти-CD32 антитела в коктейль 1 мкг / мл. Выдержите в течение 10 мин при 20-25 ° С, затем добавить 100 мкл холодные полные СМИ, чтобы утолить жизнеспособность красителя.
ПРИМЕЧАНИЕ: Спленоциты больных мышей, как правило, содержат относительно большое число погибших или умирающих клеток;Поэтому, включение жизнеспособности красителя рекомендуется избегать неспецифической маркировки антител смерти клетки, в результате чего более чистых и надежных данных. Кроме того, анти-CD16 / анти-CD32 коктейль входит блокировать неспецифическую флуоресцентно-меченого антитела связывания Fc рецепторов с. - Центрифуга пластины при 500 мкг в течение 3 мин., Затем щелчок супернатант из пластины в контейнер для биологически опасных. Ресуспендируют клеток в 200 мкл буфера потока. Центрифуга пластины при 500 мкг в течение 3 мин., Затем щелчок супернатант из пластины в контейнер для биологически опасных.
- Ресуспендируют клеток в 50 мкл буфера потока коктейль, содержащий антитела (Таблица 2). Инкубировать в течение 20 мин при 4 ° С, затем добавляют 150 мкл буфера потока. Повторите шаг мыть 8.4.
- Ресуспендируют клеток с 100 мкл 2% параформальдегида в PBS. Инкубировать в течение 30 мин при 4 ° С, затем добавляют 100 мкл буфера потока. Центрифуга пластины при 500 мкг в течение 3 мин., Затем щелчок супернатант из пластины в контейнер для биологически опасных.
- Resuspeго в 200 мкл буфера потока, передачи на расходной трубке вставок или стандартные трубок, добавить дополнительный буфер потока 100-200 мкл, и хранят при температуре 4 ° С в темноте до тех пор, приобретая на проточном цитометре.
- Приобретать на поток цитометр оснащен соответствующим лазеров и ФЭУ для выбранных антител панелей в течение нескольких дней окрашивания. Запись вперед ширина разброса и / или высота в дополнение к вперед разброс область, боковой площади рассеяния и площади флуоресцентных параметров, используемых. Для получения надежных результатов, приобрести ≥1,000 донорских клеток в каждом образце WT или эквивалентное количество общих лимфоцитов в генетически модифицированных или иным манипуляциям мышей, которые показывают минимальный расширение донорских клеток, где сбор так много событий, не может быть возможным.
Примечание: анализ методом проточной цитометрии подробно описаны в разделе результатов репрезентативного (Рисунки 3 - 6).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Больные мыши развивают спленомегалия, как мало, как 14 дней, демонстрируя селезенке 2-3 раза размер здоровых мышей с точки зрения массы и клеточности (рис 2).
Спленоциты последовательно воротами на светорассеяния (FSC-A ГНЦ-A), устранение дублетов (FSC-W или -H по FSC-A), жизнеспособных клеток (низкий окрашивание жизнеспособность красителя), и CD4 + TCR & beta; + (рис 3A). Донорские клетки отличаются от клеток-реципиентов на основе ...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
BM12 индуцируемый модель является относительно простой и эффективный способ для изучения клеточных и молекулярных процессов СКВ. Хронический активации адаптивно переданных лимфоцитов CD4, направленных против аутоантигенов приводит к накоплению TFH, GC-клеток, и клетки плазмы, которые могут быть измерены с помощью проточной цитометрии, как описано здесь. Будущие исследования, использующие эту модель можно легко и быстро опрашивать роль генов-кандидатов и новых методов лечения аутоиммунных в зародышевых процессов центра, ...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
Эта работа была частично поддержана Исследовательским институтом волчанки, грантом NCI CA138617, грантом NIDDK DK090978, премией Шарлотты Шмидлапп (для E.M.J.) и стипендией Альберта Дж. Мы благодарны за поддержку и оборудование, предоставленные Исследовательским центром проточной цитометрии в отделении ревматологии Медицинского центра детской больницы Цинциннати, частично при поддержке NIH AR-47363, NIH DK78392 и NIH DK90971.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| В6. SJL-Ptprca Pepcb/BoyJ | Лаборатория Джексона | 001162 | CD45.1+ BoyJ штамм |
| мышей B6(C)-H2-Ab1bm12/KhEgJ | Лаборатория Джексона | 001162 | Bm12 штамм мышей |
| FastDigest PsuI | Life Technologies | FD1554 | Фермент рестрикции для генотипирования |
| 1X RBC Lysis Buffer | eBioscience | 00-4333-57 | |
| IMDM | GE Healthcare | SH30228.01 | |
| Пробирка для разделения плазмы (PST) | BD | 365974 | Пробирка для сбора крови с пробиркой для разделения сыворотки Dipotassium EDTA |
| (SST) | BD | 365967 | Пробирка для сбора крови с активатором сгустков / SST Gel |
| Ficoll | GE Healthcare | 17-1440-02 | Решение для разделения ячеек высокой плотности |
| Lympholyte-M | Cedarlane | CL5030 | Раствор для разделения клеток высокой плотности |
| GL-7-биотин | eBioscience | 13-5902-82 | |
| Стрептавидин-BUV395 | BD | 564176 | |
| CD138-BV421 | BioLegend | 142508 | |
| CD4-BV510 | BioLegend | 100559 | |
| TCRβ-BV605 | BD | 562840 | |
| CD45.1-BV711 | BioLegend | 110739 | |
| CD45.2-FITC | BioLegend | 109806 | |
| PD-1-PE | BioLegend | 135206 | |
| CD19-PerCP | BioLegend | 115532 | |
| Fas-PE-Cy7 | BD | 557653 | |
| CXCR5-APC | BioLegend | 145506 | |
| Изменяемая жизнеспособность Краситель ef780 | eBioscience | 65-0865-18 | |
| CD4-BV421 | BioLegend | 100443 | |
| 1,2 мл вкладыши для трубок FACS, стеллажный | США Scientific | 1412-1400 | |
| BD Falcon™ Трубы с круглым дном | BD | 352017 |
Ссылки
- Helmick, C. G., Felson, D. T., et al. Part I. Arthritis Rheum. Estimates of the prevalence of arthritis and other rheumatic conditions in the United States. 58, 15-25 (2008).
- Lupus Foundation of America Web Site. , Available from: http://www.lupus.org/answers/entry/what-is-lupus (2015).
- Somers, E. C., Marder, W., et al. Population-based incidence and prevalence of systemic lupus erythematosus: The Michigan lupus epidemiology and surveillance program. Arthritis and Rheumatol. 66, 369-378 (2014).
- Perry, D., Sang, A., Yin, Y., Zheng, Y. -Y., Morel, L. Murine models of systemic lupus erythematosus. J Biomed Biotechnol. 2011, 271694(2011).
- Lindholm, L., Rydberg, L., Strannegård, O. Development of host plasma cells during graft-versus-host reactions in mice. Eur J Immunol. 3 (8), 511-515 (1973).
- Fialkow, P. J., Gilchrist, C., Allison, A. C. Autoimmunity in chronic graft-versus-host disease. Clin Exp Immunol. 13, 479-486 (1973).
- Streilein, J. W., Stone, M. J., Duncan, W. R. Studies on the Specificity of Autoantibodies Produced in Systemic Graft-vs-Host Disease. J Immunol. 114 (1), 255-260 (1975).
- Gleichmann, E., Gleichmann, H. Diseases caused by reactions of T lymphocytes to in compatible structures of the major histocompatibility complex. I. Autoimmune hemolytic anemia. Eur J Immunol. 6 (12), 899(1976).
- Morris, S., Cohen, P. L., Eisenberg, R. Experimental induction of systemic lupus erythematosus by recognition of foreign Ia. Clin Immunol Immunopathol. 57 (2), 263-273 (1990).
- Chen, F., Maldonado, M., Madaio, M., Eisenberg, R. The Role of Host (Endogenous) T Cells in Chronic Graft-Versus-Host Autoimmune Disease. J Immunol. 161 (11), 5880-5885 (1998).
- Klarquist, J., Hennies, C. M., Lehn, M. A., Reboulet, R. A., Feau, S., Janssen, E. M. STING-Mediated DNA Sensing Promotes Antitumor and Autoimmune Responses to Dying Cells. J Immunol. 193, 6124-6134 (2014).
- Petri, M., Orbai, A. -M., et al. Derivation and validation of systemic lupus international collaborating clinics classification criteria for systemic lupus erythematosus. Arthritis Rheum. 64 (8), 2677-2686 (2012).
- Zangala, T. Isolation of genomic DNA from mouse tails. J Vis Exp. (6), e246(2007).
- Lorenz, T. C. Polymerase Chain Reaction: Basic Protocol Plus Troubleshooting and Optimization Strategies. J Vis Exp. (63), e3998(2012).
- Product information: Thermo Scientific FastDigest PsuI. , Thermo Scientific. Available from: https://tools.lifetechnologies.com/content/sfs/manuals/MAN0012567_FastDigest_PsuI_UG.pdf (2012).
- Matheu, M. P., Parker, I., Cahalan, M. D. Dissection and 2-photon imaging of peripheral lymph nodes in mice. J Vis Exp. (7), e265(2007).
- Harrell, M. I., Iritani, B. M., Ruddell, A. Lymph node mapping in the mouse. J Immunol Methods. 332 (1-2), 170-174 (2008).
- Covelli, V. Chapter 3, Internal examination. Guide to the necroscopy of the mouse. , Available from: http://eulep.pdn.cam.ac.uk/Necropsy_of_the_Mouse/index.php?file=Chapter_3.html (2009).
- Quah, B. J. C., Parish, C. R. The use of carboxyfluorescein diacetate succinimidyl ester (CFSE) to monitor lymphocyte proliferation. J Vis Exp. (44), e2259(2010).
- Matheu, M. P., Cahalan, M. D. Isolation of CD4+ T cells from mouse lymph nodes using Miltenyi MACS purification. J Vis Exp. (9), e53319(2007).
- Machholz, E., Mulder, G., Ruiz, C., Corning, B. F., Pritchett-Corning, K. R. Manual Restraint and Common Compound Administration Routes in Mice and Rats. J Vis Exp. (67), e2771(2012).
- Hoff, J. Methods of Blood Collection in the Mouse. Lab Animal. 29 (10), 47-53 (2000).
- Cohen, M., Varki, N. M., Jankowski, M. D., Gagneux, P. Using Unfixed, Frozen Tissues to Study Natural Mucin Distribution. J Vis Exp. (67), e3928(2012).
- Cohen, P. L., Maldonado, M. A. Animal models for SLE. Curr Protoc Immunol.. Chapter 15, Unit 15.20(2003).
- Seavey, M. M., Lu, L. D., Stump, K. L. Animal models of systemic lupus erythematosus (SLE) and ex vivo assay design for drug discovery. Curr Protoc Pharmacol. Chapter 5, Unit 5(2011).
- McKenna, K. C., Vicetti Miguel, R. D., Beatty, K. M., Bilonick, R. A. A caveat for T cell transfer studies: generation of cytotoxic anti-Thy1.2 antibodies in Thy1.1 congenic mice given Thy1.2+ tumors or T cells. J Leukoc Biol. 89 (2), 291-300 (2011).
- Scott, D. M., Ehrmann, I. E., et al. Identification of a mouse male-specific transplantation antigen H-Y. Nature. 376, 695-698 (1995).
- Joly, E., Hudrisier, D. What is trogocytosis and what is its purpose. Nat Immunol. 4 (9), 815(2003).
- Brown, D. R., Calpe, S., et al. Cutting edge: an NK cell-independent role for Slamf4 in controlling humoral autoimmunity. J Immunol. 187 (1), 21-25 (2011).
- Morris, S. C., Cheek, R. L., Cohen, P. L., Eisenberg, R. A. Allotype-specific immunoregulation of autoantibody production by host B cells in chronic graft-versus host disease. J Immunol. 144 (3), 916-922 (1990).
- Choudhury, A., Cohen, P. L., Eisenberg, R. A. B cells require “nurturing” by CD4 T cells during development in order to respond in chronic graft-versus-host model of systemic lupus erythematosus. Clin Immunol. 136 (1), 105-115 (2010).
- Slifka, M. K., Antia, R., Whitmire, J. K., Ahmed, R. Humoral immunity due to long-lived plasma cells. Immunity. 8 (3), 363-372 (1998).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
