Идеальной моделью для изучения биологии взрослых стволовых клеток является волосяной фолликул мыши. В данной работе мы представляем протокол выделения различных популяций волосяных фолликулов, стволовых клеток и эпидермальных кератиноцитов с использованием ферментативного переваривания спинной кожи мыши с последующим анализом FACS.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Разделительный волосяного фолликула стволовых клеток и кератиноцитов эпидермиса из кожи Спинной мыши
В этой статье
Краткое содержание
Аннотация
Волосяной фолликул (HF) является идеальной системой для изучения биологии и регуляции взрослых стволовых клеток (SC). Этот динамичный мини-орган пополняется отдельными бассейнами СК, которые расположены в постоянной части ВЧ, области, известной как выпуклость. Эти мультипотентные выпуклые СК были первоначально идентифицированы как клетки, удерживающие метки с медленным циклом; тем не менее, их выделение стало возможным после идентификации специфических клеточных маркеров, таких как CD34 и кератин 15 (K15). В данной статье мы описываем надежный метод выделения выпуклых СК и эпидермальных кератиноцитов из СН мышей с использованием технологии флуоресцентной активированной сортировки клеток (FACS). Изолированные СК волосяных фолликулов (HFSC) могут быть использованы в различных моделях трансплантации in vivo и являются ценной моделью in vitro для изучения механизмов, которые управляют мультипотентностью, покоем и активацией.
Введение
Взрослые стволовые клетки (SCS) необходимы для поддержания гомеостаза тканей путем замены умирающие клетки и восстановления поврежденных тканей после повреждения. Эти Стволовые определяются их способности претерпевать постоянному самообновлению и дифференцироваться в различные клеточные клоны 1-3. Наиболее изучены системы, которые зависят от взрослых ГКС для их пополнения, включают в себя систему гемопоэза, кишечник и 1,2,4 кожи.
Во время эмбриогенеза, кожа начинает как один слой эпидермальных клеток. Морфогенез волосяного фолликула (HF) начинается , когда мезенхимальные клетки заселить кожу и образуют основные коллагеновые дермы 5. Специализированные мезенхимальные клетки, которые впоследствии составляют сосочков дермы (DP), упорядочивать непосредственно под эпидермальным слоем и стимулируют эпителий плакоды , чтобы сформировать волосы , которые начинают расти вниз 6. Высоко пролиферирующие матричные клетки, расположенные в нижней части ВЧ,конверт эти мезенхимные клетки и образуют луковицы, в то время как внутренний слой начинает дифференцироваться в концентрических цилиндров , чтобы сформировать волос вала (HS) и окружающий внутреннюю оболочки корня (IRS) 2,3.
В постнатальной жизни эпидермис кожи состоит из трех отделения: интерфолликулярной эпидермис (IFE), сальные железы (SG) и HF. В отличие от IFE и SG , которые находятся в постоянном состоянии гомеостаза, ВЧ представляет собой динамичный мини-орган , который претерпевает непрерывные циклы роста (анагена), уничтожение (катагена) и покоя (телоген) 4,7. Волосяной фолликул стволовые клетки (HFSCs) , что топливо , этот вечный цикл, постоянно находиться в специализированной нише в пределах HF , известной как выпуклость 4. Во время анагена в HFSCs выхода из выпуклость, следующие сигналы активации с DP, начинают пролиферировать и спускаемся вниз , таким образом , создавая длинный линейный след клеток , известных как внешней оболочки корня (ПРС) 8-10. Матричные клетки, которыеокружают DP на базе ВЧ, быстро цикла и мигрировать вверх проходит терминальной дифференцировки , таким образом , генерирующее HS и IRS 10 (рисунок 1). Продолжительность анагена определяет длину волос и зависит от пролиферативного и дифференциации мощности матричных ячеек 6. Когда HF входит катагена, транзитно-усилительных матричные клетки в колбы перестают размножаться, подвергаются апоптозу и регрессируют полностью, потянув DP вверх , пока он не достигнет , не задействуя часть ВЧ 8,11. Во время этого втягивания ВЧ образует временную структуру, известную как эпителиальный нить, которая характерна для катагена, и содержит много апоптозных клеток. У мышей, катаген длится от 3-4 дней и высокосинхронной в первом цикле волос. Когда HF достигает телоген все HFSCs становятся в состоянии покоя. Отличительными этапы цикла HF также характеризуются изменением цвета кожи мыши вследствие мelanin производство. Изменения кожи от черного во время анагена до темно - серого цвета во время катагена до розового во время телогене 6,7,12,13.
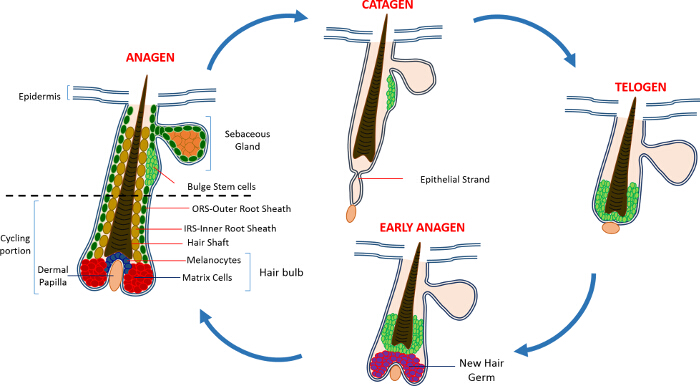
Рисунок 1: волосяной фолликул цикл. КВ состоит из постоянной верхней части и нижней постоянно ремоделирования, езда на велосипеде часть , которая претерпевает непрерывные циклы быстрого роста (анагена), уничтожение (катагена) и относительной фазы форсированном или покоя (телоген). Пожалуйста , нажмите здесь , чтобы увидеть увеличенную версия этой фигуры.
ГКС поддержание ВЧ первоначально были идентифицированы с использованием чейза экспериментов, с помощью меченного тритием тимидина, которые показали население медленно меток задействуя удерживающих клеток (LRC) , которые проживали в постоянной области HF чуть ниже SG 14. Достижения в HFSCхарактеристика выявлено небольшое количество маркеров , которые могут быть использованы для идентификации и выделения конкретных SCs из HF ниши 15. Возможно, лучший маркер для обогащения HFSCs является CD34, поверхностный маркер клеток также идентифицирован как кроветворной SC маркера в организме человека 16. В пределах этой популяции CD34 + две различные группы населения также были выделены основаны на α6 экспрессии интегринов 2. Другой маркер является кератин 15 (К15) , который экспрессируется на высоком уровне в области выпуклость, совместно локализуется с экспрессией CD34 и К15 промотор используется для ориентации и выделения HFSCs в трансгенных животных 15,17-19. В последнее десятилетие несколько других различных популяций HFSCs и клеток - предшественников также сообщалось проживать в пределах HF 17,20-27.
Еще интересной особенностью HFSCs является их вклад в ремонт кожи. При нормальных условиях HFSCs пополнения HF и не принимают участия в IFE гомеостаза. Хаувер, в ответ на язву эти клетки выйдут из SC ниши и помощь в заселив ФИИ 9. Недавно мы показали , что у мышей удалены для проапоптотического дисплея гена Sept4 / ARTS повышенное количество CD34, K15 и Sox9 + HFSCs, которые демонстрируют устойчивость к апоптозу. HFSCs были выделены из Sept4 / ИСКУССТВ - / - спинные шкуры с использованием флуоресценции активированной сортировки клеток (FACS) и там было больше , чем в два раза больше числа CD34 + и K15 + HFSCs. Эти Sept4 / ARTS - / - HFSCs были расширены в пробирке и не только привели к более колоний , но также способны выдерживать более жесткие условия по сравнению с контрольной группой 28.
В результате того , что повышенное количество HFSCs, Sept4 / ARTS - / - мышей значительно быстрее зажила в ответ на иссечение кожи травм. Поразительно, Sept4 / ARTS - / - мышей displayeда большое количество регенерированных HFs из раневого ложа, а также значительно меньшие шрамы. Кроме того, мыши , удаленные для XIAP (ингибитор Х-хромосомой апоптоза), биохимической мишени ИСКУССТВ, продемонстрировали ухудшение заживления 28.
Наши результаты и работы, выполненные в других лабораториях, показали, что HFSCs служат идеальной моделью для изучения биологии и функции взрослых SCS. Здесь мы описываем методологию для обогащения и выделения HFSCs и эпидермальных кератиноцитов на основе экспрессии четырех маркеров: интегрин а6; интегрин β1; Sca-1 (маркер для кератиноцитов эпидермиса) и CD34. Подобное выделение K15 + HFSCs также может быть выполнена с использованием K15-GFP - репортер мыши 19.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Это исследование было проведено в строгом соответствии с рекомендациями, изложенными в Руководстве по уходу и использованию лабораторных животных Министерства Израиля здравоохранения. Все животные были обработаны в соответствии с утвержденным протоколом институционального ухода за животными IL-02302-2015 Техниона Израильского технологического института.
1. Экспериментальная подготовка
- Приготовление хелатной фетальной бычьей сыворотки
Примечание: Эпителиальные клетки очень чувствительны к кальцию, так что очень важно, чтобы управлять экспозицией этих клеток по отношению к кальцию. Для того , чтобы гарантировать , что клетки не подвергаются воздействию кальция во время процесса выделения хелятации используется для удаления остатков кальция из фетальной бычьей сыворотки используют для приготовления окрашивающего буфера 29. Следующий протокол готовит приблизительно 1 л бескальциевой эмбриональной телячьей сыворотки, необходимое для приготовления FACS окрашивания буфера.- Добавьте 400 г сухого хелатообразующего материала, например ,., Chelex, в 4 л лабораторный стакан и добавить дистиллированную H 2 O до общего объема 4 L. Накройте и размешать непрерывно с использованием магнитной мешалки.
- Отрегулируйте рН до 7,4 с помощью 10 N раствора HCl при перемешивании. Продолжать перемешивание в течение 20 мин и повторно регулировать рН в случае необходимости до тех пор, пока рН не остается стабильным в течение более чем 20 мин.
- Выдержите в химический стакан при температуре 4 ° С в течение ночи, чтобы позволить хелатный материал с образованием компактной гранул. Тщательно аспирата H 2 O и добавляют свежий дистиллированная H 2 O до полного объема 4 L.
- Повторите регулировку рН, как на этапе 1.1.2.
- Стакан помещают при 4 ° С в течение 1 часа, чтобы дать хелатирующий материал с образованием компактной гранул. Тщательно аспирата H 2 O.
- Медленно добавить две 500 мл бутылки эмбриональной телячьей сыворотки с хелатирующим материала. Перемешать медленно при температуре 4 ° С в течение 1 ч, обеспечивая, что установка скорости не производит пузыри.
- Стакан помещают при 4 ° С в течение 1 часа, чтобы дать хелатирующий материал для формирования Компдействовать осадок.
- Аккуратно перенести сыворотку в 1 л стеклянную колбу и фильтруют ее через бутылку верхний фильтр в стерильных условиях. Хранить хелатного сыворотку при -20 ° С или использовать немедленно.
- Получение окрашивающего буфера
- Приготовьте 100 мл 3% хелатной FBS в PBS без Са 2+ и Mg 2+ и держать на льду.
2. Изоляция волосяные фолликулы от взрослых Эпидермиса
- Обезболить мышей, используя 5% изофлуран использованием индукционной коробку. Протокол, описанный здесь, был оптимизирован с использованием 50-80 день старых мышей, которые находятся в фазе телогена цикла HF.
- Эвтаназии мышей в соответствии со стандартными лабораторных процедур. Здесь, усыпить мышей с использованием передозировку CO 2 в эвтаназии камере.
- Бритье все волосы из кожи спины, используя электрические ножницы. Избегайте головы и конечностей. Держите машинки для стрижки как можно ближе к коже. Избегайте повреждения кожи и подкожный слой.
- Когда все волосы удалены, используйте 70% этанола, чтобы удалить остатки волос и дезинфицировать кожу спины.
- Поместите курсор на секционном площадку, и с помощью пинцета подтянуть кожу около хвоста и сделать небольшой ник с помощью ножниц. Вырезать всю кожу спины в задне-переднем направлении, осторожно срезая кожу и отделяя ее от фасции. Избегайте повреждения подкожного слоя.
- Поместите кожу на секционном коврик, боковые волосы вниз и придавить две соседние края кожи, чтобы зафиксировать на месте. Осторожно соскоблить жир, используя тупой скальпель, пока дермы не ясна и аккуратно.
Примечание: Когда соскабливания жир, использовать изогнутые щипцы, чтобы применить мягкое давление на кожу. Нанести давление на кожу с помощью изогнутой стороне щипцов. Это позволит предотвратить кожу от разрыва. - Поместите кожу, дерму стороной вниз, в 100 мм стерильной культуре блюдо и выровняйте кожу, чтобы убедиться, что нет никаких складок. Добавьте 10 мл PBS без Са 2+ и Mg 2+ (PBS , -) в чашку с культурой и выпрямить кожу , если это необходимо.
- Аспирируйте PBS и добавляют 10 мл 0,25% трипсина. Убедитесь в том, что кожа раскладывается и свободно плавающим. Выдержите один кусок кожи на 10 мл 0,25% трипсина.
- Инкубируйте образцы при температуре 37 ° С в течение 30-120 мин или при 4 ° С в течение ночи.
3. Получение суспензии отдельных клеток из волосяных луковиц
- Скрип все волосы с кожи с помощью изогнутых щипцов и скальпель, в качестве передней к задней направлении. Держите кожу в месте с помощью изогнутой стороне щипцов и использовать скальпель, чтобы соскрести волосы.
Примечание: Соскоблите волосы в трипсин раствор добавляют на стадии 2.8. Начало в хвост и следовать в направлении роста волос. Соскабливания против направления роста волос приведет к существенной потере ТФ и снижению выхода клеток. HFs склонны придерживаться каждый вместе и образуют небольшие сгустки; для того, чтобы уменьшить юе размер HF сгустки попытаться соскрести небольшую площадь на время. - Перенести голую кожу новой культуры блюдо и добавить 10 мл PBS - чтобы предотвратить его от высыхания. Осмотрите кожу и соскрести все оставшиеся волосы.
- Ломайте HFs с помощью скальпеля и пинцета до тех пор, пока не будет получено ни одного КВ подвески. Энергично растирают HF суспензии с помощью 10 мл пипетки в течение нескольких минут, чтобы разбить все комки волос.
Примечание: Выполните все следующие шаги на льду. - Передача HF суспензии в предварительно меченных 50 мл трубки.
- Аспирируйте PBS - от кожи и использовать его для промывки клеток культуры блюдо , которая содержала HF суспензии; передать в 50 мл пробирку.
- Мойка
- Суспензию фильтруют, пропуская через сито 70 мкм клетки устанавливают на 50 мл пробирку. Промыть первоначальный 50 мл трубки и сетчатый фильтр с 10 мл окрашивающего буфера (PBS - с 3% хелатные FBS).
- Суспензию фильтруют путем пропусканиячерез мкм клеточный фильтр 40 устанавливают на 50 мл пробирку. Промыть пробирку с 5-10 мл окрашивающего буфера, чтобы гарантировать, что все клетки были перенесены в новую пробирку. Хранить суспензии на льду, пока все животные не будут обработаны.
- Центрифуга в течение 15 мин при 300 мкг при 4 ° С. Тщательно аспирата супернатант, не нарушая гранул и ресуспендируют осадок в 5 мл окрашивающего буфера.
- Центрифуга в течение 5 мин 300 мкг при 4 ° С. Тщательно аспирата супернатант и ресуспендируют осадок клеток в 800 мкл буфера для окрашивания.
Примечание: объемы, указанные выше, достаточно для окрашивания клеток, полученных из двух взрослых мышей.
- Передача суспензии в предварительно меченных FACS труб.
- Для блоков управления труб, возьмите 25-50 мкл клеточной суспензии (или любого остаточного слева от клеточной суспензии) и составляют в общем объеме 300 мкл буфера для окрашивания.
Примечание: Подготовка контрольных трубок (общий объем 300 мкл) для неокрашенных (без антителнет и нет DAPI); только DAPI; Интегрин & beta; 1; ИНТЕГРИНОВ а6; Sca-1; CD34.
- Для блоков управления труб, возьмите 25-50 мкл клеточной суспензии (или любого остаточного слева от клеточной суспензии) и составляют в общем объеме 300 мкл буфера для окрашивания.
- Добавьте первичные антитела и DAPI (смотри таблицу Материалы для соответствующих разведений) в требуемых концентрациях в соответствующую пробирку. Аккуратно вылить пробирки для смешивания суспензии клеток. Возвращение на лед и накрыть алюминиевой фольгой для защиты от света.
- Инкубировать в течение 30 мин на льду и осторожно вылить в трубки через каждые 10 мин, чтобы обеспечить клетки удерживаются в суспензии.
- Вымойте клеток путем заполнения каждой пробирки FACS с окрашивающим буфером (приблизительно 4 мл на пробирку); центрифуге в течение 5 мин при 300 мкг при 4 ° С.
- Тщательно аспирата супернатант и ресуспендируют осадок клеток в 800 мкл буфера для окрашивания.
- Передача клеточной суспензии в FACS пробирку с крышками ячейки фильтра, чтобы обеспечить одноклеточной суспензии.
4. Анализ проточной цитометрией
- Перейдите к ячейке немедленно сортировки с использованием проточного цитометра с соответствующими фильтрами для Signaл обнаружения. Используйте 405 нм фиолетовый (для измерения DAPI), 488 нм (синий для измерения FSC, SSC, PE, PE-Cy7 и FITC) и 633 нм (красные лазеры для возбуждения APC)
Примечание: Убедитесь, что прибор находится в режиме записи от детекторов для всех трех флуоресцентных каналов. - Набор флуоресцентных ворота на основе неокрашенных образцов и компенсации спектрального перекрытия с использованием одиночных запятнанные управления.
Примечание: Используйте отдельные запятнанные средства управления для регулирования компенсации между каналами для того, чтобы устранить любое дублирование в флуоресцентных сигналов. Регулировка компенсации будет зависеть от сортировщика FACS используется. - Настройка первичные ворота, основанные на DAPI, чтобы исключить мертвые клетки.
- Отрегулируйте график рассеяния (SSC-A против FSC-A), чтобы выбрать для синглетных событий.
- Настройка FSC и SSC высоты и ширины параметров устранить для дублетов и дискриминационными для синглетных событий.
- Ворота клетки с высокой а6 и экспрессии & beta; 1 и из этой популяции клеток с затворов либо CD34 высокая экспрессия или высокая экспрессия СЦА1.
- Сортировка клеток в предварительно меченных FACS трубы.
Примечание: Два общих популяции клеток могут быть выделены; α6 + / β1 + / CD34 + / Sca-1 - и α6 + / β1 + / Sca-1 + / CD34 -. Отсортированные клетки должны храниться на льду во все времена, пока они не используются вниз по течению приложений, таких как культуры клеток или выделения РНК
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Этот протокол подробно описывает обогащение и выделение двух типов популяций:. Балджа SCs и кератиноцитов эпидермиса Рисунок 2 иллюстрирует основные этапы протокола. Использование кожи удаляется из спинного задней части 8-недельных мышей, мы обогатили выпирать SCs, используя CD34 маркер, который экспрессируется только в HFSCs; и ЗОБ-1, которая маркирует эпидермальные кератиноциты. На рисунке 3 показаны различные образцы CD34 и Sca-1 выражение в а6 +...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Протокол , описанный здесь , хорошо установлена для выделения HFSCs из кожи спины взрослых мышей , но может быть в равной степени применяется для выделения других групп населения в структуре ВЧ, на основе выбора маркеров 2,16,23,28,29. Этот метод особенно преимущественный по сравнению с другими методами выделения клеток, таких как диссоциация ткани, в которые могут быть выбраны и собирают из смеси популяций гетерогенных клеточных конкретный тип клеток. Кроме того, способ, описанный здесь, является быстрым и...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторам декларировать нечего
Благодарности
Эта работа была частично поддержана грантом NIH RO1GM60124 (для H.S.). H.S. является исследователем в Медицинском институте Говарда Хьюза. Y.F. поддерживается кафедрой карьерного роста Deloro и Немецко-израильским фондом (I-2381-412.13/2015). D.S. поддерживается стипендией Coleman-Cohen для постдокторантуры.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Изофлуран | Первичная интенсивная терапия | 66794-017-10 | |
| Углекислый газ- | - | ||
| Электробритва | Oster | В Golden A5 | Shaver от любой другой компании можно использовать |
| 70% этанол | Gadot Lab | 830000051 | 96% этанола, разведенного дистиллированной водой |
| Дискретальный коврик | Инструменты для рассечения от любого поставщика можно использовать | ||
| щипцы | Dumont | 11251-10 | Foreceps от любой другой компании можно использовать |
| Ножницы | Dumont | 14094-11 | Ножницы любой другой фирмы можно использовать |
| Иглы/Булавки | - | ||
| -Скальпель | Альбион | 10 | Убедитесь, что скальпель имеет тупой конец |
| Чашка для культуры тканей 60 мм x 15 мм | Sigma-Aldrich | CLS430166 | |
| PBS-В | доме PBS без кальция и магния | ||
| 0,25% Трипсин/ЭДТА | Biological Industries | 03-050-1A | Трипсин, полученный от другой компании, может иметь другую активность, и продолжительность расщепления трипсина должна быть скорректирована соответствующим |
| Пипетки 10 мл | Sigma-Aldrich | Corning, 4488 | |
| Ice | - | -50 | |
| мл стерильные центрифужные пробирки | Minplast Ein-shemer | 35050-43 | |
| 70; m Клеточный фильтр | Fisher | 22362548 | |
| 40 & микро; m Сетчатый фильтр | Fisher | 22362549 | |
| Окрашивающий | |||
| Eppendorf 5804 R | 5805 000.017 | ||
| FACS пробирки с крышками сетчатого фильтра | Фалькон | ||
| Трубы FACS | Фалькон | ||
| Integrin β 1 | eBioscience | 25-0291 | 1:400 |
| Integrin α 6 | eBioscience | 15-0495 | 1:600 |
| Sca i | eBioscience | 11-5981 | 1:200 |
| CD34 | eBioscience | 9011-0349 | 1:300 |
| DAPI | Sigma-Aldrich | D9542 | 50 нг/мл |
| Dry Chelex | BioRad | 142-2842 | |
| Beaker | Пирекс-дистиллированный | ||
| H2O | - | - | |
| Stir bar | - | - | |
| NHCl | BioLab | 1903059 | |
| Фетальная бычья сыворотка (FBS) | Beit Haemek Biological Industries | 400718 | FBS, полученный от другой компании, можно использовать |
| стеклянную бутылку объемом 1 л | Ilmabor | Boro 3.3 | |
| Бутылочный фильтр | Autofil | 1102-RLS |
Ссылки
- Wagers, A. J., Weissman, I. L. Plasticity of adult stem cells. Cell. 116, 639-648 (2004).
- Blanpain, C., Lowry, W. E., Geoghegan, A., Polak, L., Fuchs, E. Self-renewal, multipotency, and the existence of two cell populations within an epithelial stem cell niche. Cell. 118, 635-648 (2004).
- Fuchs, E. Scratching the surface of skin development. Nature. 445, 834-842 (2007).
- Hsu, Y. C., Fuchs, E. A family business: stem cell progeny join the niche to regulate homeostasis. Nat Rev Mol Cell Biol. 13, 103-114 (2012).
- Blanpain, C., Fuchs, E. Epidermal homeostasis: a balancing act of stem cells in the skin. Nat Rev Mol Cell Biol. 10, 207-217 (2009).
- Alonso, L., Fuchs, E. The hair cycle. J Cell Sci. 119, 391-393 (2006).
- Muller-Rover, S., et al. A comprehensive guide for the accurate classification of murine hair follicles in distinct hair cycle stages. J Invest Dermatol. 117, 3-15 (2001).
- Zhang, Y. V., Cheong, J., Ciapurin, N., McDermitt, D. J., Tumbar, T. Distinct self-renewal and differentiation phases in the niche of infrequently dividing hair follicle stem cells. Cell Stem Cell. 5, 267-278 (2009).
- Ito, M., et al. Stem cells in the hair follicle bulge contribute to wound repair but not to homeostasis of the epidermis. Nat Med. 11, 1351-1354 (2005).
- Hsu, Y. C., Pasolli, H. A., Fuchs, E. Dynamics between stem cells, niche, and progeny in the hair follicle. Cell. 144, 92-105 (2011).
- Fuchs, E. The tortoise and the hair: slow-cycling cells in the stem cell race. Cell. 137, 811-819 (2009).
- Plikus, M. V., Chuong, C. M. Complex hair cycle domain patterns and regenerative hair waves in living rodents. J Invest Dermatol. 128, 1071-1080 (2008).
- Ito, M., Kizawa, K., Hamada, K., Cotsarelis, G. Hair follicle stem cells in the lower bulge form the secondary germ, a biochemically distinct but functionally equivalent progenitor cell population, at the termination of catagen. Differentiation. 72, 548-557 (2004).
- Cotsarelis, G., Sun, T. T., Lavker, R. M. Label-retaining cells reside in the bulge area of pilosebaceous unit: implications for follicular stem cells, hair cycle, and skin carcinogenesis. Cell. 61, 1329-1337 (1990).
- Cotsarelis, G. Epithelial stem cells: a folliculocentric view. J Invest Dermatol. 126, 1459-1468 (2006).
- Trempus, C. S., et al. Enrichment for living murine keratinocytes from the hair follicle bulge with the cell surface marker CD34. J Invest Dermatol. 120, 501-511 (2003).
- Morris, R. J., et al. Capturing and profiling adult hair follicle stem cells. Nat Biotechnol. 22, 411-417 (2004).
- Lyle, S., et al. The C8/144B monoclonal antibody recognizes cytokeratin 15 and defines the location of human hair follicle stem cells. J Cell Sci. 111 (Pt 21), 3179-3188 (1998).
- Liu, Y., Lyle, S., Yang, Z., Cotsarelis, G. Keratin 15 promoter targets putative epithelial stem cells in the hair follicle bulge. J Invest Dermatol. 121, 963-968 (2003).
- Vidal, V. P., et al. Sox9 is essential for outer root sheath differentiation and the formation of the hair stem cell compartment. Curr Biol. 15, 1340-1351 (2005).
- Snippert, H. J., et al. Lgr6 marks stem cells in the hair follicle that generate all cell lineages of the skin. Science. 327, 1385-1389 (2010).
- Nijhof, J. G., et al. The cell-surface marker MTS24 identifies a novel population of follicular keratinocytes with characteristics of progenitor cells. Development. 133, 3027-3037 (2006).
- Jensen, U. B., et al. A distinct population of clonogenic and multipotent murine follicular keratinocytes residing in the upper isthmus. J Cell Sci. 121, 609-617 (2008).
- Jensen, K. B., et al. Lrig1 expression defines a distinct multipotent stem cell population in mammalian epidermis. Cell Stem Cell. 4, 427-439 (2009).
- Jaks, V., et al. Lgr5 marks cycling, yet long-lived, hair follicle stem cells. Nat Genet. 40, 1291-1299 (2008).
- Horsley, V., et al. Blimp1 defines a progenitor population that governs cellular input to the sebaceous gland. Cell. 126, 597-609 (2006).
- Goldstein, J., Horsley, V. Home sweet home: skin stem cell niches. Cell Mol Life Sci. 69, 2573-2582 (2012).
- Fuchs, Y., et al. Sept4/ARTS regulates stem cell apoptosis and skin regeneration. Science. 341, 286-289 (2013).
- Nowak, J. A., Fuchs, E. Isolation and culture of epithelial stem cells. Methods Mol Biol. 482, 215-232 (2009).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
