Оогенез дрозофилы продолжает оставаться исключительно полезным в изучении митохондриальной пролиферации и наследования. В данной рукописи подробно описан протокол, используемый для мечения реплицирующейся митохондриальной ДНК (мтДНК) в яичниках взрослых особей дрозофилы 5-этинил-2'-дезоксиуридином (EdU), что облегчает раскрытие механизмов, связанных с митохондриальным наследованием, которые ранее были предметом споров.
Методическая статья
В Ситу маркировки репликации митохондриальной ДНК в Drosophila взрослых яичников с помощью EDU Окрашивание
В этой статье
Краткое содержание
Аннотация
Митохондриальный геном наследуется исключительно по материнской линии. Понимание того, как митохондрия и ее геном пролиферируют и передаются от одного поколения к другому через женскую ооциту, имеет фундаментальное значение. Благодаря своей генетической податливости и элегантной, упорядоченной простоте, с помощью которой протекает развитие ооцитов, оогенез дрозофилы стал бесценной системой для изучения митохондрий. Метод мечения EdU (5-этинил-2'-дезоксиуридин) был использован для обнаружения репликации митохондриальной ДНК (мтДНК) в яичниках дрозофилы. Этот метод превосходит метод мечения BrdU (5-бром-2'-дезоксиуридин) в том, что он обеспечивает хорошую структурную сохранность и эффективное проникновение флуоресцентного красителя в целые ткани.
Здесь мы описываем подробный протокол маркировки репликации митохондриальной ДНК в яичниках взрослых дрозофил с помощью EdU. Предлагаются некоторые технические решения для улучшения жизнеспособности яичников, поддержания их здоровья во время подготовки, обеспечения качественной визуализации. Визуализация вновь синтезированной мтДНК в яичниках не только выявляет поразительную временную и пространственную закономерность репликации мтДНК в процессе оогенеза, но и позволяет провести простую количественную оценку репликации мтДНК при различных генетических и фармакологических возмущениях.
Введение
К тому же ядерный геном, каждый эукариотические клетки также содержит тысячи копий круговым ДНК в митохондриях. В то время как митохондриальной ДНК (мтДНК) кодирует существенные субъединиц цепи переноса электронов, большинство митохондриальной протеомом, включая все факторы для репликации и транскрипции мтДНК кодируются ядерным геномом. В отличие от ядерного генома, который следует Менделевские законы наследования, животное митохондриальный геном наследуется исключительно по материнской линии. Таким образом, понимание того, как мтДНК и распространение передается от одного поколения к другому по женской яйцеклетки является принципиально важным. Тем не менее, есть продолжаются дебаты о том, как репликация мтДНК регулируется в женском зародышевой. Кроме того, широкое признание мтДНК теория узким местом для передачи мтДНК свидетельствует о том, что население мтДНК в примордиальных зародышевых клеток к половинной дискретизации относительно небольшого числа Дуринг развитие 1 2. Это также означает, что репликация мтДНК во времени и пространстве регулируется во время оогенеза. Таким образом, на месте обнаружения репликации мтДНК во время зародышевого развития будет способствовать пониманию механизма наследования мтДНК.
Drosophila оогенез обеспечивает генетически послушный систему для изучения репликации мтДНК и передачи. В каждом из двух яичников у Drosophila, есть 16-20 независимые струны яйцевых камер называемые овариол 3, которые являются функциональными единицами производства яиц (см рисунок 1А). Каждая яйцевая трубка содержит прогрессивную линейную организацию оогенезе, где передний конец состоит из структуры под названием гермарии. Гермарии делится на четыре области, которые содержат зародышевые клетки на различных стадиях развития. В области 1, зародышевые стволовые клетки проходят через асимметричного деления для получения клеток, известных как дочерние Cystoblasts. Область 2a содержит cystoblasts, которые завершили свое окончательное разделение. Cystoblasts пройти четыре раунда группы разделения производства 16-клеток. Эти 16 клетки остаются соединенными друг с другом с помощью цитоплазматических мостиков называемые кольцевые каналы. Только одна из ячеек берет на себя обязательство дифференциации в качестве ооцитов, в то время как другие 15 развиваются как полиплоидных трофоцитов. Существенной цитоплазматический структура, известная как fusome, предлагается , чтобы облегчить с образованием кольцевых каналов, определить полярность и кист медсестре клеток-ооцит взаимодействий 4,5. По мере того как цисты двигаться в направлении области 2b, киста структуры охватывают всю ширину гермарии, и стать в большей степени связаны с фолликула клетками. В гермарии структуры заканчиваются областью 3, содержащий первый многообещающий яйцевой камеры. Впоследствии яичные камеры собираются на заднем конце гермарии, который прогрессировать через яйцевая трубка в 14 морфологически различных этапах. Рост ооцита зависит от питающих клеток, ВГICH транспортных белков, мРНК и эндомембранную структуры (например, Гольджи) через кольцевые каналы в яйцеклетку. Во время Drosophila оогенезе, было обнаружено , что доля митохондрий в пределах каждого 16-клеток цисты были связаны с fusome, перемещаемых через кольцевые каналы , и были доставлены в единый ооцита в большой массе под названием Balbiani тело 6. Было предложено Это явление, чтобы внести свой вклад в контроль качества митохондриального наследования через женских яичников.
Обнаружение синтеза мтДНК опирается на включение меченых предшественников ДНК в клеточную ДНК. Традиционно, аналог нуклеозида тимидина 5-бром-2'-дезоксиуридина (BrdU) был использован для обозначения репликации мтДНК в клетках для культивирования тканей 7,8. Тем не менее, на основе антител маркировки BrdU демонстрирует несколько ограничений, особенно для окрашивания тканей целом монтажа. Одним из основных недостатков маркировки BrdU является то, что она требует денатурации ДНК подвергатьBrdU эпитоп, так что он может быть обнаружен с помощью анти-BrdU антителами. Образец должен быть обработан в жестких денатурирующих условиях , таких как химические вещества (например, хлористо - водородная кислота или смеси метанола и уксусной кислоты), тепло, или переваривание ДНКазой, которые могут нарушить структуру образца и усложняют следующей процедуры окрашивания 9, 10.
Здесь, альтернативный аналоговый тимидин 5-этинил-2'-деоксиуридин (EDU) используется для обозначения тиражирование митохондриальной ДНК у дрозофилы взрослых яичников. Этот метод быстрее и очень чувствительным. Edu легко включены в клеточную ДНК во время репликации ДНК. Следующее определение основано на "щелчок" реакции получают Cu (I) -catalyzed ковалентные реакции между концевым алкинов группой и люминесцентным азида 10. Поскольку реакция не требует денатурации образца, он обеспечивает хорошую структурную сохранность. Кроме того, размер красителеЗайд только 1/500 , что молекулы антитела 10, что позволяет быстро и эффективно проникновение тканей целом монтажа. Мы использовали этот метод для обнаружения репликации мтДНК в течение Drosophila оогенеза и обнаружили поразительную пространственную структуру в гермарии области Drosophila яичнике 11, которые приводят нас предложить репликации зависящих от мтДНК механизма селективного наследования. Мы представляем здесь подробный протокол о маркировке Edu репликации мтДНК в Drosophila яичников. Для того, чтобы продемонстрировать применение протокола, мы также тестировали репликацию мтДНК в мтДНК мутанта дрозофилы (мт: ИСП T300I) 11, а также с разнообразными лечения митохондриальных разобщителей, которые рассеивают митохондриальный мембранный потенциал и потенциально нарушают репликацию мтДНК.
Протокол
1. Сбор и тканей Вскрытие
- В каждом флаконе, содержащем сухие дрожжи, культура 10 взрослая самка летит с 10 мужчин в течение 2-3 дней.
Примечание: Поддержание сытых женского мух улучшит общее качество и выход яичник производства и облегчить рассечение. - Обезболить самка летит на двуокиси углерода (СО 2) полететь площадку.
- Под стереоскоп, поместите несколько капель среды RT (Drosophila среде Шнайдера с добавлением 10% эмбриональной телячьей сыворотки (FBS)) на секционном площадку. Провести все процедуры рассечение в среде, чтобы сохранить ткани живыми и здоровыми.
- Захватить откармливали самка летать с острыми мелкими щипцов носом в его нижней грудной клетке. Используйте другой набор щипцов, чтобы мягко буксира на крайнем заднем ходу, пока ткани в брюшной полости не подвергаются. Отделить два яичники из других тканей (например , кишок).
Примечание: Каждый яичник отображает непрозрачную структуру, Composed 16-20 приложенных овариол. - Для усиления проникновения реагентов, откройте яичники, потянув их друг от друга и передавая кончики пинцета между каждым яйцевая трубка пару раз. Держите овариол, связанные в яичнике, чтобы свести к минимуму потери тканей во время следующих процедур.
- Передача яичники сразу к 1,5 мл микроцентрифужных пробирку , содержащую 500 мкл среды Drosophila Шнайдера с добавлением 10% FBS.
- Повторите рассечение и собрать 10-15 яичники в каждой микроцентрифужных трубки.
2. Edu Этикетировочное
- Аспирируйте среды в каждой пробирке, и заменяют 500 мкл среды Drosophila Шнайдера с добавлением 10% FBS , содержащей 7 мкм aphidicolin.
Примечание: Aphidicolin используется , чтобы блокировать синтез ядерной ДНК путем ингибирования ДНК - полимеразы альфа , не затрагивая мтДНК репликацию 7, 12. Можно увеличить концентрацию aphidicolin к вверхдо 70 мкМ для достижения лучшего торможения. Исходный раствор 3-30 мМ aphidicolin в ДМСО могут храниться в темноте при -20 ° С в течение до 6 недель. - Чтобы сохранить яичники здоровыми, убедитесь, что они погружаются под решения при изменении среды. Используйте среду Drosophila Шнайдера с добавлением 10% FBS через шаг 2.6.
- Выдержите яичники в течение 3 ч при комнатной температуре на настольном коромысла с легким вращением.
- Для лечения наркомании, например, митохондриальный разобщитель карбонилцианид 4-трифторметокси фенилгидразона (FCCP), добавьте соответствующую концентрацию лекарственного средства (например, 10 мкМ FCCP) в среду после того, как 2 часа лечения aphidicolin. Продолжить инкубирование в течение еще 1 ч.
- Удалите среду, содержащую aphidicolin с или без лекарственного средства. Сполоснуть яичники со средней (aphidicolin не нужно) дважды.
- Добавляют 1 мл среды, содержащей 10 мкМ Edu и 7 мкМ aphidicolin и продолжают incubatinг при комнатной температуре в течение 2 часов. Хранить 10 мМ ОБР маточного раствора (в ДМСО) при -20 & deg; С.
- Удалите среду, содержащую Edu и aphidicolin. Промывают среду (не aphidicolin) дважды в течение 3 мин каждый.
3. Ткань Фиксация и пермеабилизирующего
- Готовят 4% раствор параформальдегидом в фосфатном буферном солевом растворе (PBS, рН 7,4).
Примечание: Мы использовали коммерчески доступный параформальдегида, хранящуюся в предварительно набрал ампулах. Открыть новую ампулу и разбавьте до 4% перед использованием.
ВНИМАНИЕ: Формальдегид токсичен; с ним следует обращаться в вытяжном шкафу с кожей и средства защиты глаз. - Закрепить яичники 4% параформальдегидом в течение 20 мин при комнатной температуре при осторожном вращении.
- Удалите закрепитель и промыть яичники дважды в 1 мл 3% БСА в PBS в течение 5 мин каждый раз.
- Для проницаемыми ткани, удалить промывочного раствора и прибавляют 1 мл 0,5% Тритон Х-100 в PBS. Инкубируют при комнатной температуре в течение 20 мин.
- Удалите раствор пермеабилизирующего и мыть два раза в 1 мл3% BSA в PBS.
4. Обнаружение EDU
Примечание: Edu обнаружения основан на "щелчок" химии, A Cu (I) -catalyzed [3 + 2] циклоприсоединения 13, который добавляет флуоресцентных азиды к терминалу алкиновой группе Edu и флуоресцентная молекула подвергается последующим детектированием. Так как Cu (I), которое легко окисляется до некаталитического Cu (II) видов, требуется , чтобы катализировать реакцию, рекомендуется уменьшить (II) , сульфат меди на месте , чтобы получить Cu (I). То есть, Cu (II), сульфат используется в присутствии восстановителя, такого как аскорбиновая кислота (далее "буферная добавка"), чтобы генерировать меди (I).
- Перед проведением эксперимента, подготовить рабочий раствор азида Alexa Fluor (Alexa Fluor 488 азид, Alexa Fluor 555 азид или другие, в зависимости от предпочтительного флуорофора, которые названы как "Краситель азид" далее), Эду реакционный буфер и буфер Edu добавка в соответствии с производителеминструкции.
- Развести азид красителя в 70 мкл ДМСО. Храните рабочий раствор при -20 ° С в течение до 1 года.
- Приготовьте свежий реакционного буфера Edu путем разбавления 10x Edu реакционного буфера деионизированной водой.
Примечание: После использования хранить все оставшиеся 1x раствор при температуре 4 ° С. 1x раствор стабилен в течение до 6 месяцев. - Делают 10x маточного раствора буферного добавки ОБР путем полного растворения порошка в 2 мл деионизованной воды.
Примечание: Этот раствор стабилен в течение до 1 года при -20 ° C. Если раствор развивается коричневый цвет, он деградирует и должен быть отброшен.
- Приготовьте коктейль реакции Эду каждый раз свежее, и использовать в течение 15 мин после приготовления. Для достижения воспроизводимых результатов, убедитесь, что компоненты реакции поддерживают при тех же соотношениях.
- Сделать свежий 1x ОБР буфер добавка раствора путем разбавления 10x маточного раствора (полученного на стадии 4.1.3) в соотношении 1:10 в деионизированной воде. Используйте эту функцию Sна способность по тот же день.
- Готовят 1 мл ОБР реакционного коктейля путем объединения следующих ингредиентов в порядке: 860 мкл 1x ОБР реакционного буфера, 40 мкл CuSO 4, азид краситель 2,5 мкл, 100 мкл 1х буфера ОБР присадку.
Примечание: Важно, что ингредиенты добавляют для того, чтобы обеспечить оптимальную производительность.
- Удалить PBS с 3% БСА и добавляют 0,5 мл реакционного коктейля ОБР в каждую пробирку. Инкубируют при комнатной температуре в течение 30 мин при осторожном вращении. Храните образцы в защищенном от света.
- Удалите реакционный коктейль ОБР и мыть один раз с 1 мл 3% БСА в PBS.
- Вымойте образцы один раз с 1 мл PBS.
5. Антитело Этикетировочное
Примечание: Выполните маркировку антител после Edu окрашивания. Если никакого дополнительного окрашивания не требуется, можно приступить к монтажу и визуализации непосредственно. Важно, что образцы быть защищены от света во всех следующих процедур.
- Удалить промывочного раствора. Блок яичники в 1 мл блокирующего раствора, содержащего 0,2% бычьего сывороточного альбумина и 0,1% Тритон Х-100 в PBS в течение 30 мин.
- Удалите блокирующий раствор и заменить первичным антителом , разведенным в блокирующем растворе (например, мыши АТФ - синтазы субъединицей альфа антителом, 1: 1000 разбавления). Инкубируют в темноте при 4 ° CO / N.
- Промыть образцы с 1 мл блокирующего раствора 3 раза, в течение 10 мин каждый раз. Для того, чтобы свести к минимуму фона, промыть еще два раза в течение 30 минут каждый. Удалите блокирующий раствор.
- Инкубируйте с вторичными антителами , разведенного в блокирующем растворе (например, козы к антигенам мыши Alexa Fluor 568 вторичное антитело, 1: 200 разбавление) в течение 2 ч при комнатной температуре.
Примечание: Используйте другой цвет, чем тот, в сочетании с Эду. - Повторите шаги стирки выполняется на этапе 5.3.
- Промыть 1 мл PBS один раз, чтобы удалить моющее средство.
6. Монтаж и обработка изображений
- Осторожно удалите все PBS и IMMediately покрывают яичники с 50 мкл монтажа среду (с или без DAPI).
Примечание: с помощью монтажного среду, которая не затвердевает в то время как овариол будут отделены друг от друга. Яичники могут храниться в монтажной среде при температуре 4 ° С в течение до недели. - Отрежьте конец наконечника пипетки и использовать его осторожно передавать яичники на предметное стекло микроскопа.
- Полностью отделите каждый яйцевая трубка с острыми мелкими щипцов носом под стереомикроскопа. Удалить соединительные ткани на заднем конце тела и на стадии 14 или зрелых яйцевых камер. Молодые камеры иц на переднем конце и прозрачным.
- Выравнивание яичные камеры с пинцетом так, чтобы они не перекрываются друг с другом.
- Медленно опустить # 1.5 покровного стекла поверх образцов. Дайте гистологическая среда полимеризоваться в течение нескольких часов при комнатной температуре. Печать с прозрачным лаком для ногтей.
- Изображение скользит на следующий день, или хранят при температуре 4 ° С перед изображениями.
- Визуализируйте под конфокальной миcroscope с целью масла погружения 63x. Захват трехмерных Z-стеки изображений.
Примечание: Существует сильная Edu сигнала в поздних стадиях яичные камеры и фоновой флуоресценции в эпителиальной оболочки. При рассмотрении маркировки EDU в той или иной гермарии, следует избегать germariums, которые перекрываются или близкие к другим тканям или поздних стадиях развития яйцевых камер.
Результаты
Вышеуказанный протокол позволяет визуализировать точечными структур , связанных с митохондрии (рис 1B-C), которые указывают на митохондриальной репликации ДНК во время Drosophila оогенезе. Edu Puncta локализованы с митохондриями , помеченных окрашиванием для АТФ - синтазы альфа - субъединицы (рис 2). Наблюдаемые сигналы отсутствовали в яичниках , обработанных этидиумбромидом 11, ингибитора для репликации мтДНК 14, проверки того, что эти Puncta действительно лейбл тиражирование mtDNA.Aphidicolin использовали для ингибирования окрашивания ядерной ДНК , не затрагивая мтДНК репликации (Рисунок 2). Без лечения aphidicolin, интенсивные сигналы Edu маркировать ядра, и мтДНК Puncta были едва обнаружены (рисунок 3). Тем не менее, в присутствии aphidicolin, ядерное включение было резко уменьшено, и наблюдалось множество Puncta, связанные с митохондриях.
Существует высокий уровень репликации мтДНК в пост-гермарии яйцевых камер (рис 1В). Тем не менее, в частности, репликации мтДНК отображается пространственный узор в гермарии. Как указано на количество Edu Puncta, существует умеренный уровень репликации мтДНК в регионе 1 гермарии, но почти не Edu включение в область 2А (рис 1C). По мере того как киста перемещается вниз к области 2B в гермарии, репликации мтДНК возобновляется , и количество ОБР Puncta в задней кистой области 2B была значительно выше , чем в области 2А (рис 1C). В частности, интенсивное Edu включение было сосредоточено вокруг кольцевых каналов и fusome структур, окрашивали по Ху Ли Тай Шао (HTS) белка. мтДНК продолжал тиражирование на высоком уровне в области 3 гермарии (фиг.1С)
Чтобы продемонстрировать ассоциацию specifIC генов или лечение с помощью пролиферации мтДНК, дрозофила яичники могут быть подвергнуты генных манипуляций или медикаментозного лечения. Мы обрабатывали яичники с различными концентрациями FCCP, классический митохондриальной протонофор, который рассеивает митохондриальный мембранный потенциал. В качестве контроля ДМСО не оказывает никакого влияния на репликации мтДНК (рис 4A). Высокие дозы FCCP (10 мкМ) практически истощены репликации мтДНК полностью по всей гермарии (рис 4D). Тем не менее, низкая концентрация FCCP (2 или 5 мкМ) имели незначительное воздействие на репликации мтДНК в области 1 , но ингибирует репликацию в регионах 2В и 3 (4В-С), что указывает регионы 2В и 3, более чувствительны к митохондриальной нарушению, или они поддерживают относительные медленнее кинетики репликации. Приведенные выше результаты показывают, что репликация мтДНК связана с митохондриальной активности. В частности, различные области гермарии по-разному реагировали на митохондрии импairment.
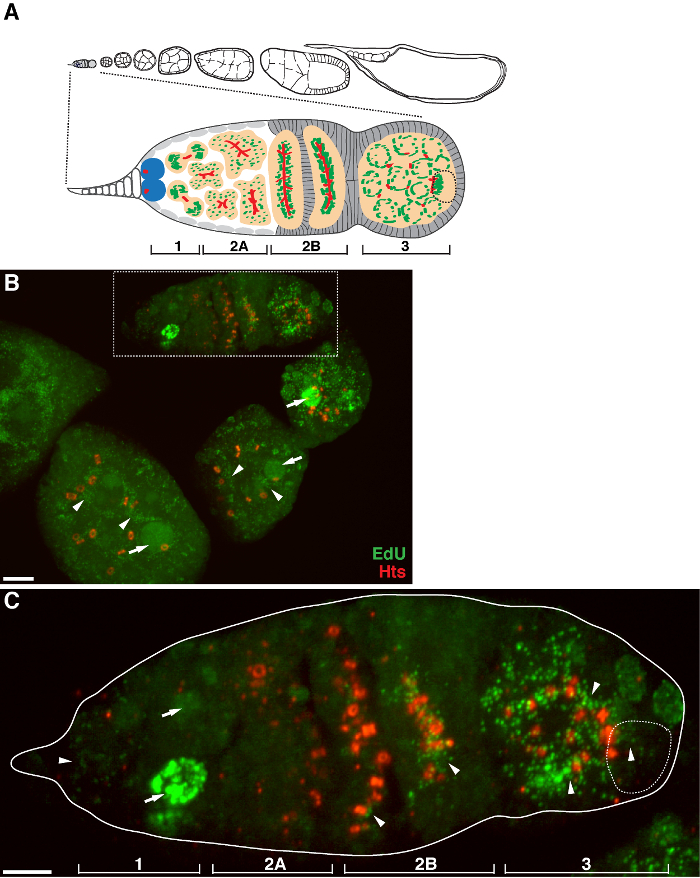
Рисунок 1. мтДНК репликации во время Drosophila оогенезе. (А) схема яйцевая трубка Drosophila и увеличенный вид гермарии. Яйцевая трубка иллюстрирует слева направо, спереди назад, последовательные стадии развития яйцевых камер. В гермарии, то fusome (красный), зародышевые стволовые клетки (синие), митохондрии (зеленый), будущий ооцитов (пунктирная линия, признанная позиционированием, структура fusome и митохондриальных кластеров), развивается кист (персик) и четыре области развития, показаны , (B) представитель г-стек проекция дикого типа яйцевая трубка , помеченной Edu и антителом против HTS-RC, маркер для кольцевых каналов и fusome. В присутствии aphidicolin, то Edu была включена в мтДНК (Arrowheads) и ядер (стрелки). Шкала бар, 10 мкм.(C) Увеличенный вид germaria , изложенных в штучной упаковке в регионе B. Четыре региона развития обозначены. Шкала бар, 5 мкм 11. Пожалуйста , нажмите здесь , чтобы посмотреть увеличенную версию этой фигуры.
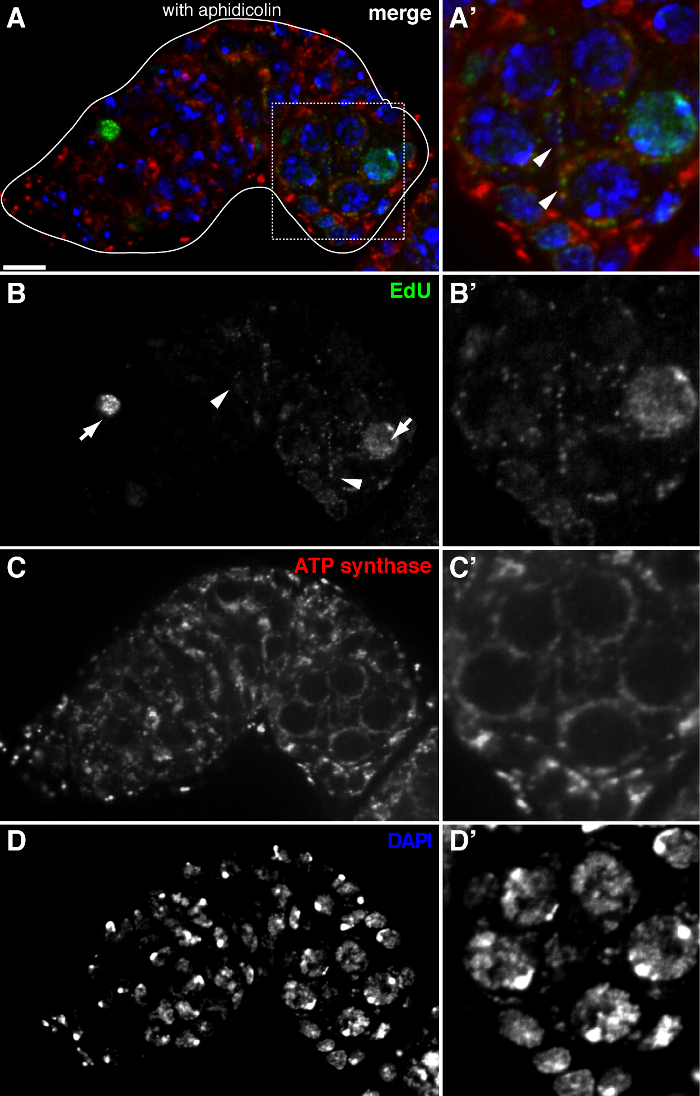
Рисунок 2. мтДНК репликации в гермарии Drosophila визуализировали с помощью EDU включения с лечением aphidicolin (A) -. (D) Представитель конфокальной сечение дикого типа гермарии показывая Edu включение (зеленый, б), митохондрии, отмеченный АТФ - синтазы альфа - субъединиц окрашивания (красный, с), и зародыши, метили DAPI окрашивания (синий, D) с предварительной инкубации с ДНК - полимераза ингибитором α-aphidicolin. (A &# 39 ;-D ') Увеличенное изображение коробочной области в (А) , показывающий Edu включение (B'), митохондрии (C ') и ядра (D'). При наличии aphidicolin, ядерное включение (стрелки) уменьшается, и многие Puncta были локализованы в митохондриях (наконечниками). Шкала баров, 10 мкм. Эта цифра была изменена с 11. Пожалуйста , нажмите здесь , чтобы посмотреть увеличенную версию этой фигуры.
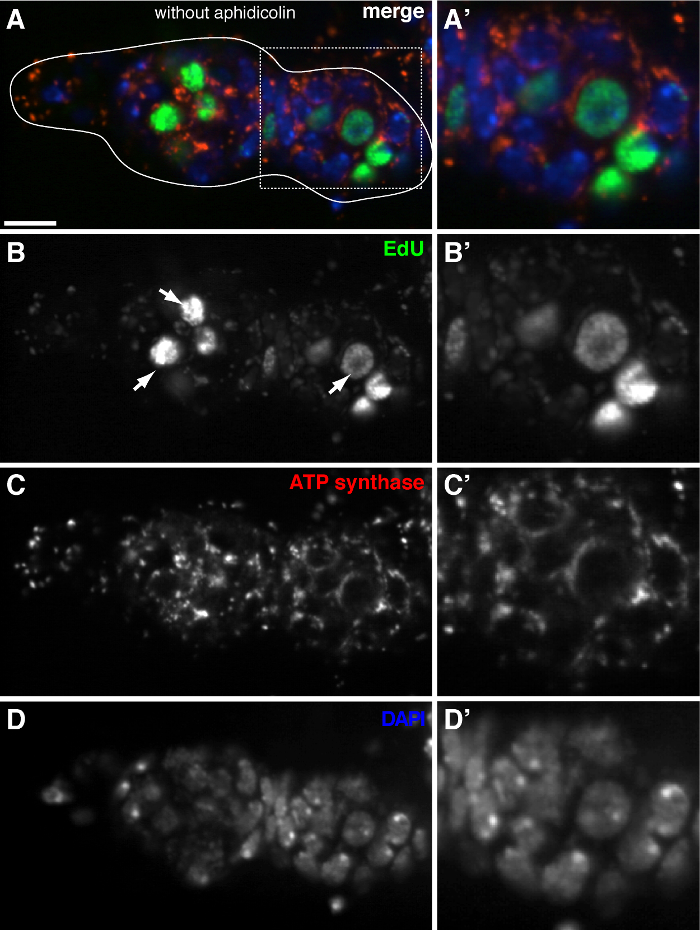
Рисунок 3. репликации мтДНК едва обнаруживается в гермарии Drosophila без лечения aphidicolin (А) -. (D) Представитель конфокальной сечение дикого типа гермарии показывая Edu включение (зеленый), митохондрии, отмеченныйАТФ-синтазы альфа-субъединицы окрашивание (красный), и ядра, маркируется с помощью DAPI окрашивания (синий) в отсутствие ДНК ингибитора полимеразы-α aphidicolin. (А'-D ') Увеличенное изображение коробочной области в (А) , показывающий Edu включение (B'), митохондрии (C ') и ядра (D'). Без aphidicolin, интенсивные сигналы Edu этикетки ядер (стрелки), и мтДНК Puncta были едва обнаружены. Шкала баров, 10 мкм. Эта цифра была изменена с 11. Пожалуйста , нажмите здесь , чтобы посмотреть увеличенную версию этой фигуры.
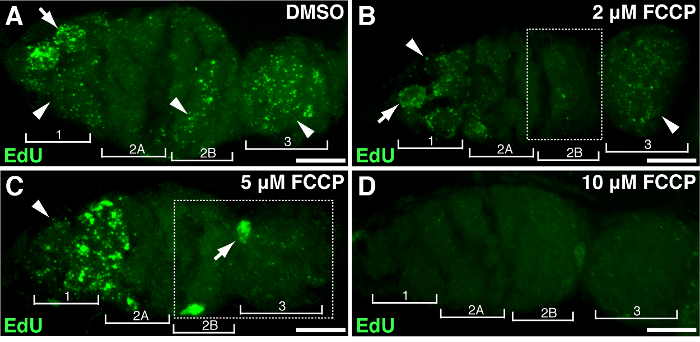
Рисунок 4. Митохондриальная разобщитель ухудшает репликации мтДНК. Представитель г-стек проекты , показывающие дикого типа гермарии обрабатывают ДМСО(А) или митохондриальный разобщитель FCCP при концентрации 2 мкМ (В), 5 мкМ (С), 10 мкМ (D) в течение ОБР регистрации. Обратите внимание на нарушенную маркировки EDU в области 2B обрабатывали 2 мкМ FCCP (B), и в обоих области 2B и 3 обрабатывали 5 мкМ FCCP (описаны в коробках). Четыре региона развития показаны. Стрелки, ядерная ДНК; наконечники стрел, мтДНК. Шкала бар, 10 мкм. Эта цифра была изменена с 11. Пожалуйста , нажмите здесь , чтобы посмотреть увеличенную версию этой фигуры.
Обсуждение
ОБР маркировка представляет собой новый и эффективный метод для обнаружения ДНК-синтез в пролиферирующих клетках, которая основана на включении и окрашивания аналогов нуклеозидов во вновь синтезированную ДНК. Этот метод превосходит метода BrdU маркировки в том, что она быстрее и очень чувствительным. Что еще более важно, это позволяет хорошей структурной сохранности и эффективного проникновения Edu-красителя в целом монтажа тканей 9, 10. Исторически сложилось так , как лучшей альтернативой для маркировки BrdU, маркировка EDU была использована для изучения репликации ядерной ДНК во время S-фазы в клеточный цикл. Aphidicolin является ингибитором ДНК - полимеразы альфа, которая является основным полимеразной для репликации ядерной ДНК в S-фазе 12 15. репликации мтДНК осуществляется ДНК-полимеразы у, которая нечувствительна к aphidicolin лечению. Следовательно, лечение с aphidicolin до и во время инкубации Edu значительно ингибирует Edu включение в ядерной ДНК. ДолжноСледует отметить, что aphidicolin могут быть стабильными в течение нескольких недель, если соответствующим образом сохранены, а эффективность aphidicolin в ингибирования репликации ядерной ДНК была различной в наших руках. В овариол или яичные камеры с сильной маркировки ядерной ДНК должны быть исключены из анализа дополнительных данных.
репликации мтДНК можно легко представить себе как Puncta в цитоплазме, которая также предоставляет простой способ количественной оценки уровня репликации мтДНК путем подсчета числа EDU Puncta, нормализованное к общему объему цитоплазмы. Программное обеспечение визуализации может быть применен для автоматической идентификации Edu Puncta в микроскопических изображений, что особенно полезно для вычислительных анализа больших массивов данных. Тем не менее, следует принимать меры предосторожности, так как неполное подавление репликации ядерной ДНК может привести к включению ОБР в разных локусах на хромосоме и отображения, как Puncta внутри ядра. Кроме того, в других случаях, интенсивность ОБР включению в Repliдой мтДНК может быть слабым, в то время как фон и шум может быть высоким. Поэтому следует тщательно определить отдельные параметры для автоматического анализа изображений. Кроме того, рекомендуется, что изображения должны быть исследованы с дрессированными глаза, чтобы убедиться, что надлежащее Edu Puncta идентифицированы.
Визуализация вновь синтезированной мтДНК во время Drosophila оогенезе дает возможность исследовать , как репликация мтДНК регулируется в физиологических или патологических состояний, путем проведения эксперимента у мух , подвергнутых различным фармакологическим или генетических возмущений. В предыдущем исследовании, Edu включение анализа проводили в мтДНК мутанта дрозофилы мт ИСП T300I 11. Кроме того, чтобы нарушить митохондриального мембранного потенциала, яичники обрабатывали различными концентрациями митохондриальной разобщитель FCCP или 2,4-динитрофенол (ДНФ) до ОБР включения. В зависимости от экспериментальных целейи характеристики наркотиков, различные методы могут быть приняты для эффективной доставки. Для взрослых мух, препараты могут быть представлены в виде паров (например, этанол и кокаин) 16,17 или лекарственные средства могут быть введены в брюшную полость, где он быстро распространяется по всему телу 18. Наиболее распространенной практикой является то, что наркотики добавляются в пищу мух или / фильтровальную бумагу лекарственной насыщенный сахарозы. Например, ингибитор сборку микротрубочек, колхицин, подавался на мух в течение 2-3 дней , прежде чем яичник рассечение 19. Следовательно, важно, чтобы оценить метод доставки лекарственных средств, и выбрать соответствующие концентрации.
Для того, чтобы обеспечить успешную съемку репликации мтДНК в Drosophila яичников, несколько важных шагов должны быть тщательно выполнены. В первую очередь, сохранение жизнеспособности и здоровья яичников во время вскрытия и Эду включения существенно (шаги 1 и 2). Drosophila среде Шнайдера с FBS необходимо прогреть до комнатной температурыперед использованием. Нужно свести к минимуму непосредственный контакт между яичных камерами и Препарационные инструментов или пипеток. Яичники должны быть погружены под решения все время, чтобы избежать обезвоживания. Неправильное обращение ткани легко может привести не упасть в обморок или нет флуоресцентные сигналы. На стадии монтажа ткани, овариол должны быть отделены друг от друга и разложенные на предметное стекло микроскопа. Убедитесь, что яичные камеры не укладываются друг на друга. Мы заметили, что яичные камеры вне стадии 14 отображается немного Edu включения. Кроме того, из-за большого размера, на поздней стадии яичные камеры часто вызывают соседние молодые яичные камеры, чтобы быть в фокусе. Таким образом, рекомендуется, чтобы поздней стадии яичные камеры будут отброшены.
Здесь мы предлагаем подробный протокол для маркировки тиражирование мтДНК в дрозофилы взрослых яичников. Этот метод позволяет простой количественной оценки репликации мтДНК в различных генетических и фармакологических возмущений,и будет полезен для рассечения механизмов, лежащих в основе с развитием митохондриальной биогенеза и наследование мтДНК.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
Мы благодарим К. Делани за комментарии к рукописи. Эта работа была поддержана Национальной программой Института сердца, легких и крови (NHLBI).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Шнайдер s Дрозофила среда | Invitrogen | 21720-024 | |
| FBS | Invitrogen | 10100-147 | |
| Пара щипцов Dumont #5 | Fine Science Tools | 11252-20 | |
| Афидиколин | Sigma | A0781 | Аликвота после растворения в ДМСО. Избегайте многократного размораживания и замораживания. Беречь от света. Можно использовать в течение 6 недель после растворения. |
| FCCP | Sigma | C2920 | |
| DMSO | Sigma | D2650 | |
| Параформальдегид, 16% ЭМ класса | Электронная микроскопия Sciences | 15710 | Формальдегид токсичен; его следует обрабатывать в вытяжном шкафу с защитой кожи и глаз. |
| PBS | KD Medical | RGF-3190 | |
| BSA | Sigma | A7030 | |
| Triton X-100 | Sigma | T9284 | |
| Click-iT EdU Alexa Fluor 488 Imaging Kit | Invitrogen | C10337 | EdU, CuSO4, азид Alexa Fluor 488, реакционный буфер EdU и буферная добавка Edu |
| в состав субъединицы и альфа-антитела АТФ-синтазы мыши, (15H4C4) | MitoSciences | Ab14748 | 1:1,000 разведение |
| Мышиное антитело Hts (клон RC) | Developmental Studies Hybridoma Bank (DSHB) | hts RC | 1:1,000 разведение |
| Goat anti-mouse Alexa Fluor 568 вторичное антитело | Invitrogen | A-11004 | 1:200 разведение |
| Vectashield монтажная среда с DAPI | Vector Laboratories | H-1500 | |
| Стеклянные покровные стекла, #1.5 22 мм x 22 мм | Fisher Scientific | 12-541-B | |
| Предметное стекло для микроскопа | Fisher Scientific | 22-038-103 | |
| Лак для ногтей | Elf | Многие пигменты, используемые в лаках для ногтей, являются флуоресцентными и выщелачиваются в образцы. Следует использовать только прозрачный лак для ногтей. |
Ссылки
- Taylor, R. W., Turnbull, D. M. Mitochondrial DNA mutations in human disease. Nat Rev Genet. 6 (5), 389-402 (2005).
- Wallace, D. C., Chalkia, D. Mitochondrial DNA genetics and the heteroplasmy conundrum in evolution and disease. Cold Spring Harb Perspect Biol. 5 (11), a021220(2013).
- Spradling, A. C. The development of Drosophila melanogaster. , Cold Spring Harbor Lab. Press. (1993).
- Riechmann, V., Ephrussi, A. Axis formation during Drosophila oogenesis. Curr Opin Genet Dev. 11 (4), 374-383 (2001).
- Lin, H., Yue, L., Spradling, A. C. The Drosophila fusome, a germline-specific organelle, contains membrane skeletal proteins and functions in cyst formation. Development. 120 (4), 947-956 (1994).
- Cox, R. T., Spradling, A. C. A Balbiani body and the fusome mediate mitochondrial inheritance during Drosophila oogenesis. Development. 130 (8), 1579-1590 (2003).
- Davis, A. F., Clayton, D. A. In situ localization of mitochondrial DNA replication in intact mammalian cells. J Cell Biol. 135 (4), 883-893 (1996).
- Iborra, F. J., Kimura, H., Cook, P. R. The functional organization of mitochondrial genomes in human cells. BMC Biol. 2, (2004).
- Rakic, P. Neurogenesis in adult primate neocortex: an evaluation of the evidence. Nat Rev Neurosci. 3 (1), 65-71 (2002).
- Salic, A., Mitchison, T. J. A chemical method for fast and sensitive detection of DNA synthesis in vivo. Proc Natl Acad Sci U S A. 105 (7), 2415-2420 (2008).
- Hill, J. H., Chen, Z., Xu, H. Selective propagation of functional mitochondrial DNA during oogenesis restricts the transmission of a deleterious mitochondrial variant. Nat Genet. 46 (4), 389-392 (2014).
- Lentz, S. I., et al. Mitochondrial DNA (mtDNA) Biogenesis: Visualization and Duel Incorporation of BrdU and EdU Into Newly Synthesized mtDNA In Vitro. Journal of Histochemistry & Cytochemistry. 58 (2), 207-218 (2010).
- Tornoe, C. W., Christensen, C., Meldal, M. Peptidotriazoles on solid phase: [1,2,3]-triazoles by regiospecific copper(i)-catalyzed 1,3-dipolar cycloadditions of terminal alkynes to azides. J Org Chem. 67 (9), 3057-3064 (2002).
- Horwitz, H. B., Holt, C. E. Specific inhibition by ethidium bromide of mitochondrial DNA synthesis in physarum polycephalum. J. Cell Biol. 49, 546-553 (1971).
- Huberman, J. A. New views of the biochemistry of eucaryotic DNA replication revealed by aphidicolin, an unusual inhibitor of DNA polymerase alpha. Cell. 23 (3), 647-648 (1981).
- McClung, C., Hirsh, J. Stereotypic behavioral responses to free-base cocaine and the development of behavioral sensitization in Drosophila. Curr Biol. 8 (2), 109-112 (1998).
- Moore, M. S., et al. Ethanol intoxication in Drosophila: Genetic and pharmacological evidence for regulation by the cAMP signaling pathway. Cell. 93 (6), 997-1007 (1998).
- Dzitoyeva, S., Dimitrijevic, N., Manev, H. Gamma-aminobutyric acid B receptor 1 mediates behavior-impairing actions of alcohol in Drosophila: adult RNA interference and pharmacological evidence. Proc Natl Acad Sci U S A. 100 (9), 5485-5490 (2003).
- Koch, E. A., Spitzer, R. H. Multiple effects of colchicine on oogenesis in Drosophila: induced sterility and switch of potential oocyte to nurse-cell developmental pathway. Cell Tissue Res. 228 (1), 21-32 (1983).
Перепечатки и разрешения
