Здесь мы опишем технику, которая сочетает в себе transposon мутагенеза с высокой пропускной способностью последовательности для идентификации и количественной оценки transposon leptospiral мутантов в тканях после вызова хомяков. Этот протокол может использоваться для экрана мутантов для выживания и распространения в животных и могут также применяться к в vitro исследования.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Высок объём параллельного секвенирования для измерения фитнес Лептоспире interrogans Transposon вставки мутантов во время Золотой сирийского хомяка инфекции
В этой статье
Краткое содержание
Аннотация
В этой рукописи мы описываем transposon виртуализации (Tn-Seq) техника для идентификации и количественной оценки Лептоспире interrogans мутантов, изменены в фитнес во время инфекции Золотой сирийских хомяков. TN-Seq сочетает в себе случайных transposon мутагенеза с силой высокопроизводительного секвенирования технологии. Животных сталкиваются с бассейном transposon мутантов (ввода бассейн), следуют заготовки крови и тканей через несколько дней позже определить и подсчитать количество мутантов в каждом органе (вывода бассейны). Бассейны вывода по сравнению с ввода бассейна оценить фитнес в естественных условиях каждого мутант. Этот подход позволяет скрининг большого пула мутантов в ограниченное количество животных. С незначительными изменениями этот протокол может выполняться с любого животного модель лептоспироза, водохранилище принимающей таких крыс и острой инфекции модели таких хомячков, а также в vitro исследования. TN-Seq обеспечивает мощный инструмент для экрана для мутантов с дефектами фитнес в vivo и in vitro .
Введение
Идентификация генов вирулентности для некоторых бактерий, таких как Leptospira spp., затруднено из-за ограниченного числа генетических инструментов, доступных. Один из часто используемых подходов является создание коллекции мутантов, случайных transposon мутагенеза, следуют идентификации включение сайта в каждом мутант и вирулентности тестирование отдельных transposon мутантов в животной модели. Этот подход является длительным, дорогостоящим и требует большое количество животных.
При случайных мутагенеза была впервые разработана для патогена Лептоспире interrogans, генов, участвующих в вирулентности были определены путем тестирования отдельных мутантов в животной модели1. Мутанты были отобраны на основе таких критериев, как их потенциальной роли в сигнализации подвижности или их предсказал внешней мембраны или поверхности местоположение. Как и большинство leptospiral гены кодируют гипотетических белки неизвестной функции2, выбрав мутантов основанный на эти критерии ограничения возможность обнаружения генов вирулентности Роман leptospiral.
Совсем недавно бассейны л interrogans transposon мутантов были экранированы для инфективности в хомяк и мыши модели3. Каждое животное было оспорено с бассейном до 10 мутантов. Инфективности мутант был забит как положительным, если он был обнаружен методом ПЦР культур, полученных из крови и почек. PCR тестирования был трудоемким, потому что он требует индивидуальной реакции PCR для каждого мутант в бассейне. Потому что частота каждого мутант в культурах количественно не оценивалась, подход был предвзято к идентификации весьма ослабленный мутантов.
Мы описываем transposon виртуализации (Tn-Seq) технику, как стратегия более эффективно экран для генов вирулентности. TN-seq состоит из создания библиотеки мутантов transposon мутагенеза, следуют массивной параллельной последовательности4,5,6. Кратко transposon мутантов пуле, привитых животных и впоследствии оправился от различных органов (вывода бассейны). ДНК из пулов вывода извлечены и переваривается с энзимами ограничения или стриженый sonication. Два раунда ПЦР ориентации развязок transposon вставки сайтов выполняются. Этот шаг позволяет адаптеров, необходимые для последовательности. Результате продукты PCR анализируются высокопроизводительного секвенирования для выявления transposon вставки сайт каждого мутант бассейна наряду с их относительного изобилия, который сравнивается с первоначальный состав пула мутант.
Основным преимуществом этого подхода является возможность одновременно экран большое количество мутантов с небольшое количество животных. TN-Seq не требует предварительных знаний о transposon вставки сайты, что увеличивает шансы выявления новых Leptospira-специфических генов, участвующих в вирулентности с меньше времени и повышения эффективности. Поскольку бремя leptospiral в тканях является относительно высоким в грызун модели восприимчивы к смертельной инфекции (обычно 104 108 бактерий/g ткани)7,8,9 , также как и хозяева водохранилище 10,11, тканей могут быть проанализированы непосредственно, без необходимости культуры, снижения отклонений вследствие роста в пробирке .
В большинство бактериальных патогенов, описанные на сегодняшний день исследований, Tn-Seq высокая частота инсерционному мутагенезу допускается инфекции с большими бассейнами, содержащие мутантов вместе с нескольких близко расположенных transposon вставок в каждый ген4 ,12,,1314. TN-Seq была также разработана для бактерий, для которого мутагенеза частота является намного ниже6. С Leptospiraбиблиотека transposon мутантов могут создаваться путем введения transposon на мобилизационный плазмиды путем конъюгации, как описано в Slamti et al15. Однако частота transposon мутагенеза л interrogans является низким. Когда Himar1 transposon была введена на сопряженных плазмида, частота transconjugant сообщается только 8,5 x 10⁻⁸ для каждого получателя ячейки с Лай штамм L. interrogans16 и, вероятно, будет Аналогичным образом бедных с большинства других штаммов L. interrogans. В части, на основе, которая разработана для Borrelia burgdorferi, в котором частота transposon инсерционному мутагенезу является также низкая6протокол, описанных здесь.
Для нашего эксперимента с протоколом17мы провели transposon мутагенеза с л interrogans серовар штамм Manilae L495 из-за успеха других групп в Изолирующие вставки мутантов transposon в штамм наряду с его низкой LD50 (летальная доза) для вирулентности1. Мы экранированный 42 мутантов, Tn-Seq и определили несколько мутантов кандидатов дефектных в вирулентности, включая два с вставками в гене Аденилатциклаза кандидата. Индивидуальные испытания двух мутантов в хомяков подтвердил, что они являются несовершенными в вирулентности17.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Предупреждение: Патогенные штаммы Leptospira spp. должны быть обработаны согласно процедурам включения 2-го уровня биобезопасности (BSL-2). Необходимо носить соответствующие средства индивидуальной защиты (СИЗ). Класс II биобезопасности кабинета должны использоваться для всех манипуляций патогенных Leptospira spp.
1. Создание Transposon мутант библиотеки15
-
Перевод transposon в spp Лептоспире . путем конъюгации (Рисунок 1)
- Прививать тома экспоненциальной фазе культуры патогенного Leptospira spp., соответствующий 107 клеток в 10 мл Ellinghausen-Маккалоу-Джонсон-Харрис среднего (EMJH)18,19. Инкубируйте на 30 ° C с 150 об/мин, тряски до тех пор, пока плотность достигает 2-8 x 10⁸ клеток/мл.
Примечание: Время удвоения патогенных leptospires является 12-24 ч, в зависимости от штамма. - Прививать 50 мкл доноров штамм кишечной палочки β216320 , перевозящих мобилизационный transposon плазмиды (pCjTKS2)16 в 5 мл Лурия бульон (LB), дополнены 0,3 мм 2,6-diaminopimelicacid (DAP), 50 мкг/мл канамицин (км) и 50 мкг/мл спектиномицин (Spc) и место на ночь в инкубатора 37 ° C на 255 об/мин.
- Прививать 60 мкл клеток кишечной палочки в 3 мл EMJH, дополненный 0,3 мм DAP (EMJH + DAP). Инкубируйте при 37 ° C на 255 об/мин агитации за 3-4 ч до600nm≈ OD 0.3.
- Для сборки фильтрующего блока (рис. 1), поместите основание на стороне 125 мл-рука колбу Эрленмейера, позиция фильтр ацетат целлюлозы (размер пор 0,1 мм; диаметр 25 мм) на базе и зажим воронку на базу. Подключите блок фильтрации к вакуумной системой.
- Добавьте 5 мл LeptospiraСПП. Культура и 0,5 мл культуры е. coli в воронку. Пылесосом жидкости через фильтр.
- Передача фильтр с поверхности бактерий вверх на EMJH + DAPplate. Инкубируйте на 30 ° C ночь с фильтром, обращенной вверх.
- Установите фильтр в 15 мл трубку, содержащие 1 мл EMJH и вихревые для 10 s выпустить бактерий в средствах массовой информации. Распространение 200 мкл суспензии на 5 EMJH platescontaining 50 мкг/мл км с использованием 10-15 1 мм стерильные стеклянные бусы или стерильные одноразовые разбрасывателя. Оберните пластины с парафина и инкубировать их вниз головой в 30 ° C для 3-4 недели до колоний видны.
- Перевести колонии индивидуально в 3 мл EMJH, содержащих 50 мкг/мл (EMJH + км) при 30° C под 150 об/мин агитации за 7-10 дней до тех пор, пока культура достигает плотность ≈10/8мл.
Примечание: Культур может храниться при температуре-80 ° C или в жидком азоте (с 4% глицерина).
- Прививать тома экспоненциальной фазе культуры патогенного Leptospira spp., соответствующий 107 клеток в 10 мл Ellinghausen-Маккалоу-Джонсон-Харрис среднего (EMJH)18,19. Инкубируйте на 30 ° C с 150 об/мин, тряски до тех пор, пока плотность достигает 2-8 x 10⁸ клеток/мл.
-
Идентификация сайта вставки transposon вложенных ПЦР (Рисунок 2)
- Лизируйте 50 мкл каждого transposon мутант в пробирках, ПЦР по инкубации на 95 ° C в течение 15 мин.
Примечание: ДНК могут быть очищены, с помощью комплекта экстракции ДНК. - Подготовьте смесь ПЦР с Deg1 и Tnk1 грунты (Таблица 3) согласно таблице 1. Передача 23.7 мкл смеси в каждую ПЦР-пробирку и 1.3 мкл лизированных клетках. Запустить программу: 95° C за 5 мин; 40 циклов: 95 ° C 15 s, 40 ° C за 1 мин., 72 ° C на 2 мин; 72 ° C для 10 мин.
- Сделайте смесь ПЦР с тегом и TnkN1 грунты (Таблица 3) согласно таблице 2. Передача 24.2 мкл смеси в каждую ПЦР-пробирку и 0,8 мкл реакции PCR #1. Запустить программу: 95 ° C за 5 мин; 35 циклов: 95 ° C 15 s, 55 ° C за 30 s, 72 ° C на 2 мин; 72 ° C для 10 мин.
- Запуск 3 мкл продуктов ПЦР на геле агарозы 1% с 1 X трис-ацетат-ЭДТА (ТЭ) буфера на 10-15 V/см (рис. 2B).
- Очищайте продукты PCR положительных образцов, используя комплект для очистки ПЦР. Элюировать ДНК с низким объемом комплект разрешено максимальной концентрации ДНК выздоровел.
- Отправьте очищенных продуктов ПЦР для Сэнгер виртуализации с помощью TnkN1 грунт (Таблица 3).
- Определите места вставки путем сравнения результирующая последовательность с родительский сорт генома BLASTN анализа (http://blast.ncbi.nlm.nih.gov/) или с помощью базы данных (http://www.genoscope.cns.fr/agc/mage) SpiroScope21.
- Подтвердите включение сайта transposon методом ПЦР с праймерами, отжиг Фланкируя последовательности узлов.
Примечание: Transposon увеличивает размер одичал тип последовательности на ≈ 2 КБ.
- Лизируйте 50 мкл каждого transposon мутант в пробирках, ПЦР по инкубации на 95 ° C в течение 15 мин.
2. животных эксперимент (рис. 3)
-
Культура Leptospira мутантов
- Растут индивидуально каждой выбранной transposon мутант в 10 мл EMJH + км при 30 ° C на 150 об/мин агитации плотность 107-108 leptospires/мл.
- Граф leptospires, Микроскопия темного поля с Petroff-Хауссер счетчиком или как описано Миллер23.
- Разбавьте каждой культуры в EMJH же плотности, например 106 клеток/мл.
- Чтобы собрать входные бассейн, смешайте разреженных культур в равных объемах.
Примечание: Включить элементы управления в бассейне ввода путем добавления мутантов с известными фитнес такие дефекты, как loa2217,24 и мутанты с неизменным фитнес например ligB17,25, соответственно. Бассейны мутанты могут храниться с глицерина 4% при температуре-80 ° C или в жидком азоте.
-
Вызов
Примечание: Методы, описанные здесь были утверждены ветеранов дел более Лос-Анджелес институциональных животное уход и использование Комитетом (протокол #09018-14).- Придать внутрибрюшинно 1 мл ввода пула для каждого животного с инсулина шприц U-100 с 26G x ½" иглы.
Примечание: В эксперимент, 8 животных были оспорены с 1 мл ввода пула, т.е., 106 бактерий всего17. Инфекция было разрешено продолжать следовать за 4 дня до эвтаназии. - Собирать 10 мл ввода бассейна и спина на 20 мин в 3220 x g. тщательно удалить супернатант не нарушая гранулы. Храните клетки гранул на - 80˚с до использования (шаг 3.1.3).
- Мониторинг животных ежедневно до тех пор, пока они завершаются в заранее определенной конечной точке. Весят хомяков ежедневно и искать критерии конечной точки: потеря аппетита, походка или дыхание трудности, прострация, трепал мех, или > 10% достигли максимального веса.
- Придать внутрибрюшинно 1 мл ввода пула для каждого животного с инсулина шприц U-100 с 26G x ½" иглы.
-
В vitro эксперимент
- В день задача прививать 3 флаконы по 25 мл EMJH + км с 5 мл ввода бассейна. Расти культур при 30 ° C при агитации 150 об/мин.
- Граф leptospires ежедневно с помощью одного из методов раздел 2.1.2. При плотности достигает ≈ 1 x 10⁻⁸/мл, спина вниз каждый подвеска для 20 минут, 3220 x g.
- Храните клетки окатышей на-80 ° C до использования.
-
Заготовка и хранение тканей
- Усыпить животных при вдыхании изофлюрановая последовали двусторонние торакотомия26.
- Немедленно собирайте 1-2 мл крови, сердца пункция с 3 мл шприца и иглы 25 g x 5/8". Передача крови в пробирку, содержащую ЭДТА. Смешайте инверсии, 5-6 раз.
- Соберите одной почки и ⅓ ½ брюшной средний лепесток печени в cryotubes.
- Магазин тканей при температуре-80 ° C до использования.
3. Строительство геномные библиотеки для высокопроизводительного секвенирования (рис. 4)
-
Экстракции ДНК
- Экстракции ДНК из крови.
- Передавать 100 мкл крови от ЭДТА трубы пробки microcentrifuge.
- Очищают с помощью комплекта экстракции ДНК ДНК. Следуйте инструкциям производителя.
- Экстракции ДНК из тканей.
- С помощью скальпеля и ножницы, кости от 50 до 80 мг каждого органа на мелкие кусочки (1 мм x 1 мм) и передачи их в трубку сухой стерильной колпачок. Измерьте Вес ткани с точностью баланса.
- Добавьте 500 мкл стерильных PBS в трубу.
- Однородности выборок с помощью disruptor за 1 мин на 5 движений в секунду.
- Вычислите объем, соответствующий 25 мг тканей, используя следующее уравнение:
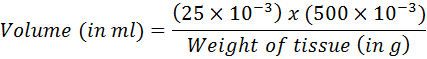
- Перевести вычислительного объема в комплект экстракции ДНК. Продолжите с ДНК очистки следуя инструкциям производителя.
- Экстракции ДНК от ввода бассейн и в пробирке культур.
- Оттепель бактериальных гранул при комнатной температуре 5-10 мин.
- Приступайте после инструкции, сопровождающих комплект экстракции ДНК.
- Магазин ДНК-80 ° c до использования.
- Экстракции ДНК из крови.
-
Стрижки ДНК (Рисунок 5)
- Передача 50 мкл ДНК на трубу microcentrifuge 1,5 мл.
- Место труб в стойку sonicator Кубок рожочка с холодной водой (4 ° C).
- Запустите sonicator на 3 мин на 80% интенсивности с 10 s на пульс и 5 s покинуть пульс.
Предупреждение: Носить наушники или беруши для защиты слуха. - Запуск 2,5 мкл стриженый ДНК на 2% агарозном геле, чтобы подтвердить, что большая часть ДНК является < 600 bp в размер.
-
Добавление C-хвост
- Измерение концентрации ДНК с небольшой объем спектрофотометром.
- Рассчитать объем соответствует 500 нг ДНК, используя следующее уравнение:
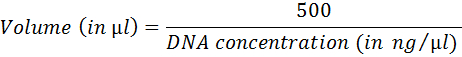
- Подготовьте хвостохранилище реакции (Таблица 4). Инкубировать 1 час при 37 ° C; Инактивирует на 75 ° C в течение 20 мин.
Примечание: Для образцов, которые требуют корректировки объема больше чем 14,5 мкл, увеличить окончательный объем реакции на 40 мкл и масштабировать остальных компонентов соответственно. - Экологически чистые образцы с комплектом очистки ПЦР. Элюировать ДНК с 12 мкл буфера.
-
Вложенные PCR
- ПЦР #1
- Подготовка смеси ПЦР согласно таблицы 3 и 5. Передавать каждую ПЦР-пробирку 22 мкл, комплекса библиотека и 3 мкл очищенная ДНК. Аналогичным образом приступайте к структуре управления.
Примечание: Праймер TnkN317 специфичные для transposon и грунтовка olj3766 для C-хвост. Сочетание управления хватает TnkN3 грунт, которая специально ориентирована на transposon. - Запустите следующую программу: 95 ° C на 2 мин; 24 циклов: 95 ° C за 30 сек, 60 ° C за 30 s, 72 ° C на 2 мин; 72 ° C на 2 мин.
- Подготовка смеси ПЦР согласно таблицы 3 и 5. Передавать каждую ПЦР-пробирку 22 мкл, комплекса библиотека и 3 мкл очищенная ДНК. Аналогичным образом приступайте к структуре управления.
- ПЦР #2.
- Подготовьте второй ПЦР смеси согласно таблицы 3 и 6. Передача 49 мкл библиотека смеси в каждую ПЦР-пробирку и 1 мкл реакции PCR #1 библиотеки. Передавать каждую ПЦР-пробирку 24.5 мкл, комплекса управления и 0.5 мкл управления реакции PCR #1.
Примечание: Праймер pMargent2 для transposon, и праймеры IP6 содержат шесть base пара штрих и специфических последовательностей, признанные платформы виртуализации нового поколения. - Запустите следующую программу: 95 ° C на 2 мин; 18 циклов: 95 ° C за 30 сек, 60 ° C за 30 s, 72 ° C на 2 мин; 72 ° C на 2 мин.
- Подготовьте второй ПЦР смеси согласно таблицы 3 и 6. Передача 49 мкл библиотека смеси в каждую ПЦР-пробирку и 1 мкл реакции PCR #1 библиотеки. Передавать каждую ПЦР-пробирку 24.5 мкл, комплекса управления и 0.5 мкл управления реакции PCR #1.
- Запуск 3 мкл на 2% гель агарозы. Библиотека должна показать мазок с большинством сигнала между 200 до 600 ВР (рис. 6) и не усилители для управления реакции.
- ПЦР #1
-
Очистка продуктов PCR.
Примечание: Очистите геномные библиотеки с ПЦР очистки комплект следуя инструкциям производителя. Элюировать ДНК с 30 мкл буфера. - Измерение концентрации ДНК с помощью флуориметр. В среднем 2-3 читает.
- Рассчитайте объем каждой библиотеки эквивалент 15 или 20 нг, используя уравнения ниже:
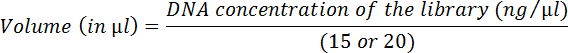
-
Смешать все библиотеки вместе предыдущих расчетам. Определение молярной концентрации ДНК с сайта следующие уравнения:
http://www.molbiol.edu.ru/ENG/Scripts/01_07.HTML
Предупреждение: ДНК концентрации и объема требования зависят от платформы виртуализации.
4. высокопроизводительного секвенирования и анализ данных
- Виртуализация
- Последовательности библиотеки как 64 читает один конец bp, используя праймер pMargent3 пользовательские последовательности и стандартных коммерческих последовательность праймера. Платформа виртуализации предоставит вам FastQ файлы с все последовательности чтения.
- Анализ с Галактика программного обеспечения
- Скачать файл последовательности генома
- На домашней странице базы данных SpiroScope (см. шаг 1.2.7 для ссылки), выберите организма, используемые для эксперимента и нажмите кнопку «Нагрузки в ГЕНОМА браузер».
- В панели инструментов (в верхней части главной страницы), выберите «Поиск/экспорт > Загрузка данных», в строке «Последовательности (fasta)», нажмите «Геном» скачать последовательности.
- Откройте файл в блокноте (PC) или TextEdit (Mac) и переименуйте хромосомы (например «ХПН»). Сохранить в формате fasta.
- Выполните те же шаги для загрузки последовательности хромосом II. Объединить обе последовательности хромосом в одном .txt файл путем копирования и вставки.
Примечание: Хромосома последовательности можно также загрузить на веб-сайте NCBI (https://www.ncbi.nlm.nih.gov) и объединены в единый txt-файл.
- Загрузка файлов на сервер галактики
Примечание: Галактика является открытым исходным кодом, веб-платформа для управления данных интенсивного биоинформатики процессы27,28,29,30 и могут быть доступны на https://usegalaxy.org/.- В меню Сервис, выберите пункт «получить данные > Загрузить файл с вашего компьютера». Перетащите и падение .fastq файлы, генерируемые платформы виртуализации в окно, а затем нажмите кнопку «Пуск».
- Выполните те же шаги, чтобы загрузить файл .txt последовательности генома Leptospira .
- Жених считывает
- Выберите «NGS: QC и манипуляции > FASTQ грумер» из меню Сервис.
- Рядом с файлом для жениха, выберите библиотеки загружены на шаге 4.2.2. В тип оценки качества ввода FASTQ выберите систему соответствующей последовательности. Дополнительно оставьте скрыть расширенный управления выбран.
- Нажмите кнопку «Выполнить».
- Удаление последовательности артефактов
- Выберите «NGS: QC и манипуляции > удалить артефакты последовательности». Рядом с библиотекой для фильтрации выберите ухоженные файлы, созданные в шаге 4.2.3. Нажмите кнопку «Выполнить».
- Удаление последовательности C-хвост
Примечание: Повторите эти шаги один или два раза, чтобы обеспечить все C-хвосты удаляются.- Выберите «NGS: QC и манипуляции > клип адаптер последовательности».
- Выберите или введите следующее:
Библиотека для клипа: выберите файлы, созданные в шаге 4.2.4.
Длина минимум последовательности: 15
Источник: введите пользовательские последовательности
Введите пользовательские отсечения последовательность: CCCCCCC
Введите ненулевое значение, чтобы адаптер последовательности и x баз, которые следуют за ней: 0
Отменить последовательности с неизвестным баз (N): Да
Параметры вывода: выходной последовательности подстриженные и не обрезан - Нажмите кнопку «Выполнить».
- Удалите адаптер последовательности
- Выберите «NGS: QC и манипуляции > клип адаптер последовательности».
- Выберите или введите следующее:
- Библиотека для клипа: выберите файлы, созданные на шаге 4.2.5.
- Длина минимум последовательности: 15
- Источник: введите пользовательские последовательности
- Введите пользовательские отсечения последовательность: CGTATGCCGTCTTCTGCTTG
- Введите ненулевое значение, чтобы адаптер последовательности и x баз, которые следуют за ней: 0
- Отменить последовательности с неизвестным баз (N): Да
- Параметры вывода: выходной последовательности подстриженные и не обрезан
- Нажмите кнопку «Выполнить».
- Читает фильтр, основанный на их качество
- Выберите «NGS: QC и манипуляции > фильтр по качеству».
Примечание: Этот инструмент выбирается читает, основанные на показатели качества. - Выберите следующее:
Библиотека для фильтрации: выберите файлы, созданные в шаге 4.2.6.
Порогового значения качества: 20
Процент баз в последовательности, который должен иметь качество равный к/выше порогового значения: 95 - Нажмите кнопку «Выполнить».
Примечание: С этими параметрами, отбрасываются читает короче, чем 20 нуклеотидов или показатель качества 20 или менее 95% циклов. Адаптировать параметры жесткости для вашего эксперимента.
- Выберите «NGS: QC и манипуляции > фильтр по качеству».
- Карта32 чтений
- Выберите «NGS: сопоставление > Bowtie2»32.
- В полях в главном окне выберите следующее:
Это одно- или парные библиотека: один конец
FASTQ файла: выберите Библиотека, отфильтрованные по качеству от шага 4.2.7.
Написать невыровненных (в формате fastq) читает отделить файл(ы): нет
Запись выровненных (в формате fastq) читает для разделения файлов: нет
Вы выберите ссылку генома из вашей истории или использовать встроенный индекс?: использовать генома из истории и построить индекс
Выберите ссылку генома: выберите Лептоспире genome.txt файл загружен в шаге 4.2.2.
Набор групп сведения?: не установлен
Режим выбора анализа: 1: только настройки по умолчанию
Вы хотите использовать Пресеты?: нет, просто используйте значения по умолчанию
Сохранить bowtie2 сопоставления статистики в истории: нет
Работа параметров ресурсов: используйте параметры ресурсов работу по умолчанию - Нажмите кнопку «Выполнить» для выравнивания читает генома.
- Преобразование файлов
- Выберите «NGS: SAMtools > BAM BAM-Сэм преобразовать Сэм».
- Выберите следующее:
BAM файла для преобразования: Выберите сопоставленные библиотеки из шага 4.2.8.
Варианты заголовка: включать заголовок в выходных данных SAM (-h) - Нажмите кнопку «Выполнить».
- Преобразование файлов
- Выберите «NGS: SAMtools > преобразовать Сэм интервала».
- Выберите следующее:
Выберите набор данных для преобразования: выберите файл SAM сопоставленных библиотеки, созданные на шаге 4.2.9.
Печатать все?: Да - Нажмите кнопку «Выполнить».
- Сортировка считывает
- Выберите «фильтр и сортировка > Сортировка данных по возрастанию или по убыванию».
- Выберите следующее:
Сортировка набора данных: выберите интервал файл, созданный на шаге 4.2.10.
на столбец: 2
с ароматом: порядку
все в: возрастанию - Нажмите кнопку «Выполнить».
- Выберите читает соответствующий хромосома я
- Выберите «фильтр и сортировка > выберите строки, которые соответствуют выражение».
- Выберите следующее:
Выберите линии от: выберите файл с отсортированных читает, созданного на шаге 4.2.11.
что: согласование
шаблон: введите имя хромосомы, как определено в шаге 4.2.1.3 (например, «ХПН»). - Нажмите кнопку «Выполнить».
- Выберите читает соответствующий хромосома II
Продолжайте следовать шаг 4.2.12. - Группа читает согласно вставки сайты в хромосоме I
- Выберите «Join, вычесть и Группа > Группа данных по столбцу и выполнять статистическую операцию по другим столбцам».
- Выберите следующее:
Выберите данные: выберите результирующий файл из шага 4.2.12.
Группа по столбцу: 2
Игнорировать регистр при группировке?: нет
Игнорировать строки, начинающиеся с этих знаков: Ø
Операция > + операции вставки
Тип: Фото
На столбец: 2
Раунд результат до ближайшего целого числа: нет - Нажмите кнопку «Выполнить».
- Группа читает согласно вставки сайты в хромосоме II
Продолжайте следовать шаг 4.2.14. - Сортировка вставки сайты на хромосоме I
- Выберите «фильтр и сортировка > Сортировка данных по возрастанию или по убыванию».
- Выберите следующее:
Сортировка набора данных: Выберите файл из шага 4.2.14.
на столбец: 1
с ароматом: порядку
все в: возрастанию - Нажмите кнопку «Выполнить».
- Сортировать места вставки на хромосоме II
Продолжайте следовать шаг 4.2.16.
- Скачать файл последовательности генома
- Статистический анализ
- Передача данных Галактика в файлы электронных таблиц, копируя и вставляя два столбца из шагов 4.2.16. и 4.2.17. в файл Excel.
Примечание: Первый столбец имеет координату нуклеотидов вставки сайт transposon, и второй столбец — это количество операций чтения на каждом сайте вставки. - Идентифицировать ген, укрывательство transposon, используя координату нуклеотидов, приводятся в таблице.
Примечание: К примеру, transposon, вставляются в нуклеотидной #30718 хромосомы I-расположен в LIC10024 гена, который охватывает нуклеотидов в хромосоме 29263-31539 я. - Вычислите относительные частоты (F) для каждого мутант в каждой ткани и в бассейне ввода после уравнения ниже:
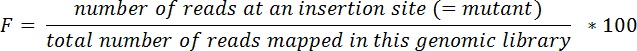
- Рассчитайте коэффициенты входной/выходной (R) для каждого мутант и ткани, используя уравнения ниже:
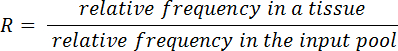
- Вилкоксон подписали ранг тест
- Нормализовать все коэффициенты входной/выходной, установив средний коэффициент для каждой ткани в каждое животное 1.0. В соотношении 1,0 является нейтральным, > 1.0 невыгодно, и < 1.0 является выгодным33.
- Сравнение входной/выходной соотношения 1.0 (нейтральный фитнес) с использованием Вилкоксон ранга тест с P значений < 0,05 считается статистически значимым.
- Передача данных Галактика в файлы электронных таблиц, копируя и вставляя два столбца из шагов 4.2.16. и 4.2.17. в файл Excel.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Создание библиотеки transposon мутантов в л interrogans путем конъюгации требует фильтрующего блока, как показано на рисунке 1. 100-200 трансконъюгантов мы оправились от каждого спаривания.
Transposon вставки сайт обозначаются в каждом мутант секвенирования продукт PCR, порожденных полу-случайных ПЦР, предназначенного к концу transposon и соседних принимающих последовательностей
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Хотя результаты от нашего эксперимента для хомяка, внутрибрюшинно оспорены с 42 л interrogans мутантов представлены17, мы ожидаем, что большие бассейны мутантов может проверяться Tn-далее Потому что низкая частота трансконъюгантов (100-200 трансконъюгантов/спаривания), несколько вязки необходимо создать достаточное количество мутантов для больших Tn-Seq экспериментов. Поддержание большое количество мутантов в жидком культур представляет материально-технические проблемы, которые должны быт...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы не имеют ничего сообщать.
Благодарности
Эта работа была поддержана заслуги дел ветеранов (в D.A.H.) и национального института здравоохранения предоставлять R01 Ай 034431 (D.A.H.).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Канамицина сульфат из Streptomyces kanamyceticus | Sigma-Aldrich | K4000 | |
| 2,6-диаминопимеловая кислота | Sigma-Aldrich | D1377 | |
| Spectinomycin дигидрохлорида пентагидрат | Sigma-Aldrich | S4014 | |
| Axio Lab A1 микроскоп с темнопольным конденсатором | Zeiss | 490950-001-000 | |
| DNeasy набор для крови и тканей | Qiagen | 69504/69506 | |
| MinElute PCR Очистка | Qiagen | 28004/28006 | |
| QIAquick PCR Набор для очистки | Qiagen | 28104/28106 | |
| Модель 505 Звуковой дисмембратор | Fisher Scientific | FB-505 | |
| 2,5" Чашечный рог | Fisher Scientific | FB-4625 | |
| Бусина Ruptor 24 | Omni International | 19-010 | Шаг 3.1.2.4 |
| Терминальная дезоксинуклеотидилтрансфераза | Promega | M828C | |
| Master mix Phusion | Thermo Scientific | F531 | Подготовка геномных библиотек, шаг 3.4. |
| DreamTaq Master | Mix Thermo Scientific | K9011/K9012 | Идентификация места введения транспозона, шаг 1.2. |
| dCTP | Thermo Scientific | R0151 | |
| ddCTP | Affymetrix / USBProducts | 77112 | |
| T100 Термоамплификатор | BioRad | 1861096 | |
| Qubit 2.0 Флуориметр | Invitrogen | Q32866 | шаг 3.6. |
| Набор для анализа Qubit dsDNA HS | Invitrogen | Q32851/Q32854 | шаг 3.6. |
| Технологии ресурса пробирок | Q32856 шаг | 3.6. | |
| PBS pH 7,2 (1X) | Gibco | 20012-027 20012-050 | |
| Одноразовый скальпель No10 | Feather | 2975#10 | |
| Пластиковый K2 EDTA 2 мл тубы | BD вакутайнер | 367841 | |
| шприц U-100 с 26G x ½ ” игольчатый | вакутайнер BD | 329652 | IP challenge, шаг 2.2.1. |
| 3 мл шприц с наконечником Luer-Lok | вакутайнер BD | 309657 | пункции сердца, шаг 2.4.2. |
| Вакутайнер с | иглой 25G X 5/8 | 305901 | пункцией сердца, шаг 2.4.2. |
| Основание из фриттированного стекла 25 мм со стопором | EMD Millipore | XX1002502 | Система фильтрационных установок, шаг 1.1.7. |
| Алюминиевый пружинный зажим 25 мм | EMD Millipore | XX1002503 | Система фильтрационной установки, шаг 1.1.7. |
| 15 мл воронка из боросилкатного стекла | EMD Millipore | XX1002514 | Система фильтрационной установки, шаг 1.1.7. |
| Колба Эрленмейера 125 мл боковой руки | EMD Millipore | XX1002505 | Система фильтрационной установки, шаг 1.1.7. |
| Ацетатно-целлюлозный фильтр VVPP (размер пор 0,1 мм; диаметр 25 мм) | EMD Millipore | VVLP02500 |
Ссылки
- Murray, G. L., et al. Genome-wide transposon mutagenesis in pathogenic Leptospira species. Infect Immun. 77 (2), 810-816 (2009).
- Adler, B., Lo, M., Seemann, T., Murray, G. L. Pathogenesis of leptospirosis: the influence of genomics. Vet Microbiol. 153 (1-2), 73-81 (2011).
- Marcsisin, R. A., et al. Use of a high-throughput screen to identify Leptospira mutants unable to colonize the carrier host or cause disease in the acute model of infection. J Med Microbiol. 62, 1601-1608 (2013).
- van Opijnen, T., Bodi, K. L., Camilli, A. Tn-seq: high-throughput parallel sequencing for fitness and genetic interaction studies in microorganisms. Nat Methods. 6 (10), 767-772 (2009).
- van Opijnen, T., Lazinski, D. W., Camilli, A. Genome-wide fitness and genetic interactions determined by Tn-seq, a high-throughput massively parallel sequencing method for microorganisms. Curr Protoc Microbiol. 36, 1E.3.1-1E.3.24 (2015).
- Troy, E. B., et al. Understanding barriers to Borrelia burgdorferi dissemination during infection using massively parallel sequencing. Infect Immun. 81 (7), 2347-2357 (2013).
- Wunder, E. A. Jr, et al. Real-time PCR reveals rapid dissemination of Leptospira interrogans after intraperitoneal and conjunctival inoculation of hamsters. Infect Immun. 84 (7), 2105-2115 (2016).
- Lourdault, K., Aviat, F., Picardeau, M. Use of quantitative real-time PCR for studying the dissemination of Leptospira interrogans in the guinea pig infection model of leptospirosis. J Med Microbiol. 58, 648-655 (2009).
- Coutinho, M. L., et al. Kinetics of Leptospira interrogans infection in hamsters after intradermal and subcutaneous challenge. PLoS Negl Trop Dis. 8 (11), e3307(2014).
- Athanazio, D. A., et al. Rattus norvegicus as a model for persistent renal colonization by pathogenic Leptospira interrogans. Acta Trop. 105 (2), 176-180 (2008).
- Ratet, G., et al. Live imaging of bioluminescent Leptospira interrogans in mice reveals renal colonization as a stealth escape from the blood defenses and antibiotics. PLoS Negl Trop Dis. 8 (12), e3359(2014).
- Gutierrez, M. G., Yoder-Himes, D. R., Warawa, J. M. Comprehensive identification of virulence factors required for respiratory melioidosis using Tn-seq mutagenesis. Front Cell Infect Microbiol. 5 (78), (2015).
- Gawronski, J. D., Wong, S. M., Giannoukos, G., Ward, D. V., Akerley, B. J. Tracking insertion mutants within libraries by deep sequencing and a genome-wide screen for Haemophilus genes required in the lung. Proc Natl Acad Sci U S A. 106 (38), 16422-16427 (2009).
- Gallagher, L. A., Shendure, J., Manoil, C. Genome-scale identification of resistance functions in Pseudomonas aeruginosa using Tn-seq. MBio. 2 (1), (2011).
- Slamti, L., Picardeau, M. Construction of a library of random mutants in the spirochete Leptospira biflexa using a mariner transposon. Methods Mol Biol. 859, (2012).
- Picardeau, M. Conjugative transfer between Escherichia coli and Leptospira spp. as a new genetic tool. Appl Environ Microbiol. 74 (1), 319-322 (2008).
- Lourdault, K., Matsunaga, J., Haake, D. A. High-throughput parallel sequencing to measure fitness of Leptospira interrogans transposon insertion mutants during acute infection. PLoS Negl Trop Dis. 10 (11), e0005117(2016).
- Ellinghausen, H. C., McCullough, W. G. Nutrition of Leptospirapomona and growth of 13 other serotypes: Fractionation of oleic albumin complex and a medium of bovine albumin and polysorbate 80. Am J Vet Res. 26, 45-51 (1965).
- Johnson, R. C., Harris, V. G. Differentiation of pathogenic and saprophytic letospires. I. Growth at low temperatures. J Bacteriol. 94 (1), 27-31 (1967).
- Demarre, G., et al. A new family of mobilizable suicide plasmids based on broad host range R388 plasmid (IncW) and RP4 plasmid (IncPa) conjugative machineries and their cognate Escherichia coli host strains. Res Microbiol. 156 (2), 245-255 (2005).
- Vallenet, D., et al. MicroScope: a platform for microbial genome annotation and comparative genomics. Database (Oxford). , bap021(2009).
- Goodman, A. L., Wu, M., Gordon, J. I. Identifying microbial fitness determinants by insertion sequencing using genome-wide transposon mutant libraries. Nat. Protocols. 6 (12), 1969-1980 (2011).
- Miller, J. Spirochetes in body fluids and tissues manual of investigative methods. , 22-23 (1971).
- Ristow, P., et al. The OmpA-like protein Loa22 is essential for leptospiral virulence. PLoS Pathog. 3 (7), (2007).
- Croda, J., et al. Targeted mutagenesis in pathogenic Leptospira species: disruption of the LigB gene does not affect virulence in animal models of leptospirosis. Infect Immun. 76 (12), 5826-5833 (2008).
- Haake, D. A. Hamster model of leptospirosis. Curr Protoc Microbiol. 12, 2(2006).
- Giardine, B., et al. Galaxy: a platform for interactive large-scale genome analysis. Genome Res. 15 (10), 1451-1455 (2005).
- Goecks, J., Nekrutenko, A., Taylor, J., Galaxy, T. Galaxy: a comprehensive approach for supporting accessible, reproducible, and transparent computational research in the life sciences. Genome Biol. 11 (8), R86(2010).
- Blankenberg, D., et al. Galaxy: a web-based genome analysis tool for experimentalists. Curr Protoc Mol Biol. (Chapter 19), 11-21 (2010).
- Afgan, E., et al. The Galaxy platform for accessible, reproducible and collaborative biomedical analyses: 2016 update. Nucleic Acids Res. 8 (44), (2016).
- McCoy, K. M., Antonio, M. L., van Opijnen, T. MAGenTA; a Galaxy implemented tool for complete Tn-Seq analysis and data visualization. Bioinformatics. , 1367(2017).
- Langmead, B., Trapnell, C., Pop, M., Salzberg, S. L. Ultrafast and memory-efficient alignment of short DNA sequences to the human genome. Genome Biol. 10 (3), R25(2009).
- Kamp, H. D., Patimalla-Dipali, B., Lazinski, D. W., Wallace-Gadsden, F., Camilli, A. Gene fitness landscapes of Vibrio cholerae at important stages of its life cycle. PLoS Pathog. 9 (12), e1003800(2013).
- Poggi, D., Oliveira de Giuseppe, P., Picardeau, M. Antibiotic resistance markers for genetic manipulations of Leptospira spp. Appl Environ Microbiol. 76 (14), 4882-4885 (2010).
- van Opijnen, T., Camilli, A. Transposon insertion sequencing: a new tool for systems-level analysis of microorganisms. Nat Rev Microbiol. 11 (7), 435-442 (2013).
- Pappas, C. J., Picardeau, M. Control of gene expression in Leptospira spp. by Transcription activator-like effectors demonstrates a potential role for LigA and LigB in Leptospira interrogans virulence. Appl Environ Microbiol. 81 (22), 7888-7892 (2015).
- Koskiniemi, S., Sun, S., Berg, O. G., Andersson, D. I. Selection-driven gene loss in bacteria. PLoS Genet. 8 (6), e1002787(2012).
- Troy, E. B., et al. Global Tn-seq analysis of carbohydrate utilization and vertebrate infectivity of Borrelia burgdorferi. Mol Microbiol. 101 (6), 1003-1023 (2016).
- Ramsey, M. E., et al. A high-throughput genetic screen identifies previously uncharacterized Borrelia burgdorferi genes important for resistance against reactive oxygen and nitrogen species. PLoS Negl Trop Dis. 13 (2), e1006225(2017).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
