Этот метод позволяет для поколения тетраплоидные и триплоидный нематоды Caenorhabditis от любого диплоидный сорт. Полиплоидных штаммов, созданный этим методом были использованы для изучения взаимодействия хромосомы в meiotic профаза, и этот метод является полезным для изучения важных основных вопросов в клетке, развития, эволюции и биологии рака.
Методическая статья
Манипуляция плоидности в Caenorhabditis elegans
В этой статье
Краткое содержание
Аннотация
Механизмы, которые включают весь геном полиплоидии играют важную роль в процессе развития и эволюции; Кроме того аномальные поколения тетраплоидные клеток был связан с прогрессирования рака и развитие лекарственной устойчивости. До сих пор не было возможности легко манипулировать плоидности многоклеточных животных без генерации основном стерильные потомства. Представленные здесь — это простой и быстрый протокол для генерации тетраплоидные Caenorhabditis elegans животных от любого диплоидный сорт. Этот метод позволяет пользователю создать уклон в сегрегации хромосом во время мейоза, в конечном счете повышение плоидности в C. elegans. Эта стратегия опирается на переходных снижение экспрессии гена РЭЦ-8 для создания диплоидных гамет. РЭЦ-8 мутант производит диплоидных гамет, которые потенциально могут производить тетраплоидов после оплодотворения. Эта схема шансов справиться с возникающими был использован для создания тетраплоидные штаммов мутации и перестроек хромосом чтобы разобраться в хромосомном динамики и взаимодействия во время спаривания и синапса в мейоз. Этот метод эффективен для генерации стабильного тетраплоидные штаммов без генетических маркеров, может быть применен к любой диплоидный сорт и могут быть использованы для получения триплоидный C. elegans. Этот простой метод полезен для расследования других основных биологических вопросов, касающихся нестабильности генома, дозы генов, биологических масштабирование, внеклеточных сигналов, адаптация подчеркнуть, развитие устойчивости к лекарственным препаратам, и механизмы классификации.
Введение
Весь геном полиплоидии существует в природе и часто является необходимым шагом в адаптации, видообразования, органогенез, заживления ран и биологических масштабирования; Он также известен по содействию рака и устойчивость к наркотикам1,2,3,4,5,6,,78, 9 , 10 , 11 , 12. Сельское и рыбное хозяйство промышленность создать полиплоидных растений, рыб и моллюсков, химической обработки (например, колхицина и orzalin) для получения быстрее темпов роста и более громоздким растениеводства и животноводства в13, 14,15. Экспериментальные и неэффективное производство тетраплоидов существует для мыши и zebrafish модель системы16,17. Однако большинство или все полиплоидных многоклеточных животных генерируется embryonically смертоносного или стерильной и таким образом не подходит для лабораторных исследований на эффекты полиплоидии многоклеточного организма. Следовательно любое понимание всего генома полиплоидизации у многоклеточных организмов было ограничено близкородственных видов эволюционной последние полиплоидизации события18,19,20 . Путь для продвижения запросов Биологическая роль или последствия полиплоидизации является использование системы модель C. elegans . Главное, C. elegans является шансов справиться с возникающими Генетическая система, которая обычно существует как диплоидные, содержит только пять аутосомами (A) и одной хромосомы пола (X) на геном, прозрачным, позволяя в естественных условиях наблюдения биологических процессов, и имеет короткий жизненный цикл 3-4 дней (от яйца до половозрелых взрослого). C. elegans было показано, чтобы иметь возможность воспроизвести как тетраплоидные, который является наиболее распространенным типом всего генома полиплоидии в природе. Триплоидный животных могут быть получены путем пересечения тетраплоидов с diploids, но их плоидности не является стабильным, и штаммы становятся диплоидных в течение нескольких поколений.
В последние несколько десятилетий только горстка из жизнеспособных и плодородные C. elegans тетраплоидов штаммы были изолированы в лаборатории, используя стратегию, которая является трудоемким и генерирует только ограниченные виды штаммов21,22, 23. Эта стратегия создает C. elegans тетраплоидов лечения теплового шока, который предположительно влияет на хромосоме сегрегации в гамет, следуют скрининга для предполагаемого полиплоидных животных, с использованием генетических маркеров. Эти тетраплоидов были чрезвычайно полезными в запрос о как этот нематода определяет, следует ли стать мужчиной или Гермафродит. Более поздние исследования используются доступные штаммов расследовать роста, дозы генов и регулирование Синапсис во время мейоза в этом нематоды21,24,25,26. К сожалению эти исследования были ограничены по сложности в формировании новых тетраплоидные штаммов и фон генетических маркеров эти штаммы содержащихся. Здесь показан простой и быстрый протокол для создания стабильной тетраплоидов, который был использован для создания штаммов для изучения регулирование Синапсис во время мейоза27.
Как и в природе полиплоидизации могут возникнуть образование диплоидной вместо гаплоидным гамет. Наш вывод что когезинов мейоз конкретного компонента мутант РЭЦ-8 генерирует диплоидных спермы и яйцеклеток указал, что стучать вниз Джин РЭЦ-8 приведет в производстве тетраплоидные потомства (рис. 1)27, 28,29. Создание тетраплоидные штаммов просто предполагает стучать вниз РЭЦ-8 путем РНК-интерференции (RNAi) для двух поколений в целях Фенокопия РЭЦ-8 диплоидных мутантов гамет. Предполагаемый polyploids могут быть легко идентифицированы по их больше чем размер нормальный тела. Polyploids подтверждается как полное или частичное тетраплоидов подсчитывая количество хромосом в ядро после создания стабильной линии.
Стратегии, описанные здесь, позволяет создавать стабильные тетраплоидные Caenorhabditis нематоды штаммов от первоначального диплоидных генетический фон или кариотипа без использования генетических маркеров. Поскольку этот протокол является более эффективным, универсальным и простой чем ранее используется схема, она будет расширяться и инструменты, необходимые для запроса роли полиплоидизации в основных процессах развития, стабильности генома и эволюции многоклеточных организмов. Только обозримом ограничение в использовании этого протокола находится в генетических стола устойчив к RNAi.
Протокол
1. Настройка РЭЦ-8 интерференции (день 1-3 на рис. 2)
Этот протокол является изменение от Kamath и Ahringer30.
- Для индукции РЭЦ-8 dsRNA выражения в Escherichia coliПодготовьте нематода среднего роста (НГМ) агар пластин31 дополнена конечная концентрация 1 мм изопропил β-D-2-тиогалактопиранозид (IPTG) и 100 мкг/мл ампициллина. Хранить в темноте при температуре 4 ° C до использования, на срок до 4 недель.
- Полоса HT115 бактерии, перевозящих РЭЦ-8 (W02A2.6)-клон из клонов Ahringer Лаборатория библиотеки30 РЭЦ-8 на бульоне Лурия (LB) плиты, дополненная 100 мкг/мл Ампициллин и тетрациклин 50 мкг/мл. Растут на ночь в шейкере на 37 ° C.
- В день 1 прививок одной колонии из свеже прожилками одного колоний бактерий E. coli HT115, перевозящих клон RNAi РЭЦ-8 в 4 мл LB содержащие 100 мкг/мл Ампициллин и тетрациклин 50 мкг/мл. Расти культуры бактерий на ночь в шейкере или роликовые барабан при 37 ° C.
- На следующее утро (день 2), стимулировать производство двойной мель (ds) РНК для РЭЦ-8 W02A2.6 в HT115 бактериальной культуры путем добавления конечной концентрации 1 мм ИПТГ и тряски на 40 минут при 37 ° C.
- После индукции семян NGM/IPTG пластины с 100-200 мкл HT115 РЭЦ-8 бактерий и хранить пластины при комнатной температуре в темной ночи (день 3).
- На следующее утро (день 4), добавьте желаемый нематоды штамм индуцированных пластины бактерий РЭЦ-8 HT115 как описано в шаге 2.1 ниже.
2. Создание и изоляция тетраплоидов (день 4-16 на рис. 2)
- На 4 день, место 3-4 молодых L4 (Четвёртый) стадий гермафродитки желаемого диплоидных нагрузку на пластины ЯГН/IPTG семенами с HT115 РЭЦ-8 бактерий, которые заставили накануне (шаг 1.5, выше). Расти нематод на 15 ° C в темноте.
- Повторите шаги 1.3 и 1.4, начиная через 3 дня после шаг 2.1, которые будут три дня до первого потомства (F1s) от этого шага стал L4s. Сроки этого шага будет зависеть как быстро нематоды штамм растет на 15 ° C. Некоторые диплоидных мутантов штаммы являются медленно садоводов, и этот тайминг будет нужно тонкой настройки для того, чтобы изолировать тетраплоидов.
- На 8 день (после 4 дней РЭЦ-8 RNAi кормления лечения) передача 20 (2 гермафродитки/Петри) гермафродитки L4 F1 (первый филиал поколения), выращенных в бактериях РЭЦ-8 HT115 на свеже индуцированных HT115 РЭЦ-8 RNAi и позволяют их self-fertilize.
- Кроме того передача 20 F1 L4 гермафродитки свежезаваренным выращенных в бактерии РЭЦ-8 HT115 на индуцированных HT115 РЭЦ-8 RNAi бактерии вместе с необработанными мужчины же штамм (2 гермафродитки с 4-6 мужчин/плита).
- День 13, начало скрининг для F2 (второй филиал поколения) потомства, что длинные (Lon) или в целом больше, чем дикого типа; Затем перенесите отдельных Lon животных на регулярные ОР50 или HB101 штаммов бактерий E. coli . Продолжать скрининг F3 (третий филиал) потомства; Однако F3 потомства от же пластины не может считаться независимой штаммов, если они укоренились, потому что они могут быть братьев и сестер из того же уже созданы F2 мать.
Примечание: Предполагаемый тетраплоидов легко идентифицируются потому, что они явно больше, чем diploids. Две трети короче чем тетраплоидов гермафродитки дикого типа. Потому что это больше, тетраплоидной тело делает дополнительный ход, как она движется вперед путем генерации синусоидальных волн, изгиб тела от головы до хвоста (рис. 3A). - Разрешить Lon червей self-fertilize и распространять, выбирая Lon потомства, пока только Lon потомства хряков в отсутствие РЭЦ-8 RNAi лечения. Это может занять два-три дополнительных поколений. Lon червей часто стерильны и не дают потомство.
3. Проверка тетраплоидные штаммов (фильм 1 и рис. 3а, B)
Примечание: Тетраплоидные штаммы могут быть проверены путем подсчета числа хромосом в их неоплодотворенных яйцеклеток. Люминесцентная микроскопия могут использоваться для экран для числа пар хромосом в неоплодотворенные яйцеклетки диплоидных (до meiotic дивизий), если штамм имеет флуоресцентные маркера для хромосом. В отсутствие маркеров флуоресцентные хромосомы тетраплоидные нематод может проверяться путем фиксации нематод и пятнать с краской ДНК; Смотрите ниже для протокола для фиксации этанола и целом животное 4′, 6-Diamidine-2′-phenylindole дигидрохлорид (DAPI) пятнать.
- Весь животных DAPI пятнать
Примечание: Тетраплоидные штаммов, перевозящих 12 подключенных хромосома пары может быть проверен DAPI пятнать этих животных и подсчета числа DAPI органов в его неоплодотворенных яйцеклеток.- 5 место-10 мкл буфера M931 на микроскопа, затем передать 6-10 нематод на падение.
- Под микроскопом рассечения привлечь большую часть M9 от падения без удаления нематод безворсовой салфеткой очистки. Затем сразу же добавьте каплю 10 мкл 90% этанола на червей. Разрешить червей высохнуть полностью, но для не более чем на пару секунд.
- Как только испаряется этанола (это можно увидеть как это происходит под микроскопом рассечения), добавить дополнительные 10 мкл 90% этанола на червей.
- Повторите шаг 3.1.3 еще три раза.
- После последней капли этанола испарилась, мкл 6 DAPI или Hoechst красителя в рекомендуемых конечная концентрация в средствах массовой информации монтажа выбора (например, 1:1,000 разрежения концентрации 2 нг/мкл DAPI запасов в М9). Для длительного хранения слайдов 0,5% p фенилендиамином растворяют в 20 мм трис-HCl, pH 8.8, в 90% глицерин как antifade решение, вместо M9 только, могут быть использованы.
- Обложка червей на слайде с coverslip и уплотнение края coverslip с ногтей. Оценка в флуоресцентным микроскопом (шаг 3.1.7) по крайней мере 10 мин после добавления coverslip. Слайды без antifade может храниться несколько дней при температуре 4 ° C до забил, но качество флуоресценции начинает снижаться после нескольких дней.
- С помощью флуоресцентного микроскопа при 100-кратном, Оценка количество одного DAPI органов (предположительно одной хромосома пары) в наиболее зрелых неоплодотворенные яйцеклетки, которая непосредственно примыкает к сперматека и до сих пор не вступил сперматека или матки.
- Оценка отдельных органов DAPI внутри ядра яйцеклеток, пользоваться микроскопом тонкой фокус медленно двигаться от верхней части ядра яйцеклеток на дно при подсчете. Затем рассказывают же ядра при перемещении фокуса в противоположном направлении (т.е., от дна к верхней части ядра) для подтверждения подсчет числа DAPI органов.
- Оценка наиболее зрелых неоплодотворенные яйцеклетки в каждом из двух гонады в по крайней мере десять гермафродитки за стабильный штамм Lon. Ооциты дикого типа имеют 6 DAPI органы в среднем, 5 пар Аутосома и пара секс хромосомы. Наличие 12 DAPI органов в яйцеклетку стабильных штаммов Lon указывает, что животных в этот штамм (4 комплектов аутосомами, 4 мосома) или частично (4 наборы аутосомами, 3 мосома) тетраплоидов.
- Вычислите среднее количество DAPI органов из нескольких яйцеклеток (по крайней мере 10) за штамм. Некоторые пары хромосом будет касаться или прямо на верхней части друг друга, поэтому количество DAPI органов в яйцеклетки часто меньше, чем фактическое число пар хромосом.
- (Необязательно) Дальнейшие проверки стабильных штаммов Lon, где среднее количество DAPI органов составляет 12, чтобы проверить, являются ли они полный (4A, 4 X) или частично (4А, 3 X) тетраплоидов путем пятнать против хромосома оси белков, таких как ПВТ-332иммунофлюоресценции. Это окрашивание будет отличать пар хромосом, показывая крестообразный шаблон из одного несвязанных хромосом в частичной тетраплоидные.
Результаты
Обесценение РЭЦ-8 Meiotic когезинов результаты функции компонента в диплоидных гаметы:
Imaging meiotic подразделений когезинов компонент мутант РЭЦ-8 спермы и яйцеклеток выявили возможные механизмы для генерации тетраплоидные животных (рис. 1)27,29,33. Механически отличаются meiotic отдел дефекты РЭЦ-8 мутант спермы и яйцеклеток; Однако как мужчин, так и женские гаметы диплоидных производятся мутант РЭЦ-8 .
В дикого типа мейоз, гомологичные хромосомы становятся временно соединены кроссовер рекомбинации друг к другу и введите первый дивизион meiotic как единица или двухвалентной (рис. 1A)34. Во время первого дивизиона, гомологичных хромосом (гомолог) отделить друг от друга, тогда как сестра, chromatids в каждом гомолога оставаться вместе до второго дивизиона. Хотя структура хромосома сегрегации является то же самое в женских и мужских гамет, ооцитов подразделения являются асимметричной, тогда как Сперматоцит дивизий симметричный и проходят специализированные цитокинез. В каждом отделе ооцитов отменяет половину продукции Отдела в небольшой полярного тельца. Таким образом каждый прекурсор ооцитов рождает одного гаплоидным ооцитов и два полярных тела (рис. 1B, C)35. И наоборот предвестником одного Сперматоцит рождает четыре функциональных сперматид путем прохождения двух симметричных отделов. Второй дивизион завершается с четырьмя сперматид отпочковываясь от от остаточного тела. Этот цитокинез особенна тем, что модель и количество сперматид определяется большое36.
В предшественником РЭЦ-8 мутант гамет рекомбинации кроссовер между гомологичные хромосомы не состоится и гомолог не связаны как двухвалентной в начале первого meiotic отдел29,34. Сестра chromatids каждого гомолога отделить друг от друга в первом дивизионе вместо оставшиеся вместе до второй дивизион, как они делают в дикого типа гамет. Интересно, что мутантный фенотип РЭЦ-8 во второй дивизион отличается в мужские и женские гаметы в ооциты не удастся пройти цитокинез, тогда как сперматоцитах проходят относительно нормальное цитокинез (рис. 1B– F) 27 , 28 , 29. диплоидный ооциты возникают потому, что во втором дивизионе они не хромосома сегрегации и цитокинез, поэтому они не выдавливать второй полярного тела (рис. 1B, C). Сперматоцитах в РЭЦ-8 germlines проходят сперматид бутонизации или цитокинез, но часто отделить оба набора хромосом одной из сперматид приносить диплоидных сперматид и сперматид хватает хроматина (рис. 1 d– F)27. Количественная оценка доли РЭЦ-8 спермы хватает хроматина показан на рисунке 1F.
Формирование женских и мужских гамет диплоидных в РЭЦ-8 мутантов предложил, что этот мутант фенотип могут потенциально использоваться для создания полного генома тетраплоидные штаммов.
Поколение тетраплоидные C. elegans штаммы:
Наличие мутации в гене РЭЦ-8 всех созданных тетраплоидные штаммов можно избежать, временно стучать вниз РЭЦ-8 RNAi29,37. Это предполагает, что сокращение РЭЦ-8 функции RNAi будет генерировать диплоидных гамет, которые потенциально могут привести к весь геном тетраплоидные животных, как мутанты РЭЦ-8 29,37. Важно Этот протокол, что РЭЦ-8 мутантов как порождают диплоидных гамет и господин достаточно большое количество молодежи, вопреки другим meiotic мутантов, которые порождают анеуплоидных гамет и являются главным образом стерильной или эмбриональных/личиночной смертоносных.
Несколько тетраплоидные штаммы были получены путем кормления C. elegans бактерий, выражая РЭЦ-8 двуцепочечной ДНК, используя один из двух стратегий (см. протокол, Рисунок 2и Таблица 1)27. Тетраплоидов может быть порождена самостоятельного удобрения гермафродитки для двух-трех поколений в чашках Петри с бактериями, выражая РЭЦ-8 двуцепочечной ДНК. По этой стратегии, которую гермафродита помещается в свежезаваренным сделал РЭЦ-8 RNAi пластины и его потомства передается несколько дней спустя на новые пластины с свежезаваренным индуцированных РЭЦ-8 RNAi выражая бактерий (см. протокол). Кроме того тетраплоидов могут быть созданы путем пересечения первого поколения гермафродитки кормили бактерий, выражая РЭЦ-8 двуцепочечной ДНК с необработанной мужчины же генотипа в чашках Петри с бактериями, выражая РЭЦ-8 двуцепочечной ДНК ( Рисунок 2). В этом случае мужчины в кресте подвергаются бактерии RNAi РЭЦ-8 от этапа L4, во время спаривания. Обе схемы порождают тетраплоидные животных27. Таблица 1 показывает тетраплоидные штаммов, полученные с помощью схемы, представленные здесь. C. elegans триплоидный и тетраплоидные больший размер, чем diploids, но триплоидный штаммы являются нестабильными и склонны стать диплоидных в одно или два поколения, тогда как тетраплоидные штаммы являются относительно стабильными22,23. Предполагаемый тетраплоидные штаммы были определены как больше, чем оригинальный гермафродитки штамм (Lon), которые желаемого только Lon потомства (рис. 3A). Lon животных легко идентифицируются - дикого типа диплоидных животные являются две трети длины тетраплоидов и их тела не делать дополнительных Бенд, который можно заметить в ходе его синусоидальное движение вперед (рис. 3A).
Тетраплоидные штаммы были подтверждены скрининг на наличие 12 пар хромосом в ооциты тетраплоидные гермафродитки, по сравнению с шести пар хромосомы в яйцеклетки диплоидный гермафродитки (рис. 3B, Cи 1 кино).
Тетраплоидные классы:
Были определены два типа тетраплоидные гермафродитки: один эту мужчины на аналогичных частотах диплоидных гермафродитки и другого желаемого мужчины на гораздо более высоких частотах (Таблица 1). Было показано, что эти два вида тетраплоидные гермафродитки отличаются тем, что частоты класса производства аналогичны диплоидных мужчины тетраплоидные для всех своих хромосом (4A, 4 X), тогда как класс производства высоких частот мужчины гермафродитки которые тетраплоидные аутосомами но триплоидный для секса хромосомы (4, 3 X). Позднее класс тетраплоидов являются стабильными и производят 4А, 3 X гермафродитки и 4А, 2 X мужчин.
Тетраплоидные штаммов растут медленнее и производить сокращения расплода размер, по сравнению с diploids, что они были получены, как видно на штаммов, созданный ранее метод22,23. MADL и Герман22 предложил, что увеличение доли мертвых эмбрионов в тетраплоидные штаммов может быть вызвано анеуплоидия в яйцеклетку, однако поверхностный осмотр тетраплоидные штаммов не выявило достаточно повышенные количества анеуплоидных ооциты ни аномальные яйцеклетки или Сперматоцит отделов с учетом наблюдаемого сокращения расплода размер (фильм 2и 3 на рисунке c, D).
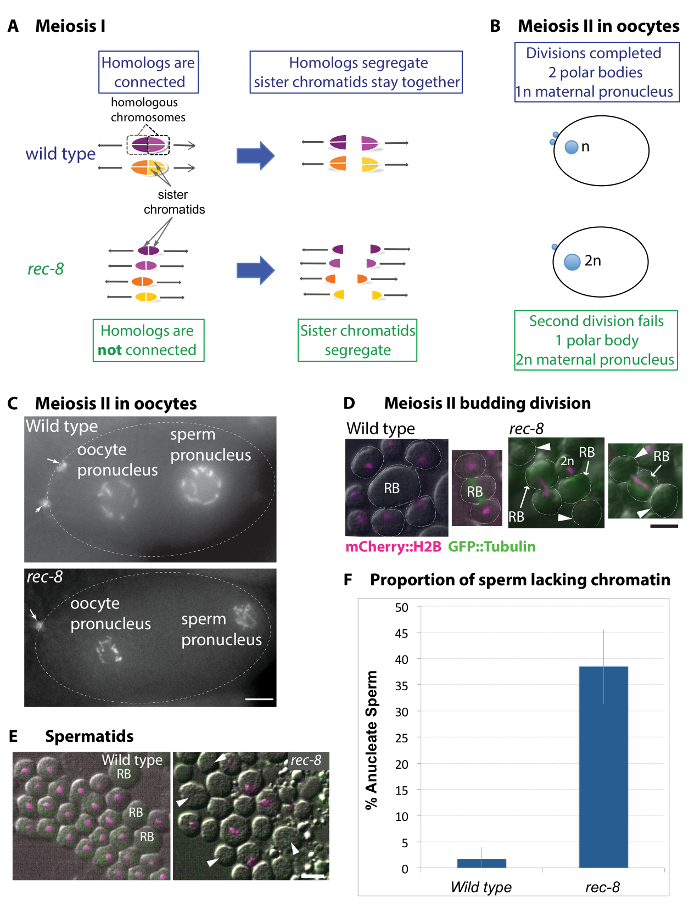
Рисунок 1: Гаметогенеза в РЭЦ-8 мутант подразумевает возможные механизмы для создания стабильной полиплоидных пятна. (A) схема хромосомы Организации и сегрегации шаблона в дикого типа и РЭЦ-8 мутант meiotic дивизий. В дикого типа мейоз гомологичные хромосомы разделяются в первом дивизионе meiotic. Сестра chromatids в каждом гомолога ориентировать на одном полюсе шпинделя и остаются вместе до второго дивизиона. В РЭЦ-8 мутантов гомолог не образуют кроссоверы и таким образом не связаны. В отличие от до дикого типа, сестра РЭЦ-8 chromatids Ориент подальше друг от друга и разделить в первом дивизионе meiotic. (B) схема дикого типа и мутантов ооцитов, показывая женского пронуклеусами и экструдированного полярных органов (мужской пронуклеусами не изображена). В дикого типа ооцитов два асимметричных meiotic подразделения привести к экструзии двух полярных органов. Однако, в РЭЦ-8 мутантов второй полярного тела выдавливания не привело диплоидных ооцитов. (C) образы дикого типа и РЭЦ-8 мутант ооцитов, выражая mCherry::histone H2B. Стрелки указывают два полярных органов в дикого типа ооцитов и один в мутанта РЭЦ-8 . Линейки-5 мкм. (D и E) живут образы сперматид от дикого типа и РЭЦ-8 мутанта животных, выражая mCherry::histone H2B (пурпурный). Стрелки указывают anucleate сперматид. Линейки-2 мкм. (D) Spermatocytes проходит второй дивизион (начинающие) в дикого типа и мутантов РЭЦ-8 . Дикого типа сперматоцитах проходят симметричных отделов привело четыре многообещающий сперматид, каждый с гаплоидным хромосома дополнения. В РЭЦ-8 мутантов сперматоцитах хромосомы сегрегация является нарушение во втором дивизионе. Чаще всего один массу хроматина остается в организме остаточного (РБ) или в одном из двух братских сперматид во втором дивизионе meiotic. Это приводит к anucleate мутант спермы РЭЦ-8 (обозначается стрелками) или диплоидный спермы. (E) живут образы после многообещающий сперматид дикого типа и мутантов РЭЦ-8 , визуализируется с использованием дифференциальной помехи контраст (ОПК) и микроскопии флуоресцирования. Дикого типа сперматид все имеют одинаковые хроматиды масс. РЭЦ-8 мутант сперматид образуют anucleate спермы. Количественное определение (F) дикого типа и РЭЦ-8 мутантов anucleate спермы. РЭЦ-8 мутантов производится 38,5% anucleate спермы, по сравнению с менее чем 1,6% в дикого типа. Точный тест Фишера указывает, что РЭЦ-8 мутант имеет значительно выше частота встречаемости anucleate спермы (p ≤0.0001) по сравнению с дикого типа. Планки погрешностей представляют стандартных отклонений. Пожалуйста, нажмите здесь, чтобы посмотреть большую версию этой фигуры.
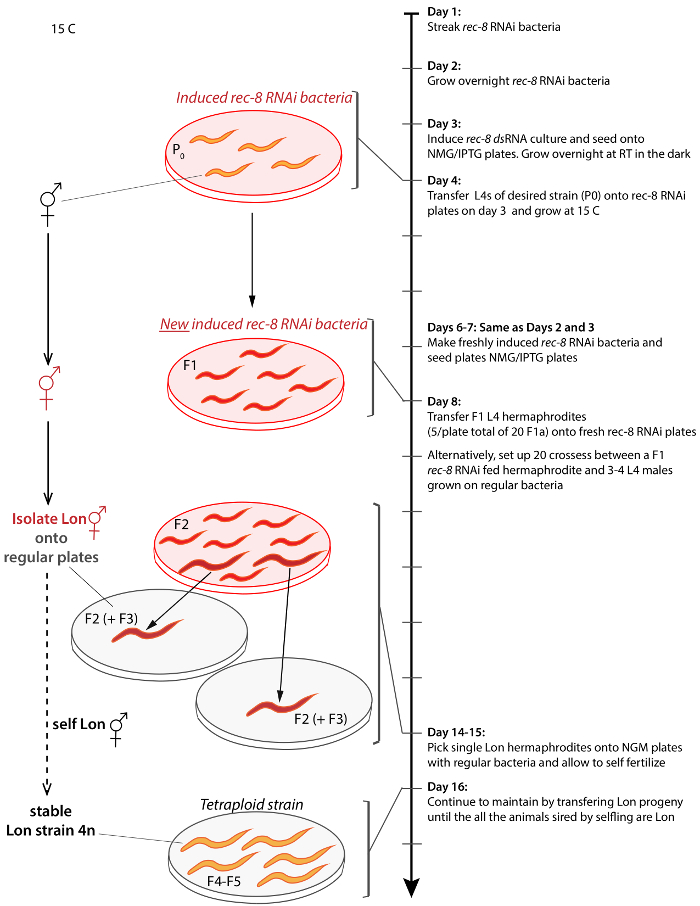
Рисунок 2: Схема для генерации и изоляции тетраплоидные C. elegans от любого штамма. Стрелку на право представляет Хронология протокола, начиная с 1 день и прогрессирует до 17 дней. Аналогичные результаты могут быть достигнуты путем пересечения гермафродитки необработанных мужчин на день 9. Скобки подключения изображением шаг к временной шкале. Неочищенные животных являются оранжевый, обработанных животных являются красный, Lon животных больше по размеру, РЭЦ-8 малым интерферирующим РНК, выражая бактерий изображен как прозрачные пластины с прозрачным красным фоном и регулярные ОР50 бактерии изображен на прозрачные серые фон пластин. Процедура проводится на 15 ° C, если не указано иное. Пожалуйста, нажмите здесь, чтобы посмотреть большую версию этой фигуры.

Рисунок 3: примеры тетраплоидные. (A) светлые области изображения тетраплоидные животных (MSC2) и диплоидных штамм, который оно было получено от (AV740). Тетраплоидные C. elegans являются в целом больше и дольше (Lon) чем диплоидные. Эта разница в размерах тела приводит к дополнительной синусоидальной кривой тела движущихся тетраплоидные и может использоваться в качестве критерия экран для тетраплоидные производных. Линейки шкалы составляет (0,1 ммB, C). флуоресценции изображений Диплоидные (AV740) и тетраплоидные (MSC1) наиболее зрелых неоплодотворенные яйцеклетки nulcei, до meiotic дивизий. Вторичного скрининга производится путем наблюдения на количество пар хромосомы в неоплодотворенные яйцеклетки установленных Lon штаммов, как показано в фильме 1 для штамма MSC1, выражая Mcherry::H2B и GFP::β-тубулина в микрофлорой. Линейки шкалы — 5 мкм. (D) изображения от промежуток времени (фильм 2) тетраплоидные ооцитов meiotic дивизий, изображающие вообще нормальный мейоз. Стрел Марк полярных органов и пунктирная линия знаменует коры яйцеклетки внутри сперматека и окруженный спермы; t = время истек в минутах. Шкалы бар-10 мкм. пожалуйста, нажмите здесь, чтобы посмотреть большую версию этой фигуры.
| Генотип | Тетраплоидные производная (наборы аутосомами: # мосома) * | Родительский сорт (диплоидные) |
| meIs16 [пирог 1p::mCherry:: его-58 + unc-119(+)]; | MSC1 (4A:4 X) | MSC0 |
| ruIs57 [пирог 1p::GFP::b-тубулина + unc-119(+)] | MSC2 (4A:3 X) | |
| MSC3 (4A:4 X) | ||
| MSC5 (4A:3 X) | ||
| MSC6 (4A:4 X) | ||
| MSC8 (4A:4 X) | ||
| UNC-119(ED3) III; ddIs6; ddIs6 [ГТД 1::GFP + unc-119(+)]; ltIs37; ltIs37 [pAA64; пирог-1p::mCherry::HIS-58 + unc-119(+)] IV | MSC14 (4A:3 X) | TMR17 |
| MSC15 (4A:3 X) | ||
| MSC16 (4A:4 X) | ||
| SPO-11 (me44) / nT1 IV; +/ nT1 [qIs51 [ЭППО myo-2::gfp-10::gfp, PF22B7.9::gfp]] V | AV800& | AV776 |
| meIs8 [пирог-1p::gfp::cosa-1 + unc-119(+)] II; | AV809& | AV727 |
| ltIs37 [пирог 1p::mCherry:: его-58 + unc-119(+)] IV; | ||
| ltIs38 [pie-1p::gfp::ph(PLC1delta1) + unc-119(+)] | ||
| meIs8 [пирог-1p::gfp::cosa-1 + unc-119(+)] II; mnT12 (X; IV) | AV826& | AV695 |
| Мин1 [dpy-10(e128) mIs14 [myo-2::gfp шт 10::gfp]] / | AV810& | DR2078 |
| Bli-2(e768) unc-4(e120) II | ||
| ruIs32 [пирог-1::GFP::H2B + unc-119(+)] III | AV822& | AZ212 |
| AV823& | ||
| C. briggsae - mfIs42 [Cel-sid-2 + чел myo-2::DsRed] | AV824& | JU1018 |
Таблица 1: генерируется тетраплоидные штаммов. * Вывод забил количество bivalents (подключенных гомологичных пар) и univalents (индивидуальные гомолог) в яйцеклеток до meiotic подразделения в дополнение к доля мужчин желаемого.
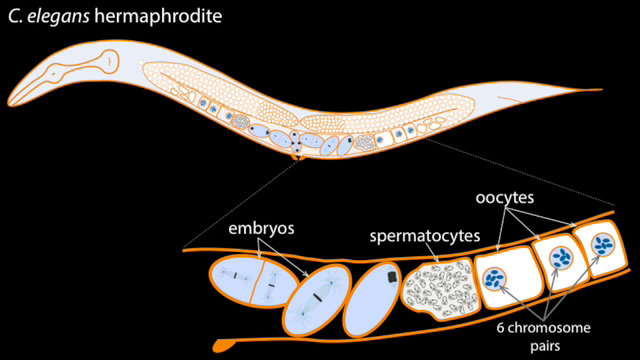
Фильм 1: проверка для подтверждения того, являются ли стабильных штаммов Lon полное или частичное тетраплоидов. Фильм начинается со схемой дикого типа гермафродита, подчеркнув региона образы (неоплодотворенных яйцеклеток) для выявления тетраплоидов путем подсчета пар хромосом. После схеме серии Z-стек фильмы и прогнозы показывают гонад диплоидных и тетраплоидные животных фиксированной и DAPI окрашенных или жить изображения штаммов, выражая гистона Mcherry::H2B. Скрининг делается путем подсчета числа подключенных гомологичные хромосомы пар в неоплодотворенные яйцеклетки. Подсчет MCherry или DAPI окрашенные органов осуществляется в неоплодотворенные яйцеклетки, ближе всего к спермы хранение сперматека («яйцеклетки-1»). Хромосомы в этом ооцитов наиболее конденсируется и отделены друг от друга, позволяя для более точной гомолога пар графов. Более 10 животных каждого штамма были проверены для обеспечения точной отсчеты хромосомы яйцеклеток-1. Стек толщина составляет 0,2 мкм. пожалуйста, нажмите здесь для просмотра этого видео. (Правой кнопкой мыши для загрузки.)
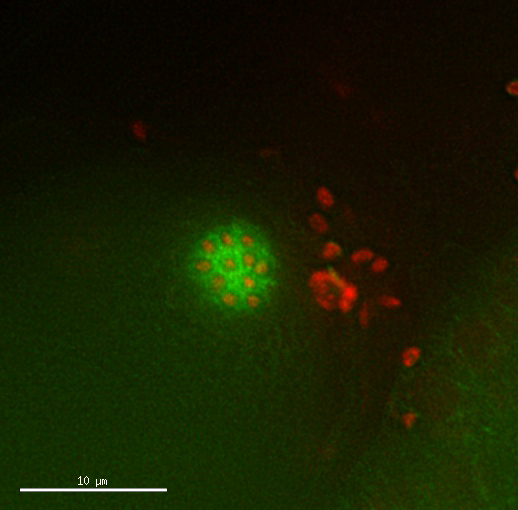
Фильм 2: тетраплоидные ооцитов дивизий появятся нормальные. Промежуток времени деления ооцита тетраплоидный сорт, выражая гистона Mcherry::H2B и GFP::β-тубулина. Сроки и шаблон отделов появляются нормальные. Снимки каждые 2,5 мин пожалуйста нажмите здесь, чтобы посмотреть это видео. (Правой кнопкой мыши для загрузки.)
Обсуждение
Производство haploid (n) гамет является ключом к генерации зигота Диплоидные (2n) на оплодотворение. Это сокращение генома осуществляется во время мейоза с двумя подряд клеточных делений после одного генома дублирования. Для создания Пептон гамет, C. elegans, как и в большинстве других размером, отделить матерински - и отечески производные гомолог в первом дивизионе, тогда как сестра, chromatids от каждого гомолога сегрегацию во втором дивизионе. Один путь весь геном полиплоидии возникает в природе — через поколение гамет, которые не половину их размер генома во время мейоза.
Это было известно на протяжении более 50 лет что тетраплоидные C. elegans нематод являются жизнеспособной и плодородные. Nigon23и позднее Madl и Герман22, генерируется и определили горсть тетраплоидов C. elegans , нарушая meiotic хромосома сегрегации с использованием теплового шока лечения и использование генетических маркеров, соответственно. Один дополнительный C. briggsae тетраплоидный сорт была получена с помощью этого протокола 30 лет позднее24. Эти тетраплоидов использовались расследовать как C. elegans определить, следует ли стать мужчиной или Гермафродит, как плоидности регулирует рост и размер и для анализа сопряжения и синапса в мейоз25,26, 38 , 39 , 40. Однако эти и другие исследования, требующие использования конкретных тетраплоидов или триплоидный штаммы были ограничены из-за трудностей в создании тетраплоидные штаммов этим методом.
Описанные здесь протокол позволяет поколение стабильной полный 4A, 4 X и частичного 4А, 3 X тетраплоидные Caenorhabditis нематоды штаммов из любого первоначальный диплоидных генетический фон или кариотип без использования генетических маркеров.
Tetraploidy могут возникать более чем одного механизма в C. elegans:
MADL и Герман предложила, что тетраплоидные штаммов, сгенерированная они вероятно производным от триплоидный промежуточное состояние. Их штаммы были получены путем отбора через несколько поколений или путем скрещивания предполагаемого триплоидный промежуточных с диплоидными мужчины22. Дефекты в хромосоме, секционирование в РЭЦ-8 мутантов, что порождает диплоидных ооцитов и спермы предложить еще один возможный механизм, по которому тетраплоидные животных могут возникнуть с РЭЦ-8 RNAi схема27.
Гермафродитки RNAi лечение РЭЦ-8 может производить диплоидных ооцитов и сперматоцитах, которые вызвали бы тетраплоидные животных после оплодотворения. В соответствии с этой возможности является тот факт, что некоторые из клонированных гермафродитки F2 вызвало стабильных штаммов Lon в следующего поколения, которое предполагает, что клонированные гермафродитки Lon F2 где уже тетраплоидные. В схеме пересечения первое поколение РЭЦ-8 RNAi лечение гермафродитки пересекается с необработанной мужчины. Диплоидных сперматоцитах могут возникнуть у мужчин, потому что крест делается присутствии бактерий, выражая dsRNA РЭЦ-8 и таким образом, мужчины подвержены РЭЦ-8 RNAi во время спаривания для по крайней мере 3 дней. Таким образом Lon polyploids в cross-fertilizing схеме может также сформировали от оплодотворения яйцеклетки диплоидный диплоидных спермой. Стабильные тетраплоидные штаммы могут возникнуть от либо оплодотворение между диплоидных гамет или пересечения триплоидный животных, содержащих яйцеклеток переменной плоидности с диплоидными животных, производство гаплоидным спермы.
Важные соображения:
Self-против взаимообогащения схем:
Схема самостоятельно подкормки РЭЦ-8 RNAi лечение гермафродитки F1 и схема включая пересечение обработанных гермафродитки с необработанной самцы обеих порождала 4A, 4 X и 4А, 3 X тетраплоидные штаммов. Хотя больше polyploids были первоначально изолированы от самостоятельного удобрения схемы, больше из этих полиплоидных животных были стерильные и таким образом обе схемы аналогичным образом эффективно производить тетраплоидные стабильных штаммов. Причиной для увеличения успеха и стерильности в схеме самостоятельного внесения удобрений остается неизвестным. Хотя обе схемы также эффективны, самостоятельного удобрения схема проще, так как он не требует изоляции мужчин для спаривания. Кроме того когда штамм интерес является неэффективным или дефектных в спаривания, предпочтительнее схемой самостоятельного внесения удобрений. Cross-fertilizing схема может использоваться для создания сложных тетраплоидов, содержащие более двух версий одной хромосомы.
Изменения и ограничения:
В настоящее время этот протокол включает РЭЦ-8 RNAi лечение, питание бактерий, выражая двуцепочечной ДНК гена РЭЦ-8 . Таким образом этот протокол не работает в Caenorhabditis видов не реагирует на RNAi кормления, или в мутантов дефектных в экологических или системных распространения интерференции между тканей41,42,43. Потенциально, эта проблема может быть решена путем введения RNAi лечение путем прямого впрыска двуцепочечной ДНК интерес непосредственно в микрофлорой.
Триплоидный животных должен быть создан путем скрещивания тетраплоидные диплоидных животное, из которого он был получен, потому что эта схема не генерировать стабильные триплоидный штаммов44,45. Только 15% яиц хряков triploids люк, и их потомства в основном стерильные потомства благодаря анеуплоидии. Кроме того несколько сохранившихся плодородные потомство, как правило, быть полным или вблизи diploids в течение нескольких поколений. Это, вероятно, по крайней мере отчасти, потому что ооцитов частично исправление трисомии, выделяя в третьей хромосоме в организме полярных в первом дивизионе meiotic.
Непреодолимые ограничения настоящего Протокола является, что он не работает для изготовления тетраплоидов мутантов, которые влияют на компоненты механизма интерференции, потому что они устойчивы к RNAi лечения46.
Устранение неполадок:
РЭЦ-8 интерференции:
Несколько соображения имеют решающее значение для этого протокола быть успешным. Первый заключается в использовании свежих IPTG и свежеприготовленные IPTG NMG пластины для индукции производства dsRNA РЭЦ-8 в бактерии бактерии HT115, перевозящих клон РЭЦ-8 (W02A2.6). IPTG светочувствительных и это важное значение для уменьшения освещенности в пластины. IPTG пластины может храниться до одного месяца при температуре 4 ° C в темноте. Во-вторых РЭЦ-8 (W02A2.6) RNAi бактериальных штаммов HT115 из библиотеки Ahringer (Kamath и Ahringer 2003) принесли РЭЦ-8 фенотип сильнее, чем другие доступные РЭЦ-8 HT115 клонов.
Тетраплоидный сорт техническое обслуживание:
Тетраплоидные штаммов растут очень медленно и производят более 50 потомков на поколения47. Все выявленные тетраплоидные штаммы являются относительно стабильными, но они могут разрушить и стать диплоидных когда подчеркнул (Джонатан Hodgkin личного общения и неопубликованные наблюдения). Таким образом важно отметить, что, когда тетраплоидные штаммов выращиваются при 25 ° C, тепло шокирован, голодали, или замороженных и размороженные, они могут быстро вернуться к diploidy, поэтому важно продолжать выбирать Lon животных при размораживании эти штаммы или когда подвергая эти штаммы в стрессовых условиях, которые могут привести к их вернуться.
Возможные применения:
Исследование влияния или роль полиплоидизации всего генома в эволюции, клеточный цикл, экспрессии генов и развития многоклеточных организмов опирался на сравнение: клетки в организме, которые содержат различные плоидности, той же клетке типы в тесно связанных видов с различными плоидности, или видов, которые претерпели эволюционно недавние события полиплоидизации и физической изоляции3,5,6,7,8 ,11,18,19,20,48,,4950. Хотя тетраплоидов могут быть производными от данио рерио и мыши модели систем, их потомство, стерильные или embryonically смертоносных16,17. Кроме того, эти модели системы имеют длинные циклы жизни по сравнению с C. elegans, и доступные методы для создания полиплоидных животных являются сложными и неэффективными. Таким образом штаммы C. elegans , полученные этим методом будет полезной для дальнейшего расследования на эффекты и роли всего генома полиплоидии в многоклеточных организмов.
Так как триплоидный могут быть производными от тетраплоидные путем скрещивания тетраплоидные к оригинальной диплоидные, сравнение между diploids, triploids и тетраплоидов, которые отличаются только в количество копий геномов, предоставляет уникальную и беспрецедентную возможность Оцените эквивалентные животных/органов/клетки с различными генома размер (или дозы гена). Гибкость и простоту схемы, описанные здесь позволило нам создать десятки тетраплоидные штаммов из различных генетических диплоидных стола или получен. Некоторые из этих штаммов уже были использованы для запроса механизмов пары гомологичных хромосом и Синапсис во время мейоза27.
Дикого типа и мутантов тетраплоидные штаммов, ношение флуоресцентные маркеры предоставит новые возможности по расследованию, чтобы понять отношения между соотношение размер и/цитозоль генома на внутриклеточные/сотовых/органа и весь животных, масштабирование, весь геном полиплоидизации на адаптации, видообразования, дозы генов и выражения и развития тканей и органов. В дополнение к изучению биологических масштабирования поколения тетраплоидные штаммов будет значительно дальнейшие запросы фундаментальных биологических вопросов, имеющих отношение к внеклеточных сигналов, нестабильность генома, endoreduplication, весь геном дублирование, дозы генов, адаптация подчеркнуть, развитие резистентности к лекарствам и механизм видообразования.
Раскрытие информации
Авторы не имеют ничего сообщать.
Благодарности
Мы благодарим Caenorhabditis генетики центр (финансируется из Национального института здравоохранения (НИЗ) Управление по исследовательской инфраструктуры программы P40 OD010440) для штаммов. Авторы хотели бы поблагодарить Baptiste Руленс и Эли Lessman, за предоставленную нам с конструктивной обратной связи и Мано лаборатории на CCNY, CUNY для использования их лаборатории для часть съемок и за их помощь. Эта работа была поддержана PSC-CUNY премии TRADB-46-113 и низ Грант 1SC2GM118275-01. М.с. частично поддерживается Канадский институт здравоохранения (КНИИЗ) докторантура стипендий, и е.к. была поддержана RISE NIH/NIGMS Грант GM062981.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Препарирующий микроскоп | Мотическая микроскопия | SMZ171 | |
| Название | Company | Номер в каталоге | Комментарии |
| NGM агаровые пластины | |||
| 60 мм x 15 мм Чашки Петри, Sterile | Tritech Research | T3305 | |
| 35 мм x 15 мм Чашки Петри, стерильный | Tritech Research | T3500 | |
| Бактериологический агар, 5 кг | VWR | 89140-850 | |
| Хлорид натрия, биотехнологический класс | VWR | 97061-278 | |
| Пептон, BD Bacto | VWR | 90000-368 | |
| Ампициллина тригидрат | VWR | 97062-300 | |
| IPTG, | Thermo Scientific | R0391 | |
| Название< | >Company< | strong>Номер в каталоге< | strong>Комментарии |
| >Growth Culture | |||
| LB Lennox Broth | IBI Scientific | 89126-176 | |
| Название | Company< | strong>Номер в каталоге< | strong>Комментарии |
| LB Агаровые пластины | |||
| LB Agar Lennox | IBI Scientific | 89126-182 | |
| Название< | strong>Company | Каталожный номер | >Comments |
| Antibiotics | |||
| ampicillin trihydrate | VWR | 97062-300 | |
| Тетрациклина гидрохлорид | Fisher Scientific | BP912-100 | |
| Name< | strong>Company | Номер в каталоге | Комментарии |
| Окрашивание | |||
| Hoechst 33258, Pentahydrate | Biotium | 40045 | |
| DAPI | Biotium | 40011 | |
| Название | Company | >Номер в каталоге | Комментарии |
| Фиксация этанола | |||
| Этанол, чистый, 190 проб (95%), USP | Koptec, VWR | 89125-166 | |
| Название | Company< | strong>Номер в каталоге | Комментарии |
| M9 Буфер | |||
| Хлорид натрия, биотехнологический класс | VWR | 97061-278 | |
| Фосфат калия, одноосновной безводный класс | VWR | 97062-346 | |
| Фосфат натрия, одноосновной дигидрат | Fisher Scientific | AC271750025 | |
| Name | Company | Каталожный номер | Комментарии |
| RNAi Клоны | |||
| HT115 бактерии, экспрессирующие rec-8 dsRNA | Источник Bioscience | W02A2.6 | |
| HT115 бактерии, экспрессирующие rec-8 dsRNA | Dharmacon | RCE1182-202299820 |
Ссылки
- Ricke, R. M., van Ree, J. H., van Deursen, J. M. Whole chromosome instability and cancer: a complex relationship. Trends Genet. 24, 457-466 (2008).
- Frawley, L. E., Orr-Weaver, T. L. Polyploidy. Curr Biol. 25, R353-R358 (2015).
- Orr-Weaver, T. L. When bigger is better: the role of polyploidy in organogenesis. Trends Genet. 31, 307-315 (2015).
- Otto, S. P. The evolutionary consequences of polyploidy. Cell. 131, 452-462 (2007).
- Davoli, T., de Lange, T. The Causes and Consequences of Polyploidy in Normal Development and Cancer. Annu Rev Cell Dev Biol. 27, 585-610 (2011).
- Adams, K., Wendel, J. Novel patterns of gene expression in polyploid plants. Trends Genet. 21, 539-543 (2005).
- Adams, K. L., Wendel, J. F. Polyploidy and genome evolution in plants. Curr Opin Plant Biol. 8, 135-141 (2005).
- Berman, J. Ploidy plasticity: a rapid and reversible strategy for adaptation to stress. FEMS Yeast Res. 16, (2016).
- Levy, D. L., Heald, R. Mechanisms of Intracellular Scaling. Annu Rev Cell Dev Biol. 28, 113-135 (2012).
- Breneman, A., Cande, J., Dunn, J., Burbank, K., O'toole, E. Genome-wide genetic analysis of polyploidy in yeast. Nature. 443, 541-547 (2006).
- Kuznetsova, A. Y., et al. Chromosomal instability, tolerance of mitotic errors and multidrug resistance are promoted by tetraploidization in human cells. Cell Cycle. 14, 2810-2820 (2015).
- Taylor, J. S., Van de Peer, Y., Meyer, A. Genome duplication, divergent resolution and speciation. Trends Genet. 17, 299-301 (2001).
- Younis, A., Hwang, Y. -J., Lim, K. -B. Exploitation of induced 2n-gametes for plant breeding. Plant Cell Rep. 33, 215-223 (2014).
- Ihssen, P. E., McKay, L. R., McMillan, I., Phillips, R. B. Ploidy Manipulation and Gynogenesis in Fishes: Cytogenetic and Fisheries Applications. Trans Am Fish Soc. 119, 698-717 (2011).
- Stanley, J. G., Allen, S. K., Hidu, H. Polyploidy induced in the American oyster, Crassostrea virginica, with cytochalasin B. Aquaculture. 23, 1-10 (1981).
- Eakin, G. S., Behringer, R. R. Tetraploid development in the mouse. Dev Dyn. 228, 751-766 (2003).
- Heier, J., Takle, K. A., Hasley, A. O., Pelegri, F. Ploidy manipulation and induction of alternate cleavage patterns through inhibition of centrosome duplication in the early zebrafish embryo. Dev Dyn. 244, 1300-1312 (2015).
- Arnold, B., Kim, S. -T., Bomblies, K. Single Geographic Origin of a Widespread Autotetraploid Arabidopsis arenosa Lineage Followed by Interploidy Admixture. Mol Biol Evol. 32, 1382-1395 (2015).
- Session, A. M., et al. Genome evolution in the allotetraploid frog Xenopus laevis. Nature. 538, 336-343 (2016).
- Gallardo, M. H., Bickham, J. W., Honeycutt, R. L., Ojeda, R. A., Köhler, N. Discovery of tetraploidy in a mammal. Nature. 401, 341(1999).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, Suppl . 5-16 (1987).
- Madl, J. E., Herman, R. K. Polyploids and sex determination in Caenorhabditis elegans. Genetics. 93, 393-402 (1979).
- Nigon, V. Polyploidie experimentale chez un nematode libre, Rhabditis elegans maupas. Bull Biol Fr Belg. 95, 187-225 (1951).
- Woodruff, G. C., Eke, O., Baird, S. E., Félix, M. -A., Haag, E. S. Insights Into Species Divergence and the Evolution of Hermaphroditism From Fertile Interspecies Hybrids of Caenorhabditis Nematodes. Genetics. 186, 997-1012 (2010).
- Mlynarczyk-Evans, S., Roelens, B., Villeneuve, A. M. Evidence That Masking of Synapsis Imperfections Counterbalances Quality Control to Promote Efficient Meiosis. PLoS Genet. 9, e1003963(2013).
- Lozano, E., Sáez, A. G., Flemming, A. J., Cunha, A., Leroi, A. M. Regulation of Growth by Ploidy in Caenorhabditis elegans. Curr Biol. 16, 493-498 (2006).
- Roelens, B., Schvarzstein, M., Villeneuve, A. M. Manipulation of Karyotype in Caenorhabditis elegans Reveals Multiple Inputs Driving Pairwise Chromosome Synapsis During Meiosis. Genetics. 201, 1363-1379 (2015).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Severson, A. F., Ling, L., van Zuylen, V., Meyer, B. J. The axial element protein HTP-3 promotes cohesin loading and meiotic axis assembly in C. elegans to implement the meiotic program of chromosome segregation. Genes Dev. 23, 1763-1778 (2009).
- Kamath, R. S., Ahringer, J. Genome-wide RNAi screening in Caenorhabditis elegans. Methods. 30, 313-321 (2003).
- Wood, W. B. The Nematode Caenorhabditis Elegans. , Cold Spring Harbor Laboratory Press. New York. (1988).
- MacQueen, A. J., et al. Chromosome Sites Play Dual Roles to Establish Homologous Synapsis during Meiosis in C. elegans. Cell. 123, 1037-1050 (2005).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Schvarzstein, M., Wignall, S. M., Villeneuve, A. M. Coordinating cohesion, co-orientation, and congression during meiosis: lessons from holocentric chromosomes. Genes Dev. 24, 219-228 (2010).
- Kim, S., Spike, C., Greenstein, D. Germ Cell Development in C. elegans. , Springer. New York, NY. 277-320 (2013).
- Peters, N., et al. Control of mitotic and meiotic centriole duplication by the Plk4-related kinase ZYG-1. J Cell Sci. 123, 795-805 (2010).
- Pasierbek, P. A Caenorhabditis elegans cohesion protein with functions in meiotic chromosome pairing and disjunction. Genes Dev. 15, 1349-1360 (2001).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, 5-16 (1987).
- Flemming, A. J., Shen, Z. -Z., Cunha, A., Emmons, S. W., Leroi, A. M. Somatic polyploidization and cellular proliferation drive body size evolution in nematodes. Proc Natl Acad Sci U S A. 97, 5285-5290 (2000).
- Meneely, P. M. Sex determination in polyploids of Caenorhabditis elegans. Genetics. 137, 467-481 (1994).
- Whangbo, J. S., Hunter, C. P. Environmental RNA interference. Trends Genet. 24, 297-305 (2008).
- Imae, R., Dejima, K., Kage-Nakadai, E., Arai, H., Mitani, S. Endomembrane-associated RSD-3 is important for RNAi induced by extracellular silencing RNA in both somatic and germ cells of Caenorhabditis elegans. Sci Rep. 6, 28198(2016).
- Tijsterman, M., May, R. C., Simmer, F., Okihara, K. L., Plasterk, R. H. A. Genes required for systemic RNA interference in Caenorhabditis elegans. Curr Biol. 14, 111-116 (2004).
- Cortes, D. B., McNally, K. L., Mains, P. E., McNally, F. J. The asymmetry of female meiosis reduces the frequency of inheritance of unpaired chromosomes. Elife. 4, e06056(2015).
- Vargas, E., et al. Autosomal Trisomy and Triploidy Are Corrected During Female Meiosis in Caenorhabditis elegans. Genetics. 207, 911-922 (2017).
- Tabara, H., et al. The rde-1 gene, RNA interference, and transposon silencing in C. elegans. Cell. 99, 123-132 (1999).
- Hodgkin, J. Karyotype, ploidy, and gene dosage. , University of Oxford. (2005).
- Schoenfelder, K. P., Fox, D. T. The expanding implications of polyploidy. J Cell Biol. 209, 485-491 (2015).
- Levy, D. L., Heald, R. Biological Scaling Problems and Solutions in Amphibians. Cold Spring Harb Perspect Biol. 8, a019166(2015).
- Taylor, J. S., Van de Peer, Y., Braasch, I., Meyer, A. Comparative genomics provides evidence for an ancient genome duplication event in fish. Philos Trans Royal Soc B. 356, 1661-1679 (2001).
Перепечатки и разрешения
