Вирусы гриппа А (ИАВ) являются заразными респираторными патогенами, вызывающими ежегодные эпидемии и периодические пандемии. Здесь мы описываем протокол для отслеживания вирусных инфекций in vivo с помощью нового рекомбинантного люциферазы и флуоресценции,выражающей би-репортер IAV (BIRFLU). Этот подход предоставляет исследователям отличный инструмент для изучения IAV in vivo.
Методическая статья
Люциферазе-флуоресцентный вирус гриппа репортер для живой визуализации и количественной оценки вирусной инфекции
В этой статье
Краткое содержание
Аннотация
Вирусы гриппа А (IAVs) вызывают респираторные заболевания человека, связанные со значительными последствиями для здоровья и экономики. Как и в случае с другими вирусами, изучение IAV требует использования трудоемких вторичных подходов для обнаружения присутствия вируса в инфицированных клетках и/или в животных моделях инфекции. Это ограничение было недавно обойти с поколением рекомбинантных IAVs выражая легко прослеживается флуоресцентные или биолюминесцентные (люцифераза) репортер белков. Тем не менее, исследователи были вынуждены выбрать флуоресцентные или luciferase репортер генов из-за ограниченной способности генома IAV для включения иностранных последовательностей. Чтобы преодолеть это ограничение, мы создали рекомбинантный репликации компетентных би-репортер IAV (BIRFLU) устойчиво выражая как флуоресцентные и luciferase репортер ген легко отслеживать IAV инфекций в пробирке и in vivo. С этой целью были модифицированы вирусные неструктурные (NS) и гемагглютинин (HA) вирусные сегменты гриппа A/Puerto Rico/8/34 H1N1 (PR8) для кодирования флуоресцентной Венеры и биолюминесцентных белков Nanoluc luciferase, соответственно. Здесь мы описываем использование BIRFLU в мышиной модели инфекции IAV и обнаружение обоих генов репортера с помощью системы визуализации in vivo. Примечательно, что мы наблюдали хорошую корреляцию между выражениями как репортеров, так и вирусной репликацией. Сочетание передовых методов в молекулярной биологии, исследованиях на животных и технологиях визуализации, предоставляет исследователям уникальную возможность использовать этот инструмент для исследований гриппа, включая изучение взаимодействий и динамики вирусов-хозяев вирусных инфекций. Важно отметить, что возможность генетически изменить вирусный геном, чтобы выразить два иностранных генов из различных вирусных сегментов открывает возможности для использования этого подхода для: i) разработка новых вакцин IAV, ii) поколение рекомбинантных IAVs, которые может быть использован в качестве вакцинных переносчиков для лечения других патогенных инфекций человека.
Введение
Вирус гриппа А (IAV) является окутанным одноцепочечным отрицательным чувством сегментированного РНК-вируса семьи Orthomyxoviridae 1,2,3. Всемирная организация здравоохранения (ВОЗ) оценивает 3-5 миллионов ежегодных случаев гриппа иболее 250 000 случаев смерти от гриппа во всем мире 4,5,6. К группам, особенно уязвимым к гриппу, относятсяпожилые люди, люди с ослабленным иммунитетом, а также дети 7,8,9,10,11. Хотя вакцины доступны и представляют собой наиболее распространенное и эффективное вмешательство против вирусной инфекции, IAV способен быстро развиваться и избежать уже существующего иммунитета3,12,13, 14 Год , 15. Возрождение пандемического штамма H1N1 в 2009 году и появление патогенного IAV подтверждает постоянную угрозу для общественного здравоохранения во всем мире4,16.
Во время эпидемии или пандемии крайне важно быстро определить патогенность и трансмиссивность новых изолированных вирусов. Имеющиеся в настоящее время методы обнаружения вируса отнимают много времени и иногда требуют использования трудоемких подходов, которые могут задержать завершение этих анализов17,18,19,20. Кроме того, современные вирусные анализы трудно масштабировать, что может быть необходимо в случае вспышки. Наконец, использование проверенных животных моделей инфекции, таких как мыши, морские свинки и хорьки регулярно используются и имеют жизненно важное значение для изучения инфекций гриппа, иммунных реакций, и эффективность новых вакцин и / или противовирусных препаратов. Тем не менее, эти модели являются ограничительными из-за неспособности наблюдать вирусную динамику в режиме реального времени; это ограничивает исследования статического изображения вирусных инфекций21,22,23,24,25. Звери, используемые в этих анализов также усыпили для того, чтобы определить вирусную нагрузку, тем самым увеличивая количество животных, необходимых для завершения этих исследований26. Чтобы обойти все эти ограничения, многие исследователи полагаются на использование рекомбинантных репликации компетентных, репортер-выражение IAVs, которые способны ускорения вирусологических анализов и обнаружения вирусной нагрузки и распространения in vivo в режиме реального времени26 ,27,28,29,30,31,32,33,34,35 ,36,37,38,39,40,41. Важно отметить, что эти репортер-выражение IAVs способны воспроизвести аналогично дикого типа (WT) IAVs в культуре клеток и в животных моделях инфекции33,42.
Флуоресцентные и биолюминесцентные белки являются двумя системами репортеров, обычно используемых исследователями из-за их чувствительности, стабильности и простоты использования. Кроме того, существует огромная поддержка и продвижение в флуоресцентных и биолюминесцентных технологий обнаружения белка43,44,45,46,47,48 . Флуоресцентные белки и люциферазы имеют различные свойства, которые позволяют им светиться, особенно отличается тем, как возбужденные состояния генерируются и как обнаружены выбросы43,44,45, 46,47,48. Флуоресцентные белки сначала возбуждаются, поглощая энергию, которая впоследствии высвобождается как свет на другой длине волны, поскольку молекулы уменьшаются до более низкого энергетического состояния43. С другой стороны, биолюминесценция происходит от химической экзотермической реакции, которая включает в себя субстрат, кислород, а иногда и АТБ для того, чтобы произвести свет45. Из-за различных свойств этих двух типов репортер белков, один, может быть, более выгодным, чем другие в зависимости от изучения интереса. В то время как флуоресцентные белки широко используются для наблюдения клеточной локализации28,41, их сигналы in vivo имеют неадекватную интенсивность и часто затенены аутофлуоресценцией в живых тканях49. Таким образом, исследователи полагаются на люциферазы для оценки вирусной динамики в живых организмах, хотя флуоресцентные белки могут быть предпочтительными для исследований ex vivo50,51,52,53. В отличие от флуоресцентных белков, люциферазы более удобны для исследований in vivo и более применимы в неинвазивных подходах26,27,28,29,30 , 31 год , 32 год , 33 , 34 , 35 лет , 36 , 37 , 38 , 39 , 40 г. , 41 год , 54. В конечном счете, на основе типа исследования, исследователи должны выбирать между использованием либо флуоресцентных или люциферазы репортер белка, как их считывание, который подвергает их изучению компромисс функциональных и чувствительности, и серьезно ограничивает полезность рекомбинантных вирусов репортера. Кроме того, существуют опасения относительно корреляции между экспрессией различных генов репортеров, использующих флуоресценцию или люциферазу систем и репликацию вируса или распространение, что может поставить под угрозу интерпретацию данных, полученных с репортер-выражение IAVs.
Мы преодолели это ограничение, создав рекомбинантную репликацию-компетентную би-репортерi IAV (BIRFLU), которая кодирует как флуоресцентный, так и люциферазный белок в том же вирусном геноме55 (Рисунок 1). Здесь, NanoLuc luciferase (Nluc), небольшой и яркий биолюминесцентный белок48, был вставлен вверх по течению гемагглютинина (HA) последовательности в вирусном сегменте HA гриппа A/Puerto Rico/08/1934 H1N1 (PR8)24,33, 40,55,56,57. Кроме того, Венера, часто используемый мономерный флуоресцентный белок, была введена в неструктурный (NS) вирусный сегмент32,33,36,41,55. Так как BIRFLU кодирует как для флуоресцентных, так и для luciferase репортер агены, либо репортер белка сигнал может быть использован в качестве считывания для определения вирусной репликации и распространения в пробирке или in vivo55. Дополнительную информацию о генерации и in vitro или in vivo характеристика BIRFLU можно найти в нашей недавней публикации55. BIRFLU может быть использован для проверки эффективности противовирусных препаратов или нейтрализации антител с помощью нового флуоресцентного и биолюминесцентного микронейнейтрализации анализа55. Кроме того, BIRFLU также может быть использован для оценки вирусной динамики в мышиной модели инфекции55. В этой рукописи мы описываем процедуры для характеристики BIRFLU55 in vitro и как изучать инфекцию BIRFLU у мышей с использованием систем визуализации люминесценции in vivo для обнаружения Nluc in vivo или Venus ex vivo.
Сочетание передовых методов в молекулярной биологии, исследованиях на животных и технологиях визуализации, приносит исследователям уникальную возможность использовать BIRFLU для исследований IAV, включая изучение взаимодействия вирус-хозяин, динамика вирусной инфекции; разработка новых подходов к вакцинам для терапевтического лечения инфекций ИАВ или потенциального использования ВСУ в качестве переносчика вакцины для лечения других патогенных инфекций.
Протокол
Все протоколы с участием мышей были одобрены Институциональным комитетом по уходу и использованию животных (IACUC) и Институциональным комитетом по биобезопасности (IBC) в Университете Рочестера, Школе медицины и стоматологии. Все эксперименты, проводимые на животных, следуют рекомендациям в Руководстве по уходу и использованию лабораторных животных Национального исследовательского совета58. Vivarium и Отдел лаборатории животных медицины объектов в Школе медицины и стоматологии в Университете Рочестера аккредитован Ассоциацией по оценке и аккредитации лабораторных животных помощи (AALAC) Международная и соответствуют федеральным законам и законам штатов и политике Национальных институтов здравоохранения (NIH). Надлежащее личное оборудование защиты (PPE) требуется при работе с мышами. Аналогичные политики и требования должны осуществляться при проведении экспериментов, изложенных в данной рукописи в каждом учреждении.
1. Использование мелких позвоночных животных
- Приобретите от пяти до семи недель самок мышей BALB/c и поддерживайте их в учреждении по уходу за животными в особых условиях, свободных от патогенов. По прибытии мышей в определенные объекты, позволяют период отдыха в течение 4-5 дней, чтобы животные акклиматизироваться к их новой среде.
- Следуя протоколам IACUC, поместите максимум 5 мышей на клетку.
ПРИМЕЧАНИЕ: При заключении эксперимента, для того, чтобы убедиться, что животное мертво, мышей усыпили с помощью двух утвержденных процедур, принимая во внимание, что второй должен быть физическим методом. В этом исследовании, после инфекции мышей с BIRFLU и in vivo изображений, животные усыпляются со смертельной дозой 2,2,2-трибромоэтанола (TBE), и путем разрезания печеночной вены, как физический вторичный метод, как мы ранее показали23.
2. Биобезопасность
ПРИМЕЧАНИЕ: В этой рукописи, BIRFLU был создан в позвоночнике гриппа A/Puerto Rico/08/34 H1N1 (PR8), который является общей мыши адаптированы лаборатории IAV штамм23,32,33,56. Вирус был создан с использованием ранее описанных плазмидных подходов к обратной генетике и полного описания поколения, а в пробирке и in vivo характеристика BIRFLU можно найти в нашей недавней публикации55. Все процедуры, связанные с инфекциями IAV (in vitro или in vivo), проводились в шкафу биологической безопасности при уровне биобезопасности (BSL)-2.
ПРЕДЕКТО: Соответствующий уровень биобезопасности должен определяться в соответствии с оценкой риска биобезопасности. С учреждением, где будут проводиться эксперименты, следует проконсультироваться с учреждением, в котором будут проводиться эксперименты, следует проконсультироваться с дополнительной информацией о проведении оценок риска биобезопасности и установлении эффективного сдерживания биобезопасности.
- Очистите шкафы биобезопасности с 70% этанола или дезинфицирующего средства для диоксида хлора до и после выполнения всех экспериментальных процедур. Для мышей работы, стерилизовать все рассечение материала (ножницы, рассекающие щипцы и т.д.) и Dounce гомогенизатор до и после их использования.
- Откажитесь от всего биологического материала, произведенного в ходе процедур в соответствии с надлежащими руководящими принципами МКБ и IACUC.
3. В пробирке Характеристика BIRFLU (рисунок 2)
ПРИМЕЧАНИЕ: Обратитесь к таблице 1 для всех буферных и медиа-композиций.
- Анализ экспрессии белка путем флуоресценции(рисунок 2A)и непрямой иммунофлуоресценции (рисунок2B)
- За день до заражения, семена 24-колодство пластин ы с Madin-Darby Canine kidney (MDCK) эпителиальных клеток (1 х 105 клеток / хорошо, трипликирует) в ткани культуры средств массовой информации и поддерживать пластины в 37 КК инкубатор с 5% CO2. Подготовьте достаточное количество скважин, чтобы оценить все выбранные антитела как в инфицировоке, так и в клетках, инфицированных БИРФЛУ.
ПРИМЕЧАНИЕ: Мы рекомендуем визуализировать клетки под световым микроскопом, чтобы подтвердить монослой перед началом вирусной инфекции. 90% монослой новизны клеток MDCK к моменту инфекции рекомендуется. - Подготовка разбавления WT или BIRFLU IAVs в инфекционных средствах массовой информации и заразить семенами MDCK клеток с множественностью инфекции (MOI) 0,1 бляшки формирования единиц (PFU) на клетку в конечном объеме 0,25 мл / хорошо инфекции средств массовой информации.
- Удалите среду культуры ткани со ступени 3.1.1 и дважды промойте клетки MDCK с помощью 1x фосфатно-буферного соливого раствора (PBS). Добавьте разбавления вируса от 3.1.2 до клеток MDCK и поместите пластины на качалке платформы в течение 1 ч при комнатной температуре, чтобы вирусное адсорбцию.
ПРИМЕЧАНИЕ: Зараженные мокклетки инкубируются только инфекционными носителями при отсутствии вируса. - После вирусной адсорбции (шаг 3.1.3), удалить вирусный инокулум по аспирации и добавить 1 мл пост-инфекции средств массовой информации, содержащей 1 мкг /мл TPCK-обработанный трипсин к каждой скважине. Инкубировать клетки на 18 ч в 5% CO2 увлажненный инкубатор при 33 градусах Цельсия.
- После 18 ч инфекции, удалить ткани культуры супернатант из 24-колодец пластин (3.1.4). Исправьте и permeabilize клетки с 0.25 мл/хорошо фиксации / пермяки раствор для 20 мин при комнатной температуре.
ПРИМЕЧАНИЕ: Подготовьте раствор фиксации/пермяки в дымовом капюшоне, чтобы предотвратить облучение формальдегидом. - Удалите раствор фиксации/пермяки со ступени 3.1.5, промойте клетки дважды 1x PBS и инкубация клеток с 0.25 мл/хорошо блокирующего раствора для 1 ч при комнатной температуре.
ПРИМЕЧАНИЕ: Переходке к следующему шагу или храните ячейки в блокирующем растворе при 4 градусах Цельсия на ночь. - Удалите блокирующий раствор (шаг 3.1.6) и добавьте 0,25 мл/ну (1 мкг/мл) моноклонального антитела мыши (MAb) против нуклеопротеина IAV, NP (HB-65) или 1:1,000 разбавления поликлональных антител кролика (pAb) против NLuc (см. Таблицаматериалов), оба разбавленных в антитела разбавления раствор (1x PBS, 2,5% BSA), и инкубировать клетки для 1 ч при 37 градусов по Цельсию.
- Удалите первичное антитело со ступени 3.1.7, промойте клетки три раза с 1x PBS и инкубировать их с 0,25 мл / колодец Техаса Красно-конъюгированных анти-мышей или анти-кроличье вторичных антител (см. Таблица материалов) разбавленной 1:200 в антителах раствор разбавления.
ПРИМЕЧАНИЕ: Клеточные ядра могут быть окрашены в то же время, добавив 0,5 мкг/мл 4',6'-diamidino-2-фенилиндол (DAPI) к тому же вторичному антител раствору. Инкубировать клетки в течение 1 ч при 37 градусах По Цельсию в темноте. Другие вторичные антитела, спряжение с другими флюорофорами могут быть использованы. - Удалите вторичные антитела и DAPI со ступени 3.1.8, промойте клетки три раза с 1x PBS. После мытья, оставьте клетки в 0,25 мл / колодец 1x PBS.
- Поместите пластину на стадии флуоресцентного микроскопа для обнаружения экспрессии репортера Венеры и Нлюка, а NP из инфицированных клеток с помощью надлежащих флуоресцентных фильтров. Захват изображений с помощью флуоресцентного микроскопа (20x увеличение) и объединить их с помощью программного обеспечения для редактирования изображений(рисунок 2A,B).
- За день до заражения, семена 24-колодство пластин ы с Madin-Darby Canine kidney (MDCK) эпителиальных клеток (1 х 105 клеток / хорошо, трипликирует) в ткани культуры средств массовой информации и поддерживать пластины в 37 КК инкубатор с 5% CO2. Подготовьте достаточное количество скважин, чтобы оценить все выбранные антитела как в инфицировоке, так и в клетках, инфицированных БИРФЛУ.
- Проанализируйте активность Nluc(Рисунок 2C)и репликацию вируса (рисунок2D).
- За день до заражения, семена 12-колодства пластин с mdCK клеток (2 х 105клеток / хорошо, трипликаты) с использованием тканей культуры средств массовой информации в 37 КС инкубатор с 5% CO2 достичь примерно 90% к моменту инфекции.
ПРИМЕЧАНИЕ: Перед инфекцией проверьте клетки под микроскопом, чтобы проверить монослой клеток MDCK. - День инфекции подготовить разбавления вирусов WT и BIRFLU в инфекционных носителях, чтобы заразить клетки MDCK (шаг 3.2.1.) в тройной с МВД 0,001 ПФУ в 0,5 мл/ хорошо. Удалите среду культуры ткани и мыть клетки MDCK дважды с 1x PBS.
- Добавьте разбавления вируса в монослои MDCK и допускайте вирусную адсорбцию при комнатной температуре в течение 1 ч на качалке платформы. После вирусной адсорбции, удалить вирус inoculum и добавить 1,5 мл пост-инфекции средств массовой информации, содержащей 1 мкг /мл TPCK-обработанных трипсина, к каждому колодцу. Инкубировать инфицированные клетки в 5% CO2 увлажняемого инкубатора при 33 градусах по Цельсию и собирать супернацианты в указанные временные точки, указанные в шаге 3.2.4.
- На 24, 48, 72, и 96 ч после инфекции (p.i.) собирать 150 зЛ ткани культуры супернатант из каждого колодца и хранить образцы в микроцентрифуге трубки при -80 градусов по Цельсию для выполнения анализов Nluc и вирусных титрования.
- Чтобы выполнить ассс деятельности Nluc, следуйте указаниям производителя. Во-первых, разморозить супернатант культуры тканей, хранящийся при -80 градусов по Цельсию (шаг 3.2.4) на льду.
ПРИМЕЧАНИЕ: Обратитесь к рекомендациям производителя и оптимизировать ассс, если это необходимо. - Подготовьте раствор проверки люциферазы (см. таблицуматериалов), разбавив субстрат Nluc 1:50 буфером разбавления. В белой плоской нижней 96-колодец микроплиты для анализов люциферазы, смешать 25 зл люциферазы анализ раствора с 10 до 25 Л из собранных образцов культуры ткани супернатант. Инкубировать смесь в течение 2-3 мин перед измерением люминесценции с помощью люминометра(рисунок 2C).
ПРИМЕЧАНИЕ: Наличие инфекционных вирусных частиц в супернационатах культуры тканей определяется флуоресценцией иммунного фокуса (Венера) или косвенным иммунофлуоресценцией (вирусное окрашивание антигена), как ранее описано23,32, 33,56. - За день до вирусных титров, семена MDCK клеток в 96-хорошо пластины (2 х 104 клетки / хорошо, трипликаты) с тканевой культуры средств массовой информации и позволяют клеткам достичь 90% слияния к моменту заражения в инкубаторе установлен на 37 градусов по Цельсию с 5% CO2.
- Используйте образцы супернатантной культуры тканей, которые были разморожены на льду (шаг 3.2.4.). Добавьте 90 qL инфекционных носителей к каждой из скважин в новой пластине 96-ну колодца, затем добавьте 10 зЛ супернатанта культуры таянит (шаг 3.2.4) к первому колодцу (ряд A). Используйте многоканальный трубчатый для смешивания и передачи 10 ЗЛ из строки А в строку B. Измените кончики между разбавлениями и хорошо перемешайте.
ПРИМЕЧАНИЕ: Эта процедура должна быть повторена до последней строки (H). Мы рекомендуем выполнять вирусные титрования в трипликациях для точной оценки вирусных титрах. - Удалить среды культуры тканей из клеток MDCK в 96-колодец пластин (шаг 3.2.7) и мыть дважды с 1x PBS. Добавьте 50 зЛ супернатантных разбавлений реплики 96-ну колодца, содержащей разбавления вируса (шаг 3.2.8) к каждой скважине в 96-хорошей пластине, содержащей клетки MDCK.
- Инкубировать 96-ну хорошо пластины на качалке платформы для 1 ч при комнатной температуре, чтобы вирусная адсорбция. После вирусной адсорбции, удалить инокулум и добавить 100 Л/хорошо пост-инфекции средств, содержащих 1 мкг /мл TPC-обработанный трипсин. Инкубировать инфицированные клетки в течение 12 ч в инкубаторе 33 градусов по Цельсию с 5% CO2.
- Так как BIRFLU выражает Венеру, количество инфицированных клеток можно непосредственно подсчитать с помощью флуоресцентного микроскопа. Кроме того, вирусные титры могут быть определены косвенные иммунофлуоресценции, как ранее описано с помощью антитела против вирусного белка23,56,57,59. Для последних, приступить к исправить / пермяки клеток и пятно с помощью анти-NP mAb HB-65, как описано в разделе 4.4.
- Определите вирусные титры, подсчитав количество флуоресцентно-образующих единиц (FFU)/mL с помощью формулы: ((количество FFU) х 20 x 1/разбавления(рисунок 2D).
- За день до заражения, семена 12-колодства пластин с mdCK клеток (2 х 105клеток / хорошо, трипликаты) с использованием тканей культуры средств массовой информации в 37 КС инкубатор с 5% CO2 достичь примерно 90% к моменту инфекции.
4. В Vivo Характеристика BIRFLU(Рисунок 3 и Рисунок 4)
- Инфекция мыши
ПРИМЕЧАНИЕ: Интраназальное заражение мышей было сделано, как ранее описано23. Для более подробного протокола инфекции IAV in vivo с использованием мышиной модели инфекции, мы рекомендуем просмотреть видео, связанное с предыдущей публикацией23. В этом разделе только кратко излагаются шаги, необходимые для мыши инфекции с BIRFLU.- Осмотрите мышей, чтобы оценить их здоровье и общий внешний вид. Подготовка разбавления BIRFLU в 1x PBS, чтобы привить мышей с 1 х 106 ПФУ BIRFLU в общем объеме 30 Л/мышь. Поддерживайте вирус на льду до прививки мыши.
ПРИМЕЧАНИЕ: Mock-инфицированных (1x PBS) мышей будет необходимо в качестве внутреннего контроля для визуализации. Поместите зараженных мышей в другую клетку, чем зараженные БИРФЛУ животных. - Анестезия от пяти до семи недель женщин BALB/c мышей интраперитоневого с 240-250 мг/кг трибромоэтанола (TBE) путем вставки иглы в каудальной 2/3 правой стороны живота. Затем верните мышь в клетку и подождите около 5 мин. Проверьте, что мышь под анестетом до прививки вируса отсутствием ног-щепотка рефлекса.
ПРИМЕЧАНИЕ: Инъекционные седативные средства рекомендуется над вдыхаемыми седативными средствами для инфекций гриппа in vivo, так как последние могут изменить поведение и поглощение вируса эпителием дыхательных путей. Кроме того, они также могут влиять на местные иммунные реакции легких и вмешиваться в in vivo изображения инфицированных мышей. Наконец, ингаляционные седативные средства сократили продолжительность эффекта, что было бы проблемой для in vivo изображений инфицированных животных. - Прививать мышей интраназасически с 30 зл подготовленных разбавления BIRFLU. Убедитесь, что мыши дышат должным образом, прежде чем вернуть их в клетку.
- Осмотрите мышей, чтобы оценить их здоровье и общий внешний вид. Подготовка разбавления BIRFLU в 1x PBS, чтобы привить мышей с 1 х 106 ПФУ BIRFLU в общем объеме 30 Л/мышь. Поддерживайте вирус на льду до прививки мыши.
- Мониторинг биолюминесценции мышей, инфицированных BIRFLU(Рисунок 4A)
ПРИМЕЧАНИЕ: В этой рукописи репортер выражение Nluc или Венера и вирусной репликации в легких мышей, инфицированных BIRFLU определяются в 3 дня после инфекции. Тем не менее, природа биолюминесценции изображения позволяет повторный мониторинг nluc выражение в отдельных BIRFLU-инфицированных животных без необходимости усыплять их для каждой экспериментальной точки времени. Для выполнения описанных экспериментальных процедур требуется система визуализации in vivo с изофлуранской анестезией. Ознакомиться с таблицей материалов, касающейся инструмента визуализации и программного обеспечения для изображений, используемого для получения изображений и анализа данных.- Бритье мышей груди для улучшения биолюминесценции сигнала. Откройте программное обеспечение для визуализации и нажмите Инициализация. Далее, установите параметры, которые будут использоваться, в том числе установка режима изображения на биолюминесценцию, автоматическая экономия, время экспозиции авто, открытый фильтр и т.д.
- Как только машина полностью инициализирована, включите изофлюранную анестезию системы. Поместите животных в анестезионную камеру. Мыши одновременно и слегка обезглавлена смесью кислородного газа и испаряется 1-2% изофруран.
- После того, как мыши обезболивают, управлять Nluc субстрата (см. таблицу материалов) разбавленной 1:10 в 1x PBS (окончательный том 100 л/мышь) через ретро-орбитальный маршрут с помощью шприца с иглой 22 G.
- Сразу же после Nluc реагент администрации, место животных в изображении инструмент с их сундуки вверх и мранде внутри многообразного конуса держать животное под анестетом во время изображения. Сразу же после закрытия двери изображения, нажмите Приобрести в программе программы(Рисунок 4A, сверху).
- После визуализации, вернуть мышей в клетки мониторинга их, пока они полностью выздоровел и выключить изофуран испаритель. Затем, приступить к ex vivo изображения легких мышей для оценки экспрессии гена репортера Венеры (раздел 4.3).
- Используйте программное обеспечение для визуализации для анализа приобретенных биолюминесценции данных. Используйте инструмент roI (регион интереса) для обозначения конкретного сигнала и выполнения измерений потока в интересуемом регионе (обычно вокруг груди)(рисунок 4A, дно). Хотя форма рентабельности инвестиций не имеет значения, более крупные ROIs, как правило, предпочитают захватывать всю область диффузии сигнала.
- Нажмите Мера. Оцените биолюминесценцию в фотонах, поскольку она обеспечивает абсолютное измерение выбросов фотона, сопоставимое с показателями выхода, обеспечиваемыми различными параметрами или приборами визуализации.
- Анализ флуоресценции у мышей, инфицированных BIRFLU(Рисунок 3 и Рисунок 4B)
- Соберите легкие мыши после in vivo изображения, как ранее описано23.
- Кратко, усыпление мышей со смертельной дозой TBE (500 мг/кг). Дезинфекция разреза с 70% этанола. С помощью скальпеля сделайте разрез от грудины до основания живота, а затем вырежьте ножницами со дна разреза в стороны. Далее, вырезать печеноченную вену (второй физический метод эвтаназии), чтобы кровоточить животное.
ПРИМЕЧАНИЕ: Чтобы избежать высокого фонового сигнала во время визуализации, важно свести к минимуму количество крови в легких (см. ниже).
- Кратко, усыпление мышей со смертельной дозой TBE (500 мг/кг). Дезинфекция разреза с 70% этанола. С помощью скальпеля сделайте разрез от грудины до основания живота, а затем вырежьте ножницами со дна разреза в стороны. Далее, вырезать печеноченную вену (второй физический метод эвтаназии), чтобы кровоточить животное.
- Поместите мышь в подошве лежачих, и использовать ножницы, чтобы сократить плевры и открыть грудную клетку. Впоследствии, удалить легкие, отрезав конец трахеи с ножницами, нежно держа легкие с щипками.
- Поместите легкие в шести-колодную пластину с 2 мл 1x PBS и мыть легкие три раза с 1x PBS.
ПРИМЕЧАНИЕ: Чтобы избежать загрязнения между образцами, очистите и дезинфицируют рассекающие инструменты между каждым животным.
- Поместите легкие в шести-колодную пластину с 2 мл 1x PBS и мыть легкие три раза с 1x PBS.
- Начните программное обеспечение для приобретения изображений, нажав на инициализацию и установите параметры для визуализации, включая настройку режима визуализации на флуоресценцию, автоматическую экономию, время экспозиции авто, возбуждение (500 нм) и выбросы (540 нм) фильтров.
- Когда машина инициализирована, поместите легкие в черный фоновый лоток, гарантируя, что ткани отделены друг от друга, ввести лоток в imager, и нажмите Приобрести на программу системы визуализации после закрытия двери изображения ( Рисунок 4B,верхняя).
- После визуализации немедленно удалите ткани и храните их на льду (4 кВ), если образцы обработаны в тот же день; или на трубе и сухом льду, чтобы заморозить их быстро, перед хранением их при -80 градусах Цельсия, если образцы будут обработаны позже в другой день.
- Для обработки изображений выберите инструмент ROI и нарисуйте roIs вокруг каждого из отдельных легких. Нажмите Мера. Затем, используя в результате средние измерения эффективности сияния, вычесть значения из макет-инфицированных мышей(рисунок 4B, дно).
ПРИМЕЧАНИЕ: С BIRFLU, есть хорошая корреляция уровней nluc и Венеры выражения, и распределение сигналов. Поэтому важно проанализировать экспрессию Нлюка (целая мышь) и Венеру (вырезанные легкие) из одного и того же животного и сохранить ту же ориентацию.
- Соберите легкие мыши после in vivo изображения, как ранее описано23.
- Оценка репликации BIRFLU в легких мышей(Рисунок 3 и Рисунок 4C)
- Гомогенизировать мышей легких для вирусной титрования налет ассее, как ранее описано23.
- Поместите легкие в гомогенизатор Dounce с 1 мл охлажденных носителей инфекции. Гомогенизировать легкие с пестиком в течение 1 мин при комнатной температуре, пока он полностью распалась и хранить образцы в стерильной трубке при температуре 4 градусов по Цельсию.
- Centrifuge образцы на 300 х г в течение 10 минут и собирать супернатант в стерильной трубке. Храните образцы на льду, если они будут использоваться в тот же день или заморозить их при -80 градусов по Цельсию для оценки вирусных титра на более позднее время.
ПРИМЕЧАНИЕ: Новый гомогенизатор Dounce должен использоваться для каждого образца легких. - Для выполнения зубного налета анализ, за день до выполнения вирусной титрования, семена шести-колодец пластин с mdCK клеток (5 х 105 клеток / хорошо) в ткани культуры средств массовой информации. Инкубировать клетки на ночь при 37 градусов с 5% CO 2, чтобы достичь 90% слияния на следующий день. Перед инфекцией подтвердите, что клетки образуют монослой под легким микроскопом.
- Подготовка 1:10 серийных разбавлений супернатанта из гомогенизированных образцов (шаг 4.4.1) в инфекционных носителях. Подготовьте микроцентрифугные трубки с 540 qL инфекционных носителей, добавьте 60 qL из гомогенизированного образца легких в первую трубку, смешайте трубачат вверх и вниз, а затем с помощью нового наконечника, перенесите 60 зл. Повторите этот серийный процесс разбавления до последнего разбавления.
ПРИМЕЧАНИЕ: По нашему опыту 7 разбавления достаточно, чтобы определить вирусные титры налет асссе из легких инфицированных мышей. - Вымойте клетки MDCK (шаг 4.4.3) дважды с 1x PBS и перенесите 500 л последовательно разбавленных образцов к каждому колодцу в шестиколодцной пластине. Поместите пластины на качалке платформы и позволяют вирусного поглощения происходит в течение 1 ч при комнатной температуре.
- После 1 ч вирусного поглощения, удалить вирусный инокулум, добавить 2 мл / хорошо наложения среды, содержащей 1 мкг/мл TPCK-обработанных трипсина, а затем инкубировать клетки при 33 КС под 5% CO2 в течение 3 дней.
- Исправить инфицированные клетки (шаг 4.4.6) с 1 мл/хорошо 4% формальдегида разбавленного в 1x PBS при комнатной температуре на 2 ч, затем тщательно удалить наложение среды и добавить 1 мл 1x PBS к каждой скважине. Для визуализации Венеры изображение шестиколовных пластин с системой визуализации для обнаружения флуоресценции.
ПРИМЕЧАНИЕ: Вирусные бляшки могут быть окрашены с помощью программного обеспечения для редактирования изображений (см. таблицу материалов). - Чтобы оценить экспрессию Nluc, визуализировать вирусные бляшки с помощью иммунодефицита с помощью анти-Nluc pAb. Для этого, удалить 1x PBS, пермяки клеток с помощью 0,5 мл / хорошо пермякового раствора в течение 15 минут при комнатной температуре.
- Удалить раствор пермяки, промыть клетки три раза с 1x PBS и блокировать с 0,5 мл / хорошо блокирующий раствор на 1 ч при комнатной температуре.
- Удалите блокирующий раствор со ступени 4.4.9 и инкубировать клетки 0,5 мл/колодец pAb anti-Nluc разбавленного 1:1,000 в растворе разбавления в течение 1 ч при 37 градусах Цельсия.
- Используйте комплект ABC Alkaline Phosphatase и комплект субстратаda DAB Peroxidase следуя рекомендации производителя для визуализации Nluc-выражения бляшек.
- Кратко, мыть клетки от 4.4.10 3 времени с 1x PBS и инкубировать их с 0.5 mL/наилучшим образом biotinylated anti-rabbit вторичного антитела для 1 h на 37 C.
- Удалить вторичное антитело, мыть клетки три раза с 1x PBS, и инкубировать с раствором ABC для 1 ч при 37 градусов по Цельсию. Вымойте клетки три раза с 1x PBS и визуализировать вирусные бляшки с DAB HRP субстрата Kit. Сканирование иммуноокрашенных бляшек с помощью обычного сканера.
ПРИМЕЧАНИЕ: Другие аналогичные комплекты для иммуно-пятна могут быть использованы.
- Покоите вирусные бляшки кристаллофиолетовым раствором на 1 ч при комнатной температуре. Отбросьте кристаллфиолетовый, трижды промойте тарелки водой, дайте пластинам высохнуть и снова просканите пластины.
- Чтобы определить вирусные титры, подсчитайте бляшки, обнаруженные после кристально фиолетового окрашивания. Сканирование бляшек с помощью обычного сканера. Рассчитайте вирус титр как единицы образования образования для формирования бляшек (PFU) на мл (PFU/mL).
- Чтобы оценить стабильность BIRFLU in vivo, вычислите процент вирусов, выражающих репортёр, подсчитайте количество кристаллофиолетовых бляшек (количество инфекционных вирусов, шаг 4.4.12) и сравните с количеством венер- и Nluc-выражающих бляшек ( шаг 4.4.7 и шаг 4.4.11, соответственно).
- Centrifuge образцы на 300 х г в течение 10 минут и собирать супернатант в стерильной трубке. Храните образцы на льду, если они будут использоваться в тот же день или заморозить их при -80 градусов по Цельсию для оценки вирусных титра на более позднее время.
Результаты
Поколение и характеристика BIRFLU in vitro (рисунок 1 и рисунок 2)
Рекомбинантный репликации компетентных IAV, выражающий два различных генов репортера (BIRFLU) был построен с использованием современных молекулярной биологии и плазмидных методов обратной генетики(рисунок 1). Здесь мы решили использовать Nluc из-за ряда преимуществ по сравнению с другими люциферасы, в том числе его небольшой размер, АТФ-независимость, большая интенсивность, и оптимизированный субстрат48,60. Nluc был клонирован в сегментHA IAV PR8 следуют свиной teschovirus (PTV) 2A расщепления сайта (2A) перед открытым чтением кадра (ORF) HA (Рисунок 1). ORF HA включил ажиотажные мутации, чтобы удалить исходные сигналы упаковки и избежать любой возможной рекомбинации. Полный сигнал упаковки HA был добавлен перед Nluc, чтобы обеспечить надлежащее включение модифицированного сегмента HA в virion и Nluc и HA выражение из того же вирусного сегмента РНК(рисунок 1). Кроме того, флуоресцентный белок Венера был клонирован в модифицированный сегмент IAV PR8 NS, который кодирует два вирусных белка NS1 и NEP из одной стенограммы32,36,41,54, 57. С этой целью Венера была слита в C-терминал NS1 и весь NEP ORF был клонирован вниз по течению pTV 2A расщепления сайт, который был помещен между NS1-Venus и NEP последовательностей (Рисунок 1). В конечном счете, эти две модифицированные HA и NS вирусные плазмидные конструкции были использованы в сочетании с остальной частью IAV PR8 обратной генетики плазмидов для создания BIRFLU (Рисунок 1). In vitro и in vivo характеристика BIRFLU была описана ранее55.
На рисунке 2, мы охарактеризовали in vitro BIRFLU путем определения уровня экспрессии Венеры, Нлюка и НП с использованием флуоресценции и непрямых подходов иммунофлуоресценции (рисунок2A,B). Слияние монослойных клеток MDCK были либо макет-инфицированных или инфицированных (MOI 0.1) с WT или BIRFLU PR8 вирусов и, на 18 ч после инфекции, Венера выражение было непосредственно оценено с помощью флуоресценции микроскопии (Рисунок 2A,B). Nluc(Рисунок 2A)и NP (Рисунок2B) выражение были визуализированы косвенным иммунофлуоресценции с использованием антител, специфических для каждого белка. Как и ожидалось, экспрессия Венеры и Нлука была обнаружена только в клетках, инфицированных BIRFLU, а не в клетках, инфицированных вирусом WT PR8. Кроме того, непрямая иммунофлуоресцентная микроскопия выявила выражение НП как в вТ, так и в инфицированных ВТ и БИРЛУ PR8 клетках. Никакое выражение Венеры, Nluc или NP не было обнаружено, как и ожидалось, в макет-инфицированных клеток(рисунок A,B).
Для оценки уровня экспрессии Nluc in vitro были инфицированы клетки MDCK (MOI 0.001) вирусами WT или BIRFLU PR8, а активность Nluc в супернациантах тканей оценивалась в 24, 48, 72 и 96 ч после инфекции(рисунок 2C). Только активность Nluc была обнаружена в супернациантах культуры тканей клеток MDCK, инфицированных BIRFLU(рисунок 2C). Активность Nluc в супернациантах культуры ткани была обнаружена уже в 24 ч после инфицирования с более высоким уровнем экспрессии при 96 ч после инфекции, скорее всего, потому, что цитопатический эффект (CPE), индуцированный во время выпуска вирусной инфекции, белок Nluc сохранен в ячейку. Для оценки пригодности BIRFLU в культивированных клетках, была также оценена кинетика роста вирусов WT и BIRFLU PR8(Рисунок 2D),а наличие инфекционного вируса в супернациантах культуры тканей было определено иммунофокусом (рисунок2D ). Примечательно, что кинетика репликации BIRFLU была сопоставима с вирусом WT PR8, хотя репликация BIRFLU была немного отложена и не достигла тех же вирусных титров, что и WT PR8. Тем не менее, BIRFLU удалось достичь титр 5 х 107 PFU/mL (Рисунок 2D), что свидетельствует о том, что экспрессия двух генов репортера в вирусном геноме не существенно мешает репликации BIRFLU в клетках MDCK.
Отслеживание инфекции BIRFLU у мышей(Рисунок3 и Рисунок 4)
Рисунок 3 представляет собой схемную диаграмму потока для оценки динамики BIRFLU в мышиной модели инфекции IAV. От пяти до семи недель женщин BALB / C мышей были либо макет инфицированных 1x PBS или инфицированных 1 х 106 ПФУ BIRFLU интраназно. В 3 дня после инфекции, мышей были под атефетацированных с изофлюраном, а затем вводят с Nluc субстрат ретро-орбитально. Все мыши были немедленно помещены в инструмент IVIS и сигнал Nluc был оценен in vivo используя IVIS. Затем мышей усыпили, а легкие собирали. Вырезанные легкие были затем проанализированы ex vivo с помощью in vivo imager для определения интенсивности флуоресценции через экспрессию Венеры. Наконец, легкие мышей были однородны, а вирусные титры и стабильность определялись налетом. Таблички оценивались по прямой флуоресценции Венеры, иммуностоцингом с использованием антител, специфических для Нлюка, и кристаллофийным окрашиванием.
Ранее описанные репликации компетентных репортер-выражение IAVs выразить один ген репортера, чаще всего либо флуоресцентные или биолюминесцентные белки, как суррогат для вирусной инфекции и репликации. Тем не менее, BIRFLU, в состоянии выразить оба типа репортер генов на вирусную инфекцию. Для оценки корреляции между биолюминесценцией (in vivo image) и флуоресценцией (ex vivo image) после инфекции BIRFLU, от пяти до семи недель самки BALB/c мышей были инсценированы 1x PBS или привиты с BIRFLU (106 PFU) интраназанически . Активность Nluc(рисунок 4A) была оценена администрацией субстрата Nluc, вводили ретро-орбитально в 3 дня после заражения с помощью инструмента визуализации in vivo. Мы решили оценить биолюминесценции на 3-й день, потому что предыдущие исследования показали, что репликация IAV, в том числе PR8, пики между днями 2 и 4 после инфекции24,54. Биолюминесценция была проверена(рисунок 4A, верхняя часть) и используется для расчета среднего общего потока (Flux (журнал10 p/s) (рисунок4A, внизу). Как и предсказывалось, мыши, привитые BIRFLU, показали высокую биолюминесценцию, но никакого сигнала у инфицированных макетами мышей не было обнаружено. После этого легкие инфицированных мышей были собраны и экспрессия Венеры была оценена с помощью изображения ex vivo(рисунок 4B, сверху). Кроме того, была рассчитана средняя эффективность ливоресценции(рисунок 4B,внизу). Вырезанные легкие мышей были также однородны для определения вирусных титров и генетической стабильности BIRFLU in vivo(рисунок 4C,D). Генетическая стабильность BIRFLU была проанализирована с помощью анализа бляшек с использованием вирусов, изолированных от легких мышей и флуоресцентной микроскопии (Венера, верхняя), иммуностоинга (Nluc, среднего) и кристаллического фиолетового окрашивания (внизу). BIRFLU оправился от мышей легких смогли сформировать бляшки и stably выражает оба репортера генов(Рисунок 4C). Примечательно, что мы наблюдали хорошую корреляцию между биолюминесценцией и флуоресценцией сигналов с вирусной репликации.
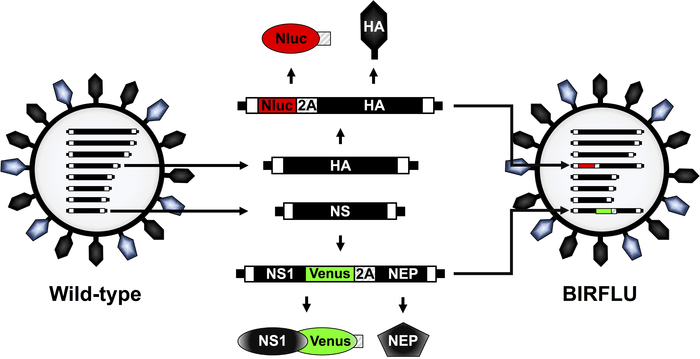
Рисунок 1: Схематическое представление IAV PR8 WT и BIRFLU virion структуры и генома сегментов. IAV окруженлип бислой липидов, содержащий два основных вирусных гликопротеина гемагглютинин (HA; черный) и нейраминидаза (NA; синий). IAV содержат восемь одноцепочных, отрицательно-смысл, РНК сегментов (PB2, PB1, PA, HA, NP, NA, M, и NS). Каждый вирусный сегмент содержит некодифицированные области (NCR) на 3' и 5' концах (черные ящики). Кроме того, в конце 3' и 5'в конце вирусных (v)RNAs являются упаковочные сигналы, ответственные за эффективное отакление vRNAs в зарождающиеся вирионы (белые ящики). IAV PR8 HA и NS вирусных сегментов и продуктов указаны в черном цвете. Последовательности Nluc, Venus и PTV 2A обозначены в красных, зеленых и полосатых коробках, соответственно. Также указывается схематическое представление модифицированных сегментов HA и NS, выражающих Nluc и Venus, соответственно, в BIRFLU. Эта цифра была адаптирована из Nogales et al.55. Пожалуйста, нажмите здесь, чтобы просмотреть большую версию этой цифры.

Рисунок 2: Характеристика БирЛУ. (A, B) Анализ экспрессии белка путем прямой флуоресценции и иммунофлуоресценции. Клетки MDCK были инсценированы или инфицированы (MOI 0.1) вирусами PR8 WT или BIRFLU. Инфицированные клетки были зафиксированы на 18 ч после инфекции, чтобы непосредственно визуализировать экспрессию Венеры путем прямой флуоресцентной микроскопии и визуализировать Nluc (A) и вирусное выражение NP (B) с использованием специфических антител и косвенной иммунофлуоресценции. Ядра были запятнаны DAPI. Отображаются репрезентативные изображения (20-x увеличение). Шкала баров 100 мкм. (C, D) Кинетика роста PR8 WT и BIRFLU. Активность Nluc(C) и вирусные титры (D ) в супернациантах культуры тканей из инфицированных клеток MDCK (MOI 0.001) с вирусами WT и BIRFLU PR8 были оценены в указанное время после инфицирования. Данные представляют собой средства и SD тройных. Вирусные титры определялись иммунофокусом (FFU/mL). Пунктирная линия обозначает предел обнаружения (200 FFU/ml). Эта цифра была адаптирована из Nogales et al.55. Пожалуйста, нажмите здесь, чтобы просмотреть большую версию этой цифры.
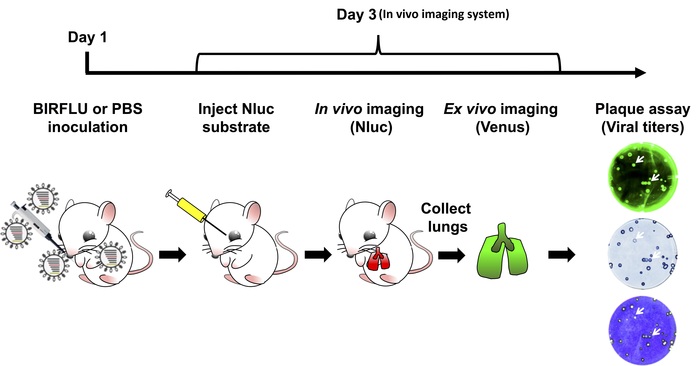
Рисунок 3: Схематическое представление для изучения BIRFLU у мышей. Выражение генов репортера Nluc и Venus оценивалось у мышей, инфицированных 1 x 10⁶ PFU BIRFLU с использованием in vivo или ex vivo.. Короче говоря, на 1-й, 5-7 недельный самка МЫшей BALB/c была инсценирована (1x PBS) или привитана 1 х 106 ПФУ BIRFLU интраназанически. На 3-й день после инфекции, мышей были слегка анестезируется с помощью изофларан и Nluc субстрата был введен ретро-орбитально. Сигнал Nluc был непосредственно оценен с помощью in vivo изображений. Сразу же после визуализации мышей усыпили, а экспрессию Венеры в целых вырезанных легких анализировали с помощью изображения ex vivo. Восстановленные легкие мышей были однородны для оценки репликации вируса и стабильности с помощью зубного налета. Стрелки указывают корреляцию между флуоресценцией (Венера), иммуностогированием (Nluc) и кристально фиолетовым окрашиванием. Пожалуйста, нажмите здесь, чтобы просмотреть большую версию этой цифры.
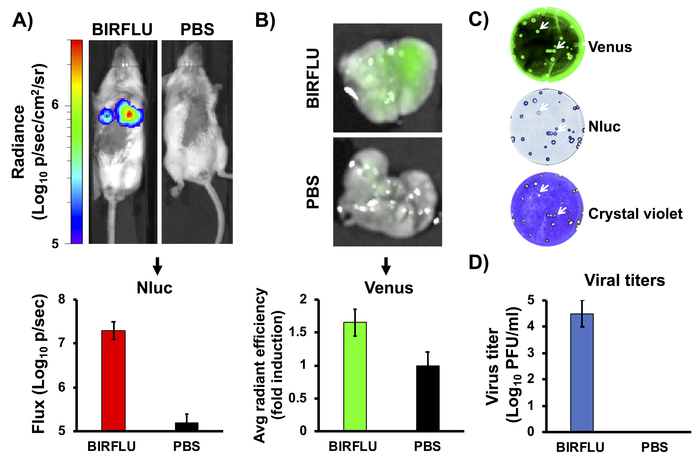
Рисунок 4: В vivo биолюминесценции и флуоресценции выражение. Самки от пяти до семи недель BALB/c мышей были макет-инфицированных (1x PBS) или прививки с 1 х 106 ПФУ BIRFLU интраназно. На 3-й день после инфекции, Nluc деятельности (A) во всей мыши была определена. Репрезентативные изображения одной мыши, показывающие шкалу сияния (p/sec/cm 2/sr). Значения биолюминесценции сияния были количественно и средний общий поток показан (Flux (Log10 p/s). После Nluc изображений, легкие были собраны для изображения ex vivo (B). Представлены представительные фотографии из целых легких. Для количественной оценки выражения Венеры были рассчитаны средние значения регионов, представляющих интерес (ROIs), до легкой автофлуоресценции от инфицированных макетами мышей и изменения складок. Для анализа генетической устойчивости BIRFLU in vivo вирусы, извлеченные из легких мышей, были проанализированы с помощью анализа бляшек с помощью флуоресцентной микроскопии (Венера, верхняя), иммуностоинга (Nluc, среднего) и кристаллического фиолетового окрашивания (внизу) (C). Отображаются репрезентативные изображения с одной мыши. Для оценки репликации вируса, целые легкие были однородны после визуализации и используются для заражения клеток MDCK и определить вирусные титры по налету анализ (PFU/mL) (D). Стрелки указывают корреляцию между флуоресценцией (Венера), иммуностогированием (Nluc) и кристально фиолетовым окрашиванием. Бары представляют среднее SD ситра вирусов легких. Эта цифра была адаптирована из Logales et al.55. Пожалуйста, нажмите здесь, чтобы просмотреть большую версию этой цифры.
| Ткань культуры средств массовой информации и решений | Состав | Хранения | Использовать |
| Ткань культуры средств массовой информации: Dulbecco в модифицированных Eagle в среде (DMEM), 10% фетальной сыворотки крупного рогатого скота (FBS), 1% пенициллин-Streptomycin-L-глутамин (PSG)(DMEM 10% FBS 1% PSG). | 445 мл DMEM, 50 мл FBS и 5 мл 100x PSG. | 4 кк с | Обслуживание ячеек MDCK |
| Постинфекция СМИ: DMEM 0,3% Бовин Альбумин (BA), 1% PSG(DMEM 0,3% BA 1% PSG). | 491 мл DMEM, 4,2 мл 35% BA и 5 мл 100x PSG | 4 кк с | Обслуживание клеток MDCK после вирусной инфекции |
| 10x фосфат буферного солья (PBS) | 80 г NaCl, 2 г KCl, 11,5 г Na2HPO4.7H2O, 2 г KH2PO4. Добавить ddH2O до 1 л. Отрегулируйте рН до 7,3 | Температура в комнате | Для подготовки 1x PBS |
| 1x PBS | Разбавить 10x PBS с ddH2O | Температура в комнате | Клетки мытья |
| Инфекция СМИ: 1x PBS, 0,3% BA, 1% пенициллин-стрептомицин (PS)(PBS/BA/PS). | 487 мл 1x PBS стерильный, 4,2 мл 35% BA и 5 мл 100x 1% PS (100 U/mL) | 4 кк с | Вирусные инфекции |
| Решение фиксации/пермяки: 4% формальдегида, 0,5% тритон X-100, разбавленный в 1x PBS. | 400 мл нейтрального буферного формалина 10%, 5 мл Triton X-100 и 595 мл 1x PBS | Температура в комнате | Исправление и пермяки клеток MDCK. |
| Блокирующее решение: 2.5% Бовин сывороточный альбомин (BSA) в 1x PBS. | 2,5 г BSA в 97,5 мл 1x PBS | 4 кк с | Блокирующее решение для иммунофлуоресценции и анализов налета. |
| Раствор разбавления антител (1% BSA в 1x PBS) | 1 г BSA в 99 мл 1x PBS | 4 кк с | Разбавление первичных и вторичных антител. |
| 0,1% кристаллофийно-фиолетового раствора | 1 г кристаллофийного фиолетового в 400 мл метанола. Добавить 600 мл ddH2O | Температура в комнате | Окрашивание клеток MDCK в зубной налет анализы. |
| Тосильсульфонил фенилаланил хлорометил кетон (ТПКК) - обработанный трипсин | Подготовка 1000x бульонный раствор на 1 мг/мл в ddH2O | -20 КК | Для вирусных инфекций. |
Таблица 1: Ткань культуры средств массовой информации и решений.
Обсуждение
Исследователи полагались на рекомбинантных репортер-выражение вирусов в качестве жизненно важных молекулярных инструментов, чтобы понять и расширить на текущее понимание вирусной репликации и патогенеза26,27,28, 29 , 30 год , 31 год , 32 год , 33 , 34 , 35 лет , 36 , 37 , 38 , 39 , 40 г. , 41 год , 54. Наиболее часто излюбленными генами репортера являются люциферазы и флуоресцентные белки, главным образом благодаря технологическим достижениям в их идентификации, разработке улучшенных вариантов и обнаружению с помощью технологий визуализации43 , 44 , 45 г. , 46 , 47 год , 48. Рекомбинантные вирусы репортера часто используются для ускорения вирусологических анализов, изучения динамики вирусов in vitro и in vivo, а также для проверки эффективности утвержденных в настоящее время или новых вакцин и терапевтических подходов26, 27,28,29,30,31,32,33,34,35, 36,37,38,39,40,41,54. К сожалению, в случае IAV, прошлые исследования были ограничены выражением одного гена репортера, что препятствует типу исследования, которое может быть проведено 26,27,28,29 , 30 год , 31 год , 32 год , 33 , 34 , 35 лет , 36 , 37 , 38 , 39 , 40 г. , 41 год , 54. Чтобы избежать этого ограничения, мы создали репликации компетентных би-репортер IAV, который выражает Nluc luciferase и Венера флуоресцентный белок (BIRFLU).
В этом докладе мы описываем характеристику in vitro BIRFLU и экспериментальные подходы к использованию BIRFLU для отслеживания вирусной инфекции in vivo с помощью мышиной модели инфекции IAV. Выражение BIRFLU Nluc и Venus коррелировало с вирусными титрами. Кроме того, BIRFLU оставался стабильным и продолжал выражать оба гена репортера после того, как выздоровел из легких инфицированных мышей. Такой подход предоставляет исследователям прекрасную возможность изучать БПЛА в культивированных клетках и в моделях животных, включая выявление и разработку новых терапевтических альтернатив для лечения инфекций ИАВ.
Хотя BIRFLU был создан с использованием позвоночника PR8, другие рекомбинантные IAV с использованием различных типов, подтипа или вирусного штамма позвоночника могут быть созданы с использованием того же экспериментального подхода. Аналогичным образом, в этом докладе мы описали экспериментальные процедуры использования BIRFLU в мышиной модели IAV. Тем не менее, BIRFLU может быть ценной технологией для оценки инфекции IAV в других животных моделях.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
Исследования вируса гриппа в лаборатории LM-S частично финансируется Нью-йоркским центром передового опыта по гриппу (NYICE) (NIH 272201400005C), членом НИАИД Центры передового опыта в области исследований и эпиднадзора за гриппом (CEIRS) контракт No. HHSN272201400005C (NYICE) и Министерством обороны (DoD) Программа медицинских исследований (PRMRP) грант W81XWH-18-1-0460.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 12-луночный планшет для клеточных культур | Greiner Bio-one | 665102 | |
| 24-луночный планшет для клеточных культур | Greiner Bio-one | 662160 | |
| 6-луночный планшет для клеточных культур | Greiner Bio-one | 657160 | |
| 96-луночный планшет для клеточных культур | Greiner Bio-one | 655-180 | |
| Adobe Photoshop CS4 | Adobe | Это программное обеспечение используется в 3.1.10 и 4.4.7 | |
| Бовин Альбумин раствор (БА) | Sigma-Aldrich | A7409 | Хранить при 4 ° C |
| Bovin Serum Albumin (BSA) | Sigma-Aldrich | A9647 | Store at 4 ° C |
| Чашки для клеточных культур 100 мм | Greiner Bio-one | 664-160 | |
| ChemiDoc MP Imaging System | BioRad | Этот инструмент используется в 4.4.7 | |
| Crystal Violet | Thermo Fisher Scientific | C581-100 | Хранить при комнатной температуре |
| Dounce Tissue Grinders | Thomas Scientific | 7722-7 | |
| Dulbecco' s модифицированный Eagle' s среда (DMEM) | Corning Cellgro | 15-013-CV | Хранить при 4 ° C |
| Фетальная бычья сыворотка (FBS) | Seradigm | 1500-050 | хранить при -20 °deg; C |
| Самки мышей BALB/c в возрасте от 5 до 7 недель | Национальный институт рака (NCI) | 555 | |
| Изофлуран | Baxter | 1001936040 | хранить при комнатной температуре |
| IVIS Spectrum | PerkinElmer | 124262 | Этот прибор используется для визуализации in vivo (4.2 и 4.3) |
| IX81 Моторизованный инвертированный микроскоп | Olympus Olympus IX81 | ||
| Living Image 4.7.2 программное обеспечение | PerkinElmer | Этот прибор используется для визуализации in vivo (4.2 и 4.3) | |
| Lumicount | Packard | Этот прибор используется для количественной оценки активности люциферазы (3.2.6) | |
| Эпителиальные клетки собачьей почки (MDCK) Мадина-Дарби | ATCC | CCL-34 | |
| Моноклональное антитело против NP вируса гриппа А HB-65 | ATCC | H16-L10-4R5 | Хранить при -20 ° Реагент для |
| анализа C Nano-Glo Luciferase | Promega | N1110 | Этот реагент используется для измерения активности Nluc. Хранить при -20 °deg; C |
| Нейтральный буферизованный формалин 10% | EMD | 65346-85 | Хранить в RT |
| Nunc MicroWell 96-луночные микропланшеты | Thermo Fisher Scientific | 269620 | |
| Пенициллин/Стрептомицин (PS) 100x | Corning | 30-00-CI | хранить при -20 ° C |
| пенициллин/стрептомицин/L-глутамин (PSG) 100x | Corning | 30-009-CI | хранить при -20 ° C |
| Retiga 20000R Fast1394 Камера | Qimaging | Сканер Retiga 2000R | |
| HP | |||
| Texas Красные конъюгированные антитела против мышей и кроликов вторичные антитела | Jackson | 715-075-150 | Хранить при -20 ° C |
| Тозилсульфонилфенилланилхлорметилкетон (TPCK) обработанный трипсин | Sigma-Aldrich | T8802 | Хранить при -20 °°; C |
| Triton X-100 | J.T.Baker | X198-07 | Магазин в RT |
| Vmax Кинетический планшетный ридер | Молекулярные устройства |
Ссылки
- Palese, P., Shaw, M. L. Orthomyxoviridae: The Viruses and Their Replication. Fields Virology. Knipe, D. M., Howley, P. M., Griffin, D. E., Lamb, R. A., Martin, M. A. , 5th edition, Lippincott Williams and WIlkins. (2007).
- Martinez-Sobrido, L., Peersen, O., Nogales, A. Temperature Sensitive Mutations in Influenza A Viral Ribonucleoprotein Complex Responsible for the Attenuation of the Live Attenuated Influenza Vaccine. Viruses. 10 (10), (2018).
- Nogales, A., Martinez-Sobrido, L. Reverse Genetics Approaches for the Development of Influenza Vaccines. International Journal of Molecular Sciences. 18 (1), (2016).
- Neumann, G., Noda, T., Kawaoka, Y. Emergence and pandemic potential of swine-origin H1N1 influenza virus. Nature. 459 (7249), 931-939 (2009).
- Louie, J. K., et al. A review of adult mortality due to 2009 pandemic (H1N1) influenza A in California. PLoS One. 6 (4), e18221(2011).
- Barr, I. G., et al. Epidemiological, antigenic and genetic characteristics of seasonal influenza A(H1N1), A(H3N2) and B influenza viruses: basis for the WHO recommendation on the composition of influenza vaccines for use in the 2009-2010 Northern Hemisphere season. Vaccine. 28 (5), 1156-1167 (2010).
- Simonsen, L., et al. Impact of influenza vaccination on seasonal mortality in the US elderly population. A.M.A. archives of internal medicine. 165 (3), 265-272 (2005).
- McLean, H. Q., Peterson, S. H., King, J. P., Meece, J. K., Belongia, E. A. School absenteeism among school-aged children with medically attended acute viral respiratory illness during three influenza seasons, 2012-2013 through 2014-2015. Influenza and Other Respiratory Viruses. 11 (3), 220-229 (2017).
- Principi, N., Esposito, S. Protection of children against influenza: Emerging problems. Human Vaccines and Immunotherapeutics. , 1-8 (2017).
- Falsey, A. R., Treanor, J. J., Tornieporth, N., Capellan, J., Randomized Gorse, G. J. double-blind controlled phase 3 trial comparing the immunogenicity of high-dose and standard-dose influenza vaccine in adults 65 years of age and older. Journal of Infectious Diseases. 200 (2), 172-180 (2009).
- Fuller, J. D., et al. Influenza vaccination of human immunodeficiency virus (HIV)-infected adults: impact on plasma levels of HIV type 1 RNA and determinants of antibody response. Clinical Infectious Diseases. 28 (3), 541-547 (1999).
- Carrat, F., Flahault, A. Influenza vaccine: the challenge of antigenic drift. Vaccine. 25 (39-40), 6852-6862 (2007).
- Doherty, P. C., Kelso, A. Toward a broadly protective influenza vaccine. Journal of Clinical Investigation. 118 (10), 3273-3275 (2008).
- Fiore, A. E., et al. Prevention and control of influenza with vaccines: recommendations of the Advisory Committee on Immunization Practices (ACIP), 2010. MMWR Recommendations and Reports. 59 (RR-8), 1-62 (2010).
- Pica, N., Palese, P. Toward a universal influenza virus vaccine: prospects and challenges. Annual Review of Medicine. 64, 189-202 (2013).
- To, K. K., Chan, J. F., Chen, H., Li, L., Yuen, K. Y. The emergence of influenza A H7N9 in human beings 16 years after influenza A H5N1: a tale of two cities. Lancet Infectious Diseases. 13 (9), 809-821 (2013).
- Baker, S. F., Nogales, A., Santiago, F. W., Topham, D. J., Martinez-Sobrido, L. Competitive detection of influenza neutralizing antibodies using a novel bivalent fluorescence-based microneutralization assay (BiFMA). Vaccine. 33 (30), 3562-3570 (2015).
- He, W., Mullarkey, C. E., Miller, M. S. Measuring the neutralization potency of influenza A virus hemagglutinin stalk/stem-binding antibodies in polyclonal preparations by microneutralization assay. Methods. , (2015).
- Kayali, G., et al. Testing human sera for antibodies against avian influenza viruses: horse RBC hemagglutination inhibition vs. microneutralization assays. Journal of Clinical Virology. 43 (1), 73-78 (2008).
- Stephenson, I., et al. Reproducibility of serologic assays for influenza virus A (H5N1). Emerging Infectious Diseases. 15 (8), 1252-1259 (2009).
- Maher, J. A., DeStefano, J. The ferret: an animal model to study influenza virus. Lab Animal (NY). 33 (9), 50-53 (2004).
- Webster, R. G., Cox, N., Stoehr, K. WHO/CDS/CSR/NCS/2002.5 Rev. 1. , (2002).
- Rodriguez, L., Nogales, A., Martínez-Sobrido, L. Influenza A Virus Studies in a Mouse Model of Infection. Journal of Visualized Experiments. (127), (2017).
- Cox, A., Baker, S. F., Nogales, A., Martínez-Sobrido, L., Dewhurst, S. Development of a mouse-adapted live attenuated influenza virus that permits in vivo analysis of enhancements to the safety of live attenuated influenza virus vaccine. Journal of Virology. 89 (6), 3421-3426 (2015).
- Steel, J., Lowen, A. C., Mubareka, S., Palese, P. Transmission of influenza virus in a mammalian host is increased by PB2 amino acids 627K or 627E/701N. PLoS Pathogens. 5 (1), e1000252(2009).
- Tran, V., Moser, L. A., Poole, D. S., Mehle, A. Highly sensitive real-time in vivo imaging of an influenza reporter virus reveals dynamics of replication and spread. Journal of Virology. 87 (24), 13321-13329 (2013).
- Fukuyama, S., et al. Multi-spectral fluorescent reporter influenza viruses (Color-flu) as powerful tools for in vivo studies. Nature Communications. 6, 6600(2015).
- Manicassamy, B., et al. Analysis of in vivo dynamics of influenza virus infection in mice using a GFP reporter virus. Proceedings of the National Academy of Sciences U S A. 107 (25), 11531-11536 (2010).
- Perez, J. T., Garcia-Sastre, A., Manicassamy, B. Insertion of a GFP reporter gene in influenza virus. Current Protocols in Microbiology. , Chapter 15 Unit 15G 14 (2013).
- Reuther, P., et al. Generation of a variety of stable Influenza A reporter viruses by genetic engineering of the NS gene segment. Scientific Reports. 5, 11346(2015).
- Tran, V., et al. Multi-Modal Imaging with a Toolbox of Influenza A Reporter Viruses. Viruses. 7 (10), 5319-5327 (2015).
- Breen, M., Nogales, A., Baker, S. F., Perez, D. R., Martinez-Sobrido, L. Replication-Competent Influenza A and B Viruses Expressing a Fluorescent Dynamic Timer Protein for In Vitro and In Vivo Studies. PLoS One. 11 (1), e0147723(2016).
- Nogales, A., Baker, S. F., Martinez-Sobrido, L. Replication-competent influenza A viruses expressing a red fluorescent protein. Virology. , 206-216 (2014).
- Nogales, A., et al. Replication-competent fluorescent-expressing influenza B virus. Virus Research. 213, 69-81 (2015).
- Avilov, S. V., et al. Replication-competent influenza A virus that encodes a split-green fluorescent protein-tagged PB2 polymerase subunit allows live-cell imaging of the virus life cycle. Journal of Virology. 86 (3), 1433-1448 (2012).
- Breen, M., Nogales, A., Baker, S. F., Martínez-Sobrido, L. Replication-Competent Influenza A Viruses Expressing Reporter Genes. Viruses. 8 (7), (2016).
- Eckert, N., et al. Influenza A virus encoding secreted Gaussia luciferase as useful tool to analyze viral replication and its inhibition by antiviral compounds and cellular proteins. PLoS One. 9 (5), e97695(2014).
- Karlsson, E. A., et al. Visualizing real-time influenza virus infection, transmission and protection in ferrets. Nature Communications. 6, 6378(2015).
- Czako, R., et al. In Vivo Imaging of Influenza Virus Infection in Immunized Mice. MBio. 8 (3), (2017).
- Harding, A. T., Heaton, B. E., Dumm, R. E., Heaton, N. S. Rationally Designed Influenza Virus Vaccines That Are Antigenically Stable during Growth in Eggs. MBio. 8 (3), (2017).
- DiPiazza, A., et al. Pandemic 2009 H1N1 Influenza Venus reporter virus reveals broad diversity of MHC class II-positive antigen-bearing cells following infection in vivo. Scientific Reports. 7 (1), 10857(2017).
- Yan, D., et al. Replication-Competent Influenza Virus and Respiratory Syncytial Virus Luciferase Reporter Strains Engineered for Co-Infections Identify Antiviral Compounds in Combination Screens. Biochemistry. 54 (36), 5589-5604 (2015).
- Shaner, N. C., Patterson, G. H., Davidson, M. W. Advances in fluorescent protein technology. Journal of Cell Science. 120 (Pt 24), 4247-4260 (2007).
- Shaner, N. C., Steinbach, P. A., Tsien, R. Y. A guide to choosing fluorescent proteins. Nature Methods. 2 (12), 905-909 (2005).
- Kelkar, M., De, A. Bioluminescence based in vivo screening technologies. Current Opinion in Pharmacology. 12 (5), 592-600 (2012).
- Welsh, D. K., Noguchi, T. Cellular bioluminescence imaging. Cold Spring Harbor Protocols. 2012 (8), (2012).
- Zhao, H., et al. Emission spectra of bioluminescent reporters and interaction with mammalian tissue determine the sensitivity of detection in vivo. Journal of Biomedical Optics. 10 (4), 41210(2005).
- Stacer, A. C., et al. NanoLuc reporter for dual luciferase imaging in living animals. Molecular Imaging. 12 (7), 1-13 (2013).
- Vintersten, K., et al. Mouse in red: red fluorescent protein expression in mouse ES cells, embryos, and adult animals. Genesis. 40 (4), 241-246 (2004).
- Stacer, A. C., et al. NanoLuc reporter for dual luciferase imaging in living animals. Mol Imaging. 12 (7), 1-13 (2013).
- Schoggins, J. W., et al. Dengue reporter viruses reveal viral dynamics in interferon receptor-deficient mice and sensitivity to interferon effectors in vitro. Proc Natl Acad Sci U S A. 109 (36), 14610-14615 (2012).
- Pan, W., et al. Visualizing influenza virus infection in living mice. Nat Commun. 4, 2369(2013).
- Heaton, N. S., et al. In vivo bioluminescent imaging of influenza a virus infection and characterization of novel cross-protective monoclonal antibodies. J Virol. 87 (15), 8272-8281 (2013).
- Nogales, A., Baker, S. F., Martínez-Sobrido, L. Replication-competent influenza A viruses expressing a red fluorescent protein. Virology. 476, 206-216 (2015).
- Nogales, A., et al. A novel fluorescent and bioluminescent Bi-Reporter influenza A virus (BIRFLU) to evaluate viral infections. Journal of Virology. , (2019).
- Nogales, A., et al. Influenza A Virus Attenuation by Codon Deoptimization of the NS Gene for Vaccine Development. Journal of Virology. 88 (18), 10525-10540 (2014).
- Nogales, A., DeDiego, M. L., Topham, D. J., Martinez-Sobrido, L. Rearrangement of Influenza Virus Spliced Segments for the Development of Live-Attenuated Vaccines. Journal of Virology. 90 (14), 6291-6302 (2016).
- National Research Council (U.S.). Committee for the Update of the Guide for the Care and Use of Laboratory Animals., Institute for Laboratory Animal Research (U.S.) & National Academies Press (U.S.). Guide for the care and use of laboratory animals. , 8th edn, National Academies Press. (2011).
- Nogales, A., Martinez-Sobrido, L., Chiem, K., Topham, D. J., DeDiego, M. L. Functional Evolution of the 2009 Pandemic H1N1 Influenza Virus NS1 and PA in Humans. Journal of Virology. 92 (19), (2018).
- Hall, M. P., et al. Engineered luciferase reporter from a deep sea shrimp utilizing a novel imidazopyrazinone substrate. ACS Chemical Biology. 7 (11), 1848-1857 (2012).
Перепечатки и разрешения
