Представлен протокол для использования системы CRISPR-Cas9 для сокращения производства белка во взрослом мозге пчел для проверки специфики антител.
Методическая статья
Анти-RDL и Anti-mGlutR1 Рецепторы Антитела Тестирование в медоносных пчел мозга разделы с помощью CRISPR-Cas9
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Кластер регулярно межпространственных коротких палиндромных повторов (CRISPR)/CRISPR-ассоциированный белок 9 (Cas9) является методом редактирования генов, широко используемым в исследованиях функции генов. Мы используем этот метод в этом исследовании, чтобы проверить на специфику антител, разработанных против насекомого ГАМКрецептора субъединицы Сопротивление диелдрина (RDL) и метаботропных глутаматрецептора mGlutR1 (mGluRA). Антитела были созданы в кроликов против конъюгированных пептидов, характерных для плодовых мушек (Drosophila melanogaster), а также медоносных пчел (Apis mellifera). Мы использовали эти антитела в секциях мозга медоносных пчел для изучения распределения рецепторов в мозге медоносных пчел. Антитела были сродство очищены от пептида и протестированы с иммуноблоттингом и классический метод preadsorption с пептидками конъюгированных, чтобы показать, что антитела специфичны для соответствующих пептида конъюгированных против которых они были подняты. Здесь мы разработали метод CRISPR-Cas9 для проверки на снижение белковых целей в мозге 48 ч после инъекции CRISPR-Cas9 с направляющими РНК, предназначенными для соответствующего рецептора. Метод CRISPR-Cas9 также может быть использован в поведенческом анализе у взрослых пчел, когда один или несколько генов должны быть изменены.
Введение
Недавно обнаруженная система CRISPR/Cas9 является мощным инструментом, который был использован для изменения геномной ДНК в различных модельных системах и организмах. Он ускорил биомедицинские исследования и крупные технологические прорывы, сделав модификацию генома более эффективной и надежной, чем предыдущие методы1. Родом из бактерий S. pyogenes, система опирается на эндонуклеазы Cas9, чья активность приводит к двухцепочечным перерывам (DSBs) в ДНК, и руководство РНК (gRNA), который направляет белок Cas9 в конкретное, последовательно-зависимое место2. Двухцепочечные перерывы, генерируемые CRISPR/Cas9, могут быть устранены с помощью негомологического конца присоединения (NHEJ), процесса, подверженного ошибкам, который может привести к смещению кадров, или непосредственному ремонту гомологии при присутствующем донорском шаблоне. Сама gRNA состоит из целевой CRISPR РНК (crRNA) и универсальной трансактивационной crRNA (tracrRNA), которая может быть химически синтезирована и доставлена с очищенной нуклеаза Cas9 как рибонуклеопротеин комплекс (RNP)2,3. Флуоресцентная маркировка gRNA или Cas9 nuclease может позволить для обнаружения и внутриклеточной визуализации молекулярных компонентов с помощью флуоресцентной микроскопии4.
В нашей нынешней работе мы пользуемся системой CRISPR-Cas9 для снижения уровня белка в мозге пчел взрослых. Мы изучили метаботропные рецепторы глутамата (mGluR) и анти-mGlutR1 рецепторов антител иGABA рецепторов субъединицы RDL и анти-RDL антител. Мы разработали простой метод для уменьшения количества белка в мозге взрослой пчелы и использовали его для проведения дополнительных тестов антител, разработанных против соответствующих белков. Мониторинг флуоресценции CRISPR-Cas9 позволил нам оценить области и клетки, участвующие в сокращении белка.
Используя этот метод, мы также охарактеризовали анти-mGlutR1 антитела, которые были сделаны в кроликов против конъюгированного пептида. Геном пчел кодирует высоко консервированный AmGluRA (названный mGlutR1 в соответствии с номенклатурой NCBI) метаботропный рецептор глутамата5. Ген медоносной пчелы mGlutR1 имеет четыре прогнозируемых варианта сращивания в соответствии с базой данных NCBI. Сообщалось, что он выражается в центральной нервной системе (ЦНС) как pupal и взрослых пчел этапов и он участвует в долгосрочной памяти формирования5. Антитела, разработанные против mGlutR1, могут быть важным инструментом для изучения глутаматергической системы в процессе обучения и памяти медоносных пчел.
В наших исследованиях мы также охарактеризовали анти-RDL антитела, разработанные у кроликов, привитых с конъюгированными пептидами из субъединицы рецепторов Apis mellifera RDL. Ген медоносной пчелы Rdl, AmRdl (XM_006565102.3, база данных NCBI), имеет 14 прогнозируемых вариантов сращивания. Частично клонированный фрагмент был зарегистрирован в базе данных NCBI AF094822.1. Функция рецепторов RDL и его физиология хорошо изучены у насекомых6,7,8,в том числе пчел9,10,11. Антитела, разработанные против анти-RDL может быть важным инструментом для изучения ГАМК-системы в процессе обучения и памяти в медоносных пчел.
Более раннее исследование о роли осьминога и рецепторов тирамина использовали РНК вводили в мозг с последующим испытанием количества белка Западной помок12,13. Тем не менее, РНК имеет некоторые значительные ограничения. Существует только короткое время после инъекции РНК, в течение которого сокращение белка происходит13. CRISPR-Cas9 был использован совсем недавно в эмбрионах медоносных пчел, чтобы удалить или изменить гены в целом животных14,15,16. Мы сообщили об использовании CRISPR-Cas9 для уменьшения количества белка во взрослой пчеле. Мы разработали этот подход для медоносных пчел из-за способности соединить его с поведенческими исследованиями обучения и памяти в контролируемых лабораторных условиях17.
В настоящей работе мы разработали антитела против двух рецепторов и протестировали их на взрослых секциях мозга медоносных пчел после того, как белок был уменьшен путем инъекции CRISPR-Cas9. В то же время мы разработали экспериментальную конструкцию, которая позволяет использовать метод для поведенческих экспериментов.
Протокол
Протокол, описанный здесь, следует руководящим принципам по уходу за животными Университета штата Аризона.
1. Полная изоляция белка от мозга Apis mellifera
ПРИМЕЧАНИЕ: Используйте Apis mellifera Новый свет Карниолан кормов неизвестного возраста для этого эксперимента.
- Поместите алюминиевый экран сетки над входом в улей, чтобы захватить пчелы-жаворонки17. Захват каждой пчелы во флаконе с небольшим отверстием в каждой крышке. Поместите флаконы, содержащие пчел во льду, чтобы снизить температуру тела и обездвижить их. Оставьте пчел во льду не более 3 мин.
- Закрепите обездвижемых пчел в ранее подготовленные металлические держатели. Убедитесь, что держатели металла построены таким образом, что пчела может быть обеспечена небольшими кусочками клейкой лентой, но все еще имеют свою заднюю грудную клетку, крылья и голову подвергаются.
ВНИМАНИЕ: Убедитесь, что пчелы полностью обездвижены, прежде чем пытаться поместить их в держатели. - Кормите пчел раствором сахарозы 1 М, используя шприц 5 мЛ, пока они больше не проголодались. Поместите обеспеченных пчел в коробку с мокрым бумажным полотенцем, чтобы обеспечить влажную среду.
- Вскрыть мозг пчелы быстро, отрезав голову ножницами Barraquer Iris (см. Таблица материалов) и использовать ножницы, чтобы открыть голову спереди.
- Отрежьте мозг от капсулы головы, возьмите мозг с #5 щипками, и поместите его в 100 л холодного (4-8 градусов по Цельсию) буфера лиза. Буфер лисиса состоит из 120 мм Tris-HCl, 2% сульфат адэцила натрия (SDS), 5% глицерол, 0,2 мМ дитиотрейтол, 1% Тритон X-100, и 1-5 мкг/мл ингибиторов протеазы PMSF (фенилметилфолонилфюрорид), апротинин, бензамин (pH 6.8) Гомогенизировать мозг в растворе лизиса, превращая в пестик около 2 мин.
- Centrifuge образец на 12000 х г в течение 20 мин. Аспир 90 л супернатанта и отбросить гранулы.
- Возьмите 1 зл супернатанта для количественной оценки общего белка с помощью фторметра. Приблизительная концентрация общего белка составляла 2-3 мг/мл на пчелу. Возьмите 10 зл и добавьте 10 зл буфера лисиса и 10 зл и 6x буфер Аэммли18. Спин кратко и кипятить в течение 3 мин, затем остыть на льду. Спин в течение 1 мин при 10000 х г, чтобы удалить все мусора. Десятая часть пчелиного мозга содержит примерно 25 нг общего белка.
2. Западный Blotting19
- Сделать 30 мл 10% ходячего геля, содержащего 12,15 мл ультрачистой дистиллированной воды, 7,5 мл 1,5 М Трис-Хкл (pH 8.8), 0,3 мл 10% SDS, 10 мл 30% акриламид-бис акриламидраствор, 0,15 мл 10% персульфата аммония (APS), и 20 л тетраметилетилениами (TEMED) ).
- Отбросьте гель между двумя стеклянными пластинами, разделенными космонавтами.
- Сделайте 20 мл укладывания геля, содержащего 12,1 мл ультрачистой дистиллированной воды, 5,0 мл 0,5 М Трис-HCl (pH 6,8), 0,2 мл 10% SDS, 2,6 мл акрил-биса, 0,1 мл 10% APS, и 20 л TEMED.
- Когда бегущий гель затвердевает залить укладки гель. Аккуратно добавьте пластиковый сепаратор, чтобы бросить погрузочный переулок, избегая пузырьков. Подождите 15-30 минут, пока гель не затвердеет.
- Начните загрузку геля, используя 5 зЛ белковых стандартов. Загрузите 20 л из смеси лизата со ступени 1,8 на полосу, что соответствует 1/15 зубного мозга пчелы или 16 нг общего белка на полосу. Запустите образцы для 3,5-4 ч в общей сложности на 16 мА в укладке геля и 32 мА в бегущем геле. Остановитесь, когда краситель покинет гель.
- Перенесите белки на мембраны нитроцеллюлозы в переносном буфере (25 мм Tris-HCl, 192 мм глицина, 15% метанола) при 0,45 мА за 1 ч 30 мин при 4 градусах По Цельсия.
- Чтобы оценить эффективность переноса белка после SDS-PAGE перед иммуноблоттингом, добавьте раствор окрашивания Понсо S (добавить 0,1 г понсо S и 5 мл уксусной кислоты в воду до конечного объема 100 мл). Хранить при 4 градусах по Цельсию в течение 1 мин и быстро промыть дистиллированной водой.
- Этикетка каждой полосе с шариковой ручкой, сократить мембраны, содержащие две полосы с мозгом гомегената и один переулок с маркером белка и поместите каждый в западной помарки инкубации окно. Вымойте 3x в течение 5 минут каждый в фосфат буферных сольников (PBS), содержащих 0,1% Tween 20 (PBS-Tw).
- Блок мембраны с 10% NGS (1 мл нормальной сыворотки для козы до 10 мл PBS-Tw) в западной помот инкубации поле для 1 ч. Сделать анти-mGlutR1 разбавления (5 л антител в 10 мл 10% NGS). Сделать анти-RDL1 и анти-RDL2 разбавления (5 л антител в 10 мл 10% NGS каждый). Замените блокирующий раствор в каждой коробке разбавленными антителами и оставьте на ночь (16-24 ч) при 4 градусах Цельсия.
- Вымойте мембрану 3x в течение 5 минут каждый в PBS-Tw. Инкубировать мембрану с анти-кролик IgG HRP-конъюгированных вторичных антител на 1:10,000 в 10% NGS PBS-Tw в течение 2 ч при комнатной температуре (RT). Вымойте мембраны 3x в PBS-Tw, затем 1x в PBS.
- Обнаружить полосы с помощью западного chemiluminescent HRP субстрата. Смешайте два субстрата 1:1 (v/v) на RT, положите все мембраны в одну коробку и накройте их субстратом в течение 2 мин (в темной комнате с красным светом) на RT. Приступить к обнаружению белка с помощью авторадиографического пленки с несколькими раз. Обычно одно антитело тестируется на одной мембране, содержащей тот же разбавления мозга гоменат на двух или трех полосах движения и одну полосу с маркером веса.
3. Иммуноцитохимические процедуры
- Чтобы вскрыть мозг медоносных пчел для иммуноцитохимии, обездвижить медоносных пчел во льду в течение 30 с. После того, как пчелы обездвижены, обезглавить пчелу ножницами и поместить голову в раствор 4% параформальдегида в PBS. Работа под капотом дыма.
ВНИМАНИЕ: Тело должно быть тщательно удалены, потому что живот все еще может жалить после обезглавливания. - Тщательно, но быстро удалить антенны, сложные глаза, и вырезать все вокруг верхней экзоскелет с ножницами Barraquer Iris. Разрешить головы сидеть в фиксаторном растворе в течение 10 минут. Удалить остальную часть экзоскелета головы и сократить все оставшиеся трахеи.
- Поместите каждый мозг в микроцентрифугную трубку размером 1,5 мл, содержащую не менее 1 мл 4% раствора параформальдегида, и оставьте на ночь при 4-8 градусах Цельсия.
- Сделать 7,6% агарозного раствора путем смешивания 3,8 г агарозы и 50 мл дистиллированной воды в колбе Erlenmeyer. Микроволновая печь раствор, пока агарозы сжимет.
ПРИМЕЧАНИЕ: Небольшой кусок бумаги ткани может быть помещен в отверстие колбы для того, чтобы предотвратить раствор агарозы от переполнения во время нагрева. - Поместите фиксированные мозги пчел (3-4 мозга) в 35 мм чашку Петри и удалить избыток фиксаторс с помощью бумажной ткани. Налейте жидкий раствор агарозы на мозг. Ориентируйте мозги в агарозе так, чтобы доли антенны были обращены вверх. Разрешить агарозе остыть и затвердеть.
- После того, как агароз затвердела, вырезали блоки агарозы, каждый из которых содержал мозг.
- Для секции вибратом, подготовить 24 хорошо пластины с каждой хорошо, содержащий корзину с гидрофобной сетки в нижней части. Заполните каждый колодец с 600 Л PbS.
- Разрежьте каждый блок на 70 мкм поперечные секции с помощью вибратом машины и поместите разделы в корзину, содержащую PBS.
ПРИМЕЧАНИЕ: Убедитесь, что разделы из того же мозга помещаются в ту же корзину. - Вымойте разделы мозга 6x в течение 10 минут каждый с PBS-TX, чтобы убедиться, что нет фиксации остается в разделах. Поместите многофункциональную пластину на орбитальный шейкер и промойте мозги при 210 об/мин. Перед каждой стиркой обязательно замените решение PBS-TX свежим решением PBS-TX. Блок с 1% нормальной сыворотки осла во время последней стирки.
- Чтобы проверить анти-mGlutR1 первичных антител, подготовить 1:112 разбавления анти-mGlutR1 антител, добавив 9 мл PBS-TX до 80 л антител анти-mGlutR1 в 15 мл центрифуги трубки. Vortex трубки кратко перемешать тщательно. Рабочее разбавление антител было определено в предварительных экспериментах.
- Чтобы проверить анти-RDL первичного антитела, подготовить 1:100 разбавления анти-RDL антител, добавив 30 зл анти-RDL пептид 1, 30 Л анти-RDL пептид 2, и 6 мл PBS-TX в 15 мл центрифуги трубки. Vortex трубки кратко перемешать тщательно. Рабочее разбавление антител было определено в предварительных экспериментах.
- Добавьте 800 л раствора антител к каждому колодцу в тарелке. Обложка многоцветной пластины и оберните его в алюминиевую фольгу, чтобы предотвратить деградацию от воздействия света. Поместите пластину, завернутую в алюминиевую фольгу, на орбитальный шейкер и встряхните при 210 об/мин в течение 2 ч. Затем оставьте на ночь на RT без тряски.
- После того, как секции мозга были оставлены на ночь, мыть с PBS-TX в течение 10 мин. Повторите стиральный шаг шаг 6x.
- Подготовка вторичных антител (анти-кролик от осла) путем 1:225 разбавления вторичных антител, добавив 40 зл вторичных антител до 9 мл PBS-TX.
- Добавьте 800 л вторичного разбавления антител к каждому колодцу. Накройте тарелку и заверните ее в алюминиевую фольгу. Поместите пластину, завернутую в алюминиевую фольгу, на орбитальный шейкер и встряхните при 210 об/мин в течение 2 ч. Тогда оставьте его на ночь на RT.
- Вымойте секции мозга 3x в течение 10 минут каждый с PBS-TX и 3x с регулярным решением PBS.
- Для встраивания разделов в слайдах, подготовить монтаж средств массовой информации / глицерол встраивания решение изменено из Родригес и др.20. Добавьте 5 г монтажной среды в 20 мл PBS и перемешайте 16 ч с помощью магнитного мешалки. Добавьте 10 мл глицерола и перемешайте еще 16 ч с помощью магнитного мешалки. Центрифуга в течение 15 мин при 4000 х г,возьмите жидкость однородного супернатанта и aliquot в 1 мл труб. Хранить при -20 градусах по Цельсию
- Встраивай те секции на слайды с каплей монтажной среды, подготовленной в шаге 3.17, убедившись, что каждый слайд содержит разделы одного мозга.
- Контроль иммунодефицита с спряжением пептидов
- Для анти-RDL и конъюгированных пептидов, инкубировать рабочие разбавления анти-RDL антител с соответствующим пептид конъюгировать ночь на RT на шейкер: состояние 1) 500 мкг пептид спряженный с keyhole Limpet гемоцианин (KLH) через глутаральдегид; состояние 2) без каких-либо конъюгирований.
- Центрифуга каждая смесь в течение 10 мин на 10000 х г и собирать супернатант из обоих условий (шаг 3.19.1).
- Инкубировать серийные участки мозга медоносных пчел с каждым супернатантом и процесс со вторичными антителами, описанными выше. Серийные разделы являются разделами, которые следуют друг за другом во время процедур секции вибратом, поэтому та же часть мозга будет подвергаться воздействию положительных и отрицательных элементов управления.
- Для анти-mGlutR1 и конъюгированного пептида, инкубировать рабочий разбавления анти-mGlutR1 антител на RT с КЛГ конъюгированный пептид, содержащий 10-4 М пептид (условие 1) и без каких-либо конъюгированных (условие 2).
- Centrifuge каждой смеси в течение 10 минут на 10000 х г и собирать супернатант из обоих элементов управления.
- Инкубировать серийные участки мозга медоносных пчел с супернатантом из обоих условий и процесса со вторичными антителами (шаги 3.14-3.15).
- Встраиваем разделы из обоих условий на слайд с помощью встраивания носителя (шаг 3.17).
4. Испытание RDL и mGlutR1 Выражение белка иммуноцитохимией (раздел 3) в мозге медоносных пчел после инъекции соответствующей системы CRISPR-Cas9
- Дизайн руководства с помощью онлайн CRISPR-Cas9 дизайн инструмент21 с использованием геномных последовательностей ДНК AmRdl (XM_006565102,3) и последовательности mGlutR1 (XM_006566244,3) (Таблица 1). Заказать как Cas9 crRNA и Cas-9 tracrRNA с флуоресцентным красителем ATTO550 в 5'end. Заказать Cas9 Nuclease V3 (см. Таблицу материалов).
- Подготовьте компоненты для системы CRISPR-Cas 9, сделав 100 мкм запас каждого руководства crRNA и tracrRNA с использованием безнуточной воды. Aliquot и хранить при -20 градусах по Цельсию. Подготовьте рабочую концентрацию раствора Cas-9, добавив 2,5 л cas 9 nuclease V3 (10 мг/мл) до 47,5 л свободного буфера нуклеотидов для получения конечной концентрации 0,5 мкг/л.
- Подготовка gRNA комплекс формирования для каждого руководства РНК отдельно (руководствоRNA:tracrRNAATTO550)
- Наклейте пробирку с названием gRNA, добавьте 92 л нуклеотидного свободного буфера, 4 зл и 100 мкм CRISPR-Cas9 tracrRNA- 5'ATTO550 и 4 зл направляющего раствора crRNA. Смешайте осторожно и спина.
ПРИМЕЧАНИЕ: Пример маркировки трубок gRNA для RDL: GRDL1, GRDL2, GRDL3 (соответствующий RDL направляющим РНК в таблице 1). Пример маркировки трубgрных gRNA для mGlutR1: GMGL1, GMGL2, GMGL3(Таблица 1). - Нагрейте раствор до 95 градусов по Цельсию в течение 5 минут, чтобы создать gRNA. Охладите смесь на RT в течение 10 мин.
- Наклейте пробирку с названием gRNA, добавьте 92 л нуклеотидного свободного буфера, 4 зл и 100 мкм CRISPR-Cas9 tracrRNA- 5'ATTO550 и 4 зл направляющего раствора crRNA. Смешайте осторожно и спина.
- Подготовка RNP комплекс формирования (gRNA: S.p Cas9Nuclease), доставка смеси, и контроль.
- Наклейте пробирку с названием RNP, добавьте 6 л раствора gRNA и 6 л 0,5 мкг/Л S.p Cas9 Nuclease V3. Смешайте аккуратно и инкубировать растворы при 37 градусах по Цельсию в течение 10 минут перед инъекцией.
ПРИМЕЧАНИЕ: Пример меток трубки RNP: RRDL1, RRDL2, RRDL3. - Сделать RNPRDLmix. Для приготовления конечной смеси, используемой для инъекций, добавьте 4 Зл каждого РНП от RDL вместе. RnP/RDL микс no 4 л RRDL1 - 4 Л RRDL - 4 л RRDL .
- Сделать RNPmGlutR1mix. Смешайте 4 ЗЛ каждого РНП от mGlutR1 вместе, чтобы подготовить окончательную смесь, используемую для инъекций (RNPmGlutR1mix)
ПРИМЕЧАНИЕ: Пример меток трубки RNP: RMG1, RMG2, RMG3. - Сделать контрольный раствор noguideRNA, смешивая 4 злицу тракррны, 92 л буфера и 4 зл воды вместо руководства RNA (см. раздел 4.3). Смешайте 6 зл этого раствора noguideRNA и 6 qL 0,5 мкг/Л Cas9 Nuclease V3 (шаг 4.4.1) для получения решения для впрыска контроля.
- Наклейте пробирку с названием RNP, добавьте 6 л раствора gRNA и 6 л 0,5 мкг/Л S.p Cas9 Nuclease V3. Смешайте аккуратно и инкубировать растворы при 37 градусах по Цельсию в течение 10 минут перед инъекцией.
5. Процедура инъекций
- Обездвижить каждую пчелу, как описано в шаге 1.3, и накормить их как в шаге 1.4. Затем подготовьте два комплекта из двух деревянных ящиков, чтобы освободить пчел после инъекции: белый ящик (экспериментальное состояние) и черный ящик (контроль). Каждая коробка должна содержать небольшую расческу и кормление чашку Петри. Одна сторона каждой коробки сделана из стекла, чтобы обеспечить наблюдение.
- Сделать кормление Петри блюда. Возьмите крышку 35 мм Петри блюдо, место воска внутри поверхности, и место нижней части чашки Петри на воск. Закрепите тарелку в коробку.
- Используя 5 мл шприца, введите 1M сахарозы раствор между крышкой и нижней части блюда. Пчелы могут быстро положить их хоботок между двумя пластинами и будет оставаться сухим в течение 48 ч инкубационный период. Положите по одному блюду в каждую коробку.
- Чтобы подготовить систему микроинъекций, заполните капилляры минеральным маслом без пузырьков воздуха. Поместите капилляры в держатель инжектора системы микроинъекций. Чтобы загрузить капилляр нужным раствором для инъекций, поместите гидрофобную пленку на плоскую поверхность и пипетку раствор ассоциировать на нее. Введите масло из капилляров и заменить смесь с соответствующей смесью RNP.
- Используя систему микроинъекций, вводят 345 nL раствора смеси RNP непосредственно в медианную ocelli каждой пчелы.
- Для инъекции RDL-CRISPR-Cas9 вводят восемь пчел с ПОМОЩЬю RNPRDLmix, приготовленных в описанном в шаге 4.4.2. Кормите их 1M сахарозой после инъекции. Отпустите их в белом (экспериментальном) ящике с небольшой гребень и кормления Петри блюдо для 48 ч. Используйте еще восемь пчел в качестве контроля без каких-либо инъекций, кормить их, и освободить их в черном (контроль) поле.
- Для mGlutR1 CRISPR-Cas9, вводят девять пчел с RNPmGlutR1mix подготовлены, как описано в шаге 4.4.3. Для контроля вводят восемь пчел со смесью РНК без направляющей (RNAmix_noguide), приготовленной как описано в шаге 4.4.4. Кормите их 1M сахарозой после инъекции. Освобождение пчел из их держателей в белый ящик (экспериментальное состояние) или черный ящик (контроль), подготовленный, как описано в разделе 5.1.
- Поместите коробки в полистирол контейнер с влажной бумагой внутри для влажности. Оставьте пчел на 48 ч и соблюдать 2x в день, чтобы убедиться, что они имеют достаточно пищи и хорошей влажности.
- Вскрыть мозг каждой пчелы после 48 ч (шаг 3.1) и процесс иммуноцитохимии, как описано в разделе 3. Для анти-mGlutR1 иммуностоиниза используют шаг 3.11, а для анти-RDL иммуностоинга используют шаг 3.12.
- Выполните конфокальные изображения для оценки уровня флуоресценции в иммунных окрашенных секций мозга.
- Для оценки сокращения белка в иммуномаркированных мозга, использовать конфокальный сбор изображений на том же уровне усиления как для контроля и вводили мозги.
6. qPCR основе Drop-Off Анализ для оценки модифицированных геномных RDL ДНК 48 H После CRISPR Cas9 RNPRDLmix инъекции
- Дизайн грунтовки, контроль зонд, и высадки зонд для оценки количества ДНК, измененной CRISPR-Cas9 инъекции. Каждый грунтовка разработан так, что она фланги по крайней мере один CRISPR-Cas 9 руководство и размер ампликона 132 bp. Используемые грунтовки и зонды приведены ниже:
RDL1_For: CTCGGAGTGACCACCGT
RDL1_Rev: CAACGAGGCGAACACCAT
RDL1_control_probe: /5HEX/CGA-C-G-TTTT-A-C-CT/3IABkF/
RDL1_Drop-off_probe: /56-FAM/CCTA-C-G-T-CA-A-GT/3IABkF/- Убедитесь, что грунтовки соответствуют уникальным последовательностям, которые специфичны для области. Убедитесь, что зонд высадки предназначен для области, которая пересекается с руководством RDL-CRISPR-Cas9.
- Чтобы проверить, есть ли модификация gDNA в области направляющего выступа, введите 12 пчел в окелли с RNP_RDL смесь, описанную в шаге 5.3.1 и используйте восемь неинъекционных пчел в качестве контроля.
- Вскрыть из пчелиных мозгов без оптических долей 48 ч после инъекций и извлечь gDNA каждого вводили и контролировать мозг пчелы (без оптических долей) с помощью комплекта следующий протокол производителя (см. Таблица материалов).
- Оцените количество, качество и чистоту извлеченной гДНК с помощью спектрофотометра.
- Количественная оценка относительного выражения модифицированного gDNA AmRDL с помощью протокола высадки на основе qPCR и цикла ПЦР в реальном времени.
- Приостановите олиго до 100 мкм, разбавьте грунтовки до 10 мкм, а зонды - до 5 мкм.
- Настройка реакции ПЦР в 96 хорошо пластины, как показано здесь для одного образца гДНК (3 повтора): 10 злику мастер смеси (см. Таблица материалов), 1 qL вперед грунтовки, 1 зл обратного грунтовки, 1 Зл управления зонда, 1 л отсасываемого зонда, 2 л гДНК (50 нг), 4 л безнуслятого объема довести окончательную реакцию.
ПРИМЕЧАНИЕ: Элементы управления являются решением вместо образцов и воды вместо зондов. - Настройка велопрограммы следующим образом для велосипедного цикла ПЦР в реальном времени: 95 градусов по Цельсию в течение 3 минут, а затем 40 циклов 95 градусов по Цельсию на 15 с, 60 градусов по Цельсию в течение 1 мин.
- Оцените относительную модификацию гена с помощью метода 2--
 И

7. Относительная количественная оценка РНК RDL 48 H после инъекции RNPRDLmix
- Чтобы проверить, есть ли сокращение RDL мРНК, ввести 20 пчел в ocelli с RNP_RDL смеси, как описано в шаге 5.3.1 и использовать 12 неинъекционных пчел в качестве элементов управления. Рассекать мозг пчелы (без оптических долей) 48 ч после инъекций, извлечь общую мРНК от каждой инъекционной пчелы, и отделить с помощью протокола производителя (см. Таблица материалов).
- Удалите остатки ДНК, оставшиеся в образце, с помощью комплекта без ДНК (см. Таблицу Материалов).
- Оцените качество и чистоту извлеченной РНК с помощью спектрофотометра.
- Количественное выражение AmRDL с помощью коммерчески доступных флуоресцентных зеленый RT-PCR комплект (Таблица материалов) в режиме реального времени PCR cycler с использованием протокола производителя для 384 хорошо пластины.
ПРИМЕЧАНИЕ: В этом эксперименте были использованы ранее опубликованные грунтовки. Для AmRDL (AmRDL_F GGTCGATGGTACTACCTGG; AmRDL_R TCGCGACTTGACGTAGGA)22 и актина праймеры в качестве эталонного гена (AmActin_F TGCCAACTGTTTTCTG; AmActin_R ГААТГАКАККААТКАКА-23. Относительная экспрессия генов была рассчитана с помощью метода 2-ЗКТ (шаг 6.6).
8. qPCR на основе высадки Анализ для оценки измененной геномной ДНК 48 H После RNPmGlutR1mix инъекции
- Дизайн грунтовки, контроль, и высадки зондов для оценки количества ДНК, модифицированных путем инъекции CRISPR-Cas9. Дизайн грунтовки так, что они фланг по крайней мере один CRISPR-Cas 9 руководство и размер ампликона составляет 96 bp.
mGlutR1_For: GGTGAAACGAGAGACGGA
AmGlurR1_Rev: GGAGAGAGGGAGGAGAA
AmGlurR1_control_probe: /5HEX/CGAGG-G-AAA-CGA-GT/3IABkF/
AmGlurR1_Drop-off_probe: /56-FAM/CGA-C-A-C-CG-TC/3IABkF/
ПРИМЕЧАНИЕ: Убедитесь, что грунтовки соответствуют уникальным последовательностям, которые специфичны для области, которая должна была быть изменена. Зонд высадки предназначен для области, которая пересекается с гидом CRISPR-Cas9. - Чтобы проверить, есть ли модификация gDNA в области направляющего выступа, введите 12 пчел в ocelli с RNP_ смесью GlutR1, как описано в шаге 5.3.1 и используйте восемь неинъекционных пчел в качестве элементов управления.
- Вскрыть из пчелиных мозгов (без оптических долей) 48 ч после инъекций и извлечь гДНК из каждого вводили и контролировать мозг пчелы (без оптических долей) с помощью протокола производителя (см. Таблица материалов).
- Оцените количество, качество и чистоту извлеченной гДНК с помощью спектрофотометра.
- Количественная оценка относительной модификации gDNA AmGlutR1 с использованием протокола высадки qPCR и для пикеля ПЦР в реальном времени, как описано в шаге 6.5.
- Оцените относительную модификацию гена с помощью метода 2--
 И

9. Количественная оценка mGlutR1 РНК 48 ч после инъекции RNPmGlutR1mix
- Чтобы проверить, есть ли сокращение mGlutR1 РНК мРНК, ввести шесть пчел в очелли с RNP_RDL смеси, как описано в шаге 5.3.2 и использовать шесть неинъекционных пчел в качестве контроля. Рассекать мозг пчелы (без оптических долей) 48 ч после инъекций, извлечь общую мРНК от каждой инъекционной пчелы, и отделить с помощью протокола производителя для изоляции РНК (см. Таблица материалов).
- Удалите остатки ДНК, оставшиеся в образце, с помощью комплекта без ДНК (см. Таблицу Материалов).
- Оцените качество и чистоту извлеченной РНК с помощью спектрофотометра.
- Количественное выражение mGlutR1 с помощью sYBR Зеленый RT-PCR комплект (см. Таблица материалов) в режиме реального времени PCR cycler с протоколом, предусмотренным для 384 хорошо комплект. Используйте следующие праймеры для mGlutR1 (mGlut_F CCTCCCCAACGTCTCTTTCATA; mGlut_R TGCCGTGTGTGTTCTCTCTGATTTTT) и актина праймеры в качестве эталонного гена (AmActin_F TGCCAACCTCTTTTCTG; AmActin_R ГААТГАКАККАККААТККА. Рассчитайте относительную экспрессию гена, используя метод 2-ЗКТ (шаг 8.6).
Результаты
Тесты на анти-RDL антитела
Антитела были произведены против конъюги пептида RDL, как показано на рисунке 1A. Первый шаг в характеристике анти-RDL антител является проверка гомената белка, извлеченного из мозга пчелы с помощью западного пятно с анти-RDL антител и HRP-маркировки козла анти-кролик igG вторичное антитело(Рисунок 1A, вставить). Оба антитела КРД Распознали полосу, расположенную на уровне 50-60 кД (стрелка), соответствующую предполагаемому весу изоформных белков RDL. Чтобы продемонстрировать, что анти-RDL антитела признали пептид в мозге ломтиками, мы использовали контроль preadsorption (Рисунок 1B, C). Когда антитела были preincubated с конъюгированными пептидами, окрашивание на разделе отсутствовал. Это показало, что антитела РДЛ распознают конъюгированный пептид, против которого они были подняты. Для того, чтобы продемонстрировать, что анти-RDL антитела распознают белок в фиксированной ткани мозга, мы использовали CRISPR-Cas9, чтобы выбить ген RDL, который производит белок RDL в клетках. Рисунок 1D1-3, показывает контроль лобных секций мозга пчел, которые были помечены анти-RDL антител. Эта пчела не была введена с RDL-CRISPR-Cas9 RNP. На рисунке 1D1анти-RDL этикетки нейропилс анавийского в лобной части мозга пчелы. Тот же фронтальный раздел на рисунке 1D2 показывает отсутствие флуоресценции от ATTO550, потому что комплекс RDL-CRISPR-Cas9 не был введен.
На рисунке 1E1-E3 показана мозговая секция от пчелы, введенной RDL-CRISPR-Cas 9, а затем обработанной с таким же количеством антител, что и контрольный мозг на рисунке 1D1-D3. Анти-RDL окрашивания было значительно сокращено во всем мозге 48 ч после инъекции, и распределение ATTO550 окрашивания в мозге (Рисунок 1E2) показывает успех RDL-CRISPR-Cas 9 инъекций в пчелы медианы ocelli. Многократные рассеянные клетки мозга демонстрируют ATTO550. Успешная инъекция RDL-CRISPR-Cas 9 снизила экспрессию белка по сравнению с контролем(рисунок 1E1-3). Из восьми иммуноокрашенных пчелиных мозгов только один мозг имел высокий уровень распределения RDL-CRISPR-Cas9 в клетках грибного тела, протоцеребрума и антенной доли, в то время как другие мозги имели клеточное окрашивание с ATTO550 в каликсе тела грибов, центральный комплекс, но не антенную добелку. Важно отметить, что у этих пчел снижение иммунодефицита РДЛ было не столь драматичным, как в головном мозге, показанном на рисунке 1E1.
Далее, чтобы оценить уровень модифицированного RDL gDNA в пчелах 48 ч после инъекции RDL-CRISPR-Cas9, мы провели тест на высадку qPCR, где датчик высадки был разработан в соответствии с областью одного из RDL gRNA. В этих экспериментах в мозг пчелиных мозгах, вводимых РДЛ-КРИСПР-Касс 9, относительное снижение флуоресценции соответствовало количеству модифицированной гДНК в образцах. В наших тестах область, соответствующая этому руководству в gDNA у 12 пчел, вводимых с RDL-CRISPR-Cas9, была 64% (средний показатель 30%SD) по сравнению с гДНК у неинъекционных пчел(рисунок 3А).
Далее, чтобы оценить уровень РНК RDL у пчел 48 ч после инъекции, мы выполнили qRT-PCR в отдельной группе пчел(рисунок 3B). Мы сравнили уровень РНК RDL RDL-CRISPR-Cas 9 инъекционных пчел (n No 19) с уровнем РНК у пчел, которые не были введены (n No 12). В этих экспериментах, относительное сокращение мРНК RDL составил 59% (средний - 15% SE) по сравнению с уровнем РНК в неинъекционных пчел. При изучении уровня РНК RDL в каждой пчелиной индивидуальной, только 13 пчел из 19 пчел показали значительное снижение РНК. Эти данные показывают, что инъекция RDL-CRISPR-Cas9 через окелли не всегда может достичь большого количества клеток мозга, что подтверждает данные с RDL иммунной окрашенных RDL-CRISPR-Cas9 вводили пчел. В этих препаратах, только одна пчела из 8 имели RDL CRISP-Cas9 во многих клетках мозга (грибное тело, протоцеребрум, и антенная доли) по сравнению с другими мозгами пчел, где распределение RDL-CRISPR-Cas9 было сосредоточено в клетках в protocerebrum (гриб тела calyx и центральный комплекс), но не антенны доли (Рисунок 4A-D).
Тесты на антитела Anti-mGlutR1
Мы использовали анти-mGlutR1 антитела, вырабатываемые в кролика против спряжение пептидов, характерных для Drosophila меланогастер (Рисунок 2A). Последовательность этого пептида показывает 94% идентичности с пчелиным пептидом (CLSDKTRFDYFARTVPPD) Рисунок 2A. Во-первых, мы проверили антитела против белка пчелиного мозга с помощью иммуноблоттинга. Гомегенат пчелиного мозга был отделен 10% SDS-PAGE и электрофоретически перенесен из мембраны нитроцеллюлозы и окрашены анти-mGlutR1. На вставке на рисунке 2А показаны две полосы с расчетным весом (103 и 83 кД), соответствующими двум изоформам. Когда мы проверили это антитело на мозг пчел, мы обнаружили, что они ярлык нейропилара профилей и клеток в секциях мозга пчел, как показано на рисунке 2B, D. После preadsorption анти-mGlutR1 антитела с сопряженным-mGlutR1 пептид, конкретные окрашивания исчезли в ломтик мозга пчелы (Рисунок 2C). Это подтверждает, что анти-mGlutR1 антитела распознают пептид(Рисунок 2C). Затем мы ввели смесь mGlutR1-CRISPR-Cas9 в медиану ocelli и использовали контроль noguideRNA. В контрольных пчелах (n No 7) флуоресценция от ATTO550 не была сосредоточена в клетках. Некоторые мозги были рассеяны флуоресценции ATTO550 маркировки. Таким образом, контрольный препарат на рисунке 2D1-3 показывает анти-mGlutR1 окрашивание в мозг, но не atTO550 флуоресценции. Когда mGlutR1-CRISPR-Cas9 вводили в окелли и занимали многие клетки, уровень флуоресценции вторичных антител был значительно снижен в области, которая успокоит функциональный mGlutR1RNP(Рисунок 2E1-3). Пчелы были проверены в течение 48 ч, и одна пчела из каждого экспериментального состояния был найден мертвым. Так, в ходе этого эксперимента мы проверили семь контрольных пчел и восемь пчел CRISPR-Cas9. Все пчелы вводили С CRISPR-Cas9 были клетки, которые приняли в mGlutR1-CRISPR-Cas9. Большинство из этих клеток были в калике тела грибов, центральном комплексе, и задней protocerebrum. Только две пчелы из семи показали ATTO550 маркировки во многих клетках в грибном теле, центральный комплекс, и антенны доли. Пример одной из этих пчел показан на рисунке 2E. Снижение уровня окрашивания mGlutR1 в этих препаратах было значительным. Остальные пять пчел имеют ATTO550 маркировки, соответствующие успешной доставки mGlutR1 CRISPR-Cas9 в корпусе гриба и задней protocerebrum, но не в антенных долей.
Далее, чтобы оценить уровень модифицированного mGlutR1 gDNA у пчел 48 ч после инъекции, мы провели тест на основе qPCR, где датчик высадки был разработан, чтобы быть в районе вблизи руководства mGlutR1. В этих экспериментах, в мозг пчелвиных вводили с mGlutR1-CRISPR-Cas, относительная модификация гДНК в 12 пчел были 59% (средний - 33 % SD) по сравнению с гДНК в неинъекционных пчел(Рисунок 3A).
Эти результаты были также подтверждены испытаниями qRT-PCR в другой группе пчел, где мы оценили уровни РНК mGlutR1 с использованием qRT-PCR у пчел 48 ч после инъекций с RNPmGlutR1mix(Рисунок 3B). Мы сравнили уровень РНК mGlutR1 mGlutR1-CRISPR-Cas9, вводимых пчел (n No 6) с уровнями РНК у пчел, которые не были введены (n No 6). В этих экспериментах, относительное сокращение мРНК mGlutR1 в инъекционных пчел составил53% (средний - 18% SE) по сравнению с неинъекционных пчел(рисунок 3B).
Раздел из четырех различных пчел, которые выразили RNP RDL-CRISPR-Cas9 в клетке Кеньон гриба тела показано на рисунке 4A-D. Пример пчелы с ФЛуоресценцией ATTO550 в корпусе гриба и антенной доле показан на рисунке 4E,F.
| Руководства | Последовательности | gRNA | Rnp |
| (руководствоRNA:tracrRNA) | (gRNA:Cas9 Nuclease) | ||
| RDL_Guide1 | АККГТААКГКАККККККККККККККТ | GRDL1 | RRDL1 |
| RDL_Guide2 | AACGTCGATCGACTTGACGTCGT | GRDL2 | RRDL2 |
| RDL_Guide3 | CCATGACGAAACACGTGCCC | GRDL3 | RRDL3 |
| mGlu_Guide 1 | CGAAAGTTATCTGACGGTGTGTGTGT | GMGL1 | RMGL1 |
| mGlu_Guide 2 | TTCAACGAGAGACAAGTTCAT | GMGL2 | RMGL2 |
| mGlu_Guide 3 | GCAAACGTCGGTAGGAGTGA | GMGL3 | RMGL3 |
Таблица 1: Нуклеотидные последовательности направляющих, предназначенных для RDL и mGlutR1.
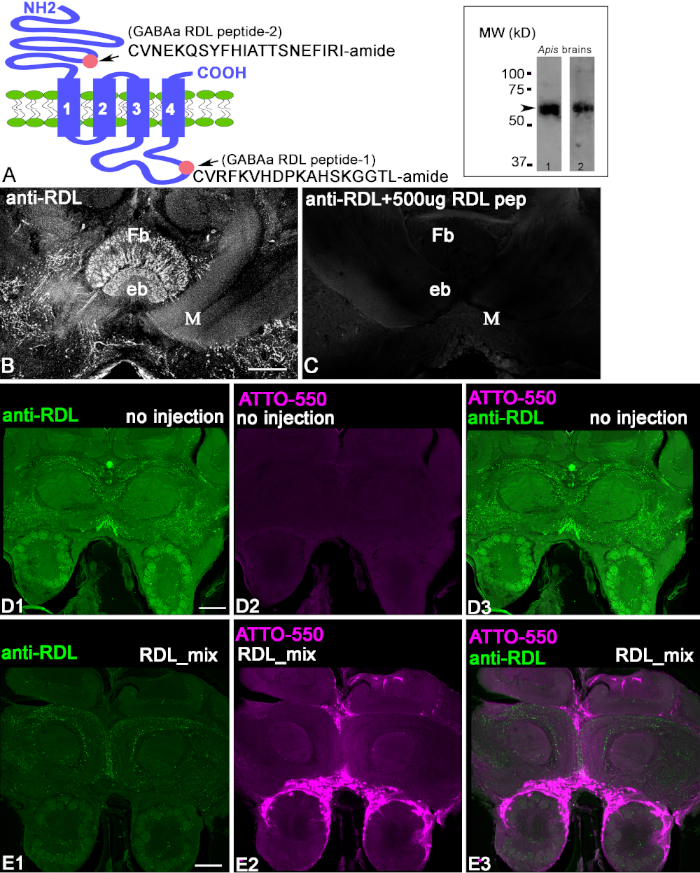
Рисунок 1: Характеристика анти-RDL антител. ()Схема rdL субъединицы, где розовые круги указывают на локализацию пептида 2 (внеклеточный CVNEK-SYFHIATTSNEFIRI-amide) в N-терминуи и пептида 1 (внутриклеточная CVRFHDPKAHSKGGTL-амид) в C-терминах. Вставка в A показывает полосы в западной поклот экстрактов медоносного мозга, обработанных соответствующими анти-RDL антителами (один с анти-RDL pep1 и анти-RDL pep2). Каждый иммуноблот показывает видимый размер белка 50-60 кД, соответствующий расчетным весам различных изоформ подразделений RDL. (B, C) Проверзорпация анти-РДЛ антител с спряжением пептида 1. Изображение в C показывает уменьшение окрашивания в разделе, когда антитела были preincubated с конъюгированным пептидом 1. Веерообразные тела (Fb) и Эллипсоид тела (eb) являются центральными сложными структурами в головном мозге. М - медиальная доли грибного тела. (D1-3) Анти-RDL окрашивание контроля, невводили пчелы мозга разделе после 48 ч. Зеленый указывает на анти-RDL положительный профиль в головном мозге. (D2) Эта пчела не вводилась и не содержит флуоресценции ATTO550. (D3) Слияние изображений с D1 и D3. (E1-3) Инъекция RDL-CRISPR-Cas9 уменьшила окрашивание анти-РДЛ после 48 ч. (E2) ATTO550 флуоресценции в ядрах клеток показала успешную доставку RDL-CRISPR-Cas9. (E3) Слияние изображения анти-RDL (зеленый) и ATTO550 (красный). Шкала бар 100 мкм (B-E). Пожалуйста, нажмите здесь, чтобы просмотреть большую версию этой цифры.
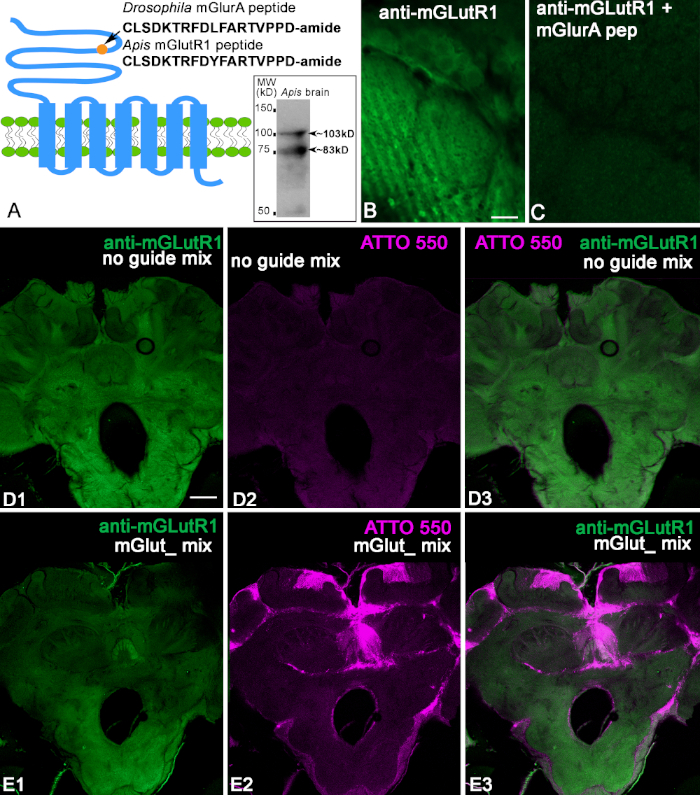
Рисунок 2: Характеристика анти-mGlutR1 антител. (A) Схема GCPR mGluR, которая показывает, drosophila меланогастер пептид, используемый для иммунизации. Для сравнения, пептид Apis mellifera показан ниже. Круг указывает на локализацию пептида в N-терминах внеклеточного домена рецепторов mGlutR1. Вставка в A показывает, что анти-mGlutR1 антитела признали две полосы в западной помарке мозга пчелы 103 kD и 83 kD, которые соответствуют предполагаемым весам известных изоформ. (B, C) Контроль над анти-mGlutR1 антителами в двух последовательных разделах антенной доли гломерули. Изображение анти-mGlutR1 в антенной секции glomeruli в C показывает уменьшение окрашивания в результате преинкубации пептида anti-mGlutR1 с антителами anti-mGlutR1. Эта процедура вызывает высыхания антитела из раствора, который отменяет окрашивание по сравнению с В (контроль, отсутствие пептида в притинкации). (D1) показывает окрашивание анти-mGlutR1 в ломтик еж пчелы мозга после контрольной инъекции в среднем ocellus. Эта инъекция не хватало mGlutR1 gRNA, что позволяет сбить рецепторов mGlutR1 по CRISPR-Cas9, и, таким образом, окрашивание анти-mGlutR1 антитела не уменьшается (зеленый). (D2) Отсутствие флуоресценции ATTO550 указывает на отсутствие функционального CRISPR-Cas9 в головном мозге. (D3) Слияние изображений анти-mGlutR1 и ATTO550. (E1-E3) показать окрашивание анти-mGlutR1 в разделе мозга, где mGlutR1 был постоянно сбил 48 ч после инъекции с mGlutR1-CRISPR-Cas 9 в среднем ocellus. Таким образом, окрашивание в этом мозге значительно уменьшается из-за успешного нокаута mGlutR1 во многих клетках. (E2) ATTO550 окрашивание во многих ядрах клеток в мозг пчелуказываетна указывает на то, что инъекция mGlut1-CRISPR-Cas 9 была успешной. (E3) Слияние изображения ATTO550 (красный) и анти-mGlutR1 (зеленый). Шкала бар No 10 мкм (B,C); 100 мкм (D,E). Пожалуйста, нажмите здесь, чтобы просмотреть большую версию этой цифры.
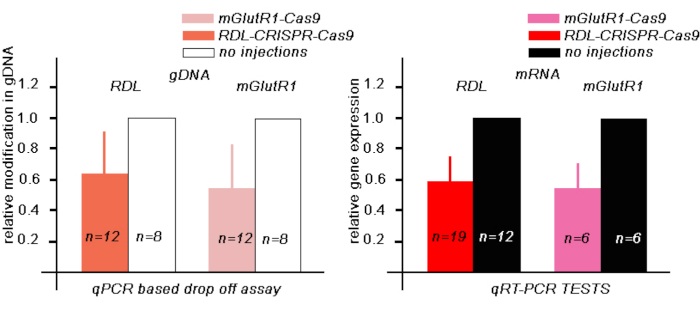
Рисунок 3: Оценка модифицированной гДНК и экспрессия мРНК RDL и mGlutR1 mRNA в мозге пчел 48 ч после инъекции с 345 нл соответствующего RPN CRISPR-Cas9. (A) qPCR основе высадки анализ теста для оценки количества gDNA с изменением области были рассчитаны с помощью 2-ЗКТ метод и нормализовались против контроля, невведенных мозгов. Данные выражаются в виде среднего значения - SD. (B) Тест TheqRT-PCR был использован для оценки количества мРНК в CRISPR-Cas9, вводимых и неинъекционных пчел. AmActin был использован в качестве эталонного гена. Относительная экспрессия генов была рассчитана с использованием 2-ЗСт методов и нормализовалась против контроля, невводили мозги. Данные выражаются в виде среднего sE. Пожалуйста, нажмите здесь, чтобы просмотреть большую версию этой цифры.
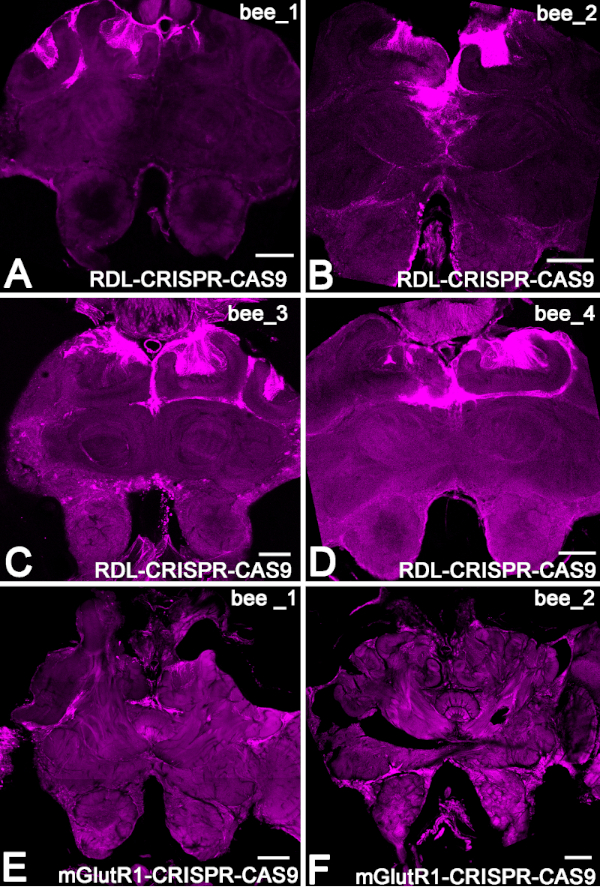
Рисунок 4: Пример распределения RNP CRISPR-Cas9 в мозге пчел через ФЛуоресценцию ATTO550. (A-D) Участки мозга из четырех различных пчел, которые выразили RNP RDL-CRISPR-Cas9 в клетке Кеньон тела гриба. (E,F) Пример двух мозгов 48 ч после инъекции RNPmGlutR1 CRISPR-Cas9. Шкала бар 150 мкм (A-F). Пожалуйста, нажмите здесь, чтобы просмотреть большую версию этой цифры.
Обсуждение
Характеристика анти-RDL и анти-mGlutR1
Во-первых, мы охарактеризовали анти-RDL и анти-mGlutR1 антител иммуноблота и предварительноадсорбции на ломтики фиксированной медоносных пчел мозга. Каждое антитело было сделано, чтобы распознать все его известные изоформы, и западный анализ показывает, что они распознают полосы, которые соответствуют их предсказанным молекулярным весам. Затем оба антитела были заблокированы конъюгированным пептидом, против которого они были произведены на участках мозга медоносных пчел.
Одной из первых целей в нашем исследовании было установить, что антитела, вырабатываемые против специфического спряженого пептида, специфичны для его белка в фиксированной ткани мозга. Для этого мы воспользовались системой CRISPR-Cas9. Мы разработали специальные направляющие для медоносных пчел RDL и mGlutR1 и использовали каждый из них, чтобы сделать CRISPR-Cas9 помечены флуоресцентным зондом ATTO550. Для каждого рецептора, мы вводили смесь из трех различных CRISPR-Cas9 рибонуклеопротеинов в окелли, чтобы уменьшить количество целевого белка в мозге пчел взрослых, устраняя соответствующий ген в клетках, которые заняли нашу разработанную систему Cas9. В нашем исследовании мы сделали этот шаг.
Одним из первых важных шагов для успеха этих экспериментов является разработка соответствующего руководства РНК. Мы рекомендуем проектировать до пяти направляющих РНК, расположенных в начале, середине и конце последовательности генов. В нашей предварительной работе мы тестировали их в различных комбинациях на трех-пяти пчелах. Мы также пробовали различные концентрации инъекций, а также раз после инъекции, и различные смеси РНП в инъекциях. Мы расчленили мозги и обработали их анти-RDL и анти-mGlutR1 антителами. В этих первоначальных тестах мы установили соответствующую комбинацию, время после инъекции, а также концентрацию и количество CRISPR-Cas9 для инъекций. Эти первоначальные испытания были основой для создания экспериментов, которые мы подробно описали здесь.
Цель была в два раза: 1) чтобы продемонстрировать в пчеле, что наши антитела окрашивания была сокращена после лечения с CRISPR-Cas9 и 2) для работы через лучшие экспериментальные условия для поведенческих исследований. Таким образом, мы показываем, что если многие ядра клеток содержат CRISPR-Cas9 48 h после инъекции, то уменьшение окрашивания анти-РДЛ и анти-мГлютр1 является значительным. Кроме того, это свидетельствует о том, что проверенные антитела специально распознают белок mGlut1 и RDL в подготовке мозга медоносных пчел и что они могут быть использованы для локализации исследований в мозге медоносных пчел.
Экспериментальная настройка CRISPR-Cas9 для поведенческого исследования
Далее мы настроили эксперименты так, чтобы CRISPR-Cas9 можно было использовать в поведенческих исследованиях. Восемь или девять медоносных пчел были собраны для контроля и экспериментального лечения. Они были поведенчески протестированы до и после инъекции, а затем их мозг был обработан для ATTO550 и / или иммуноцитохимии для определения областей мозга, которые показали сокращение целевого белка. Здесь важно отметить, что количество пчел, взятых для одного набора экспериментов, было ограничено не более 8-9 пчел для контрольно-экспериментальных условий. Таким образом, оба условия могут быть проверены в тот же день. Кроме того, как только мы подготовили crispR-Cas9 смеси для инъекций, мы никогда не заморозили их. Смесь CRISPR-Cas9 не изменялась в потенции при использовании 3 дня подряд и хранилась при 4-8 градусах Цельсия. Тем не менее, мы не проверяли его через 3 дня.
Как мы описали в разделе Результаты для обоих наборов экспериментальных инъекций и для обоих антител, только три пчелы из 16 испытания показали большое распределение ATTO550 в корпусе грибов, протоцеребрум, и антенные доли. Во всех других пчел, распределение CRISPR-Cas9 был ограничен гриб тела, центральный комплекс, и / или задний protocerebrum. Важно понимать для любых поведенческих исследований, что с помощью этого метода инъекций сокращение целевого белка будет ограничено только грибного тела в большинстве пчел. Он не будет распространяться на антенны ели или субэзофагеальный ганглия. Таким образом, метод инъекций, который мы используем подходит для изучения влияния сокращения рецепторов в организме гриба и центрального комплекса в поведенческих экспериментах, в то время как другой метод введения CRISPR-Cas9 будет более подходящим для изучения других областей мозга.
В заключение наше исследование показало успешное применение CRISPR-Cas9 в качестве контроля для окрашивания антител в мозге. Для обоих антител (анти-RDL и anti-mGlutR1), когда поглощение mGlutR1-CRISPR-Cas9 или RDL-CRISPR-Cas9 было успешно, уровень соответствующего окрашивания антител также был снижен. Также важно отметить, что инъекция в окелли привела к распространению CRISPR-Cas9 в головном мозге, который не был однородным. Распределение варьировалось от минимальной области, окружающей тело окелли и грибов, до многих клеток всего мозга. Вариабельность поглощения mGlutR1-или RDL-CRISPR-Cas9 клетками, вероятно, была обусловлена изменениями в инъекциях. Наши данные показывают, что система CRISPR-Cas9 работает в медоносных пчелах, но метод инъекций необходимо улучшить, чтобы уменьшить изменчивость поглощения CRISPR-Cas9 в отдельных мозгах пчел. В рамках этих ограничений, теперь можно использовать этот метод для манипулирования генами у взрослых пчел для поведенческих экспериментов.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
Эта работа была поддержана следующими наградами BHS: Human Frontiers Science Program; NIH NIGMS (R01 GM113967); NsF Ideas Lab (1556337). Пептид и антитела для DmGluRA были разработаны в лаборатории доктора Сержа Бирмана (Марсель, Люмини, Франция), когда IS была поддержана Программой d'Urgence FRM/Postdocs UFP20060306548 от Фонда за решерше Medicale. Мы благодарны Даниэле Junqueira Мароши и Алекс Уэнтер из комплексной технологии ДНК (IDT) за помощь в разработке RDL-гидов и анализов высадки qPCR.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Уксусная кислота | Sigma-Aldrich | A6283_100 мл | западного блоттинга |
| Acrylamide-bis Acrylamide | Bio-Rad | 500 мл 1610156 | западного блоттинга |
| Agarose | Sigma-Aldrich | A0169-250g | используется с дистиллированной водой для фиксации мозга медоносной пчелы в блоках |
| Alexa Fluor 488 AffiniPure F(ab')2 Fragment Donkey Anti-Rabbit IgG (H+L) | Jackson Research Laboratories | 711-546-152 | вторичное антитело для выявления первичных антител из кроличьего |
| Alt-R CRISPR-cas9 tracrRNA-5'ATTO | IDT | 1075934 | с дезингедированной направляющей РНК, оно создает гРНК |
| Alt-R S.p. Cas9 нуклеаза V3 | IDT | 1081058 | фермент, используемый для получения рибонуклеопротеина для системы CRISPR |
| Ammonium Persulfate | Bio-RAD | 10 г 1610700 | вестерн-блоттинг |
| Анти-mGlutR1 антитела | Covalab (FRANCE)/21st Century Biochemical | охарактеризованы авторами в настоящей статье | Использованы для первичной инкубации mGlut 1 у медоносных пчел |
| Anti-RDL | антитела 21st Century Biochemical | охарактеризованы авторами в настоящей статье | Использованы для первичной инкубации RDL у медоносных пчел |
| Апротинин | Сигма-Олдрич | Y0001154 | ингибитор протеазы |
| Barraquer Iris Ножницы 7 мм Лезвие Острое острие | World Precision Instruments | 14128-G | используется для вскрытия мозга медоносной пчелы |
| Бензамидин | Sigma-Aldrich | 12072 | ингибитор протеазы |
| Лезвие (ломающееся) для держателя лезвия | Fine Science Tool | 10050-00 | препарирование для западного блоттинга |
| Держатель лезвия и прерыватель | Fine Science Tool | 15309 | диссекция для вестерн-блоттинга |
| боросиликатные стеклянные капилляры | World Precision Instruments | 1B100 F | для инъекционной процедуры |
| хемилюминесцентный вестерн-блоттинг субстрат | Bio-Rad | 1705062 | вестерн-блоттинг |
| Хлороформ | Sigma-Aldrich | 472476-50mL | выделение РНК |
| Dithiothreitol | Bio-Rad | 1610611 | вестерн-блоттинг |
| Набор для извлечения ДНК | QIAGEN | 69504 | экстракции ДНК |
| без ДНК | INVITROGEN | AM1907 | Используется для удаления ДНК |
| Eppendorf Research plus пипетка, 3 упаковки | Sigma-Aldrich | Z683884 | |
| Falcon 24 лунки Полистирол Multiwell | Falcon | 351147 | Multiwell |
| Плоское дно Встраиваемые капсулы, полиэтиленовая | электронная микроскопия Science | 70021 | корзина для срезов мозга |
| Щипцы Dumont #5 (пара) | Fine Science Tool | 11254-20 | для вскрытия мозга медоносной пчелы из головы |
| Щипцы Dumont #5S (пара) | Fine Science Tool | 11252-00 | для очистки мозга от трахеи перед диссекцией |
| Gene Expression Master Mix | Integrated DNA Technologies | 1055770 | анализ каппинга |
| qPCRГлутаральдегид | EMS | 16220 | используется для приготовления пептидных конъюгатов для контроля пеабсорбции |
| Глицерин | Sigma-Aldrich | G5516-500 мл | вестерн-блоттинг, встраивание сред |
| Глицин | Bio-Rad | 1610718 | вестерн-блоттинг |
| Гидрофобный фильтрованный нейлонсет | Spectrum Labs | 145910 | для дна корзины для участков мозга |
| Изопропил спирт | Sigma-Aldrich | I9030-50mL | выделение РНК |
| Keyhole limpet hemocyanin | Sigma-Aldrich | H7017 | используется для приготовления конъюгатов для контроля |
| кофокальным микроскопом LSM800 | Zeiss | ||
| mGlu_Guide 1 | IDT | разработанной направляющей РНК для CRISPR-Cas 9. Целевые последовательности генома mGlutR1 | |
| mGlu_Guide 2 | IDT-спроектированной | направляющей РНК для CRISPR-Cas 9. Целевые последовательности генома mGlutR1 | |
| mGlu_Guide 3 | IDT-разработанные | направляющие РНК для CRISPR. Мишень mGlutR1 последовательности генома | |
| метанол | Sigma-Aldrich | 34860 | вестерн-блоттинг |
| 96-луночный микропланшет для ПЦР | Прикладная биосистема | 4346907 | кПЦР дроп-тест и кОТ-ПЦР |
| 384-луночный микропланшет для ПЦР | Сигма-Олдрич | Z374911 | кОТ-ПЦР |
| Минеральное масло | Сигма-Олдрич | M5904_500mL | для инъекционной процедуры |
| Модель р87 Пылающий коричневый пуллер для микропипеток | Sutter Instrument Co. | Капиллярный препарат | |
| Mowiol 4-88 | Sigma-Aldrich | 81381 | для встраивания раствора |
| Nanoliter 2000 | World Precision Instruments Нанолитровый | инъекционный аппарат | |
| Нормальная сыворотка осла | Jackson Research Laboratories | AB_2337258 | блокатор для иммуноцитохимии |
| Неиммунная козья сыворотка | Invitrogen | 50-062Z 100 мл | блокирующий агент для иммуноблоттинга |
| безнуклеазный буфер | IDT | 1072570 | безнуклеазный буфер, который используется при приготовлении инъекций CRISPR-Cas9 |
| Нуклеазная вода | IDT | AM9337 | без нуклеазы - вода, которая используется при приготовлении системы CRISPR-Cas 9 |
| OrbitalShaker Mp4 | Геномат | ||
| параформальдегида | Sigma-Aldrich | 158127-500 г | используется с PBS для изготовления фиксатора для пчелиного мозга |
| Фенилметилсульфонилфторид (PMSF) | Sigma-Aldrich | P7626-250 мг | ингибитор протеазы |
| Фосфатный буфер физиологического раствора | Sigma-Aldrich | P4417-100TAB | Используется с параформальдегидом в качестве фиксатора; буфер для антител |
Ссылки
- Harms, D. W., et al. Mouse Genome Editing Using the CRISPR/Cas System. Current Protocols in Human Genetics. 83 (15), 7-27 (2014).
- Jinek, M., et al. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Kouranova, E., et al. CRISPRs for Optimal Targeting: Delivery of CRISPR Components as DNA, RNA, and Protein into Cultured Cells and Single-Cell Embryos. Human Gene Therapy. 27 (6), 464-475 (2016).
- Schubert, M., et al. Fluorescently labeled tracrRNA provides efficient genome editing while allowing cellular microscopy and FACS analysis. Genome Editing. , www.idtdna.com 1-3 (2017).
- Kucharski, R., Mitri, C., Grau, Y., Maleszka, R. Characterization of a metabotropic glutamate receptor in the honeybee (Apis mellifera): implications for memory formation. Invertebrate Neuroscience. 7 (2), 99-108 (2007).
- Aronstein, K., Auld, V., Ffrench-Constant, R. Distribution of two GABA receptor-like subunits in the Drosophila CNS. Invertebrate Neuroscience. 2 (2), 115-120 (1996).
- Thompson, M., Steichen, J. C., ffrench-Constant, R. H. Conservation of cyclodiene insecticide resistance-associated mutations in insects. Insect Molecular Biology. 2 (3), 149-154 (1993).
- Chung, B. Y., Kilman, V. L., Keath, J. R., Pitman, J. L., Allada, R. The GABA(A) receptor RDL acts in peptidergic PDF neurons to promote sleep in Drosophila. Current Biology. 19 (5), 386-390 (2009).
- Taylor-Wells, J., Hawkins, J., Colombo, C., Bermudez, I., Jones, A. K. Cloning and functional expression of intracellular loop variants of the honeybee (Apis mellifera) RDL GABA receptor. Neurotoxicology. 60, 207-213 (2017).
- Jones, A. K., Sattelle, D. B. The cys-loop ligand-gated ion channel superfamily of the honeybee, Apis mellifera. Invertebrate Neuroscience. 6 (3), 123-132 (2006).
- Dupuis, J. P., et al. Homomeric RDL and heteromeric RDL/LCCH3 GABA receptors in the honeybee antennal lobes: two candidates for inhibitory transmission in olfactory processing. Journal of Neurophysiology. 103 (1), 458-468 (2010).
- Farooqui, T., Robinson, K., Vaessin, H., Smith, B. H. Modulation of early olfactory processing by an octopaminergic reinforcement pathway in the honeybee. Journal of Neuroscience. 23 (12), 5370-5380 (2003).
- Guo, X., Wang, Y., Sinakevitch, I., Lei, H., Smith, B. H. Comparison of RNAi knockdown effect of tyramine receptor 1 induced by dsRNA and siRNA in brains of the honeybee, Apis mellifera. Journal of Insect Physiology. 111, 47-52 (2018).
- Roth, A., et al. A genetic switch for worker nutrition-mediated traits in honeybees. PLOS Biology. 17 (3), e3000171(2019).
- Kohno, H., Suenami, S., Takeuchi, H., Sasaki, T., Kubo, T. Production of Knockout Mutants by CRISPR/Cas9 in the European Honeybee, Apis mellifera L. Zoological Science (BIOONE). 33 (5), 505-512 (2016).
- Hu, X. F., Zhang, B., Liao, C. H., Zeng, Z. J. High-Efficiency CRISPR/Cas9-Mediated Gene Editing in Honeybee Apis mellifera Embryos. G3: Genes, Genomes, Genetics. 9 (5), 1759-1766 (2019).
- Smith, B. H., Burden, C. M. A Proboscis Extension Response Protocol for Investigating Behavioral Plasticity in Insects: Application to Basic, Biomedical, and Agricultural Research. Journal of Visualized Experiments. (91), e51057(2014).
- Laemmli, U. K. Cleavage of structural proteins during the assembly of the head of bacteriophage T4. Nature. 227 (5259), 680-685 (1970).
- Protein Blotting Guide. , BIO-RAD. http://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_2895.pdf (2019).
- Rodriguez, J., Deinhardt, F. Preparation of a semipermanent mounting medium for fluorescent antibody studies. Virology. 12, 316-317 (1960).
- Custom Alt-R® CRISPR-Cas9 guide RNA. , Integrated DNA Technologies. https://www.idtdna.com/site/order/designtool/index/CRISPR_CUSTOM (2019).
- Bonnafe, E., et al. Effect of a thymol application on olfactory memory and gene expression levels in the brain of the honeybee Apis mellifera. Environmental Science and Pollutant Research (International). 22 (11), 8022-8030 (2015).
- Wang, Y., et al. Regulation of behaviorally associated gene networks in worker honeybee ovaries. Journal of Experimental Biology. 215 (Pt 1), 124-134 (2012).
Перепечатки и разрешения
