Мы описываем систематический рабочий процесс для исследования TGF-β сигнализации и TGF-β индуцированной ЭМТ, изучая белок и экспрессию генов, участвующих в этом сигнальном пути. Методы включают западные blotting, анализ репортера luciferase, qPCR, и окрашивание immunofluorescence.
Методическая статья
Изучение TGF-β сигнализации и TGF-β индуцированных Эпителиальный к мезенхимальный переход в рак молочной железы и нормальных клеток
В этой статье
Уведомление об исправлении
Important: There has been an erratum issued for this article. View Erratum Notice
Краткое содержание
Аннотация
Преобразование фактора роста β (TGF-β) является секретным многофункциональным фактором, который играет ключевую роль в межклеточной коммуникации. Возмущение TGF-β может привести к раку молочной железы. TGF-β вызывает свое влияние на пролиферацию и дифференциацию с помощью специфических клеточных поверхностей TGF-β типа I и рецепторов типа II (т.е. ТРИ и ТЕРИИ), которые содержат внутренний домен серина/трионина киназы. При формировании гетеромерного комплекса, β TGF-β, активированный ТЦРИ вызывает внутриклеточную сигнализацию путем фосфорилирования SMAD2 и SMAD3. Эти активированные SMAD образуют гетеромерные комплексы с SMAD4 для регулирования конкретных генов-мишеней, включая ингибитор активации плазминогена 1 (PAI-1, кодируемый геном SERPINE1). Индукция эпителиального к мезенхимального перехода (ЭМТ) позволяет эпителиальным раковым клеткам на первичном участке или во время колонизации в отдаленных местах получить инвазивный фенотип и стимулировать прогрессирование опухоли. TGF-β выступает в качестве мощного индуктора вторжения рака молочной железы, вождение скорой помощью. Здесь мы описываем систематические методы исследования сигнальных и эмТ-ответов TGF-β с использованием предмальнагиальных клеток MCF10A-RAS (M2) и клеток эпителии мыши NMuMG. Мы описываем методы определения TGF-β-индуцированного фосфорилирования SMAD2 западными blotting, SMAD3/SMAD4-зависимой транскрипционной активностью с использованием активности репортера люциферазы и экспрессии целевого гена SERPINE1 количественной цепной реакцией в реальном времени(qRT-PCR). Кроме того, описаны методы изучения ЭМТ, вызванной TGF-β путем измерения изменений в морфологии, эпителиальной и мезенхимальной экспрессии маркеров, окрашивания филаментного актина и окрашивания иммунофлюоресценции Е-кадерин. Два селективных малых молекул TGF-β рецепторов киназы ингибиторы, GW788388 и SB431542, были использованы для блокирования TGF-β-индуцированной SMAD2 фосфорилирования, целевых генов и изменения в экспрессии маркера EMT. Кроме того, мы описываем трансдифференцирование мезенхимальной груди Py2T мурин эпителиальных опухолевых клеток в адипоциты. Методы изучения TGF-β сигнализации и ЭМТ при раке молочной железы могут способствовать новым терапевтическим подходам к раку молочной железы.
Введение
Цитокины, трансформующие фактор роста-β (TGF-β), являются прототипом большой группы структурно и функционально связанных регуляторных полипептидов, включая TGF-к (т.е. TGF-1, -No2 и -No3), костные морфогенные белки (БМП) иактивины 1,2. Все эти цитокины играют важную роль в эмбриональном развитии и в поддержании тканей и гомеостазаорганов 3. Неправильное регулирование TGF-β может привести к большому разнообразию заболеваний, в том числерак 4,5. TGF-β играет сложную, двойную роль в прогрессировании рака: в нормальных и предмальтеняющих эпителиальных клетках, TGF-β ведет себя как опухолевый супрессор, подавляя пролиферацию и вызываяапоптоз 6,7; однако, на поздней стадии прогрессирования опухоли, когда цитостатические реакции блокируются активацией онкогенов или потерей генов супрессора опухоли, TGF-β действует как усилитель опухоли, способствуя эпителиалю к мезенхимальной переходу (EMT) в раковых клетках, тем самым позволяя вторжениюраковыхклеток и метастазам, действуя на клетки в микроэнвиронеопухоли, и стимулируя ангиогенез ииммунный
TGF-β выделяется как неактивная молекула-предшественник, содержащая зрелый карбокси-терминал TGF-β и связанный с задержкой пептид (LAP)11. Этот небольшой комплекс может быть ковалентно связан скрытым TGF-β связывающим белком (LTBP)12. Освобождение зрелых TGF-β может быть опосредовано действием конкретных протеаз, которые расщепляют LAP или механическим потянув LAP в интегрин-зависимыйпроцесс 13,14. В дополнение к LTBP, гликопротеин повторения преобладают (GARP) высоко выражается на поверхности регуляторных Т-клеток (Tregs) и играет аналогичную роль, как LTBP в регулировании активации TGF-β15,16. GARP напрямую связывается с скрытыми TGF-β путем дисульфидной связи и нековалентной ассоциации. Активация TGF-β из комплекса GARP/TGF-β требует integrins17. Зрелые рецепторы TGF-β связываются с рецепторами TGF-β serine/threonine kinase,т.е. рецепторами TGF-β типа I (T'RI) и TGF-β типа II (ТИРИИ) для инициирования сигнализации. Привязка ТГФ-β к ТРИИ способствует набору ТРИ и формированию гетеромерного комплекса. Впоследствии ТЗРИ фосфорилируется киназой T'RII на остатках серина и трионина в коротком мотиве, богатом глицином и серином (GS), что приводит к егоактивации 19,20. После активации активированный ТЗРИ набирает и фосфорилатирует свои субстраты: два специфических рецептора SMAD (R-SMADs), которые включают SMAD2 и SMAD3 (Рисунок 1). R-SMAD имеют аналогичную общую структуру с двумя так называемыми доменами Mad гомологии, MH1 и MH2, которые разделены пролин-богатым регионом связующим звеном(рисунок 2). Мотив связывания ДНК в домене MH1 SMAD3 не сохраняется между SMAD2 и SMAD3, и SMAD2 не может напрямую связать ДНК из-за двух вставок в домен MH1 (exon 3 и L1). SMAD2 и SMAD3 могут быть активированы фосфорилированием мотива SSXS в их C-термини(рисунок 2). Фосфорилированный SMAD2/3 образует гетеромерные комплексы с общим посредником SMAD, SMAD4, который транслокирует в ядро, чтобы модулировать транскрипциюгенов-мишеней (рисунок 1)7,21. Этот канонический сигнальный путь SMAD точно регулируется и генерирует конкретные клеточные и тканевые реакции, такие как регуляции клеточной судьбы и метастазы опухолевых клеток ивторжение 22. В дополнение к TGF-β-SMAD сигнализации, не-SMAD сигнальные пути также могут быть непосредственно активированы рецепторами для регулирования вниз по течению клеточныхреакций 23.
Во время прогрессирования опухоли, активация TGF-β индуцированных SMAD-зависимых и SMAD-независимых путей необходимы для индукции ЭМТ. ЭМТ является обратимым процессом, в котором опухолевые клетки отразятся от эпителиального фенотипа, который связан с потерей контактов клеток и снижением апокалико-базальной полярности, до мезенхимального фенотипа с повышенной подвижностью и способностьювторжения 24. ЭМТ характеризуется повышенным экспрессией мезенхимальных белков маркера, включая N-кадерин, виментин, зеб2 и улитку1/2, и сопутствуя даунрегуляции эпителиальных маркеров, таких как E-кадерин и β-катенин(рисунок 3)25. Однако переход от эпителиального к мезенхимальной состоянии часто является неполным, и клетки приобретают смешанные эпителиальные и мезенхимальные (E/M) характеристики. В недавнем документе Международной ассоциации EMT предлагается описать процесс клеток, проходящих промежуточные E / M фенотипических состояний, как эпителиально-мезенхимальной пластичности (EMP)26. Эта пластичность относится к частичной EMT, гибридный E / M статус, метастабийное состояние EMT, EMT континуум и спектрEMT 26. Во время ЭМТ опухолевые клетки приобретают свойства раковых стволовых клеток (CSC) и становятся более устойчивыми к отслоению индуцированного апоптоза27. В то время как ЭМТ несет ответственность за приобретение инвазивного фенотипа в первичных опухолевых клетках и приводит к прогрессированию рака, напротив, мезенхимально-эпителиальный переход (MET) как было показано, играет важную роль в результате распространения опухолевых клеток на отдаленныхметастатических участках 28,29. Недавнее исследование показало, что ЭМТ полученных клеток рака молочной железы могут быть трансдифференцированы в адипоциты, которые могут предложить возможность ингибировать метастазы и преодолеть устойчивость к терапии в опухолевых клетках ирецидив рака 30. В связи с важной ролью TGF-β сигнализации в активации ЭМТ в канцерогенеза молочной железы, мы представляем подробные протоколы для западного blotting, luciferase транскрипционной репортер анализа, количественные в режиме реального времени-полимеразы цепной реакции (qRT-PCR), и иммунофлюоресценции для исследования TGF-β сигнализации, TGF-β-индуцированной ЭМТ, и трансдифференцирование ЭМТ полученных мамин груди эпителиальных опухолевых клеток в адипоцитов. Эти методы являются наиболее часто используемыми аналитическими инструментами в области клеточной биологии. qRT-PCR используется для обнаружения, характеристики и количественной оценки уровней экспрессии мРНК в количественном выражении. По сравнению с количественным ПЦР (qPCR), альтернативный метод, обратная транскрипция (RT)-PCR может быть использован для определения экспрессиимРНК в полуколичебной манере 31,32. Западный blotting использован для того чтобы рассмотреть специфически уровни протеина в, что дали образце лизата клетки с преимуществами чувствительности и специфичности, в semi-количественном образе. Таким образом, мы представляем систематический рабочий процесс для анализа изменений от экспрессии генов до экспрессии белка, чтобы помочь исследовать TGF-β сигнализации, которые также могут быть применены к другим сигнальным путям.
Протокол
1. Анализ TGF-β SMAD2 фосфорилирования с использованием западного blotting
ПРИМЕЧАНИЕ: Предустановка человеческой груди MCF10A-Ras клетки были использованы в качестве примера для исследования TGF-β сигнализацииответы 33. В принципе, описанные ниже методы применимы и к другим линиям клеток TGF-β-го реагирования.
- Культура груди эпителиальной клеточной линии MCF10A-Ras при 37 градусов по Цельсию в Dulbecco модифицированных Eagle среды (DMEM)/F12, содержащий L-глутамин с 5% лошади сыворотки, 20 нг/мл эпидермального фактора роста (EGF), 10 мг/мл инсулина, 100 нг/мл энтеротоксина холеры, 0,5 мг/мл гидрокортизона и 1:100 пенициллин-стрептомицин (Pen-Strep).
- Трипсинизировать клетки MCF10A-Ras с 1 мл 0,25% трипсина-ЭДТА в течение 1 минуты и рассчитывать жизнеспособные клетки с помощью счетчика клеток.
- Семенные клетки в 6-хорошо пластин при плотности 5× 5клеток / хорошо.
- После ночного роста, лечить клетки либо TGF-β (5 нг/мл) или лиганд буфер (4 мМ HCl, 0,1% жирных кислот, свободных от крупного рогатого скота альбумин сыворотки (BSA)) в течение 1 часа, а затем удалить культуру среды и аккуратно мыть клетки дважды с 1 мл фосфат-буферного солевого раствора (PBS).
- Охладить клетки в 6-хорошо пластин на льду и добавить 150 йл предварительно обохлажденной радио иммунной анализа осадков (RIPA) лиза буфера (150 мММ NaCl, 0,1% Тритон X-100, 0,5% деоксихола натрия, 0,1% SDS, 50 мМ Tris-HCl рН 8,0, и свежеприложенный мини-ингибитор протеазы коктейль). Разрешить лизу продолжать на льду в течение 10 минут.
- Очистите адепт клетки от тарелки с помощью пластиковой клетки скребок, а затем осторожно передать клеточной подвески в предварительно облеарелую трубку микроцентрифуга.
- Центрифуга клетки лизать в течение 10 минут при 150 центробежной силе(х г)при 4 градусов по Цельсию и перенести супернатант в свежую микроцентрифугную трубку 1,5 мл.
- Измерьте концентрацию протеина используя набор анализа протеина совместимого (DC) (DC).
- Загрузите 30 мкг белка из каждого образца на 10% натрия додекил сульфат полиакриламид гель электрофорез (SDS-PAGE) гель и запустить гель на напряжение 100 V в течение 1,5-2 часов.
- Перенесите белки из геля в мембрану 45-мк поливинилиден дифторида (PVDF) при напряжении 110 В в течение 1-1,5 часов.
- Перенесите мембрану PVDF в соответствующий контейнер со стороной белка (сторона, которая столкнулась с гелем) вверх, и кратко промыть мембрану в дистиллированной воде.
- Отбросьте воду, добавьте раствор Ponceau S и поставьте мембрану на платформу для качания на 1-2 минуты.
- Де-пятно мембраны с дистиллированной водой, быстро полоскания его, а затем мыть его в течение 1 минуты.
- Затем положите мембрану PVDF на световую коробку и сделайте снимок, чтобы проверить на наличие равных общих нагрузок белка.
- Вымойте мембрану с помощью солевого раствора Tris-buffered с Tween 20 (TBST, 20 mM Tris-HCl, pH 7.4, 150 mM NaCl и 0.1% Tween 20) до тех пор, пока не будет видимого окрашивания.
- Поместите мембрану в блокирующий буфер (5% обезжиренного молока в растворе TBST) и инкубировать его в течение 1 часа при комнатной температуре.
- Вымойте мембрану дважды с TBST.
- Инкубировать мембрану с первичными антителами против фосфо-SMAD2 (p-SMAD2; 1:1000, самодельные 34), всего SMAD2/3 1:1000 и глицеральдегид 3-фосфат дегидрогеназы (GAPDH; 1:1000), на ночь при 4 градусов по Цельсию.
- Вымойте мембрану дважды с TBST и инкубировать мембрану со вторичным антителом против кролика или мыши (1:5000) в течение 2 часов.
- Инкубировать мембрану PVDF с помощью западного субстрата ECL в течение 30 секунд, и обнаружить сигнал с помощью системы визуализации.
- Повторите эксперименты по крайней мере три раза, чтобы получить биологические трипликаты.
2. Анализ вызванных TGF-β SMAD3-зависимых транскрипционных ответов
- Выполните SMAD3/SMAD4-зависимых CAGA12-luciferase транскрипционные репортер анализа.
- Культура и трипсинизировать клетки MCF10A-Ras, как описано в шаге 1. Семенные клетки в 24-хорошо пластин на 5×10⁴ клеток / хорошо и позволяют клеткам придерживаться на ночь.
- На следующий день после посева, cotransfect клетки в каждом хорошо с 100 нг TGF-β/SMAD3-inducible (CAGA)12 люцифераза транскрипционные репортерпостроить 35 и 80 нг β-galactosidase выражение построить с использованием полиэтиленилен (PEI). Для нормализации различий в эффективности β между различными скважинами используется трансинфекция в результате 100-β-галактозидазы. Навестите каждую экспериментальную группу в тройном режиме.
- После 24 часов инкубации, голодают клетки с сывороткой свободной DMEM-высокой глюкозы и, 6 часов спустя, добавить TGF-β (5 нг/мл) или лиганд буфера (4 мМГ, 0,1% BSA) в качестве управления транспортным средством для клеток.
- После еще 24 часов инкубации, мыть клетки дважды с довоенным PBS.
- Добавьте 120 мкл/хорошо 1× лиза буфера и аккуратно встряхните пластину при 4 градусов по Цельсию в течение 20 минут.
- Передача 30 мкл лизата в каждую колодец 96-ну белый анализ микропластицы для измерения активности люциферазы с помощью люминометра.
- Передача 50 мкл лизата в каждую колодец 96-хорошо прозрачной пластины для измерения β-галактозидазы деятельности.
- Нормализуйте активность люциферазы до β-галактозидазы и повторите эксперименты не менее трех раз для получения биологических трипликатов.
- Проанализируйте экспрессию TGF-β генов с использованием количественной цепной реакции полимеразы в режиме реального времени (qRT-PCR).
- Культура и трипсинизировать клетки MCF10A-Ras, как описано в шаге 1. Семенные клетки в 6-хорошо пластин на 5×10⁵ клеток / хорошо и позволяют клеткам придерживаться на ночь.
- Лечить клетки с TGF-β (5 нг/мл) или лиганд буфер (4 мМН HCl, 0,1% BSA) в течение 6 часов, а затем мыть клетки дважды с 1 мл PBS.
- Изолировать полную РНК с помощью комплекта изоляции РНК.
- Определите концентрацию РНК с помощью NanoDrop и выполните синтез кДНК с помощью 1 мкг РНК с помощью первого набора синтеза кДНК.
- Используйте систему обнаружения ПЦР в режиме реального времени для выполнения количественных ПЦР в режиме реального времени (qRT-PCR) с десятикратным разбавленным кДНК в смеси реакции 10 л, которая включает в себя конкретные человеческие форвардные и обратные грунтовки для GAPDH (для нормализации), SERPINE1 (кодирование белка PAI-1, целевой ген TGF-β/SMAD), SMAD7 (целевой ген TGF-β/SMAD) и qPCR Master Mix. Навестите каждую экспериментальную группу в тройном режиме.
ПРИМЕЧАНИЕ: Праймер последовательности, используемые для обнаружения целевых генов человека в qRT-PCR перечислены в таблице 1. - Используйте следующие условия реакции qPCR: инициализация, 95 градусов по Цельсию в течение 3 минут; денатурация, 95 градусов по Цельсию в течение 10 секунд; аннеалирование, 60 градусов по Цельсию в течение 30 секунд; и расширение, 80 градусов по Цельсию в течение 10 секунд; денатурация, аннеализация и расширение повторяются 40 раз.
- Повторите эксперименты по крайней мере три раза, чтобы получить биологические трипликаты.
3. Анализ TGF-β индуцированной скорой МТ
- Проанализируйте экспрессию маркеров ЭМТ на уровне белка с помощью западного blotting.
ПРИМЕЧАНИЕ: Анализ TGF-β индуцированных EMT показано с помощью мыши NMuMG эпителиальных клеток вкачестве примера 36,37.- Культура NMuMG клетки при 37 градусов по Цельсию в DMEM-высокой глюкозы среды дополняется 10% плода бычьей сыворотки и 1:100 Pen-Strep. Используйте методы, описанные в шаге 1 для изоляции и обнаружения белка.
ПРИМЕЧАНИЕ: В этом эксперименте используются следующие антитела: E-кадерин, 1:1000; Н-кадерин, 1:1000; Улитка, 1:1000; Слизняк, 1:1000; Тубулин, 1:1000(рисунок 3).
- Культура NMuMG клетки при 37 градусов по Цельсию в DMEM-высокой глюкозы среды дополняется 10% плода бычьей сыворотки и 1:100 Pen-Strep. Используйте методы, описанные в шаге 1 для изоляции и обнаружения белка.
- Проанализируйте выражение маркеров EMT на уровне мРНК с помощью количественного ПЦР в режиме реального времени, как описано в шаге 2.2.
ПРИМЕЧАНИЕ: Все мышеловки, используемые для qRT-PCR, в том числе CDH1 (кодирование белка E-кадхерин), SNAIL, и ЗЕБ2 (Рисунок 3) перечислены в таблице 1. - Проанализируйте процесс ЭМТ с помощью косвенного иммунофлуоресценции и прямого окрашивания флуоресценции.
- Косвенное окрашивание иммунофлюоресценции Е-кадерин
- Поместите стерильные 18-мм квадратные стеклянные крышки в 6-хорошо пластин (одна обложка на колодец).
- Семя 1×10⁵ NMuMG клетки с 2 мл полного DMEM на 6-хорошо пластины и позволяют клеткам придерживаться на ночь.
- Аккуратно переместите крышки с адептами клеток на новую пластину 6 скважин и добавьте 2 мл среды культуры к колодцам.
- Лечить клетки с TGF-β (5 нг/мл) или лиганд буфер (4 мМ HCl, 0,1% BSA) в течение 2 дней.
- Удалите культурную среду и аккуратно промыть клетки дважды с 1 мл довоенной PBS.
- Исправить клетки, добавив 1 мл 4% параформальдегида и инкубации в течение 30 минут при комнатной температуре. Затем аккуратно промыть клетки дважды с 1 мл PBS.
- Permeabilize фиксированных клеток с 0,1% Triton X-100 в течение 10 минут при комнатной температуре и мыть клетки дважды с PBS.
- Блок клетки с 5% BSA в PBS в течение 1 часа при комнатной температуре и мыть клетки дважды с PBS.
- Добавить первичное антитело против E-кадерин (разбавленный 1:1000 в PBS) в верхней части каждого крышки и инкубировать в течение 1 часа при комнатной температуре.
- Удалить первичные антитела и мыть крышку с PBS три раза.
- Добавьте вторичное антитело Alexa Fluor 555 (разбавленное 1:500 в PBS) к верхней части каждого крышки и инкубировать в течение 1 часа при комнатной температуре, покрывая алюминиевой фольгой для защиты от света.
- Удалить вторичное антитело и мыть крышку с PBS три раза.
- Накрепите крышку (клетки, обращенные вниз) на стеклянные горки с помощью монтажной среды с 4',6-diamidino-2-фенилиндол (DAPI) и храните установленные горки в коробке при 4 градусах Цельсия, защищенной от света.
- Наблюдайте окрашивание конфокальные микроскопии SP8.
- Прямое флуоресцентное окрашивание нити (F)-актина.
- Подготовь примеры следующими шагами 3.3.1.1. до 3.3.1.9.
- Пятно клеток, добавив Alexa Fluor 488 фаллоидин (1:1000) в течение 1 часа при комнатной температуре в темноте, чтобы визуализировать нитевидный актин (F-актин).
- Вымойте клетки три раза с ПОМОЩЬю PBS.
- Намонтайте крышку на стеклянные горки с помощью монтажной среды с DAPI и сделайте снимки с помощью конфокаловой микроскопии SP8.
- Косвенное окрашивание иммунофлюоресценции Е-кадерин
Результаты
Анализ сигнализации TGF-β
Ключевым шагом в TGF-β сигнализации является фосфорилирование двух самых карбокси терминала серин остатков в мотиве SSXS(рисунок 2) по киназы T'RI38,39. Для исследования TGF-β сигнальных реакций, мы выполнили западные blotting фосфорилированных SMAD2. В предмаляющих клетках молочной железы MCF10A-Ras фосфорилирование SMAD2 значительно увеличилось в ответ на стимуляцию TGF-β в течение 1 часа, в то время как выражение общего SMAD2/3 не было затронуто лечением TGF-β(рисунок 4A). С помощью TGF-β-индуцированной SMAD3/4-управляемый CAGA-люк транскрипционные репортер анализа, мы обнаружили, что TGF-β заметно индуцированных люцифераза репортер в MCF10A-Ras клетки линии по сравнению с необработанные клетки (Рисунок 4B). Кроме того, мы заметили, что хорошо охарактеризованные прямые транскрипционные цели генов TGF-β включая SMAD7 и SERPINE1 (кодирование белка PAI-1), были высоко выражены в TGF-β-обработанных клетках MCF10A-Ras(рисунок 4C).
Анализ TGF-β индуцированной скорой МТ
Мы оценивали TGF-β индуцированной ЭМТ с различными методами, такими как морфологические изменения, выражение маркеров ЭМТ на уровне мРНК и белка и иммунофлуоресценции окрашивания маркеровСКОРОй 36. Эпителиальные клетки NMuMG, обработанные TGF-β в течение 1 и 2 дней, превратились из классической эпителиальной морфологии в мезенхимальную морфологию в форме шпинделя, о чем свидетельствует фазовая контрастная микроскопия(рисунок 5A). В соответствии с морфологическими изменениями, мы заметили, что лечение TGF-β привело к увеличению экспрессии белка мезенхимальных маркеров, в том числе N-кадерин, улитка,и Слизень 37 (Рисунок 5B). В отличие от этого, E-кадерин, эпителиальный маркер, был downregulated в клетках NMuMG после 2 дней TGF-β(рисунок 5B). Кроме того, мы провели количественную цепную реакцию в режиме реального времени (qRT-PCR) для исследования экспрессии генов маркеров ЭМТ. CDH1 (кодирование белка E-кадхерин) был значительно снижен, в то время как мезенхимальные маркеры, такие как SNAIL и цинковый палец E-коробка связывания homeobox 2 (ЗЕБ2) были заметно увеличены после стимуляции TGF-β в клетках NMuMG по сравнению снеобработанными клетками ( рисунок 5C). TGF-β эмТ в клетках NMuMG была дополнительно подтверждена иммунофлуоресценции окрашивания E-кадерин. При стимуляции TGF-β в течение 2 дней клетки NMuMG выражали меньше E-кадерин, чем клетки в неиндуцированных контрольной группе, проанализированные конфокальной микроскопией(рисунок 5D). Кроме того, клетки NMuMG в присутствии TGF-β образуют больше актиновых стрессовых волокон, о чем свидетельствует конфокаленовая микроскопия(рисунок 5E).
SB431542 и GW788388 подавляют TGF-β сигнализацию и TGF-β индуцированной СКОРОй
SB431542 является конкурентоспособным ингибитором АТФ в области киназы ТЗРИ, также называют активин рецепторов, как киназы 5 (ALK5), в то время как GW788388 подавляет ТЗРИ и циназы деятельности ТЗРИ. Оба ингибитора могут ингибировать TGF-β рецептор сигнализации40. Таким образом, мы лечили клетки NMuMG с различными концентрациями GW788388 в присутствии TGF-β течение 1 часа. Как и ожидалось, GW788388 ингибирует TGF-β-индуцированного фосфорилирования SMAD2 в дозе зависимой манере(рисунок 6A). Кроме того, TGF-β опосредованное фосфорилирование SMAD2 было заблокировано лечением SB431542(рисунок 6A). Фосфорилированный SMAD2/3 образует гетеромерный комплекс с SMAD4 и транслокирует в ядро, чтобы модулировать транскрипцию генов-мишеней. Поэтому мы исследовали транслокацию SMAD2/3 в клетках NMuMG путем иммунофлуоресценции окрашивания SMAD2/3. Данные показали, что как SB431542, так и GW788388 значительно ингибируют вызванную TGF-β ядерную транслокацию и накопление SMAD2/3 в ячейках NMuMG(рисунок 6B). Кроме того, ингибирующие эффекты SB431542 и GW788388 также наблюдались в уровнях экспрессии мРНК важных генов TGF-β, участвующих в ЭМТ, включая PAI-1, SNAIL, E-кадерин и фибронектин (рисунок 6C). Эти данные свидетельствуют о том, что SB431542 и GW788388 заблокировали TGF-β сигнализацию и TGF-β индуцированной скорой помощью.
Анализ трансдифференцирования мезенхимальных раковых клеток молочной железы в адипоциты
ЭМТ играет жизненно важную роль в повышении клеточной пластичности при раковых заболеваниях и приводит к развитию резистентности к терапии. Пластичность раковых клеток может быть непосредственно направлена и ингибируется с транс-дифференциации подход, такие как принудительный адипогенез30. Мы использовали Py2T мурин раковые клетки молочной железы, которые были получены из молочной железы мыши молочной опухоли вирус-полиома средней опухоли-антиген (MMTV-PyMT) трансгенной мыши, как клеточная модель ЭМТ-индуцированной пластичной ткани рака. На основе установленногопротокола 41, мы лечили ЭМТ полученных Py2T мурин раковых клеток молочной железы с антидиабетической наркотиков rosiglitazone в течение 10 дней, чтобы вызвать адипогенез. Адипогенез был оценен путем визуализации липидных капель с использованием масляного красного O окрашивания. Толстые клетки были легко обнаружены в rosiglitazone обработанных Py2T мурин раковых клеток молочной железы (Рисунок 7), который показал, что лечение только розиглитазон достаточно для содействия трансдифференцирования ЭМТ полученных клеток рака молочной железы в адипоциты.

Рисунок 1: сигнальная сигнализация TGF-β/SMAD. TGF-β сигналит инициирует связывание TGF-β с рецептором TGF-β типа II (T'RII), составно активной киназы, которая фосфорилатирует рецептор TGF-β типа I (T'RI). Затем активируются фосфорилаты киназы ТЗРИ SMAD2/3. Пептид, содержащий мотив SSXS SMAD2 с двумя карбокси терминала фосфорилированных остатков серина был использован для получения поликлональной антисеры признания фосфора-SMAD2 (p-SMAD2). Таким образом, анализ экспрессии p-SMAD2 западным blotting может быть использован для определения активации TGF-β сигнального пути. Фосфорилированный SMAD2/3 может образовывать гетеромерные комплексы с SMAD4, которые затем транслокируются в ядро для модуляции транскрипционных реакций. CAGA12-luciferase репортер анализа и количественного ПЦР в режиме реального времени (qRT-PCR) для экспрессии мРНК целевых генов TGF-β, таких как SMAD7 и SERPINE1 (кодирование PAI-1 белка), могут быть использованы для анализа TGF-β-индуцированной SMAD3-зависимых транскрипционных ответов. Пожалуйста, нажмите здесь, чтобы просмотреть большую версию этой цифры.
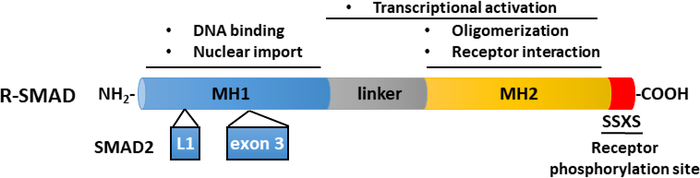
Рисунок 2: Схематическая структура R-SMADs (SMAD2 и SMAD3). MH1 (синий) и MH2 (желтый) домены сохранены среди R-SMADs, но область связующим звена (серый) не сохраняется. Mh1 домен SMAD3 гавани ДНК-связывающий мотив, в то время как SMAD2 не может напрямую связать ДНК, из-за вставки (exon 3) в mh1 домена. Домен MH2 опосредует олигомеризацию SMAD, взаимодействие с рецепторами TGF-β и связывание белков и участвует в транскрипционное регулирование. SMAD2 и SMAD3 могут быть активированы фосфорилированием мотива SSXS (красным цветом) в их C termini. Пожалуйста, нажмите здесь, чтобы просмотреть большую версию этой цифры.
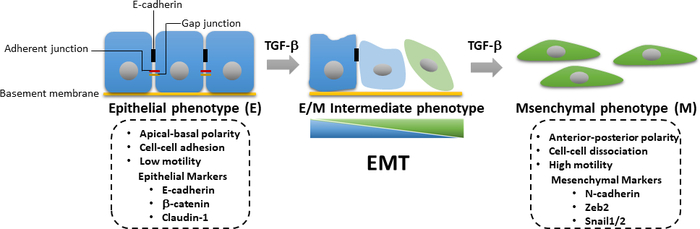
Рисунок 3: TGF-β индуцированной скорой МТ. Во время TGF-β индуцированного эпителиально-мезенхимального перехода (ЭМТ), клетки подвергаются потере эпителия и приобретению мезенхимальных характеристик с повышенной подвижностью клеток и способностью к вторжению. Индукция ЭМТ приводит к выражению мезенхимальных маркеров, таких как N-кадерин, Зеб2 и Snail1/2, а также к снижению эпителиальных маркеров, включая E-кадерин, β-катенин и клаудин-1. Накопившиеся потери или увеличение эпителиальных/мезенхимальных (E/M) характеристик приводит к тому, что клетка вводит промежуточные состояния обратимым образом. Пожалуйста, нажмите здесь, чтобы просмотреть большую версию этой цифры.
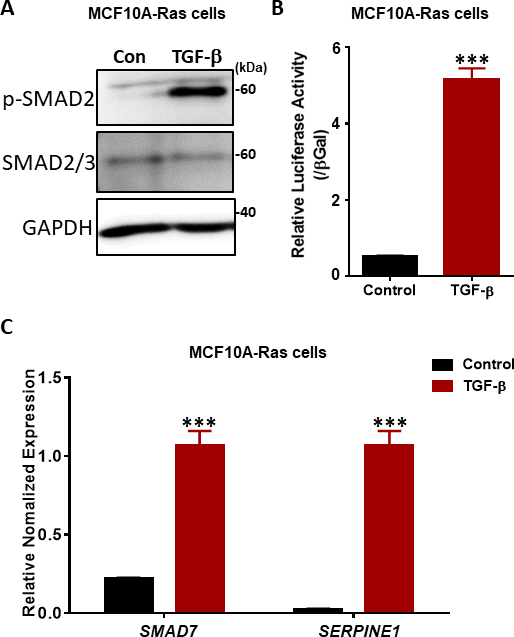
Рисунок 4: TGF-β сигнальные реакции в клетках MCF10A-Ras. (A) MCF10A-Ras клетки лечились либо с или без TGF-β (2,5 нг/мл) в течение 1 часа, и лизолаты клеток были иммуноблотты для фосфорилированных SMAD2 (p-SMAD2), общее SMAD2/3 и GAPDH (в качестве контроля нагрузки). Маркер размера отображается справа. Con: Контрольная группа без лечения TGF-β лечения. (B) Анализ активности TGF-β (5 нг/мл) с использованием транскрипционные репортеры SMAD3-SMAD4-зависимых CAGA12-luciferase (LUC) в клетках MCF10A-Ras. Значения нормализуются для β-галактозидазы (ЗГАЛ). Данные выражаются как среднее ± s.d, n No 3. Студенческий т-тест, No P ≤ 0.001(C) qRT-PCR анализ TGF-β целевых генов SMAD7 и SERPINE1 (кодирование белка PAI-1) в клетках MCF10A-Ras, обработанных TGF-β (2,5 нг/мл) в течение 6 часов. GAPDH использовался в качестве внутреннего контроля. Данные выражаются как среднее ± s.d, n No 3. Тест студента, No P ≤ 0,001. Пожалуйста, нажмите здесь, чтобы просмотреть большую версию этой цифры.
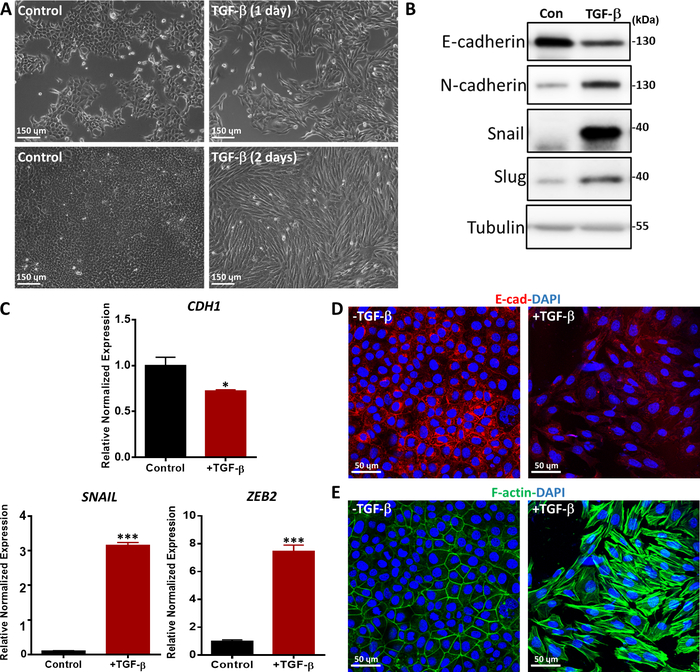
Рисунок 5: TGF-β индуцированной ЭМТ в клетках NMuMG. (A)Морфология клеток NMuMG, обработанных TGF-β (2,5 нг/мл) в течение 1 или 2 дней. В присутствии TGF-β клетки NMuMG трансдифференцированы в мезенхимальный фенотип. Шкала бар 150 мкм (B) NMuMG клетки были обработаны с или без TGF-β (5 нг/мл) в течение 2 дней, и ЭМТ маркеры были проанализированы западной blotting. Маркер размера указан справа. Con: Контрольная группа без лечения TGF-β лечения. (C)Анализ экспрессии генов маркеровЭМТ (CDH1 (кодирование белка E-кадхерин), SNAIL и ЗЕБ2) в клетках NMuMG, обработанных в течение 2 дней с TGF-β (5 нг/мл). GAPDH использовался в качестве внутреннего контроля. Результаты выражаются как среднее ±, n No 3. Студенческий т-тест, "P ≤ 0,05, "P ≤ 0,01", "P ≤ 0,001. (D) NMuMG клетки были окрашены иммунофторесценции для обнаружения экспрессии эпителиального маркера E-кадерин (красный) после TGF-β (2,5 нг / мл) лечения в течение 2 дней. Ядра были противоядие с DAPI (синий). Изображения были сняты с помощью конфокального микроскопии. Шкала бар 50 мкм (E) NMuMG клетки были окрашены флуорескин-фаллоидин (зеленый) для визуализации F-актина. Ядра были противоядие с DAPI (синий). Масштабная планка 50 мкм. Пожалуйста, нажмите здесь, чтобы просмотреть большую версию этой цифры.
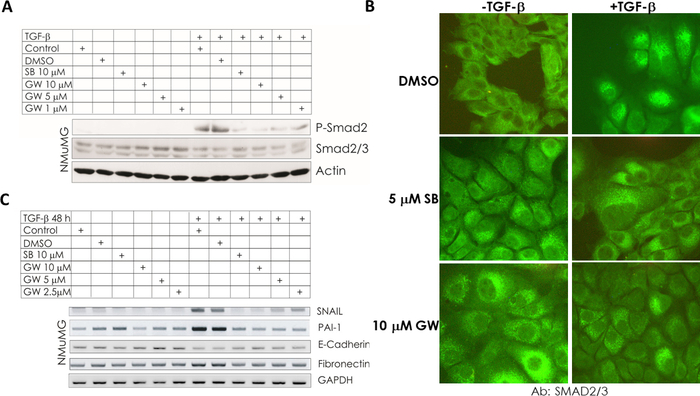
Рисунок 6: TGF-Signaling и TGF-β индуцированной ЭМТ были ингибированы SB431542 и GW788388. (A) NMuMG клетки были обработаны с 10 МКГ SB431542 (SB) или указанные концентрации GW788388 (GW) в присутствии или отсутствии TGF-β (5 нг/мл) в течение 1 часа. Лизаты клеток были иммуноблоттированы для p-SMAD2, SMAD2/3 и GAPDH. (B) NMuMG клетки были обработаны с 5 МКГ SB431542 (SB) или 10 МКГ788388 (ГВт) в присутствии или отсутствии 5 нг / мл TGF-β в течение 1 часа и окрашенных иммунофлуоресценции для обнаружения ядерной транслокации SMAD2/3 (зеленый). Изображения были сняты с помощью конфокального микроскопии. (C) Выражение генов-мишеней TGF-β, включая PAI-1 и гены, кодирующие маркеры СКОРОЙ помощи, включая SNAIL, E-Cadherin и Fibronectin, были проанализированы с помощью обратной транскриптазной полимеразной цепной реакции (RT-PCR) в клетках NMuMG после лечения SB или GW и стимуляции TGF-β в течение 48 часов. GAPDH служил в качестве управления погрузкой. Контроль обозначает необработаемые клетки. Эта цифра была изменена из Петерсен М. и др. 34 с разрешения издателя. Пожалуйста, нажмите здесь, чтобы просмотреть большую версию этой цифры.
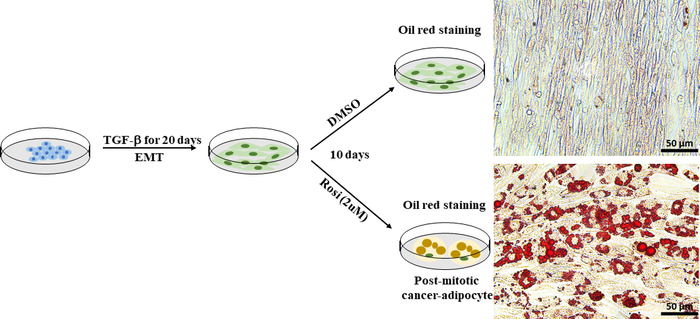
Рисунок 7: ЭМТ полученных Py2T мурин раковые клетки молочной железы могут быть вызваны дифференцироваться в адипоциты. Py2T мурин раковые клетки молочной железы были стимулированы с 2 нг / мл TGF-β течение 20 дней, чтобы вызвать полную ЭМТ. Затем, клетки были обработаны либо с DMSO как управление транспортным средством или розиглитазон (2 МК) в течение 10 дней, чтобы дифференциация мезенхимальных раковых клеток и вызвать адипогенез. Среда менялась каждые 2 дня. После 10 дней лечения, клетки были окрашены в масляный красный O. Шкала бар 50 мкм. Пожалуйста, нажмите здесь, чтобы просмотреть большую версию этой цифры.
| вид | Имя гена | Форвард (5' к 3') | Обратный (5' до 3') | ||
| человеческий | ГАДДХ | TGCACCACCAACTGCTTAGC | GGCATGGACTGTGGTCATGAG | ||
| SMAD7 | TCCAGATGCTGTGCCTTCC | GTCCGAATTGAGCTGTCCG | |||
| СЕРПИН1 | КАКААААТКАГКАГГАКПАКАКТ | CATCGGGCGTGGTGAACTC | |||
| мышь | ГАДДХ | TGGCAAAGTGGAGATTGTTGCC | AAGATGGTGATGGGCTTCCCG | ||
| CDH1 | ACCAAAGTGACGCTGAAGTC | ГАГААТГТТТГГКААТГГ | |||
| улитка | CAGCTGGCCAGGCTCTCGGT | GCGAGGGCCTCCGGAGCA | |||
| ЗЕБ2 | TTCTGCAAGCCTCTGTAGCC | TTCTGGCCCCATTGCATCATCAT | |||
Таблица 1: Праймеры, используемые для qRT-PCR.
Обсуждение
TGF-β/SMAD сигнализации играет ключевую роль в прогрессировании рака молочной железы, так как это может способствовать инвазивности клеток рака молочной железы и метастазов, вызывая EMT7. Здесь мы описали логический рабочий процесс для исследования TGF-β инициированной сигнализации от индуцированной рецепторами активации SMAD к транскрипционным и биологическим ответам SMAD. Мы начали с описания анализа фосфорилирования SMAD2, продолжили TGF-β-индуцированные SMAD3-зависимые транскрипционные реакции и экспрессию маркера EMT как на уровне генов, так и белков для анализа сигнальной реакции TGF-β/SMAD, и, наконец, изучили TGF-β-индуцированной СКОРОЙ. Мы использовали CAGA12-luciferaseтранскрипционные репортер, содержащий коробки CAGA, полученные от промоутера PAI-1, для мониторинга деятельности TGF-β/SMAD сигнальныйпуть 35. Эта конструкция репортера требует активации SMAD3 и SMAD4. Предыдущие исследования показали, что нокдаун SMAD4 attenuated TGF-βиндуцированной CAGA 12-люциферазадеятельности 37. В дополнение к анализу репортера, определение состояния фосфорилирования эндогенных SMADs, в том числе SMAD2 и SMAD3, является еще одним способом исследовать TGF-β сигнализации ответ. Действительно, другие члены семьи TGF-β, такие как фактор роста и дифференциации (GDF)-8/myostatin и GDF-9, также трансдуцовые сигналы через белки SMAD2/3, привлекая T'RI42,43,44. В дополнение крепортеру CAGA 12-luciferase, несколько подобных репортеров были использованы для обнаружения активации TGF-β сигнализации. Например, транскрипционные (SBE)4-Lux репортер с элементами ответа, полученных от промоутера JunB может быть эффективно индуцированных TGF-β, активинов и BMPs45.
Западные blotting и qPCR были использованы для анализа TGF-β-индуцированной ЭМТ, которые являются классическими методами для исследования выражения эпителиальных маркеров (т.е. E-кадхерин) и мезенхимальных маркеров (т.е. N-кадерин, улитка, слизень и зеб2). Мы также выполнили косвенное окрашивание иммунофлюоресценции Е-кадерин и прямое флуоресцентного окрашивания F-актаина. Эти анализы еще больше подтвердили мезенхимальный фенотип клеток после лечения TGF-β лечения. Ограничение иммунофлуоресценции окрашивания является то, что клетки должны быть исправлены до инкубации с антителами и изображений, и трудно исследовать изменения в экспрессии маркера ЭМТ в живых клетках. В последнее время, дизайн EMT репортер клеточных линий, таких как A549 аденокарциномы легких-виментин-RFP, сделал возможным контролировать преобразование эпителиальных клеток мезенхимальных клеток в режиме реального времени через выражение красного флуоресцентного белка (RFP) помечены виментина. Эта платформа может быть использована для скрининга наркотиков и разработки новых лекарств46. LifeAct краситель, 17-аминокислотный пептид, который может пятно F-актин структур в живых клетках, становится ценным инструментом для визуализации актин цитоскелет в режиме реального времени, не вмешиваясь в клеточныепроцессы 47. В этом исследовании мы использовали два малых молекул ингибиторы, SB431542 и GW788388, чтобы проверить их ингибирующее воздействие на TGF-β сигнализации и TGF-β-индуцированной ЭМТ. Примечательно, что GW788388 сильно подавляет активность ТЦРИ и ТЦРИИ, в то время как SB431542 имеет ингибирующее действие только на ТРИ (и ALK4 и ALK7). Предыдущие исследования показали, что GW788388 является более мощным in vivo, чем SB43154240. В дополнение к ингибированию ЭМТ, GW788388 снижение экспрессии фиброзных маркеров в почках, и устное введения GW788388 у диабетических мышей заметно снизилась гломерулопатия25,48.
EMT играет важную роль в содействии пластичности раковых клеток и приводит к лекарственной устойчивости и метастазы 49. Таким образом, ориентация клеток, полученных из ЕМТ с конкретнымицитотоксическими препаратами 50 или индуцирующей редифференцирование с помощью мезенхимального к эпителиального перехода (MET)51, была предложена в качестве подхода к преодолению метастазов раковых клеток и резистентности к терапии. Тем не менее, MET способствует распространению рассеянных раковых клеток в отдаленныхорганах 52, которые могут быть контрпродуктивными при использовании терапевтической реверсии ЭМТ. Недавно новое исследование сообщило о терапевтическом подходе трансдифференцирования, непосредственно ориентируясь на клетки рака молочной железы, полученные из ЭМТ, для дифференциации наадипоциты 30. Исследование Ишай-Ронен и др. al.30 использовали эпителиальные раковые клетки Py2T murine, которые подверглись переходу на мезенхимальные клетки в ответ на длительное лечение TGF-β. Они продемонстрировали, что розиглитазон в сочетании с ингибиторами МЭК усиливает эпителиалитную дифференциацию и адипогенез. Тем не менее, мы обнаружили, что розиглитазон только было достаточно, чтобы вызвать трансдифференцирование мезенхимальных клеток py2T мурина в адипоциты.
Таким образом, методы, используемые в данном исследовании, обеспечили логический рабочий процесс для исследования TGF-β сигнализации и TGF-β индуцированной скорой помощи. Два ингибитора, SB431542 и GW788388, могут блокировать TGF-β индуцированные ответы и ЭМТ. Кроме того, мы также продемонстрировали розиглитазон только вызывает адипогенез в некоторых TGF-β индуцированных мезенхимальных раковых клеток молочной железы. Хотя мы использовали только несколько линий раковых клеток молочной железы для исследования TGF-β ответов, методы, описанные здесь, могут быть экстраполированы на другие (раковые) клетки. Здесь мы использовали различные концентрации TGF-β, чтобы вызвать клеточные реакции. В большинстве типов клеток TGF-β оказывает свою биологическую активность в диапазоне концентрации 0,01-10 нг/мл53 и вызывает сигнализацию в структуре реакции дозы. В первичных эндотелиальных клетках, включая аортальные эндотелиальные клетки крупного рогатого скота, TGF-β индуцировал существенное выражение фосфорилированного SMAD2 на уровне 0,025 нг/мл, достиг максимума в 0,25 нг/мл и оставался на этом уровне в ответ наболее высокие концентрации 53. В нашем исследовании мы использовали высокую концентрацию TGF-β (5 нг/мл) в клетках MCF10A-Ras для анализа транскрипционного репортера, чтобы получить сильные ответы. Фосфорилирование SMAD2 и экспрессия генов-мишеней могут быть вызваны TGF-β в низкой дозе; таким образом, мы использовали 2,5 нг/мл TGF-β для лечения клеток. Однако наиболее подходящая рабочая концентрация зависит от типа клетки и предполагаемых эффектов. Для определения наилучшей концентрации TGF-β, лечение клеток с различными дозами (от низких до высоких) рекомендуется.
Раскрытие информации
Авторов нечего раскрывать.
Благодарности
Мы признаем поддержку Китайского стипендиального совета (CSC) j.З. и Центра геномики рака Нидерландов (CGC. NL) в P.t.D.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| <сильно>реагент | |||
| 18 мм квадратные стеклянные покровные стекла | Menzel Glä ser | 631-1331 | |
| 4′,6-диамидино-2-фенилиндол (DAPI) | Vector Laboratories | H-1200 | |
| Alexa Fluor 488 Фаллоидин | Thermo Fisher Scientific | A12379 | |
| Alexa Fluor 555 вторичное антитело | Thermo Fisher Scientific | A-21422 | |
| Антитело против E-кадгерина | BD Biosciences | 610181 | |
| антитело против глицеральдегида 3-фосфатдегидрогеназы (GAPDH) | Merck Millipore | MAB374 | |
| антитело против N-кадгерина | BD Biosciences | 610920 | |
| антитело против слизней | Технология клеточной сигнализации | 9585 | |
| антитело против SMAD2/3 антитело | Becton Dickinson | 610842 | |
| антитело против улитки | Технология клеточной сигнализации | 3879 | |
| Антитубулиновые антитела | Технология клеточной сигнализации | 2148 | |
| Бычья сыворотка Альбумин | Sigma-Aldrich | A2058 | |
| Холерный энтеротоксин | Sigma-Aldrich | C8052 | |
| Clarity Western ECL Substrate | Bio-Rad | 1705060 | |
| набор для анализа белка DC | Bio-Rad | 5000111 | |
| DMEM-высокий уровень глюкозы | Thermo Fisher Scientific | 11965092 | |
| DMEM-среда с высоким содержанием глюкозы | Thermo Fisher Scientific | 11965092 | |
| Dulbecco' s модифицированный Eagle' s среда (DMEM)/F12 | Thermo Fisher Scientific | 11039047 | |
| эпидермальный фактор роста (EGF) | Merck Millipore | 01-107 | |
| Фетальная бычья сыворотка (FBS) | BioWest | S1860-500 | |
| GoTaq qPCR Master Mix | PROMEGA | A600X | |
| Лошадиная сыворотка | Thermo Fisher Scientific | 26050088 | |
| гидрокортизон | Sigma-Aldrich | H0135 | |
| Инсулин | Sigma-Aldrich | 91077C | |
| Мини коктейль ингибиторов протеазы | Roche | 11836153001 | |
| NucleoSpin RNA II набор | BIOKE´ | ||
| Пенициллин-стрептомицин (Pen-Strep) | Thermo Fisher Scientific | 15140148 | |
| Полиэтиленимин (ПЭИ) | Polyscience | 23966 | |
| Мембрана из поливинилидендифторида (PVDF) | Merck Millipore | IPVH00010 | |
| Ponceau S solution | Sigma-Aldrich | P7170 | |
| RevertAid First Strand cDNA Synthesis Kit | Thermo Fisher Scientific | K1621 | |
| Rosiglitazone | Sigma-Aldrich | 557366-M | |
| Обезжиренное молоко | Campina: Elk | ||
| Equipment | |||
| ChemiDoc Imaging System | Bio-Rad | 17001402 | |
| CFX Connect Detection System | Bio-Rad | 1855201 | |
| Люминометр | Perkin Elmer | 2030-0050 | |
| NanoDrop 2000/2000c Спектрофотометры | Thermo Fisher Scientific | ND-2000 |
Ссылки
- Tzavlaki, K., Moustakas, A. TGF-β Signaling. Biomolecules. 10 (3), (2020).
- Hao, Y., Baker, D., Ten Dijke, P. TGF-β-Mediated Epithelial-Mesenchymal Transition and Cancer Metastasis. International Journal of Molecular Sciences. 20 (11), (2019).
- Morikawa, M., Derynck, R., Miyazono, K. TGF-β and the TGF-β Family: Context-Dependent Roles in Cell and Tissue Physiology. Cold Spring Harbor Perspectives in Biology. 8 (5), (2016).
- Derynck, R., Akhurst, R. J. Differentiation plasticity regulated by TGF-β family proteins in development and disease. Nature Cell Biology. 9 (9), 1000-1004 (2007).
- Massague, J. How cells read TGF-β signals. Nature Reviews Molecular Cell Biology. 1 (3), 169-178 (2000).
- Seoane, J., Gomis, R. R. TGF-β Family Signaling in Tumor Suppression and Cancer Progression. Cold Spring Harbor Perspectives in Biology. 9 (12), (2017).
- Colak, S., Ten Dijke, P. Targeting TGF-β Signaling in Cancer. Trends in Cancer. 3 (1), 56-71 (2017).
- Suriyamurthy, S., Baker, D., ten Dijke, P., Iyengar, P. V. Epigenetic Reprogramming of TGF-β Signaling in Breast Cancer. Cancers (Basel). 11 (5), (2019).
- Drabsch, Y., Ten Dijke, P. TGF-β signalling and its role in cancer progression and metastasis). Cancer and Metastasis Reviews. 31 (3-4), 553-568 (2012).
- Goumans, M. J., Ten Dijke, P. TGF-β Signaling in Control of Cardiovascular Function. Cold Spring Harbor Perspectives in Biology. 10 (2), (2018).
- Robertson, I. B., Rifkin, D. B. Regulation of the Bioavailability of TGF-β and TGF-β-Related Proteins. Cold Spring Harbor Perspectives in Biology. 8 (6), (2016).
- Robertson, I. B., et al. Latent TGF-β-binding proteins. Matrix Biology. 47, 44-53 (2015).
- Khan, Z., Marshall, J. F. The role of integrins in TGF-β activation in the tumour stroma. Cell and Tissue Research. 365 (3), 657-673 (2016).
- Jenkins, G. The role of proteases in transforming growth factor-β activation. The International Journal of Biochemistry & Cell Biology. 40 (6-7), 1068-1078 (2008).
- Tran, D. Q., et al. GARP (LRRC32) is essential for the surface expression of latent TGF-β on platelets and activated FOXP3+ regulatory T cells. Proceedings of the National Academy of Sciences of the United States of America. 106 (32), 13445-13450 (2009).
- Stockis, J., Colau, D., Coulie, P. G., Lucas, S. Membrane protein GARP is a receptor for latent TGF-β on the surface of activated human Treg. European Journal of Immunology. 39 (12), 3315-3322 (2009).
- Wang, R., et al. GARP regulates the bioavailability and activation of TGF-β. Molecular Biology of the Cell. 23 (6), 1129-1139 (2012).
- Vander Ark, A., Cao, J., Li, X. TGF-β receptors: In and beyond TGF-β signaling. Cellular Signalling. 52, 112-120 (2018).
- Heldin, C. H., Miyazono, K., ten Dijke, P. TGF-β signalling from cell membrane to nucleus through SMAD proteins. Nature. 390 (6659), 465-471 (1997).
- ten Dijke, P., Hill, C. S. New insights into TGF-β-Smad signalling. Trends in Biochemical Sciences. 29 (5), 265-273 (2004).
- Miyazono, K. TGF-β signaling by Smad proteins. Cytokine & Growth Factor Reviews. 11 (1-2), 15-22 (2000).
- Yu, Y., Feng, X. H. TGF-β signaling in cell fate control and cancer. Current Opinion in Cell Biology. 61, 56-63 (2019).
- Zhang, Y. E. Non-Smad pathways in TGF-β signaling. Cell Research. 19 (1), 128-139 (2009).
- Katsuno, Y., Lamouille, S., Derynck, R. TGF-β signaling and epithelial-mesenchymal transition in cancer progression. Current Opinion in Oncology. 25 (1), 76-84 (2013).
- Lamouille, S., Xu, J., Derynck, R. Molecular mechanisms of epithelial-mesenchymal transition. Nature Reviews Molecular Cell Biology. 15 (3), 178-196 (2014).
- Yang, J., et al. Guidelines and definitions for research on epithelial-mesenchymal transition. Nature Reviews Molecular Cell Biology. 21 (6), 341-352 (2020).
- Zhang, Y., Weinberg, R. A. Epithelial-to-mesenchymal transition in cancer: complexity and opportunities. Frontiers in Medicine. 12 (4), 361-373 (2018).
- Brabletz, T., Kalluri, R., Nieto, M. A., Weinberg, R. A. EMT in cancer. Nature Reviews Cancer. 18 (2), 128-134 (2018).
- Ocana, O. H., et al. Metastatic colonization requires the repression of the epithelial-mesenchymal transition inducer Prrx1. Cancer Cell. 22 (6), 709-724 (2012).
- Ishay-Ronen, D., et al. Gain Fat-Lose Metastasis: Converting Invasive Breast Cancer Cells into Adipocytes Inhibits Cancer Metastasis. Cancer Cell. 35 (1), 17-32 (2019).
- Smith, C. J., Osborn, A. M. Advantages and limitations of quantitative PCR (Q-PCR)-based approaches in microbial ecology. FEMS Microbiology Ecology. 67 (1), 6-20 (2009).
- Bustin, S. A., Mueller, R. Real-time reverse transcription PCR (qRT-PCR) and its potential use in clinical diagnosis. Clinical Science. 109 (4), 365-379 (2005).
- Sundqvist, A., et al. JUNB governs a feed-forward network of TGF-β signaling that aggravates breast cancer invasion. Nucleic Acids Research. 46 (3), 1180-1195 (2018).
- Persson, U., et al. The L45 loop in type I receptors for TGF-β family members is a critical determinant in specifying Smad isoform activation. FEBS Letters. 434 (1-2), 83-87 (1998).
- Dennler, S., et al. Direct binding of Smad3 and Smad4 to critical TGF-β-inducible elements in the promoter of human plasminogen activator inhibitor-type 1 gene. The EMBO Journal. 17 (11), 3091-3100 (1998).
- Piek, E., Moustakas, A., Kurisaki, A., Heldin, C. H., ten Dijke, P. TGF-β type I receptor/ALK-5 and Smad proteins mediate epithelial to mesenchymal transdifferentiation in NMuMG breast epithelial cells. Journal of Cell Science. 112, Pt 24 4557-4568 (1999).
- Deckers, M., et al. The tumor suppressor Smad4 is required for transforming growth factor-β-induced epithelial to mesenchymal transition and bone metastasis of breast cancer cells. Cancer Research. 66 (4), 2202-2209 (2006).
- Souchelnytskyi, S., et al. Phosphorylation of Ser465 and Ser467 in the C terminus of Smad2 mediates interaction with Smad4 and is required for transforming growth factor-β signaling. Journal of Biological Chemistry. 272 (44), 28107-28115 (1997).
- Abdollah, S., et al. TβRI phosphorylation of Smad2 on Ser465 and Ser467 is required for Smad2-Smad4 complex formation and signaling. Journal of Biological Chemistry. 272 (44), 27678-27685 (1997).
- Petersen, M., et al. Oral administration of GW788388, an inhibitor of TGF-β type I and II receptor kinases, decreases renal fibrosis. Kidney International. 73 (6), 705-715 (2008).
- Gubelmann, C., et al. Identification of the transcription factor ZEB1 as a central component of the adipogenic gene regulatory network. Elife. 3, 03346(2014).
- Nickel, J., Ten Dijke, P., Mueller, T. D. TGF-β family co-receptor function and signaling. Acta Biochimica et Biophysica Sinica. 50 (1), 12-36 (2018).
- Mazerbourg, S., et al. Growth differentiation factor-9 signaling is mediated by the type I receptor, activin receptor-like kinase 5. Molecular Endocrinology. 18 (3), 653-665 (2004).
- Rebbapragada, A., Benchabane, H., Wrana, J. L., Celeste, A. J., Attisano, L. Myostatin signals through a transforming growth factor-β-like signaling pathway to block adipogenesis. Molecular and Cellular Biology. 23 (20), 7230-7242 (2003).
- Jonk, L. J., Itoh, S., Heldin, C. H., ten Dijke, P., Kruijer, W. Identification and functional characterization of a Smad binding element (SBE) in the JunB promoter that acts as a transforming growth factor-β, activin, and bone morphogenetic protein-inducible enhancer. Journal of Biological Chemistry. 273 (33), 21145-21152 (1998).
- Thiery, J. P., Sleeman, J. P. Complex networks orchestrate epithelial-mesenchymal transitions. Nature Reviews Molecular Cell Biology. 7 (2), 131-142 (2006).
- Riedl, J., et al. Lifeact: a versatile marker to visualize F-actin. Nature Methods. 5 (7), 605-607 (2008).
- Gellibert, F., et al. Discovery of 4-{4-[3-(pyridin-2-yl)-1H-pyrazol-4-yl]pyridin-2-yl}-N-(tetrahydro-2H- pyran-4-yl)benzamide (GW788388): a potent, selective, and orally active transforming growth factor-β type I receptor inhibitor. Journal of Medicinal Chemistry. 49 (7), 2210-2221 (2006).
- Ishay-Ronen, D., Christofori, G. Targeting Cancer Cell Metastasis by Converting Cancer Cells into Fat. Cancer Research. 79 (21), 5471-5475 (2019).
- Gupta, P. B., et al. Identification of selective inhibitors of cancer stem cells by high-throughput screening. Cell. 138 (4), 645-659 (2009).
- Pattabiraman, D. R., et al. Activation of PKA leads to mesenchymal-to-epithelial transition and loss of tumor-initiating ability. Science. 351 (6277), (2016).
- Gao, D., et al. Myeloid progenitor cells in the premetastatic lung promote metastases by inducing mesenchymal to epithelial transition. Cancer Research. 72 (6), 1384-1394 (2012).
- Goumans, M. J., et al. Balancing the activation state of the endothelium via two distinct TGF-β type I receptors. The EMBO Journal. 21 (7), 1743-1753 (2002).
Перепечатки и разрешения
Исправление
Formal Correction: Erratum: Studying TGF-β Signaling and TGF-β-induced Epithelial-to-mesenchymal Transition in Breast Cancer and Normal Cells
Posted by JoVE Editors on 12/15/2020. Citeable Link.
An erratum was issued for: Studying TGF-β Signaling and TGF-β-induced Epithelial-to-mesenchymal Transition in Breast Cancer and Normal Cells. NMuMG was mislabeled as cancer cells.
NMuMG cells are non-transformed epithelial breast cells established from a mouse mammary gland. NMuMG cells are frequently used as a model system to investigate TGF-β-induced epithelial to mesenchymal transition (EMT). EMT is induced by TGF-β in premalignant human MCF 10A-RAS (M2) cells and mouse MMTV-PyMT breast cancer cell line. The article has been updated to reflect this.
