Этот протокол описывает рабочий процесс метаболической маркировки стареющих и неделящихся клеток с помощью импульсного SILAC, нецелевого масс-спектрометрического анализа и упрощенного расчета периодов полураспада белка.
Методическая статья
Измерение скорости оборота белка в стареющих и неделящихся культивируемых клетках с помощью метаболической маркировки и масс-спектрометрии
В этой статье
Краткое содержание
Аннотация
Растущие данные показали, что накопление стареющих клеток в центральной нервной системе способствует нейродегенеративным расстройствам, таким как болезни Альцгеймера и Паркинсона. Клеточное старение — это состояние остановки постоянного клеточного цикла, которое обычно происходит в ответ на воздействие сублетальных стрессов. Однако, как и другие неделящиеся клетки, стареющие клетки остаются метаболически активными и выполняют множество функций, требующих уникальных транскрипционных и трансляционных требований и широко распространенных изменений во внутриклеточных и секретируемых протеомах. Понимание того, как синтез белка и скорость распада изменяются во время старения, может пролить свет на основные механизмы клеточного старения и найти потенциальные терапевтические пути для заболеваний, усугубляемых стареющими клетками. В данной работе описан метод протеомной оценки периодов полураспада белка в неделящихся клетках с использованием импульсной метки стабильных изотопов аминокислотами в клеточной культуре (pSILAC) в сочетании с масс-спектрометрией. pSILAC включает метаболическую маркировку клеток стабильными тяжелыми изотопсодержащими версиями аминокислот. В сочетании с современными подходами масс-спектрометрии pSILAC позволяет измерять оборот белков сотен или тысяч белков в сложных смесях. После метаболической маркировки динамику оборота белков можно определить на основе относительного обогащения тяжелых изотопов в пептидах, обнаруженных масс-спектрометрией. В этом протоколе описан рабочий процесс для генерации стареющих культур фибробластов и аналогично арестованных покоящихся фибробластов, а также упрощенный, одноточечный тайм-курс маркировки pSILAC, который максимизирует охват ожидаемых скоростей оборота белка. Далее представлен конвейер для анализа данных масс-спектрометрии pSILAC и удобного для пользователя расчета скорости деградации белка с использованием электронных таблиц. Применение этого протокола может быть распространено за пределы стареющих клеток на любые неделящиеся культивируемые клетки, такие как нейроны.
Введение
Старение было впервые идентифицировано как состояние неопределенной остановки роста, проявляемой культивируемыми первичными клетками после достижения репликативного истощения1. С тех пор было показано, что старение может возникать в ответ на многочисленные клеточные нарушения, включая генотоксические, митохондриальные и онкогенные стрессы, среди прочих2. В то время как старение имеет несколько физиологически важных ролей, таких как подавление опухоли и заживление ран, накопление стареющих клеток во время старения связано с множеством вредных последствий для здоровья3, включая несколько нейродегенеративных состояний 4,5,6. Клеточное старение происходит в нескольких типах клеток мозга, включая нейроны 7,8,9,10, астроциты11, микроглию12 и предшественники олигодендроцитов13, и способствует нейродегенерации и когнитивной дисфункции. Было показано, что бета-амилоидные олигомеры, один из признаков болезни Альцгеймера14, ускоряют старение нейронов 13,15,16. Повышенная распространенность стареющих клеток также была связана с болезнью Паркинсона17, особенно возникающей из-за экологических стрессоров 11,18. Важно отметить, что селективная элиминация стареющих клеток в доклинических моделях продлевает продолжительность жизни и смягчает множество возрастных заболеваний 3,5,12 и улучшает когнитивный дефицит 8,11,12,13. Таким образом, стареющие клетки стали перспективными терапевтическими мишенями для лечения многих возрастных состояний.
Большая часть вредного эффекта стареющих клеток вызвана секреторным фенотипом, связанным со старением (SASP), сложной смесью биологически активных молекул, секретируемых стареющими клетками, которые могут вызвать местное воспаление, ангиогенез, разрушение внеклеточного матрикса и распространение старения в окружающих тканях 19,20,21 . SASP также представляет собой интересный биологический феномен старения, поскольку он требует значительных транскрипционных и трансляционных усилий во время остановки клеточного цикла. Фактически, было показано, что стареющие клетки демонстрируют снижение биогенеза рибосом 22,23,24, что должно снизить синтез белка. Вместо этого стареющие клетки надежно транслируют некоторые белки, в частности факторы SASP, и влияют на метаболизм окружающих тканей25. Таким образом, существует значительный интерес к пониманию того, как стареющие клетки, подвергающиеся остановке постоянного клеточного цикла, продолжают поддерживать белковый гомеостаз, в то же время надежно экспрессируя факторы SASP и другие избранные белки.
Этот метод описывает, как использовать масс-спектрометрию и импульсно-стабильную изотопную маркировку аминокислотами в клеточной культуре (pSILAC) для глобального измерения периодов полураспада белков в стареющих клетках в масштабе протеома. В традиционном SILAC культивируемые клетки полностью метаболически маркируются тяжелыми и легкими нерадиоактивными изотопами аминокислот для последующего анализа обилия белка. Этот метод ранее применялся для всесторонней и количественной оценки изменений численности в SASP культивируемых фибробластов26. В pSILAC клетки аналогичным образом метаболически мечуются импульсом тяжелого изотопа, который следует за предварительной маркировкой легким изотопом, а затем собирают через один или несколько временных интервалов. Скорость включения тяжелого изотопа по отношению к ранее существовавшему легкому изотопу затем используется для расчета относительных скоростей оборота белка. Как правило, изотопы аргинина и лизина используются, поскольку трипсин расщепляется на эти остатки; таким образом, все пептиды из стандартного пищеварения потенциально будут содержать тяжелую этикетку. Пары пептидов, которые отличаются только наличием или отсутствием тяжелого лизина или аргинина, химически идентичны и могут быть дифференцированы и количественно определены масс-спектрометром. После масс-спектрометрического анализа пептиды могут быть идентифицированы как вновь синтезированные или ранее существовавшие на основе наличия или отсутствия изотопной метки в полученных идентификациях пептидов. Затем скорость оборота белка может быть определена путем сопоставления соотношения тяжелых (13 C-15N) над легкими (12 C-14N) пептидами для данного белка кинетическим моделям экспоненциального роста или распада27,28. pSILAC использовался в нескольких сравнениях скоростей оборота белка 29,30,31,32 и в настоящее время является наиболее полным и высокопроизводительным методом измерения периодов полураспада белка.
Этот протокол детализирует подготовку стареющих клеток параллельно с аналогичными остановленными ростом покоящимися клетками в культуре с последующей метаболической маркировкой pSILAC. Затем клетки собирают, гомогенизируют в лизаты и обрабатывают для получения и анализа масс-спектрометрии. Данные, полученные в результате масс-спектрометрии, затем используются для определения периодов полураспада белка с использованием упрощенного количественного метода, использующего одну точку времени и расчеты периода полураспада, выполненные в электронной таблице. Используя этот подход, оценки периодов полураспада белка могут быть измерены всеобъемлющим и количественным образом, который более аутентичен для ненарушенных клеточных условий, чем протоколы, использующие блокаторы синтеза или оборота белка.
Протокол
1. Подготовка покоящихся клеток и клеток, стареющих под воздействием ионизирующего излучения (ИК)
ПРИМЕЧАНИЕ: Клеточное старение и покоя могут быть вызваны с использованием нескольких методов, как подробно описано в другом месте 33,34,35. Стимулы, используемые для индуцирования старения и покоя, могут зависеть от типа интересующей клетки и исследуемого биологического вопроса. Клетки, используемые в этом исследовании, коммерчески доступны.
- Разморозьте человеческие диплоидные фибробласты IMR-90 (~1 x 10⁶ клеток) из криовиала и обложите их 20 мл DMEM, дополненного 10% фетальной бычьей сывороткой (FBS) (таблица 1) на пластине 150 мм.
- Выращивайте клетки при физиологических кислородных условиях (3% O2, 5% CO2, 37 °C) и расширяйте культуры в 10% FBS-содержащих средах до тех пор, пока не будет установлено достаточное количество реплик для покоящихся и стареющих клеток (рекомендуется не менее 3-5 реплик для каждого условия).
ПРИМЕЧАНИЕ: Культивирование клеток при физиологическом (3%) кислороде идеально подходит для первичных клеток фибробластов человека, но подходящие условия культивирования для других типов клеток могут варьироваться и должны определяться в каждом конкретном случае. - Генерировать стареющие клетки, подвергая пролиферирующие клетки воздействию 15 серых (Гр) ионизирующих излучений (ИК).
ПРИМЕЧАНИЕ: Интенсивность радиационного облучения может варьироваться в зависимости от типа ячейки. В то время как 15 Гр используется здесь, 10 Гр также является широко используемой дозой облучения для фибробластов; другим клеткам, таким как моноциты, может потребоваться доза до 5 Гр. Доза, как правило, определяется эмпирически путем взвешивания жизнеспособности против индукции старения.- Подвергайте клетки при 40%-60% слиянии с ИК в средах, содержащих 10% FBS.
- После ИК-экспозиции переходите на свежие носители, содержащие 10% FBS.
- Меняйте носитель (20 мл, содержащий 10% FBS) каждые 2 дня в течение 8 дней.
ПРИМЕЧАНИЕ: Клетки подвергаются воздействию ИК при более низкой слиянии, потому что обработанные ИК клетки будут расширяться в культуре, прежде чем они перестанут расти. В этом эксперименте клетки не расщеплялись во время установления старения, и, хотя они становились более сливающимися, они все еще демонстрировали маркеры стареющих клеток при сборе урожая. У фибробластов стареющий фенотип развивается в течение 7-10 дней.
- Генерация покоящихся контрольных клеток путем изменения среды на покрытых пролиферирующих клетках на среды, содержащие 0,2% FBS (сывороточное голодание) (таблица 1).
- Продолжайте выращивать клетки, которые будут использоваться для контроля покоя в средах, содержащих 10% FBS, до 4-го дня после того, как стареющие клетки подвергаются воздействию ИК, расщепляясь при необходимости.
- На 4 день после ИК изменяют носители покоящихся клеток на 20 мл среды, содержащей 0,2% FBS (таблица 1) и продолжают расти еще 6 дней, меняя носители каждые 2 дня.
ПРИМЕЧАНИЕ: Даже в средах, содержащих 0,2% FBS, фибробласты будут продолжать несколько расти и могут казаться сливающимися к концу сбора урожая. Как правило, стремитесь собирать покоящиеся клетки, когда они достигли слияния, аналогичного слиянию стареющих клеточных культур.
2. Маркировка клеток для импульсного SILAC и сбора лизатов
- Измените среду как на стареющих, так и на покоящихся клетках (12 пластин) на SILAC Light (таблица 1) и расти в течение 2 дней.
ПРИМЕЧАНИЕ: Эта маркировка помогает уменьшить фоновый шум, поскольку существует низкое естественное содержание 13C и 15N. Этот этап может быть пропущен в условиях, ограничивающих реагенты, но приведет к небольшой переоценке синтеза нового белка. - Замените среду silac DMEM (таблица 1) для метаболической маркировки.
ПРИМЕЧАНИЕ: Среды SILAC DMEM специально разработаны для содержания чисто легких или тяжелых изотопов аргинина и лизина для метаболической маркировки. Они не должны заменяться стандартными составами DMEM на этапах 2.2.1 или 2.2.2.- Для трех стареющих и трех пластин покоя замените носитель 30 мл SILAC Light (таблица 1) и выращивайте в течение 3 дней без смены среды.
- Для как минимум трех стареющих и трех пластин покоя замените носитель на 30 мл SILAC Heavy (таблица 1) и выращивайте в течение 3 дней без смены среды.
ПРИМЕЧАНИЕ: На этом этапе есть возможность собрать то, что будет светонементированными клетками немедленно, а не маркировать их в течение дополнительных 3 дней. В течение одного периода времени предпочтительно маркировать тяжелые и легко меченые ячейки в течение того же периода, что и в этом протоколе, чтобы свести к минимуму пакетные эффекты.
- Отделите клетки от культуральных пластин, добавив 5 мл предварительно разогретого реагента трипсина в каждую чашку и инкубируя в течение 5 мин при 37 °C.
- Повторно суспендировать отделенные клетки в 5 мл той же среды, которая используется для культивирования (либо SILAC Light, либо SILAC Heavy) до общего объема 10 мл.
- Соберите клетки для извлечения лизатов и проверки маркеров старения.
- Для каждой суспензии аликвотирует 0,6 х 106 клеток в 2 мл среды, содержащей 0,2% FBS, в 6-луночную чашку (две чашки, одну для silac Light культивируемых клеток и одну для SILAC Heavy культивируемых клеток) и помещают при 37 °C для ночной инкубации.
ПРИМЕЧАНИЕ: Эти пластины (подшаг 2.5.1) будут использоваться для обнаружения связанной со старением активности β-галактозидазы (SA-βGal) (этап 3.1). - Для каждой суспензии аликвот 1 х 106 клеток в микроцентрифужную трубку и вращается вниз в настольной центрифуге на полной скорости в течение 1 мин. Удалить надосадочный материал и повторно суспендировать гранулу в 1 мл фенола; на этой стадии РНК может быть полностью очищена, как описано в руководстве поставщика фенола, или храниться в течение длительного времени при -80 °C.
ВНИМАНИЕ: Фенол является коррозионным и должен обрабатываться исключительно в капюшоне с перчатками и лабораторным халатом.
ПРИМЕЧАНИЕ: Извлеченная РНК будет использоваться для обнаружения мРНК, кодирующих sasP-факторы, с использованием обратной транскрипции (RT) с последующим количественным (q) ПЦР-анализом в реальном времени (RT-qPCR) (шаг 3.2). Другим надежным анализом на индукцию старения является тест на инкорпорацию 5-этинилдигидроксиуридина (EdU), который указывает на наличие пролиферирующих клеток. Отсутствие пролиферации может быть использовано для подтверждения покоя и старения. - Переложите оставшиеся ячейки на лед и открутите вниз при 300 х г и 4 °C.
- Для каждой суспензии аликвотирует 0,6 х 106 клеток в 2 мл среды, содержащей 0,2% FBS, в 6-луночную чашку (две чашки, одну для silac Light культивируемых клеток и одну для SILAC Heavy культивируемых клеток) и помещают при 37 °C для ночной инкубации.
- Удалите супернатант и промыть клетки дважды в 1 мл холодного PBS, чтобы удалить среду / трипсин и экзогенное белковое загрязнение из фетальной бычьей сыворотки из культуральной среды.
- Снова раскрутите клетки, удалите супернатант и приступайте к лизису.
- Повторно суспендируют клеточные гранулы в 150 мкл свежеприготовленной 8 М мочевины 50 мМ буфера лизиса бикарбоната аммония (таблица 1) и перемешивают путем пипетки вверх и вниз.
- Обрабатывайте лизаты в водяном ультразвуковом аппарате в течение 2,5 мин с включением/выключением 30 с при средней мощности при 4 °C.
- Переложите лизаты в предварительно нагретый при 95 °C тепловой блок и денатурируйте в течение 4 мин.
- Открутите лизаты; Лизаты теперь можно хранить при -80 °C или использовать немедленно для количественной оценки.
- Сделайте 30 мкл в виде 1:10 для каждого лизата в буфере лизиса.
- Измерьте концентрацию белка с помощью набора для анализа BCA с использованием стандартной кривой, приготовленной в 1/10x лизисном буфере, разбавленном в ddH2O. Лизаты теперь можно хранить при -80 °C бесконечно.
3. Валидация старения с помощью активности β-галактозидазы (SA-βGal) и анализ RT-qPCR мРНК, ассоциированных со старением
ПРИМЕЧАНИЕ: Исходный материал для этих этапов собирается на этапе 2.5
- Начиная с 6-луночных пластин, которые были установлены на подшаге 2.5.1, проанализируйте клетки на активность SA-βGal с использованием набора для окрашивания β-галактозидазы в соответствии с протоколом производителя. Визуализируйте окрашивание под ярким полем с включенным цветом, какописано ранее 36.
ПРИМЕЧАНИЕ: SA-βGal количественно определяется путем сравнения процента положительных клеток (видимый синий цвет) в условиях старения и контроля покоя. Минимум 70% клеток должны быть SA-βGal положительными для успешного подтверждения старения. Покоящиеся контрольные клетки должны быть менее чем на 10% положительными для SA-βGal. - Извлеките РНК из фенольной суспензии (подшаг 2.5.2) и проанализируйте с помощью RT-qPCR на повышенные уровни мРНК, кодирующих факторы SASP (IL6, CXCL8, IL1B), маркеры клеточного цикла (CDKN2A/p16, CDKN1A/p21) и другие показатели старения (потеря LMNB1 и PCNA).
ПРИМЕЧАНИЕ: РНК нестабильна и поэтому должна обрабатываться с помощью оборудования без РНКазы, свежих перчаток и на льду, если иное не указано в протоколе.- Начиная с фенольной суспензии, добавляют 200 мкл хлороформа на 1 мл фенола и раскручивают вниз при 12 000 х г в течение 15 мин при 4 °C.
- Осторожно удаляют водную фазу и добавляют 1:1 объем изопропанола, 15 мкг гликогенного соосателя, а затем инкубируют при 4 °C в течение 10 мин для осаждения РНК.
- После инкубации гранулируют РНК центрифугированием при 12 000 х г в течение 20 мин при 4 °C с последующей промывкой в 75% EtOH, равном 1 объему используемого фенола. Повторное суспендирование РНК в 50 мкл дистиллированной воды без нуклеазы; РНК может храниться при -80 °C бесконечно.
- К образцам РНК добавляют 38 мкл дистиллированной воды без нуклеазы, 10 мкл реакционного буфера 10x DNAse и 2 мкл ДНКазы I с последующим смешиванием.
ПРИМЕЧАНИЕ: Наилучшей практикой является создание общей смеси всех реагентов на подэтапе 3.2.3, умноженной на количество образцов для обработки для равного распределения по образцам. - Инкубировать образцы РНК, обработанные DNase I, при 37 °C в течение 30 мин.
- Удалять ДНКазу из образцов с использованием 1 объема смеси фенола/хлороформа/изоамилового спирта (25:24:1) путем вихря и вращения с максимальной скоростью в настольной центрифуге в течение 5 мин; РНК будет содержаться в водной фазе.
- Повторите подшаги 3.2.2 и 3.2.3 для осаждения РНК. Повторное суспендирование в 20 мкл дистиллированной воды без нуклеазы; РНК может храниться при -80 °C бесконечно.
- Генерировать кДНК из очищенной РНК путем инкубации 0,5-1,0 мкг очищенной РНК с 200 ЕД обратной транскриптазы, 100 пМоль случайных праймеров и 10 мМ смеси dNTP в 1x реакционном буфере, снабженном обратной транскриптазой; инкубировать в течение 10 мин при 25 °C, затем в течение 30 мин при 50 °C, с заключительным этапом инактивации при 85 °C в течение 5 мин.
- Анализ кДНК на стадии ОТ (подшаг 3.2.3) из клеток контроля покоя и старения с использованием количественного (q) ПЦР-анализа в режиме реального времени для оценки уровня маркеров мРНК, которые, как известно, повышены (CDKN2A / p16, CDKN1A / p21, IL1B, IL6 и CXCL8 мРНК) или снижены (LMNB1 и PCNA mRNAs) со старением, как описано в другом месте. МРНК АКТБ , кодирующая бытовой белок β-актин, часто является хорошей мРНК для нормализации различий во входном материале. Используемые грунтовки приведены в таблице 2.
ПРИМЕЧАНИЕ: Относительный анализ RT-qPCR зависит от предположений о равной эффективности связывания между целевыми парами праймеров и парой эталонных праймеров. Эти допущения должны быть проверены на новых наборах грунтовок, как подробно описано в другом месте37. Кроме того, эталонные маркеры должны быть постоянными между сравниваемыми типами клеток, и ранее было идентифицировано несколько дополнительных вариантов для стареющих клеток38.
4. Переваривание трипсина в растворе
ПРИМЕЧАНИЕ: С этого момента крайне важно использовать буферы масс-спектрометрии, растворители и химические вещества для предотвращения помех от примесей во время масс-спектрометрического анализа. Все буферы должны состоять из ингредиентов, подходящих для тандемного масс-спектрометрического анализа жидкостной хроматографии, включая воду и ацетонитрил. Обратитесь к Таблице материалов для получения списка подходящих химических веществ и растворителей.
- Aliquot 50 мкг каждого образца белка в новые пробирки и довести до равных объемов с Lysis Buffer.
- К каждому образцу добавляют DTT к конечной концентрации 20 мМ для уменьшения дисульфидных связей.
- Инкубируйте образцы при 37 °C в течение 30 мин с встряхиванием, а затем дайте образцам остыть при комнатной температуре (RT, ~10 мин).
- Добавляют йодоацетамид до конечной концентрации 40 мМ для необратимого алкилата сульфгидрильных групп, которые были восстановлены на предыдущей стадии. Инкубируйте образцы в RT в темноте в течение 30 мин.
- Разбавьте каждый образец до уровня менее 1 М мочевины буфером, состоящим из бикарбоната аммония 50 мМ. Проверьте, составляет ли рН приблизительно 8, путем пипетирования небольшого количества образца на полосках pH.
- Добавьте 1 мкг трипсина к каждому образцу на 50 мкг исходного белка или при соотношении трипсин:белок 1:50 по массе, если перевариваете другое количество белка. Например, 3 мкг трипсина будет добавлено для переваривания 150 мкг белка.
- Инкубируйте образцы в течение ночи при 37 °C с встряхиванием для переваривания белков в пептиды.
- Добавьте муравьиную кислоту до 1% по объему каждого образца, чтобы погасить переваривание белка.
ПРИМЕЧАНИЕ: Здесь эксперимент можно приостановить. Заморозьте образцы при -80 °C и при необходимости перейдите к следующему этапу на более позднем этапе.
5. Очистка образцов с твердофазной экстракцией (SPE)
ПРИМЕЧАНИЕ: Этот протокол твердофазной экстракции требует твердофазных экстракционных картриджей и установки вакуумного коллектора. Другие эквивалентные протоколы твердофазной экстракции (SPE) могут быть выполнены по усмотрению исследователя до масс-спектрометрического анализа.
- Подготовьтесь к SPE, поместив твердофазные экстракционные картриджи на вакуумный коллектор, используя один экстракционный картридж для каждого образца.
ПРИМЕЧАНИЕ: Обратитесь к рекомендациям завода-изготовителя в отношении количества сорбента, который будет использоваться в протоколе SPE. Для 50 мкг пептидных образцов рекомендуется использовать сорбентные картриджи по 10 мг. - Кондиционируйте каждый картридж SPE, добавив 800 мкл элюционного буфера SPE (таблица 1) и используйте вакуумное всасывание для втягивания растворителя через картридж.
- Повторите шаг 5.2.
- Уравновешивайте каждый картридж, добавляя 800 мкл промывочного буфера SPE (таблица 1) и используйте вакуумное всасывание для протягивания буфера через картриджи.
- Повторите шаг 5.4 еще два раза, в общей сложности три раза.
- Загрузите образцы пептидов в картриджи SPE и используйте вакуумное всасывание для извлечения образцов через картриджи.
ПРИМЕЧАНИЕ: В этот момент пептиды связываются с сорбентом внутри картриджей. - Вымойте каждый картридж с помощью SPE Wash Buffer и используйте вакуумное всасывание, чтобы протянуть буфер через картриджи.
- Повторите шаг 5.7 еще два раза, в общей сложности три стирки.
- Перед этапом элюирования расположите коллекторные трубки внутри вакуумного коллектора под каждым картриджем, тщательно обеспечив выравнивание между коллекторными трубками и картриджами.
- Для элюирования пептидов добавьте 800 мкл элюционного буфера SPE к каждому картриджу и элюируйте пептиды в коллекторные трубки с вакуумным всасыванием.
- Повторите шаг 5.10 с 400 мкл буфера элюирования SPE.
- Извлеките образцы пептидов из вакуумного коллектора и полностью высушите в вакуумном концентраторе (сушка занимает примерно 3 ч).
ПРИМЕЧАНИЕ: Здесь эксперимент можно приостановить. Заморозить образцы при -80 °C и при необходимости продолжить на более позднем этапе.
6. Масс-спектрометрический анализ сбора данных (DDA)
- Повторно суспендируют образцы пептидов в концентрации 400 нг/мкл в буфере, состоящем из 0,2% муравьиной кислоты в воде.
- Чтобы помочь в повторной солюбилизации пептидов, вращайте образцы в течение 5 минут. Затем обжарьте образцы ультразвуком в течение 5 минут в ультразвуковом аппарате для водяной бани.
- Гранулирование любых нерастворимых материалов путем центрифугирования образцов при 15 000 х г в течение 15 мин при 4 °C. Переведите пептидные супернатанты во флаконы с рассеянным склерозом.
- Добавьте индексированные стандарты пептидов времени удержания (iRT) по выбору к каждому образцу в концентрации 1:30 iRT:sample по объему.
- Отправить образцы на протеомный анализ с использованием жидкостно-хроматографического тандемного масс-спектрометрического анализа (LC-MS/MS).
- Используйте настройки LC-MS/MS, рекомендуемые для нецелевого анализа масс-спектрометрией. Пример настроек для анализа показан на рисунке 3, сконфигурированном для анализа на масс-спектрометре Orbitrap, соединенном с системой наножидкой хроматографии в режиме нанопотока. Ниже приведен пример протокола.
- Загрузите 1 мкг (5 мкл) каждого образца на колонку-ловушку (длиной 1 см x диаметром 100 мкм) и промывайте их загрузочным растворителем (таблица 1) со скоростью потока 10 мкл/мин в течение 5 мин.
- Загрузите образцы в аналитическую колонну (длиной 50 см x диаметром 100 мкм) со скоростью потока 400 нл/мин.
- Элюируют пептиды в течение 90 мин линейного градиента органическим растворителем (0,2% муравьиной кислоты и 99,8% ацетонитрила) и неорганическим растворителем (0,2% муравьиной кислоты в 99,8% воды), в диапазоне от 5% до 35% органического растворителя.
- Получение данных масс-спектрометрии в режиме, зависящем от данных, с непрерывным циклом сканирования MS1 (разрешение 60 000, целевой показатель АРУ 3e6, максимальное время накопления 100 мс и массовый диапазон 400-1 600 м/з), за которым следуют 20 зависящих от данных сканирований MS2 (разрешение 15 000, цель АРУ 1e5, максимальное время впрыска 25 мс и изоляционные окна шириной 1,6 м/з) с фрагментацией HCD (нормализованная энергия столкновения 27%).
- После получения MS всех образцов импортируйте необработанные файлы масс-спектрометрии в программный инструмент анализа протеомики масс-спектрометрии для идентификации и количественной оценки пиковых областей пептидов.
ПРИМЕЧАНИЕ: Для идентификации пептидов и белков в этом эксперименте был использован инструмент поиска в базе данных Mascot с пересмотренной базой данных последовательностей протеомов человека UniProt (Proteome ID: UP000005640). В Mascot были указаны следующие параметры поиска:- Количественное определение: SILAC K+8 R+10 [MD] Фермент: Трипсин/п Фиксированная модификация: карбамидометил (C)
- Переменные модификации: ацетил (белок N-член), Gln->пиро-glu (N-член Q), окисление (M), метка: 13C(6)15N(2) (K), метка: 13C(6)15N(4) (R)
- Толерантность к пептидной массе: 10 ppm
- Допуск по массе фрагмента: 0,08 Да
- Максимальное количество пропущенных декольте: 2
- Все неуказанные параметры были по умолчанию
- Количественная оценка областей пика пептидов для тяжелых и легких пептидов в программном инструменте для количественного определения протеомов. Для количественной оценки пиковых областей в этом эксперименте была использована бесплатная программная платформа Skyline с открытым исходным кодом39,40. Экспорт тяжелых и легких пептидных пиковых областей для оценки периодов полураспада белка.
7. Расчет периодов полураспада белка
- Откройте книгу анализа SILAC (таблица 3) на первом листе с именем 1) Необработанные данные и вставьте идентификаторы UniProt, имена генов, тяжелые пиковые области и легкие пиковые области в указанные столбцы (SH = Стареющий-Тяжелый, SL = Стареющий-Легкий, CH = Control (покоящийся)-Тяжелый, CL = Контроль (покоящийся)-Легкий).
- Откройте листы 2-4 и убедитесь, что столбцы UniProt ID и Gene соответствуют количеству белков, идентифицированных в результате анализа (эти эксперименты выявили 841 белок). Остальные столбцы будут автоматически заполнены данными после того, как они будут перетащены для покрытия идентифицированных белков.
- Откройте четвертый лист с именем 4) Анализ и удалите строки, где столбцы G и H указывают на то, что образец находится вне диапазона; сохраняйте строки, считываемые в пределах диапазона. Участок вулкана на пятом листе будет автоматически заполняться.
Результаты
Этот протокол описывает метод глобального сравнения периодов полураспада белка между стареющими и неделящимися, покоящимися контрольными клетками с использованием pSILAC и минимальных временных точек. Этот протокол детализирует генерацию стареющих и покоящихся клеток в культуре, метаболическую маркировку клеток стабильными изотопами аргинина и лизина в течение 3 дней, количественную оценку относительного количества тяжелых и легких изотопов пептидов с помощью масс-спектрометрии и простой и доступный расчет периодов полураспада белка с использованием формул электронных таблиц (рисунок 1). Этот метод очень гибкий и может быть адаптирован к многочисленным типам клеток и условиям.
В рамках генерации стареющих клеток для этого протокола используются два метода валидации старения: SA-βGal-положительные клетки, визуализированные с помощью микроскопии, и повышенные уровни маркеров старения, количественно оцененные с помощью анализа RT-qPCR. Измерение маркеров старения должно дать четкие различия между покоящимися и стареющими клетками, чтобы сравнение двух популяций клеток считалось действительным. Для активности SA-βGal стареющие клетки должны казаться синими, в то время как покоящиеся контрольные клетки не имеют или имеют очень мало цвета (рисунок 2A). Этот анализ может быть количественно определен путем подсчета положительных, окрашенных синим цветом клеток в процентах от общего числа клеток, а затем сравнения процентной положительности между контролем покоя и стареющими клетками. Важно, чтобы этот протокол выполнялся одновременно для сравнения обоих состояний клеток; Активность SA-βGal зависит от рН окрашивающего раствора, поэтому результаты могут существенно варьироваться между анализами и должны рассматриваться как качественная мера.
Анализ RT-qPCR маркеров старения покажет высокие уровни мРНК, кодирующих факторы SASP (IL6, CXCL8, IL1B) и ингибиторы клеточного цикла (CDKN2A/p16, CDKN1A/p21) в большинстве моделей старения. Хотя некоторые вариации ожидаются в зависимости от типа клеток, состояния культуры и стареющего индуктора41,42, большинство стареющих клеток демонстрируют более чем в пять раз более высокие уровни IL6, CXCL8 и CDKN1A / p21 мРНК по сравнению с покоящимися контрольными клетками; и наоборот, уровни LMNB1 и PCNA mRNAs, кодирующие маркеры пролиферации, должны быть низкими или отсутствовать в стареющих клетках по сравнению с покоящимися клетками (рисунок 2B). Взятые вместе, значительный процент положительности SA-βGal и ожидаемая экспрессия панели маркеров мРНК, связанных со старением, достаточны для подтверждения индукции старения в эксперименте.
Обработка белковых образцов для масс-спектрометрического анализа состоит из внутрисуставного переваривания (2 дня) и твердофазной экстракции (4-6 ч). Для выполнения нецелевого протеомного анализа полученные пептиды представляются для анализа LC-MS / MS с использованием сбора данных (DDA). На приборах Orbitrap метод DDA может быть указан в редакторе программного метода масс-спектрометрии. Настройки масс-спектрометра, используемые в этом исследовании, показаны на рисунке 3A. Параметры жидкостной хроматографии также могут быть указаны в редакторе метода. Для этого исследования использовался 90-минутный линейный градиент с увеличением органической фазы (ацетонитрил) (рисунок 3B). После успешного получения суммарный ионный ток (TIC) должен содержать интенсивный сигнал во время линейной градиентной части метода (рисунок 3C). Этот протокол описывает пример протокола на приборе Orbitrap, но расчет периодов полураспада белка может быть выполнен на основе данных, полученных с любого масс-спектрометра, который был собран в режиме DDA, который доступен на нескольких типах инструментов (например, Orbitraps и time-of-flight instruments) и поставщиках. Настройки сбора будут уникальными для типа и конфигурации используемого прибора, и рекомендуется использовать настройки, предложенные масс-спектрометрией. Этот метод также совместим с методами, не относящимися к DDA (SRM, PRM, DIA), при условии, что количественные хроматографические пиковые области для тяжелых и легких пиков могут быть извлечены из необработанных файлов данных и введены в формулы электронной таблицы.
Необработанные файлы масс-спектрометрии ищутся с помощью одного из многих доступных инструментов поиска протеомных баз данных для идентификации пептидов и белков. Например, в этом исследовании использовалась поисковая система Mascot43. Для получения хроматографических пиковых областей для количественной оценки тяжелых и легких пептидов результаты поиска в базе данных импортируются в протеомное программное обеспечение, способное обрабатывать хроматографические пиковые области, такие как Skyline39,40. Исследование извлеченных ионных хроматограмм пептидов (рисунок 4) позволит выявить относительную пропорцию тяжелых и легких пептидных сигналов. Более низкая доля тяжелого пептидного сигнала по сравнению со световым пептидным сигналом в стареющих клетках указывает на более медленную скорость оборота белка (рисунок 4A), а более высокий тяжелый пептидный сигнал по сравнению со светом указывает на более высокую скорость оборота белка (рисунок 4B). Немаркированные образцы должны показывать мало или вообще не показывать тяжелый пептидный сигнал. Любой кажущийся тяжелый пептидный сигнал в немаркированных образцах считается фоновым шумом и будет вычитаться в ходе окончательных расчетов. Количественная оценка хроматографических пиковых областей для легких и тяжелых пептидов для всех условий обработки и маркировки должна быть экспортирована для последующего расчета скорости оборота белка и статистического анализа.
Используя анализ одной точки времени, количественная оценка периодов полураспада белка проста в выполнении и может быть удобно выполнена в электронных таблицах. В таблице 3 были рассчитаны периоды полураспада для 695 белков, идентифицированных в результате масс-спектрометрического анализа. Начиная с обилия тяжелых и легких изотопов на уровне белка для каждого белка в образцах ( входные данные для 1) Необработанных данных ), процент тяжелого изотопа (называемого Ratio, R) затем автоматически рассчитывается на листе под названием 2) Соотношение H | Н + Л. На этом этапе R из тяжелых меченых образцов нормализуется путем вычитания R из немаркированных образцов для получения окончательного R для покоящихся и стареющих трипликатов. Поскольку немаркированные образцы не должны иметь экзогенно добавленного тяжелого изотопа, они используются для устранения фонового сигнала. Из R kdeg (скорость оборота) рассчитывается по следующей формуле:
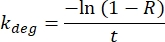
Период полураспада (H, в днях) определяется для каждого белка в контроле покоя и стареющих трипликатах (лист под названием 3) Half-Life (дней)) с использованием следующей формулы:

Эти периоды полураспада затем усредняются между покоящимися и стареющими трипликатами для получения покоя и стареющего среднего периода полураспада для каждого белка, а также p-значения. Рассчитанные периоды полураспада затем фильтруются для значений, которые являются отрицательными, что происходит, когда тяжелый сигнал от светонементированных клеток (фон) больше, чем тяжелый сигнал от тяжело меченых ячеек. Эта фильтрация привела к тому, что 707 белков из 841 идентифицированы с действительными периодами полураспада для результатов, представленных здесь.
Период полураспада затем сообщается ввиде логарифмического соотношения стареющих над управляющими ячейками покоя (log2FC) и строится на графике вулкана (рисунок 5). Например, глядя на лист анализа 5), можно увидеть, что белок тромбинового рецептора коагуляции II (F2R) имеет период полураспада в покоящихся клетках 0,51 дня (столбец B) и период полураспада в стареющих клетках 1,07 дня (столбец C), что дало log2FC ~ 1,06 (столбец D) со значением p 0,001.
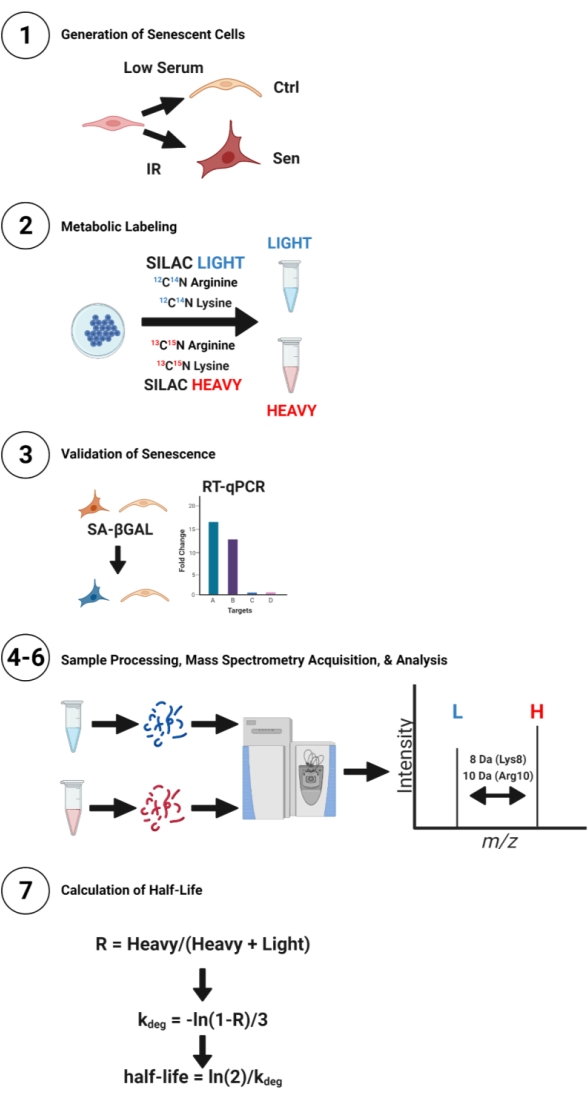
Рисунок 1: Схема рабочего процесса pSILAC для стареющих и покоящихся управляющих ячеек. Фибробласты IMR-90 человека использовались для приготовления покоящихся (с низким содержанием сыворотки) или стареющих (ИК) клеточных культур для сравнения периодов полураспада белка. Затем клетки мечили средой SILAC Light или SILAC Heavy изотопным аргинином и лизином в течение 3 дней. Лизаты извлекали из клеток, переваривали, обессоливали и анализировали с помощью масс-спектрометрии. Пики тяжелых и легких изотопов пептидов соответствуют вновь синтезированным и ранее существовавшим пептидам соответственно. Периоды полураспада были рассчитаны с использованием уравнения для экспоненциального распада. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
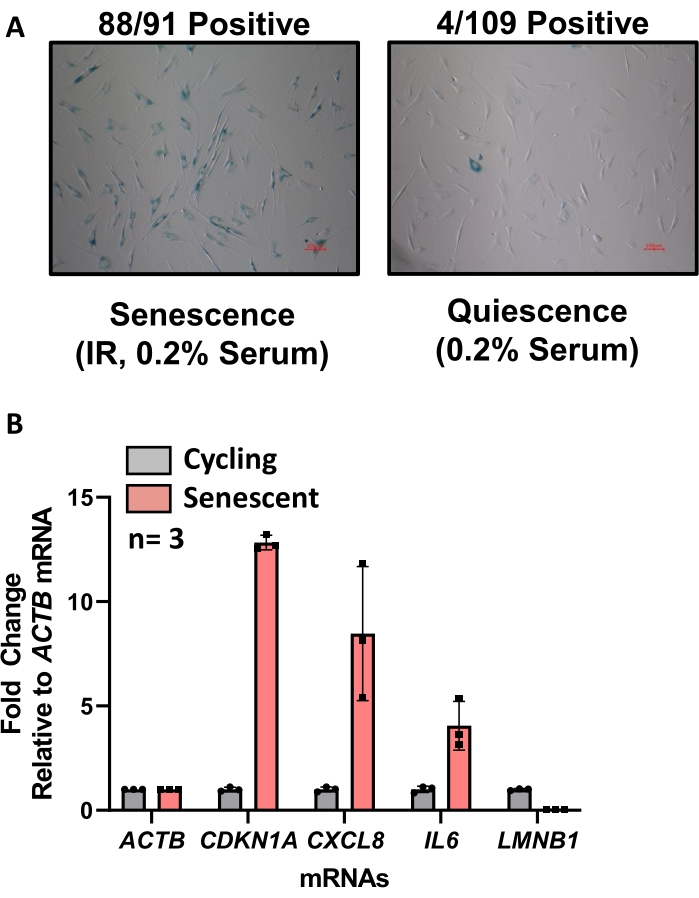
Рисунок 2: Валидация стареющих фенотипов с использованием анализов SA-βGal и RT-qPCR. (A) Стареющие и покоящиеся клетки повторно покрываются во время сбора урожая в 6-луночную пластину и окрашиваются для SA-βGal с использованием комплекта окрашивания SA-βGal. Синий цвет в теле клетки полезен для старения. Снимки делаются в ярком поле с цветом при 10-кратном увеличении, маркер размера красным цветом. (B) Анализ RT-qPCR, сравнивающий стареющие клетки (красные) и циклические клетки (серые) из несвязанного эксперимента. Повышение уровней CDKN1A/p21, CXCL8 и IL6 мРНК свидетельствует о старении, как и снижение уровней мРНК LMNB1 . Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
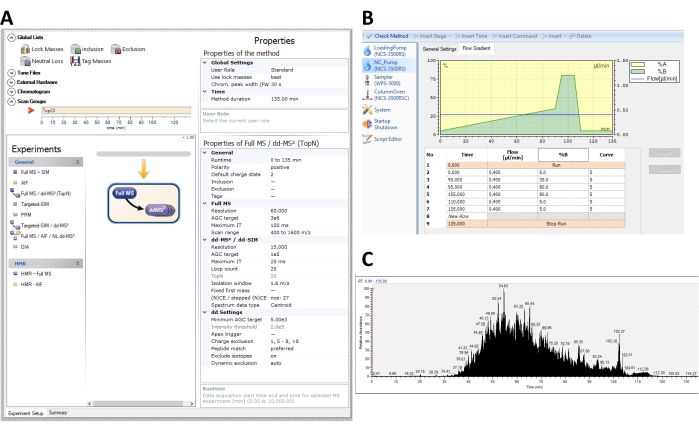
Рисунок 3: Репрезентативные методы для сканирования в зависимости от данных (DDA) и градиента жидкостной хроматографии культур pSILAC на масс-спектрометре Q-Exactive HF orbitrap. (A) Рекомендуемые настройки прибора в программном обеспечении прибора для зависимого от данных анализа лизатов целых клеток из эксперимента pSILAC. (B) Пример настроек метода градиента потока жидкостной хроматографии. Пептиды элюируют в течение 90-минутного линейного градиента в диапазоне от 5% до 35% буфера B (0,2% муравьиной кислоты и 99,8% ацетонитрила), за которым следует 10-минутная промывка с 80% буфером B и 25 мин уравновешивания с 5% буфером B. (C) Репрезентативная общая ионная хроматограмма (TIC) масс-спектрометрического получения пептидов фибробластов IMR-90, приобретенных с указанными настройками. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
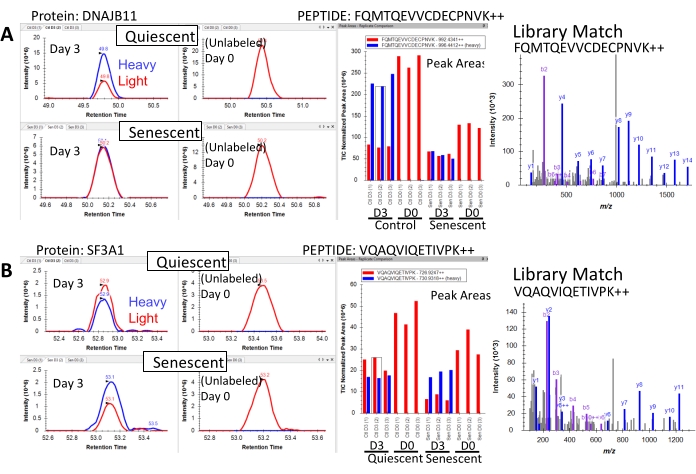
Рисунок 4: Репрезентативные экстрагированные ионные хроматограммы пептидов с измененным оборотом во время старения. (А) Хроматографические пиковые участки пептида FQMTQEVVCDECPNVK++ из белка DnaJ гомолог подсемейства B член 11 (DNAJB11) в стареющих и нестареющих клетках. После 3 дней ПРИЕМА SILAC стареющие клетки включают в этот пептид менее тяжелый изотоп по сравнению с покоящимися (не стареющими) клетками, о чем свидетельствует уменьшение пиковой площади тяжелого изотопсодержащего пептида (синего) относительно светового пептида (красный), что указывает на то, что этот пептид снизил оборот в стареющих клетках. (B) Хроматографические пиковые области пептида VQAQVIQETIVPK++ из белкового фактора сплайсинга 3a Subunit 1 (SF3A1) в стареющих и нестареющих клетках. После 3 дней SILAC стареющие клетки включают более высокую долю тяжелого изотопа в этот пептид по сравнению с покоящимися (не стареющими) клетками, о чем свидетельствует уменьшение пиковой площади тяжелого изотопсодержащего пептида (синий) по сравнению со светлым пептидом (красный), что указывает на то, что этот пептид увеличил оборот в стареющих клетках. Немаркированные (день 0) условия не показывают включения тяжелого изотопа для обоих пептидов, как и ожидалось. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
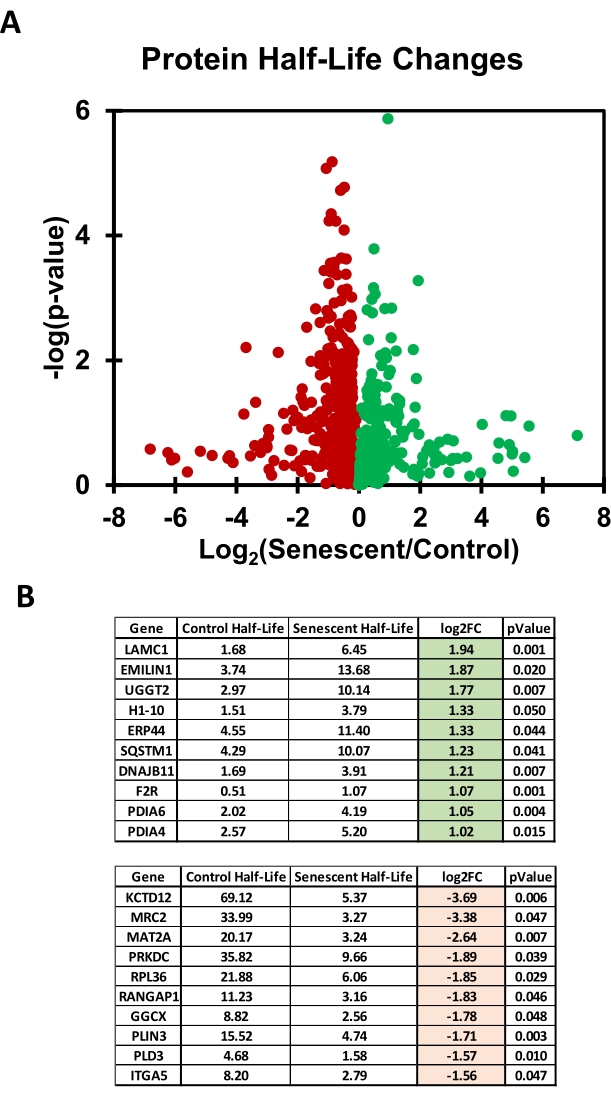
Рисунок 5: Сравнение периодов полураспада белка в стареющих и покоящихся клетках, определяемых по маркировке pSILAC. (A) График вулкана, показывающий логарифмическое отношение2 стареющего/контрольного (покоящегося) для каждого из 695 идентифицированных белков; в этом эксперименте легкие и тяжелые маркировочные среды не содержали глюкозы и фенол красного цвета. (B) Таблицы, показывающие 10 лучших белков с наибольшим увеличением или уменьшением периодов полураспада в покоящихся клетках по сравнению со стареющими клетками (слева и справа, соответственно). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Таблица 1: Носители и буферы, используемые в этом протоколе. Пожалуйста, нажмите здесь, чтобы загрузить эту таблицу.
Таблица 2: Праймеры RT-qPCR, используемые в этом протоколе. Пожалуйста, нажмите здесь, чтобы загрузить эту таблицу.
Таблица 3: Рабочая тетрадь по анализу SILAC для расчета периодов полураспада белка, изменений складок и т-тестов. Пожалуйста, нажмите здесь, чтобы загрузить эту таблицу.
Обсуждение
pSILAC является мощным методом, который позволяет глобально количественно оценивать скорость оборота белка в нескольких клеточных условиях. В этой статье подробно описывается использование pSILAC для сравнения глобальных периодов полураспада белка между стареющими и покоящимися клетками, включая инструкции по подготовке стареющих и покоящихся клеток, маркировке и сбору SILAC и, в конечном счете, анализу с использованием масс-спектрометрии DDA. Кроме того, описан двухэтапный тест для валидации фенотипа старения с использованием анализа SA-βGal и RT-qPCR панели мРНК, кодирующих белки, связанные со старением. В дополнение к валидации старения с помощью двух описанных подходов, третья валидация старения может быть выполнена после масс-спектрометрического анализа путем поиска изменений в известных маркерах старения между стареющими и покоящимися клетками на протеомном уровне. Белки, ассоциированные со старением, которые, как ожидается, будут повышены, включают p16, p21 и BCL2, среди прочих, описанных в другом месте44,45. В описанном выше протоколе ионизирующее излучение использовалось для индукции старения и сывороточного голодания для покоящихся клеток. Для индукции старения существует несколько вариантов, и среди них существует существенная гетерогенность 41,42,46. В настоящее время не существует стареющего метода, который считается «наиболее физиологичным», поэтому выбор стареющего индуктора во многом основывается на контексте эксперимента. Однако в экспериментах с целью констатации общего явления о старении рекомендуется использовать как минимум два разных стареющих индуктора. Обсуждение диапазона парадигм старения выходит за рамки данной статьи, но некоторые распространенные методы индуцирования старения включают в себя запуск повреждения ДНК (IR, доксорубицин, репликативное истощение), экспрессию онкогенных белков (HRAS, BRAF) и нарушение функции митохондрий2.
В дополнение к выбору стареющего индуктора, выбор контрольных клеток является не менее важным соображением. Стареющие клетки, по определению, находятся под неопределенной остановкой роста, поэтому часто выбирают сравнение с другими клетками с остановкой роста. Для pSILAC клетки, арестованные клеточным циклом, как правило, предпочтительнее, поскольку они не реплицируются и, следовательно, их легче использовать для расчетов периода полураспада белка47. Однако, поскольку культивируемые клетки часто сохраняют некоторые делящиеся клетки, важно, чтобы методы, используемые для индуцирования остановки клеточного цикла, производили как можно более однородный ответ, чтобы свести к минимуму ошибку от клеток, которые все еще размножаются. Для расчета скорости деградации белка для циклических клеток с помощью pSILAC требуются дополнительные расчеты для компенсации скорости, с которой белок разбавляется в дочерние клетки27. Однако остановка покоя сама по себе не лишена осложнений. Существует два общих метода остановки клеточного цикла: сывороточная депривация и ингибирование контакта48. Не все клетки могут быть успокоены путем контактного ингибирования, хотя было показано, что некоторые фибробласты демонстрируют покой после нескольких дней культивирования49. Этот метод использовал сывороточную депривацию, потому что он чаще используется для сравнения стареющих клеток, хотя он требует, чтобы стареющая клетка была также лишена сыворотки для точных сравнений. Сыворотка активирует комплекс mTOR, и, таким образом, депривация сыворотки оказывает несколько последующих эффектов на клетку в дополнение к остановке клеточного цикла50. Примечательно, что стареющие клетки демонстрируют снижение SASP при депривации сыворотки или ингибировании mTOR51,52.
Еще один важный момент, который следует учитывать в pSILAC, - это количество временных точек для тестирования. Этот протокол собирал клетки в один момент времени (3 дня легкой или тяжелой маркировки), что существенно упрощает полученный анализ. Выбор временной точки должен основываться на цели эксперимента. Для глобального анализа ожидается, что 3 дня захватят большинство белков, хотя периоды полураспада для короткоживущих белков, которые полностью меняются в течение 3 дней (весь световой сигнал теряется), не могут быть измерены в этот момент времени. И наоборот, долгоживущие белки с очень небольшим оборотом за 3 дня также трудно поддаются количественной оценке и часто появляются как имеющие чрезвычайно большие периоды полураспада (порядка недель), которые, как правило, являются просто следствием очень небольшого накопления тяжелых сигналов. Из-за нелинейной зависимости в соотношении тяжелых и легких пептидных сигналов к проценту вновь синтезированного белка в более коротких и длинных временных точках количественное определение периодов полураспада может быть улучшено путем добавления дополнительных временных точек маркировки. Для относительных сравнений между двумя состояниями клеток, как в этом протоколе, приблизительного периода полураспада может быть достаточно, но дополнительные временные точки могут быть использованы для повышения количественной точности.
Этот протокол описывает, как выполнить нецелевой анализ оборота белка на основе DDA. Однако расчеты оборота белка могут быть применены в целом к любой схеме приобретения, которая способна вывести относительное изобилие тяжелых и легких пептидных пар. Например, методы на основе MS2, такие как независимый от данных сбор (DIA/SWATH), также могут быть применены для успешного расчета коэффициентов текучести кадров53. Кроме того, инструментальные и программные конвейеры, отличные от описанных в этом протоколе, могут использоваться для выполнения анализа DDA, идентификации белка и количественной оценки белка. При использовании программных платформ для количественной оценки белка, таких как Skyline, для извлечения пептидных пиковых областей, рекомендуется вручную проверять извлеченные ионные хроматограммы в рабочем пространстве документа, выявлять пики, которые были ошибочно интегрированы, и неколичественные пики и соответствующим образом курировать документ. Обширная коллекция учебных пособий доступна онлайн для Skyline (skyline.ms).
pSILAC представляет собой один из наиболее идеальных методов глобальной количественной оценки периодов полураспада белка в культивируемых клетках благодаря превосходному мультиплексированию (протеомному покрытию) и пропускной способности. В то время как pSILAC не обеспечивает прямых скоростей синтеза или деградации, поскольку изменение легкого и тяжелого сигнала происходит из-за слияния факторов, pSILAC очень полезен для сравнения условий и различных типов клеток. Низкопроизводительные методы часто делятся на два типа: 1) обработка клеток циклогексимидом для блокирования синтеза белка и сбора через промежутки времени после добавления для мониторинга распада или 2) обработка клеток ингибитором распада белка и сбор через промежутки времени после добавления для мониторинга накопления белка, таким образом, выводя скорость распада белка. Ограничение обоих методов заключается в том, что такие методы лечения неизбежно вызовут существенные изменения в клеточной физиологии. Напротив, pSILAC не требует существенного вмешательства и теоретически не оказывает обнаруживаемого влияния на клеточную физиологию, поскольку изотопные аминокислоты отличаются только одним нейтроном от своих неизотопных аналогов. Таким образом, метод, описанный здесь для pSILAC, представляет собой простой протокол для глобального измерения наиболее физиологических периодов полураспада белка в неделящихся клетках.
Изменения в обороте белка имеют тесную связь со старением, возрастными заболеваниями, нейродегенерацией и долголетием54,55. Этот протокол описывает метод опроса этих отношений с использованием стабильной изотопной маркировки аминокислот в клеточной культуре для измерения скорости оборота белка в клетках старения. Тем не менее, существует множество аналогичных методов для проведения исследований в контексте старения и нейродегенерации in vivo у целых организмов, таких как мыши. Действительно, эти исследования подчеркнули важность измерения показателей оборота белка в контексте возрастных заболеваний 56,57,58,59.
В этом исследовании рибосомные белки и белки, находящиеся в эндоплазматическом ретикулуме, выделялись как две категории белков с уменьшенным и увеличенным периодом полураспада в стареющих клетках соответственно. Хотя для окончательных выводов требуется дальнейший анализ стационарных уровней, эти результаты также свидетельствуют о том, что стареющие клетки могут однозначно регулировать трансляцию через уменьшение периодов полураспада рибосомных белков. В будущем применение подходов к маркировке стабильных изотопов для изучения взаимосвязи между клеточным старением и нейродегенерацией in vivo в мышиных моделях станет многообещающим расширением подхода к маркировке изотопов, описанного в этом протоколе.
Раскрытие информации
Авторы не раскрывают информацию.
Благодарности
Эта работа была поддержана Национальными институтами здравоохранения (NIH) и Программой внутренних исследований (IRP), Национальным институтом по проблемам старения (NIA). N.B. был поддержан грантами Longevity Momentum и Программой стипендий Управления пищевых добавок (ODS). Рисунок 1 был создан с помощью BioRender.com.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Ацетонитрил (класс LC-MS) | Grainger | AH015 | |
| Бикарбонат аммония | Millipore-Sigma | 9830 | |
| Антибиотик-антимикотик (100x) | ThermoFisher | 15240062 | |
| набор для анализа BCA | ThermoFisher | 23227 | |
| Дитиотреотол (DTT) | Sigma | D9779 | |
| DMEM, высокий уровень глюкозы, HEPES | ThermoFisher | 12430112 | |
| dNTP Mix | ThermoFisher | R0191 | |
| Фетальная бычья сыворотка, сертифицированная, термоинактивированная | ThermoFisher | 10082147 | |
| муравьиной кислотой | Sigma | 27001 | |
| Gammacel 40 Exactor | Best Theratronics | Цезиевый облучатель для клеток | |
| GlycoBlue | ThermoFisher | AM2238 | |
| Йодоацетамид (IAA) | Sigma | I1149 | Светочувствительные |
| первичные фибробласты легких IMR-90 | ATCC | CCL-186 | |
| iRT Kit (индексированное время удержания) | Biognosys | Ki-3002-2 | Индексированное время удержания пептидных стандартов |
| Изопропанол | ThermoFisher | 423835000 | |
| Mascot | Matrix Science | Mascot Daemon 2.8 | Proteomic database search software |
| Maxima Reverse Transcritase (200 U/µ L) | ThermoFisher | EP0742 | |
| MEM раствор заменимых аминокислот (100x) | ThermoFisher | 11140050 | |
| Nano LC система | ThermoFisher | ULTIM3000RSLCNANO | |
| Oasis HLB твердофазная экстракция Cartirdges | Waters | 186000383 | |
| Orbitrap Масс-спектрометр | ThermoFisher | Q Exactive HF Orbitrap | |
| Фенол/хлороформ/изоамиловый спирт (25:24:1), 100 мМ ЭДТА, pH 8,0 | ThermoFisher | 327110025 | |
| фосфатный буферный физиологический раствор (PBS) | ThermoFisher | 10010023 | |
| Pierce Набор для количественного определения белка SILAC (трипсин) -DMEM | ThermoFisher | A33972 | |
| QuantStudio 6 Система ПЦР в реальном времени | Random | ||
| Hexamer Праймер | ThermoFisher | SO142 | |
| Senescence β-Galactosidase Staining Kit | Cell Signaling | 9860 | |
| Skyline | University of Washington | Skyline-Daily v21.2.1.424 | Бесплатное программное обеспечение с открытым исходным кодом qantiative proteomic. Доступно на www.skyline.ms |
| Ультразвуковая баня | Branson | CPX-952-516R | |
| Реагент ТРИзол | ThermoFisher | 15596018 | Упоминается как фенол в тексте; опасен |
| TRYPle Express | ThermoFisher | 12605010 | |
| Трипсин (класс секвенирования) | Promega | V5113 | |
| TURBO Dnase (2U/uL) | ThermoFisher | AM2238 | |
| Мочевина | ThermoFisher | 29700 | |
| Вода (марка LC-MS) | Grainger | AH365 |
Ссылки
- Hayflick, L. The cell biology of aging. Journal of Investigative Dermatology. 73 (1), 8-14 (1979).
- Gorgoulis, V., et al. Cellular senescence: Defining a path forward. Cell. 179 (4), 813-827 (2019).
- Borghesan, M., Hoogaars, W. M. H., Varela-Eirin, M., Talma, N., Demaria, M. A senescence-centric view of aging: Implications for longevity and disease. Trends in Cell Biology. 30 (10), 777-791 (2020).
- Martinez-Cue, C., Rueda, N. Cellular senescence in neurodegenerative diseases. Frontiers in Cellular Neuroscience. 14, 16(2020).
- Wissler Gerdes, E. O., et al. Cellular senescence in aging and age-related diseases: Implications for neurodegenerative diseases. International Review of Neurobiology. 155, 203-234 (2020).
- Baker, D. J., Petersen, R. C. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. Journal of Clinical Investigation. 128 (4), 1208-1216 (2018).
- Musi, N., et al. Tau protein aggregation is associated with cellular senescence in the brain. Aging Cell. 17 (6), 12840(2018).
- Ogrodnik, M., et al. Obesity-induced cellular senescence drives anxiety and impairs neurogenesis. Cell Metabolism. 29 (5), 1061-1077 (2019).
- Chow, H. M., et al. Age-related hyperinsulinemia leads to insulin resistance in neurons and cell-cycle-induced senescence. Nature Neuroscience. 22 (11), 1806-1819 (2019).
- Dehkordi, S. K., et al. Profiling senescent cells in human brains reveals neurons with CDKN2D/p19 and tau neuropathology. Nature Aging. 1, 1107-1116 (2021).
- Chinta, S. J., et al. Cellular senescence is induced by the environmental neurotoxin paraquat and contributes to neuropathology linked to Parkinson's disease. Cell Reports. 22 (4), 930-940 (2018).
- Bussian, T. J., et al. Clearance of senescent glial cells prevents tau-dependent pathology and cognitive decline. Nature. 562 (7728), 578-582 (2018).
- Zhang, P., et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nature Neuroscience. 22 (5), 719-728 (2019).
- Selkoe, D. J., Hardy, J. The amyloid hypothesis of Alzheimer's disease at 25 years. EMBO Molecular Medicine. 8 (6), 595-608 (2016).
- Wei, Z., et al. Amyloid beta protein aggravates neuronal senescence and cognitive deficits in 5xfad mouse model of Alzheimer's disease. Chinese Medical Journal (England). 129 (15), 1835-1844 (2016).
- He, N., et al. Amyloid-beta(1-42) oligomer accelerates senescence in adult hippocampal neural stem/progenitor cells via formylpeptide receptor 2. Cell Death & Disease. 4 (11), 924(2013).
- van Dijk, K. D., et al. Changes in endolysosomal enzyme activities in cerebrospinal fluid of patients with Parkinson's disease. Movement Disorders: Offical Journal of Movement Disorder Society. 28 (6), 747-754 (2013).
- Chinta, S. J., et al. Environmental stress, ageing and glial cell senescence: a novel mechanistic link to Parkinson's disease. Journal of Internal Medicine. 273 (5), 429-436 (2013).
- Coppe, J. P., et al. Senescence-associated secretory phenotypes reveal cell-nonautonomous functions of oncogenic RAS and the p53 tumor suppressor. PLoS Biology. 6 (12), 2853-2868 (2008).
- Coppe, J. P., Desprez, P. Y., Krtolica, A., Campisi, J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annual Review of Patholology. 5, 99-118 (2010).
- Acosta, J. C., et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nature Cell Biology. 15 (8), 978-990 (2013).
- Payea, M. J., Anerillas, C., Tharakan, R., Gorospe, M. Translational control during cellular senescence. Molecular and Cellular Biology. 41 (2), 00512(2021).
- Nishimura, K., et al. Perturbation of ribosome biogenesis drives cells into senescence through 5S RNP-mediated p53 activation. Cell Reports. 10 (8), 1310-1323 (2015).
- Lessard, F., et al. Senescence-associated ribosome biogenesis defects contributes to cell cycle arrest through the Rb pathway. Nature Cell Biology. 20 (7), 789-799 (2018).
- Xu, M., et al. Senolytics improve physical function and increase lifespan in old age. Nature Medicine. 24 (8), 1246-1256 (2018).
- Wiley, C. D., et al. SILAC Analysis reveals increased secretion of hemostasis-related factors by senescent cells. Cell Reports. 28 (13), 3329-3337 (2019).
- Schwanhausser, B., et al. Global quantification of mammalian gene expression control. Nature. 473 (7347), 337-342 (2011).
- Doherty, M. K., Hammond, D. E., Clague, M. J., Gaskell, S. J., Beynon, R. J. Turnover of the human proteome: determination of protein intracellular stability by dynamic SILAC. Journal of Proteome Research. 8 (1), 104-112 (2009).
- Riba, A., et al. Protein synthesis rates and ribosome occupancies reveal determinants of translation elongation rates. Proceedings of the National Academy of Sciences of the United States of America. 116 (30), 15023-15032 (2019).
- Mathieson, T., et al. Systematic analysis of protein turnover in primary cells. Nature Communications. 9 (1), 689(2018).
- Liu, T. Y., et al. Time-resolved proteomics extends ribosome profiling-based measurements of protein synthesis dynamics. Cell Systems. 4 (6), 636-644 (2017).
- Welle, K. A., et al. Time-resolved analysis of proteome dynamics by tandem mass tags and stable isotope labeling in cell culture (TMT-SILAC) hyperplexing. Molecular & Cellular Proteomics: MCP. 15 (12), 3551-3563 (2016).
- Neri, F., Basisty, N., Desprez, P. Y., Campisi, J., Schilling, B. Quantitative proteomic analysis of the senescence-associated secretory phenotype by data-independent acquisition. Current Protocols. 1 (2), 32(2021).
- Hernandez-Segura, A., Brandenburg, S., Demaria, M. Induction and validation of cellular senescence in primary human cells. Journal of Visualized Experiments: JoVE. (136), e57782(2018).
- Noren Hooten, N., Evans, M. K. Techniques to Induce and quantify cellular senescence. Journal of Visualized Experiments: JoVE. (123), e55533(2017).
- Debacq-Chainiaux, F., Erusalimsky, J. D., Campisi, J., Toussaint, O. Protocols to detect senescence-associated beta-galactosidase (SA-βgal) activity, a biomarker of senescent cells in culture and in vivo. Nature Protocols. 4 (12), 1798-1806 (2009).
- Livak, K. J., Schmittgen, T. D. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 25 (4), 402-408 (2001).
- Hernandez-Segura, A., Rubingh, R., Demaria, M. Identification of stable senescence-associated reference genes. Aging Cell. 18 (2), 12911(2019).
- MacLean, B., et al. Skyline: an open source document editor for creating and analyzing targeted proteomics experiments. Bioinformatics. 26 (7), 966-968 (2010).
- Pino, L. K., et al. The Skyline ecosystem: Informatics for quantitative mass spectrometry proteomics. Mass Spectrometry Reviews. 39 (3), 229-244 (2020).
- Casella, G., et al. Transcriptome signature of cellular senescence. Nucleic Acids Research. 47 (14), 7294-7305 (2019).
- Basisty, N., et al. A proteomic atlas of senescence-associated secretomes for aging biomarker development. PLoS Biology. 18 (1), 3000599(2020).
- Perkins, D. N., Pappin, D. J., Creasy, D. M., Cottrell, J. S. Probability-based protein identification by searching sequence databases using mass spectrometry data. Electrophoresis. 20 (18), 3551-3567 (1999).
- Hernandez-Segura, A., Nehme, J., Demaria, M. Hallmarks of cellular senescence. Trends in Cell Biology. 28 (6), 436-453 (2018).
- Kohli, J., et al. Algorithmic assessment of cellular senescence in experimental and clinical specimens. Nature Protocols. 16 (5), 2471-2498 (2021).
- Hernandez-Segura, A., et al. Unmasking transcriptional heterogeneity in senescent cells. Current Biology: CB. 27 (17), 2652-2660 (2017).
- Swovick, K., et al. Interspecies differences in proteome turnover kinetics are correlated with life spans and energetic demands. Molecular & Cellular Proteomics: MCP. 20, 100041(2021).
- Marescal, O., Cheeseman, I. M. Cellular mechanisms and regulation of quiescence. Developmental Cell. 55 (3), 259-271 (2020).
- Lacorazza, H. D. Cellular Quiescence. , Springer, Humana Press. New York. (2018).
- Saxton, R. A., Sabatini, D. M. mTOR signaling in growth, metabolism, and disease. Cell. 168 (6), 960-976 (2017).
- Herranz, N., et al. mTOR regulates MAPKAPK2 translation to control the senescence-associated secretory phenotype. Nature Cell Biology. 17 (9), 1205-1217 (2015).
- Laberge, R. M., et al. MTOR regulates the pro-tumorigenic senescence-associated secretory phenotype by promoting IL1A translation. Nature Cell Biology. 17 (8), 1049-1061 (2015).
- Pino, L. K., Baeza, J., Lauman, R., Schilling, B., Garcia, B. A. Improved SILAC quantification with data-independent acquisition to investigate Bortezomib-induced protein degradation. Journal of Proteome Research. 20 (4), 1918-1927 (2021).
- Basisty, N., Meyer, J. G., Schilling, B. Protein turnover in aging and longevity. Proteomics. 18 (5-6), 1700108(2018).
- Basisty, N., Holtz, A., Schilling, B. Accumulation of "Old Proteins" and the critical need for MS-based protein turnover measurements in aging and longevity. Proteomics. 20 (5-6), 1800403(2020).
- Basisty, N., et al. Mitochondrial-targeted catalase is good for the old mouse proteome, but not for the young: 'reverse' antagonistic pleiotropy. Aging Cell. 15 (4), 634-645 (2016).
- Dai, D. F., et al. Altered proteome turnover and remodeling by short-term caloric restriction or rapamycin rejuvenate the aging heart. Aging Cell. 13 (3), 529-539 (2014).
- Karunadharma, P. P., et al. Subacute calorie restriction and rapamycin discordantly alter mouse liver proteome homeostasis and reverse aging effects. Aging Cell. 14 (4), 547-557 (2015).
- Basisty, N. B., et al. Stable isotope labeling reveals novel insights into ubiquitin-mediated protein aggregation with age, calorie restriction, and rapamycin treatment. The Journals of Gerontology. Series A, Biological Sciences and Medical Sciences. 73 (5), 561-570 (2018).
Перепечатки и разрешения
