В этом протоколе описывается комплексный метод оценки активации каспазы (каспаза-1, каспаза-3, каспаза-7, каспаза-8, каспаза-9 и каспаза-11) в ответ на модели инфекции, стерильных инсультов и рака in vitro и in vivo (у мышей) для определения инициации путей гибели клеток, таких как пироптоз, апоптоз, некроптоз и паноптоз.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Оценка активации каспазы для оценки гибели врожденных иммунных клеток
В этой статье
Краткое содержание
Аннотация
Врожденный иммунитет обеспечивает критическую первую линию защиты в ответ на патогены и стерильные оскорбления. Ключевым механистическим компонентом этого ответа является инициация врожденной иммунной запрограммированной клеточной смерти (PCD) для устранения инфицированных или поврежденных клеток и распространения иммунных ответов. Однако избыток PCD связан с воспалением и патологией. Таким образом, понимание активации и регуляции PCD является центральным аспектом характеристики врожденных иммунных реакций и выявления новых терапевтических мишеней по всему спектру заболевания.
Этот протокол предоставляет методы для характеристики активации врожденного иммунитета PCD путем мониторинга каспаз, семейства цистеин-зависимых протеаз, которые часто связаны с различными путями PCD, включая апоптоз, пироптоз, некроптоз и PANoptosis. Первоначальные отчеты характеризовали каспазу-2, каспазу-8, каспазу-9 и каспазу-10 как инициирующие каспазы, а каспазу-3, каспазу-6 и каспазу-7 как эффекторные каспазы при апоптозе, в то время как более поздние исследования показали, что воспалительные каспазы, каспаза-1, каспаза-4, каспаза-5 и каспаза-11, вызывают пироптоз. В настоящее время известно, что существует обширная перекрестная связь между каспазами и другими молекулами врожденного иммунитета и клеточной смерти по ранее определенным путям ПХД, что выявляет ключевой пробел в знаниях в механистическом понимании врожденного иммунитета и ПМД и приводит к характеристике ПАНоптоза. PANoptosis - это уникальный врожденный иммунный воспалительный путь PCD, регулируемый комплексами PANoptosome, которые объединяют компоненты, в том числе каспазы, из других путей гибели клеток.
Здесь приведены методы оценки активации каспаз в ответ на различные раздражители. Эти методы позволяют охарактеризовать пути ПХД как in vitro, так и in vivo, поскольку активированные каспазы подвергаются протеолитическому расщеплению, которое может быть визуализировано с помощью вестерн-блоттинга с использованием оптимальных антител и условий блоттинга. Был разработан протокол и рабочий процесс вестерн-блоттинга, которые позволяют оценить активацию нескольких каспаз из одной и той же клеточной популяции, обеспечивая всестороннюю характеристику процессов ПМД. Этот метод может применяться во всех областях исследований в области развития, гомеостаза, инфекции, воспаления и рака для оценки путей PCD на протяжении клеточных процессов в здоровье и болезнях.
Введение
Врожденная иммунная система действует как первая линия защиты во время инфекции и в ответ на стерильные раздражители, такие как повреждение тканей и изменения гомеостаза. Врожденные иммунные датчики на поверхности клетки и в цитоплазме реагируют на молекулярные паттерны, связанные с патогеном или повреждением (PAMP или DAMP, соответственно), чтобы вызвать воспалительные сигнальные пути и клеточные реакции. Одним из ключевых процессов врожденного иммунного ответа является индукция гибели клеток для удаления инфицированных или поврежденных клеток и стимулирования дальнейших врожденных и адаптивных иммунных реакций. Запрограммированная гибель клеток (PCD) является высококонсервативным процессом у разных видов, что подчеркивает его эволюционное значение как врожденного иммунного механизма.
Существует несколько врожденных иммунных путей PCD, которые могут быть активированы во всех типах клеток. Каспазы являются ключевым семейством высококонсервативных, внутриклеточных, цистеин-зависимых протеаз, которые имеют решающее значение для многих путей ПХД, включая традиционно невоспалительный путь апоптоза, а также воспалительные пути ПХД, такие как пироптоз, некроптоз и ПАНоптоз 1,2,3,4,5 . Существует 11 каспаз человека и 10 мышиных каспаз, которые хорошо определены, а также псевдокаспазы, которые могут быть функциональными, и большинство из них конститутивно экспрессируются в виде неактивных мономерных или димерных прокаспаз, которые требуют расщепления для активации 6,7. Каспазы также содержат важные домены для рекрутирования и образования мультибелковых комплексов. К ним относятся домен активации и рекрутирования каспазы (CARD), который можно найти в каспазе-1, каспазе-2, каспазе-4, каспазе-5, каспазе-9 и каспазе-11, или эффекторный домен смерти (DED), который обнаружен в каспазе-8 и каспазе-10. Благодаря своей протеолитической активности и способности образовывать мультибелковые комплексы, каспазы являются критическими драйверами врожденного иммунного PCD.
Роль каспаз во врожденном иммунном PCD была впервые определена при апоптозе, где инициирующие каспазы, каспазы-2, каспазы-8, каспазы-9 и каспазы-10, активируют каспазы-палача, каспазу-3, каспазу-6 и каспазу-7, чтобы вызвать гибель клеток 8,9,10,11,12. Инициирующие каспазы могут активироваться различными сигнальными каскадами; Внешний путь активирует каспазу-8 посредством передачи сигналов рецептора смерти, индуцированного внеклеточным лигандом, а внутренний путь активирует каспазу-9 через нарушение целостности митохондрий13. Активированные инициирующие каспазы расщепляют линкер, разделяющий большие и малые каталитические субъединицы каспаз палачей, с образованием их активных форм. Затем каспазы палача расщепляют свои субстраты, чтобы разобрать клетку, что приводит к деградации ДНК, блеббингу мембраны, фрагментации ядра и высвобождению апоптотических тел14,15. Этот процесс обычно заканчивается нелитической и невоспалительной формой гибели клеток в сочетании с немедленным клиренсом умирающих клеток путем эффероцитоза16. Однако дефекты эффероцитоза или недостаток фагоцитарных клеток могут привести к накоплению апоптотических клеток, которые затем подвергаются литической и воспалительной гибеликлеток 17,18.
Было обнаружено, что воспалительные каспазы, включая каспазу-1 (человека и мышь), каспазу-4 и каспазу-5 (человека) и каспазу-11 (мышь), активируются во время формы воспалительного врожденного иммунного ПХД (III-PCD), называемого пироптозом. Активация каспазы-1 связана с образованием воспалений, которые представляют собой мультибелковые комплексы, содержащие цитозольный врожденный иммунный сенсор, молекулу-адаптер (связанный с апоптозом пятнистый белок, содержащий CARD [ASC]) и каспазу-1. Образование этого комплекса позволяет каспазе-1 подвергаться аутопротеолизу, опосредованному близостью, для высвобождения своей активной формы, которая может расщеплять целевые субстраты, включая провоспалительные цитокины интерлейкин (IL)-1β и IL-18 и порообразующую молекулу гасдермин D (GSDMD)19,20,21,22,23 . Каспаза-11, каспаза-4 и каспаза-5 также могут активировать GSDMD без образования воспаления после обнаружения PAMP, таких как липополисахарид (LPS)19,20. Эти каспазы подвергаются димеризации с последующей олигомеризацией и саморасщеплением для активации при связывании с цитозольным ЛПС, что приводит к неканонической активации воспаления 24,25,26 и активации каспазы-1 присущим клетке образом, чтобы индуцировать созревание IL-1β и IL-18 20. Созревание и высвобождение этих провоспалительных цитокинов характеризуют эти каспазы как «воспалительные». Кроме того, было обнаружено, что апоптотическая каспаза-8 локализуется в воспалении, обеспечивая связь между апоптотическими и пироптотическими процессами. Исследования показали, что апоптотическая каспаза-8 также имеет решающее значение для регуляции другой формы ПМД, называемой некроптозом. Потеря каспазы-8 приводит к спонтанной активации серин-треонинкиназы 3 (RIPK3), опосредованной рецепторами, опосредованной доменной псевдокиназой смешанной линии (MLKL), чтобы управлять путем III-PCD некроптоза 27,28,29,30,31,32,33,34,35.
В то время как каспазы исторически классифицировались как «апопптические» или «воспалительные» в зависимости от типа гибели клеток, которую они инициируют, растущие данные свидетельствуют о том, что существует обширное перекрестное взаимодействие между врожденными иммунными путями PCD через каспазы 3,4. Например, воспалительная каспаза-1 из инфламмасом расщепляет апоптотическую каспазу-7 в ее каноническом местеактивации 34. Активация каспазы-1 также может приводить к расщеплению апоптотических субстратов, таких как поли(АДФ-рибоза)полимераза 1 (PARP1)36. В клетках, лишенных GSDMD, каспаза-1 также может расщеплять каспазу-337,38. Кроме того, канонически апоптотическая каспаза-3 может расщеплять гасдермин Е (GSDME) для индуцирования PCD17,18, а также перерабатывать GSDMD в неактивную форму40. Кроме того, наблюдалось рекрутирование каспазы-8 в воспалительный комплекс 39,40,41,42,43,44,45, а каспаза-8 является ключевым регулятором канонической и неканонической активации воспаления 39. Существуют также перекрывающиеся и избыточные роли каспазы-8 и каспазы-1 во многих воспалительных состояниях, а врожденный иммунный PCD, характеризующийся активацией пироптотических, апоптотических и некроптотических компонентов, встречается по всему спектру заболевания 39,46,47,48,49,50.
На основе этих перекрестных помех между воспалительными и апоптотическими каспазами был выявлен ключевой пробел в механистическом понимании врожденного иммунитета и PCD, что привело к открытию PANoptosis. PANoptosis - это уникальная форма III-PCD, которая активируется в ответ на патогены, PAMP, DAMP и изменения гомеостаза и регулируется PANoptosomes - многогранными макромолекулярными комплексами, которые интегрируют компоненты из других путей гибели клеток 44,50,51,52,53,54,55 . Совокупность биологических эффектов при ПАНоптозе не может быть индивидуально объяснена только пироптозом, апоптозом или некроптозом 3,4,35,36,39,46,47,48, поскольку ПАНоптоз характеризуется активацией множественных каспаз, включая каспазу-1, каспазу-11, каспазу-8, каспазу-9, каспазу-3 и/или каспазу-7, в зависимости от контекста 44,48,49,50,51,52,53,54,56,57,58,59,60,61,62 . Паноптоз все чаще участвует в инфекционных и воспалительных заболеваниях, а также в раке и терапии рака 3,4,35,36,39,44,46,47,48,49,50,51,52,53 ,54,56
,57,58,59,60,61,62,63,64,65,66.
Учитывая существенную роль каспаз в путях гибели клеток, в том числе в апоптозе, пироптозе, некроптозе и паноптозе, важно разработать методы для характеристики их активации и понимания всей сложности путей ПХД. В протоколе подробно описан метод стимуляции клеток и измерения последующей активации каспаз (рис. 1). Этот метод использует протеолитическое расщепление каспаз, которое обычно требуется для их активации, в качестве средства их изучения. С помощью вестерн-блоттинга можно определить размеры белков, что позволяет четко визуализировать и дифференцировать неактивные прокаспазы и их активированные, расщепленные формы.
Основными преимуществами этого протокола являются: 1) его способность оценивать активацию нескольких каспаз параллельно из одной популяции эндогенных клеток для более точного определения активации ПМД и 2) использование относительно простых лабораторных методов, не требующих обширной подготовки или дорогостоящего оборудования. Предыдущие протоколы использовали вестерн-блоттинг, флуоресцентные репортеры или окрашивание антител для мониторинга активации каспазы в культуральных супернатантах, клеточных и тканевых лизатах, целых клетках с помощью микроскопии и in vivo 67,68,69,70,71, но эти методы обычно контролируют только одну или две каспазы в образце. Кроме того, в то время как синтетические пептидные субстраты, содержащие сайты расщепления каспазы, которые флуоресцируют при расщеплении, использовались для мониторинга активации каспазы в клеточных или тканевых лизатах69, эти субстраты часто могут расщепляться более чем одной каспазой, что затрудняет определение специфической активации отдельных каспаз в этой системе. Кроме того, использование вестерн-блоттинга, а не флуоресцентных репортеров или других методов, основанных на метках, позволяет исследователям использовать эндогенные клетки, а не создавать специфические клеточные линии с репортерными генами. Использование эндогенных клеток имеет множество преимуществ, в том числе тот факт, что многие иммортализированные клеточные линии испытывают дефицит ключевых молекул клеточной смерти72,73, что может повлиять на результаты. Кроме того, использование эндогенных клеток позволяет оценивать различные типы клеток, такие как макрофаги, эпителиальные клетки и эндотелиальные клетки, а не одну линию. Западное блоттинг также является относительно простым и экономичным методом, который можно проводить в лабораториях по всему миру без необходимости использования большого, дорогостоящего оборудования или сложных установок.
Этот протокол широко применим в биологии для понимания как зависящих от гибели клеток, так и независимых от гибели клеток функций каспаз, включая их строительные роли и функции в других воспалительных сигнальных путях74. Применение этого метода позволяет использовать единый подход к изучению путей врожденного иммунитета PCD и воспалительной передачи сигналов при заболеваниях и состояниях, и этот протокол может быть использован для выявления критических регуляторных процессов и механистических связей, которые будут информировать о разработке будущих терапевтических стратегий.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Использование животных и процедуры были одобрены Комитетом по использованию и уходу за животными Детской исследовательской больницы Святого Иуды.
1. Подготовка растворов
- Подготовьте среду, кондиционированную L929.
- Планшет 1 × 10⁶ клеток L929 (см. Таблицу материалов) в колбе для культивирования тканей объемом 182см2 , содержащей 50 мл питательных сред L929 (см. Таблицу 1 для приготовления среды).
- Выращивайте клетки в увлажненном инкубаторе при 37 ° C с 5% CO2.
- Через 7 дней соберите надосадочную жидкость и отфильтруйте с помощью фильтра 0,45 мкм. Приготовьте аликвоты объемом 50 мл (храните замороженные аликвоты при температуре -80 °C до 1 года).
- Приготовьте 500 мл питательной среды макрофагов, полученных из костного мозга (BMDM) (таблица 1).
- Приготовьте 500 мл среды для стимуляции БМДМ (таблица 1).
- Подготовьте 500 мл среды для инфекции (табл. 1).
- Приготовьте 100 мл 1 М трис-буфера (таблица 1).
- Приготовьте буфер из 4x додецилсульфата натрия (SDS) (таблица 1).
- Приготовьте 1 мл 1 М 1,4-дитиотреитола (DTT, таблица 1).
- Приготовьте 40 мл буфера для лизиса каспазы (таблица 1).
- Приготовьте 100 мл 1,5 М трис-буфера (таблица 1).
- Приготовьте 100 мл 10% (мас./об.) раствора SDS (таблица 1).
- Приготовьте 50 мл буфера для 2-кратного радиоиммунопреципитационного анализа (RIPA) (таблица 1).
- Приготовьте раствор ЛПС в дозе 5 мг/мл (таблица 1).
- Приготовьте 0,5 М раствор АТФ (табл. 1).
- Приготовьте западные промокательные растворы.
- Подготовьте 1 л 5-кратного запаса буферного буфера (таблица 1).
- Подготовьте 1 л 10-кратного буферного запаса для переноса (таблица 1).
- Приготовьте 1 л трис-буферного физиологического раствора с Tween 20 (TBST, таблица 1).
- Приготовьте 100 мл 5% (мас./об.) раствора, блокирующего обезжиренное молоко (таблица 1).
- Приготовьте первичные растворы антител.
- Приготовьте 10 мл первичного антитела каспазы-1 (табл. 1).
- Приготовьте 10 мл первичного антитела каспазы-11 (таблица 1).
- Приготовьте 10 мл первичного антитела каспазы-3 (таблица 1).
- Приготовьте 10 мл первичного антитела каспазы-7 (таблица 1).
- Приготовьте 10 мл первичного антитела каспазы-8 (таблица 1).
- Приготовьте 10 мл первичного антитела каспазы-9 (таблица 1).
- Приготовьте 10 мл первичного антитела к β-актину, конъюгированного с HRP (таблица 1).
- Приготовьте вторичные растворы антител.
- Приготовьте 10 мл вторичных антител против кроликов (таблица 1).
- Приготовьте 10 мл вторичных антител против мыши (таблица 1).
- Приготовьте 10 мл вторичных антител против крыс (таблица 1).
2. Выделение макрофагов, полученных из костного мозга
ПРИМЕЧАНИЕ: Для этого протокола можно использовать мышей дикого типа в возрасте 6-10 недель с интактными путями ПХД или мутантных мышей с удаленными или измененными регуляторами, эффекторами или интересующими молекулами ПХД.
- Усыпьте мышь в камере CO 2 со скоростью потока, которая вытесняет 10%-30% объема клетки в минуту в течение2-3 минут. Затем выполните вторичный метод эвтаназии, например, вывих шейки матки. Соблюдайте все дополнительные рекомендации и правила для конкретных учреждений, учреждений и государственных органов, где это применимо.
- Препарируйте мышь, чтобы извлечь кости задних ног.
- Прижмите мышь к спине, чтобы брюшко было открыто. Распылите 70% (об./об.) этанол для стерилизации задних лап и живота.
ВНИМАНИЕ: Этанол легко воспламеняется. Держите его подальше от открытого огня. - С помощью ножниц сделайте надрез по средней линии живота; Продолжайте резать по направлению к ногам, чтобы бедренные кости были видны.
- Возьмите правую заднюю ногу и оттяните кожу от тела к средней линии. Отделите ногу от тела, отрезав приводящие мышцы по направлению к средней линии; Затем разрежьте ногу между тазобедренным суставом и позвоночником. Затем отрежьте лапу дистальнее лодыжки и удалите лишнюю ткань из кости, сняв кожу и используя слегка открытые ножницы, чтобы удалить икроножную ткань.
- Положите ногу на полотенце, пропитанное этанолом на 70% (объем/объем), и рассеките большеберцовую и бедренную кости.
- Обхватите большеберцовую и бедренную кости отдельным набором щипцов. Аккуратно прижмите большеберцовую кость к естественному направлению коленного сустава; Это приведет к разрыву большеберцовой кости в колене.
- При необходимости используйте щипцы и рассекающие ножницы, чтобы удалить оставшуюся свисающую ткань. Сохраните большеберцовую кость для последующего использования, положив ее на полотенце, пропитанное этанолом.
- Собирают бедренную кость таким же образом, отламывая колено.
- Повторите шаги 3 и 4 выше для левой ноги, чтобы удалить ее из тела и рассечь большеберцовую и бедренную кости.
- Опрыскайте кости 70% (об./об.) этанолом.
- Очистите кости, положив их на чистое полотенце, пропитанное этанолом на 70% (об./об.), выдавив мясистую часть полотенцем и потерев полотенцем кость, чтобы удалить лишнюю ткань.
- Прижмите мышь к спине, чтобы брюшко было открыто. Распылите 70% (об./об.) этанол для стерилизации задних лап и живота.
- Как только обе бедренные кости и обе большеберцовые кости будут чистыми, опрыскайте все четыре кости 70% (об/об.) этанол. Соберите кости в стерильную чашку Петри и промойте их 10 мл питательных сред BMDM, осторожно прополоскивая среду в чашке.
- Наполните шприц объемом 10 мл 10 мл свежих питательных сред BMDM и присоедините иглу 25 G.
- Подцепите большеберцовую кость с помощью щипцов; Затем разрежьте голеностопный сустав под углом ~45°.
- Промойте костный мозг из большеберцовой кости.
- Держите большеберцовую кость над трубкой объемом 50 мл так, чтобы узкий конец большеберцовой кости был направлен вниз. Распределите носитель по большеберцовой кости из наполненного шприца.
- Вставьте иглу (сначала осторожно) в верхний конец костного мозга и распределите носитель.
- Извлеките иглу, а затем вставьте снова. Используйте короткие толчки под высоким давлением, чтобы дозировать носитель и переместить иглу в костный мозг.
- Как только среда начнет вытекать из нижней части кости, используйте короткие толчки под высоким давлением, чтобы продолжить вымывание клеток. Следите за цветом кости во время этого процесса, и когда косточка станет белой, выбросьте ее.
- Сделайте это для обеих большеберцовых костей.
- Повторите шаги 5 и 6 выше для бедренных костей, разрезая тазобедренный сустав, так как большеберцовая кость была разрезана в голеностопном суставе. Используйте ту же пробирку объемом 50 мл для сбора питательной среды BMDM во время промывки костного мозга.
- После того, как все четыре кости были промыты, аспирируйте костный мозг и среду из трубки объемом 50 мл вверх и вниз 3 раза через иглу 18 G на шприце объемом 10 мл, каждый раз промывая стенки трубки, чтобы диспергировать костный мозг.
- Отрегулируйте конечный объем в пробирке объемом 50 мл до 30 мл с питательной средой BMDM и убедитесь, что клетки полностью суспендированы.
- Используйте клеточный сетчатый фильтр 70 мкм для фильтрации питательных сред BMDM из пробирки объемом 50 мл.
- Поместите полученную клеточную суспензию, содержащую клетки-предшественники костного мозга, в три чашки для культивирования тканей диаметром 150 мм, добавив 10 мл (или ~ 20 × 106 клеток) к каждому. Затем добавьте дополнительно 10 мл питательных сред BMDM в каждую чашку. Инкубировать в увлажненном инкубаторе при температуре 37 °C.
3. Дифференциация БМДМ и покрытие для экспериментов
- Инкубируйте клетки-предшественники костного мозга при 37 ° C в течение 3 дней. Затем удалите каждую чашку и добавьте дополнительно 5-8 мл питательной среды BMDM (таблица 1). Верните в инкубатор при температуре 37 °C.
- На 5-й день после первичного покрытия выньте каждую чашку и добавьте дополнительно 5 мл питательной среды BMDM. Верните в инкубатор при температуре 37 °C.
- На 6-й день выньте каждое блюдо и выбросьте носитель. Затем добавьте 10 мл холодного (хранящегося при 4 °C) PBS для однократной стирки. Откажитесь от 10 мл холодной стирки PBS. Затем добавьте 10 мл свежего холодного PBS в каждое блюдо и выдерживайте каждое блюдо на льду в течение 5 минут.
- Используя клеточный скребок, аккуратно соскребите клетки со всех трех чашек в одну пробирку объемом 50 мл. Аккуратно раскрутите ячейки при 270 × г при 4 °C в течение 5 мин; Затем выбросьте надосадочную жидкость.
- Добавьте 20 мл питательных сред BMDM, пипеткой вверх и вниз, чтобы ресуспендировать гранулу, и подсчитайте клетки.
ПРИМЕЧАНИЕ: Ожидается, что каждая мышь даст примерно 60 × 10 6-100 × 106 клеток. - Спланируйте макет 12-луночного планшета для желаемого анализа стимуляции гибели/воспаления клеток in vitro . Планируйте плиту 1 × 10⁶ ячеек на лунку. Для каждой запланированной стимуляции включают, по крайней мере, три биологические реплики и тарелку один набор лунок, которые должны быть собраны в буфере лизиса каспазы, и второй набор лунок, которые должны быть собраны в буфере RIPA.
- Планшет 1 × 10⁶ клеток в 1 мл питательных сред BMDM на лунку в 12-луночных планшетах. Культивирование в течение ночи в увлажненном инкубаторе при 37 ° C, прежде чем приступить к оценке гибели / воспаления клеток. После ночной инкубации удалите среду и добавьте по 1 мл теплого (37 ° C) PBS в каждую лунку, чтобы промыть клетки.
- Удалите промывку PBS и добавьте 500 мкл среды для стимуляции BMDM с антибиотиками (при выполнении небактериальной стимуляции) или среды для стимуляции BMDM без антибиотиков (при выполнении бактериальной стимуляции) (таблица 1). Инкубируйте в течение 2 часов, прежде чем переходить к этапу 4 для стимуляции / инфекции in vitro .
4. Стимуляция или заражение клеток
ВНИМАНИЕ: Агенты, включенные в этот протокол, являются потенциально патогенными и должны обрабатываться с соответствующими мерами предосторожности на объекте уровня биобезопасности 2 (BSL2) с одобрения соответствующих институциональных и государственных органов.
- Стимулируйте BMDM активировать гибель клеток с помощью интересующего триггера.
ПРИМЕЧАНИЕ: Для целей настоящего протокола вирус гриппа А (IAV), вирус простого герпеса 1 (HSV1), Francisella novicida, и LPS + ATP используются для иллюстрации, но могут быть использованы и другие триггеры.- Пример стимуляции 1: Инфекция IAV (A/Puerto Rico/8/34, H1N1 [PR8]) (построенная в соответствии с Hoffmann et al.75; вирусный титр для определения кратности инфекции [MOI] рассчитывается с помощью анализа бляшек в клетках MDCK):
- Рассчитайте объем вируса, необходимый для заражения при кратности инфекции (MOI) 20 бляшкообразующих единиц (PFU), используя уравнение (1) и уравнение (2):

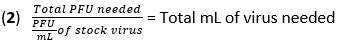
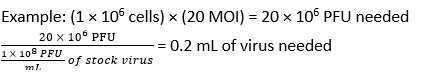
- Удалите среду из BMDM и промойте ячейки один раз 500 мкл PBS. Добавьте 450 мкл IAV (20 MOI) в ДМЭМ с высоким содержанием глюкозы без термоинактивированного (HI)-FBS в каждую лунку. Инкубируйте планшеты при 37 °C в течение 1 часа в увлажненном инкубаторе, чтобы обеспечить впитывание.
- Снимите пластины и добавьте 50 мкл HI-FBS. Верните тарелки в инкубатор при температуре 37 °C. Инкубация в общей сложности 12 часов.
- Рассчитайте объем вируса, необходимый для заражения при кратности инфекции (MOI) 20 бляшкообразующих единиц (PFU), используя уравнение (1) и уравнение (2):
- Пример стимуляции 2: Инфицирование ВПГ1 (штамм HF; культивируется, как описано ранее44; титр вируса для определения MOI рассчитывается с помощью анализа бляшек в клетках Vero):
- Рассчитайте объем вируса, необходимый для заражения при MOI 10 PFU, используя уравнение (1) и уравнение (2) из шага 1 в разделе «Инфекция IAV» выше.
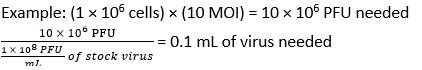
- Извлеките носитель из BMDM. Добавьте 450 мкл HSV1 (MOI 10) в ДМЭМ с высоким содержанием глюкозы без HI-FBS в каждую лунку. Инкубируйте планшеты при 37 °C в течение 1 часа в увлажненном инкубаторе, чтобы обеспечить впитывание.
- Снимите пластины и добавьте 50 мкл HI-FBS. Верните тарелки в инкубатор при температуре 37 °C. Инкубация в общей сложности 12 часов.
- Рассчитайте объем вируса, необходимый для заражения при MOI 10 PFU, используя уравнение (1) и уравнение (2) из шага 1 в разделе «Инфекция IAV» выше.
- Пример стимуляции 3: Инфекцию F. novicida (штамм U112; культивируют, как описано ранее44, в аэробных условиях при 37 ° C в соевом бульоне BBL с добавлением 0,2% L-цистеина в течение ночи. Затем субкультурируют бактерии в соотношении 1:10 при 37 ° C в течение еще 4 ч в свежей среде, прежде чем измерять оптическую плотность (OD) при 600 нм, используя свежую среду в качестве заготовки. Значение OD, равное 1, соответствует 1 × 10⁹ колониеобразующих единиц (КОЕ) на мл.)
- Рассчитайте объем F. novicida , необходимый для инфекции при MOI 50 КОЕ, используя уравнение (3) и уравнение (4):

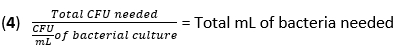
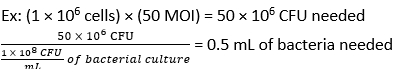
- Удалите среду из BMDM. Добавьте 500 мкл F. novicida (MOI 50) в среды для стимуляции BMDM без антибиотиков в каждую лунку. Инкубируйте планшеты при 37 °C в течение 4 часов в увлажненном инкубаторе для обеспечения впитывания.
- Трижды промойте клетки подогретым (37 °C) PBS и добавьте 500 мкл среды для стимуляции BMDM, содержащей 50 мкг/мл гентамицина. Верните тарелки в инкубатор при температуре 37 °C. Инкубация в течение ночи (16 ч).
- Рассчитайте объем F. novicida , необходимый для инфекции при MOI 50 КОЕ, используя уравнение (3) и уравнение (4):
- Пример стимуляции 4: Стимулируйте ЛПС + АТФ.
- Извлеките носитель из BMDM. Добавьте 500 мкл среды для стимуляции BMDM с антибиотиками (таблица 1), содержащей 100 нг/мл LPS, в каждую лунку. Выдерживают пластины при 37 °C в течение 3,5 ч в увлажненном инкубаторе.
- Добавьте 5 мкл 0,5 М исходного раствора АТФ (таблица 1) в каждую лунку. Верните тарелки в инкубатор при температуре 37 °C. Выдерживать 30 мин.
- Пример стимуляции 1: Инфекция IAV (A/Puerto Rico/8/34, H1N1 [PR8]) (построенная в соответствии с Hoffmann et al.75; вирусный титр для определения кратности инфекции [MOI] рассчитывается с помощью анализа бляшек в клетках MDCK):
5. Сбор комбинированного надосадочного продукта и белкового лизата для использования в каспазных вестерн-блоттингах.
- Через 4, 12 или 16 часов инкубации (конкретное время зависит от используемого триггера) извлеките пластину из инкубатора.
- Удалить 150 мкл надосадочной жидкости; откажитесь от него или сохраните его для других надосадочных анализов (например, иммуноферментного анализа [ИФА]). Не удаляйте остатки надосадочной жидкости.
- Создайте раствор для сбора белка, объединив 50 мкл буфера для лизиса каспазы + 100 мкл 4x буфера SDS на лунку (таблица 1). Затем добавьте по 150 мкл смеси в каждую лунку.
- Для каждой лунки пипеткой нанесите смесь вверх и вниз, чтобы собрать лизированные клетки и надосадочную жидкость. Во время пипетки также соскребите дно лунки наконечником пипетки, чтобы разрушить клетки. После соскабливания и пипетирования соберите лизат белка в меченые пробирки объемом 1,5 мл.
- Используйте тепловой блок для нагрева всех трубок до 100 °C в течение 12 минут.
- Гранулирование любых нерастворимых компонентов центрифугированием при 14 500 × г в течение 30 с при комнатной температуре.
ПРИМЕЧАНИЕ: Это точка паузы - белок из комбинированного надосадочной жидкости и белковых лизатов можно использовать либо немедленно, либо хранить при -20 ° C до 2 месяцев или при -80 ° C до 6 месяцев до тех пор, пока он не будет готов к использованию.
6. Сбор белка лизата для использования для каспазных вестерн-блоттингов
- Через 4, 12 или 16 часов инкубации (конкретное время зависит от используемого триггера) извлеките пластину из инкубатора. Удалите всю надосадочную жидкость; откажитесь от него или сохраните его для других надосадочных анализов (например, ИФА).
- Создайте буфер 1x RIPA, разбавив 2x исходный раствор RIPA (таблица 1) в равном объеме деионизированной воды. Затем добавьте одну таблетку ингибитора фосфатазы и одну таблетку ингибитора протеазы и дайте им раствориться. Добавьте 150 мкл 1x буфера RIPA и 50 мкл 4x SDS в каждую лунку.
- Для каждой лунки нанесите смесь пипеткой вверх и вниз, чтобы собрать лизированные клетки. Во время пипетки также соскребите дно лунки наконечником пипетки, чтобы разрушить клетки. После соскабливания и пипетирования соберите лизат белка в меченые пробирки объемом 1,5 мл.
- Используйте тепловой блок для нагрева всех трубок до 100 °C в течение 12 минут.
- Гранулирование любых нерастворимых компонентов центрифугированием при 14 500 × г в течение 30 с при комнатной температуре.
ПРИМЕЧАНИЕ: Это точка паузы - лизаты белка можно использовать сразу или хранить при температуре -20 ° C или -80 ° C до тех пор, пока они не будут готовы к использованию.
7. Проведение вестерн-блоттинга с использованием лизатов, собранных из BMDM после описанных выше шагов, или из тканевых гомогенатов
ПРИМЕЧАНИЕ: При использовании ткани ее можно гомогенизировать вручную или с помощью механического гомогенизатора ткани. Протокол Simpson76 содержит подробное описание гомогенизации тканей.
- Подготовьте 1x проточный буфер: Смешайте 200 мл 5-кратного запаса проточного буфера (таблица 1) и 800 мл деионизированной воды. Создайте этот 1x запущенный буфер непосредственно перед каждым экспериментом.
- Приготовьте аппарат для электрофореза с 12% (мас./об.) полиакриламидным гелем с 10 лунками. Наполните аппарат для электрофореза 1x буфером. Затем снимите гелевую расческу.
ПРИМЕЧАНИЕ: Для анализа каспазы-1, каспазы-11, каспазы-3, каспазы-7, каспазы-8 и каспазы-9 для каждого образца потребуется шесть гелей. - Для каспаз-1, каспазы-3, каспазы-7 и каспазы-8 планируют использовать 30 мкл комбинированного надосадочного продукта и белкового лизата в буфере для лизиса каспазы или тканевом гомогенате. Для капель каспазы-11 и каспазы-9 планируют использовать 20 мкл лизата белка в буфере RIPA или тканевом гомогенате. Если образцы хранились при температуре -20 °C или -80 °C, сначала разморозьте их на льду.
- Все образцы перед загрузкой нагревают до 100 °C в течение 5 минут и центрифугу при 14 500 × г в течение 30 с при 4 °C. Затем медленно загрузите 20 или 30 мкл образца в каждую полосу. Избегайте перелива образца на другие полосы. Чтобы оценить все шесть каспаз одновременно, используйте ту же процедуру для загрузки соответствующих образцов в каждый из шести гелей.
- Подключите аппарат электрофореза к источнику питания. Затем установите питание на 80 В в течение 20 минут, чтобы начать запуск геля, а затем отрегулируйте питание до 130 В в течение 45-60 минут.
- Внимательно следите за передней частью красителя и выключайте питание, когда передняя часть красителя находится в нижней части геля, но еще не вытолкнута из геля.
- Пока гель работает, приготовьте 1x буфер переноса, объединив 700 мл деионизированной воды, 100 мл 10-кратного буфера переноса (таблица 1) и 200 мл метанола. Каждый раз делайте 1x раствор свежим.
ПРИМЕЧАНИЕ: Будьте осторожны, так как метанол легко воспламеняется. Выполните подготовку буфера для переноса вдали от открытого огня. - Осторожно извлеките гель из аппарата для электрофореза с помощью гель-релизера.
- Установите один стек для переноса для каждого геля.
- Активируйте мембрану PVDF, замочив ее в метаноле на 1 минуту.
- Предварительно смочите два куска фильтровальной бумаги, гель и мембрану PVDF в буфере для переноса в течение 5 минут. Храните мембрану PVDF и гель в отдельных контейнерах в течение 5-минутной инкубации.
- Соберите передаточный стек на полусухой системе. Начиная со стороны нижнего платинового анода, поместите один кусок фильтровальной бумаги, мембрану PVDF, гель и, наконец, один кусок фильтровальной бумаги. Аккуратно раскатайте или выдавите пузырьки воздуха между слоями, и закройте верхнюю часть системы. Прежде чем продолжить, убедитесь, что защитный чехол надежно закреплен.
- Подключите к источнику питания. Установите напряжение 25 В на 45 минут.
- После завершения переноса разберите стек переноса и соберите мембрану; поместите его в квадратную чашку Петри (инкубационный лоток).
- Выполните блокировку мембраны, добавив 15 мл 5% (мас./об.) раствора обезжиренного молока (таблица 1). Инкубируйте мембрану на шейкере-качалке при 50–70 об/мин при комнатной температуре в течение 1 часа.
ПРИМЕЧАНИЕ: Это точка паузы - мембрану можно либо снять через 1 час, либо хранить в блокирующем растворе при температуре 4 ° C в течение ночи. - После 1 ч или ночной инкубации удаляют блокирующий раствор. Добавьте 10 мл разбавленного раствора антитела (антитело против каспазы-1, антитело против каспазы-11, комбинированное антитело против каспазы-3 и антитело против расщепленной каспазы-3, комбинированное антитело против каспазы-7 и антитело против расщепленной каспазы-7, комбинированное антитело против каспазы-8 и антитело против расщепленной каспазы-8 или антитело против каспазы-9) (таблица 1). Поместите на качающийся шейкер при 50–70 об/мин для инкубации при комнатной температуре в течение 2 ч или при 4 °C в течение ночи (16 ч).
- Соберите раствор антител (повторно используйте до 3 раз или выбросьте его) и промойте, добавив 15 мл TBST (таблица 1) к мембране на качающемся шейкере при 50–70 об/мин при комнатной температуре в течение 10 мин. Откажитесь от TBST.
- Повторите стирку с 15 мл TBST после шага 14, в общей сложности 3 раза.
- Добавьте 10 мл разбавленного вторичного раствора HRP-конъюгированного антитела (анти-кролик для блоттинга, окрашенного первичными антителами против каспазы-3, каспазы-7, каспазы-8 или каспазы-9; антимышь для клякс, окрашенных первичным антителом против каспазы-1; антикрыса для кляксин, окрашенных первичным антителом против каспазы-11) (таблица 1). Инкубировать на шейкере-качалке при 50–70 об/мин при комнатной температуре в течение 1 часа.
- Удалите раствор антител и промойте, добавив 15 мл TBST к мембране на качающемся шейкере со скоростью от 50 до 70 об/мин при комнатной температуре в течение 10 мин. Откажитесь от TBST.
- Повторите стирку с 15 мл TBST после шага 17, в общей сложности 3 раза.
- Добавьте 10 мл высокочувствительного субстрата HRP к мембране. Оставьте при комнатной температуре в темноте на 1 минуту.
- Снимите мембрану с субстрата. Приступайте непосредственно к визуализации с помощью хемилюминесцентного тепловизора с дополнительным белым транс-лотком, вставленным в нижнее положение. Экспонируйте мембрану, используя режим автоматической экспозиции (обычно ~ 1-2 минуты времени экспозиции).
- Используя мембрану от блоттинга каспазы-9 или каспазы-11 (т.е. мембрану с образцами лизата RIPA), добавьте 10 мл буфера для зачистки и инкубируйте на качающемся шейкере при 50–70 об/мин при комнатной температуре в течение 5 мин.
- Выбросьте буфер для зачистки и промойте, добавив 15 мл TBST в мембрану на качающемся шейкере при 50–70 об/мин при комнатной температуре в течение 10 минут. Откажитесь от TBST.
- Повторите стирку с 15 мл TBST после шага 22, в общей сложности 3 раза.
- Выполните блокировку мембраны, добавив 15 мл 5% (мас./об.) раствора обезжиренного молока. Инкубируйте мембрану на шейкере-качалке при 50–70 об/мин при комнатной температуре в течение 1 часа.
ПРИМЕЧАНИЕ: Это точка паузы - мембрану можно либо снять через 1 час, либо хранить в блокирующем растворе при температуре 4 ° C в течение ночи. - После 1 ч или ночной инкубации удаляют блокирующий раствор. Добавьте 10 мл разбавленного раствора антител против β-актина (HRP-конъюгированного). Поместите на качающийся шейкер при 50–70 об/мин для инкубации при комнатной температуре в течение 1,5 часа.
- Удалите раствор антител и промойте, добавив 15 мл TBST к мембране на качающемся шейкере со скоростью от 50 до 70 об/мин при комнатной температуре в течение 10 мин. Откажитесь от TBST.
- Повторите стирку с 15 мл TBST после шага 26, в общей сложности 3 раза.
- Добавьте 10 мл субстрата HRP стандартной чувствительности к мембране. Оставьте при комнатной температуре в темноте на 1 минуту.
- Приступайте непосредственно к визуализации с помощью хемилюминесцентного тепловизора с дополнительным белым транс-лотком, вставленным в нижнее положение. Экспонируйте мембрану, используя режим автоматической экспозиции (обычно <1 мин времени экспозиции).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
ПАНоптоз наблюдался в ответ на многочисленные бактериальные, вирусные и грибковые инфекции и другие воспалительные стимулы, а также в раковых клетках 44,48,49,50,51,52,53,54,56,57,58,60,61,62 <...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Мониторинг расщепления и активации каспазы дает одну из наиболее полных картин активации врожденного иммунного PCD как части врожденного иммунного ответа. Описанный здесь протокол демонстрирует стратегию мониторинга активации каспазы в ответ на инфекции IAV, HSV1 и F. novicida и стерильный триггер ЛПС + АТФ, но многочисленные другие стимулы могут индуцировать ПМД и могут быть использованы в этом методе, как было показано в нескольких публикациях 44,48,49,50,51,52,53,54,56
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
T.-D.K. является консультантом компании Pfizer.
Благодарности
Мы благодарим сотрудников лаборатории Каннеганти за их комментарии и предложения, а также благодарим доктора философии Дж. Работа в нашей лаборатории поддерживается грантами Национальных институтов здравоохранения (NIH) AI101935, AI124346, AI160179, AR056296 и CA253095 (для T.-D.K.) и американо-ливанскими сирийскими благотворительными организациями (для T.-D.K.). Содержание является исключительной ответственностью авторов и не обязательно отражает официальную точку зрения Национальных институтов здравоохранения.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 0,45 мкм; m фильтр | Millipore | SCHVU05RE | |
| шприц 10 мл | BD Biosciences | 309604 | |
| 12% полиакриламидный гель с 10 лунками | Bio-Rad | 4561043 | |
| 12-луночный планшет | Игла | Corning 07-200-82 | |
| 18 G | Игла BD Biosciences | 305195 | |
| 25 г | BD Biosciences | 305122 | |
| пробирка 50 мл | Fisher Scientific | 50-809-218 | |
| 70 μ Ситечко для клеток M | Чашки | Corning 431751 | |
| 150 мм Corning | |||
| 182-см<суп>2 колба для культуры тканей | Genesee Scientific | 25-211 | |
| Аксессуар белый транс-лоток | Cytiva | 29-0834-18 | |
| Anti– антитело к каспазе-1 | AdipoGen | AG-20B-0042-C100 | |
| Anti– антитело к каспазе-11 | Novus Biologicals | NB120-10454 | |
| Anti– Технология клеточной сигнализации антитела к каспазе-3 | 9662 | ||
| Anti– Технология | клеточной сигнализации | 9492 | |
| Anti– Технология | клеточной сигнализации | 4927 | |
| Anti– Технология | клеточной сигнализации | 9504 | |
| Anti– Антитела к расщепленной каспазе-3 | Технология сотовой сигнализации | 9661 | |
| Anti– расщепленное антитело к каспазе-7 | Технология клеточной сигнализации | 9491 | |
| Anti– расщепленное антитело к каспазе-8 | Технология клеточной сигнализации | 8592 | |
| Антимышиное HRP-конъюгированное вторичное антитело | Jackson ImmunoResearch Laboratories | 315-035-047 | |
| Вторичное антитело против HRP-конъюгированного против кролика | Jackson ImmunoResearch Laboratories | 111-035-047 | |
| Антикрысиное HRP-конъюгированное вторичное антитело | Лаборатории иммуноисследований Джексона | 112-035-003 | |
| Анти– β-Actin антитела (C4) HRP | Santa Cruz | sc-47778 HRP | |
| ATP | InvivoGen | tlrl-atpl | |
| BBL Trypticase Soy Broth | BD Biosciences | 211768 | |
| Ванны с шариками | Chemglass Life Sciences | CLS-4598-009 | |
| Биофотометр D30 | Eppendorf | 6133000010 | |
| BME | Sigma | M6250 | |
| Бромфенол синий | Скребки для клеток Sigma | BO126 | |
| CellTreat Scientific Products | 229315 | ||
| Хемилюминесцентный имиджер (Amersham 600) | Cytiva | 29083461 | |
| CO2 камера | VetEquip | 901703 | |
| кюветы | Fisher Scientific | 14-955-129 | |
| Ножницы для препарирования | Thermo Fisher Scientific | 221S | |
| DMEM | Thermo Fisher Scientific | 11995-073 | |
| DTT | Sigma | 43815 | |
| Аппарат для электрофореза | Bio-Rad | 1658004 | |
| Этанол | Pharmco | 111000200 | |
| Фетальная бычья сыворотка | Biowest | S1620 | |
| Фильтровальная бумага | Bio-Rad | 1703965 | |
| щипцами | Fisher Scientific | 22-327379 | |
| Francisella novicida (штамм U112) | BEI Resources | NR-13 | |
| Гель releaser | Bio-Rad | 1653320 | |
| Гентамицин | Gibco | 15750060 | |
| глицерин | Sigma | G7893 | |
| Глицин | Sigma | G8898 | |
| HCl | Sigma | H9892 | |
| Тепловой блок | Fisher Scientific | 23-043-160 | |
| Вирус простого герпеса 1 (штамм HF) | ATCC | VR-260 | |
| Высокий уровень глюкозы DMEM | Sigma | D6171 | |
| Анти для человека; R | & D Systems | MAB6215 | |
| защиту человека от Антитело к каспазе-8 | Enzo | ALX-804-242 | |
| Увлажненный инкубатор | Thermo Fisher Scientific | 51026282 | |
| Программное обеспечение для анализа изображений | ImageJ | v1.53a | |
| IMDM | Thermo Fisher Scientific | 12440-053 | |
| Вирус гриппа А (A/Puerto Rico/8/34, H1N1 [PR8]) | сконструировано по Hoffmann et al. | ||
| L929 клетки | ATCC | CCL-1 | клеточная линия для создания L929-кондиционированной среды |
| L-цистеина | Thermo Fisher Scientific | BP376-100 | |
| Luminata Forte Western HRP субстрат | Millipore | WBLUF0500 | стандартная чувствительность HRP субстрат |
| MDCK клетки | ATCC | CCL-34 | клеточная линия для определения титра вируса IAV |
| Methanol | Sigma | 322415 | |
| микроцентрифуга | Thermo Fisher Scientific | 75002401 | |
| Заменимые аминокислоты | Gibco | 11140050 | |
| Обезжиренное сухое молоко | Kroger | ||
| NP-40 раствор | Sigma | 492016 | |
| PBS | Thermo Fisher Scientific | 10010023 | |
| пенициллином и стрептомицином | Sigma | P4333 | |
| Чашка Петри | Fisher Scientific | 07-202-011 | |
| PhosSTOP | Roche | PHOSS-RO | |
| Источник питания | Bio-Rad | 164-5052 | |
| Таблетка ингибитора протеазы | Sigma | S8820 | |
| PVDF мембрана | Шейкер с миллипорами | IPVH00010 | |
| Labnet | S2035-E | ||
| SDS | Sigma | L3771 | |
| Хлорид натрия | Sigma | S9888 | |
| Дезоксихолат натрия | Sigma | 30970 | |
| Гидроксид натрия | Sigma | 72068 | |
| Пируват натрия | Gibco | 11360-070 | |
| Квадратная чашка Петри | Fisher Scientific | FB0875711A | |
| Буфер для снятия | Thermo Fisher Scientific | 21059 | |
| Super Signal Femto HRP подложка | Thermo Fisher Scientific | 34580 | высокочувствительная подложка HRP |
| Настольная центрифуга | Thermo Fisher Scientific | 75004524 | |
| Полусухая система Trans-Blot | Bio-Rad | 170-3940 | |
| Tris | Sigma | TRIS-RO | |
| Tween 20 | Sigma | P1379 | |
| Сверхчистый липополисахарид (ЛПС) из E. coli 0111:B4 | InvivoGen | tlrl-3pelps | |
| Vero cells | ATCC | CCL-81 | клеточная линия для определения титра вируса HSV1 |
Ссылки
- Alnemri, E. S., et al. Human ICE/CED-3 protease nomenclature. Cell. 87 (2), 171(1996).
- Man, S. M., Kanneganti, T. D. Converging roles of caspases in inflammasome activation, cell death and innate immunity. Nature Reviews Immunology. 16 (1), 7-21 (2016).
- Gullett, J. M., Tweedell, R. E., Kanneganti, T. D. It's all in the PAN: Crosstalk, plasticity, redundancies, switches, and interconnectedness encompassed by PANoptosis underlying the totality of cell death-associated biological effects. Cells. 11 (9), 1495(2022).
- Pandian, N., Kanneganti, T. D. PANoptosis: A unique innate immune inflammatory cell death modality. Journal of Immunology. 209 (9), 1625-1633 (2022).
- Galluzzi, L., et al. Molecular mechanisms of cell death recommendations of the Nomenclature Committee on Cell Death 2018. Cell Death & Differentiation. 25 (3), 486-541 (2018).
- Shi, Y. Caspase activation: Revisiting the induced proximity model. Cell. 117 (7), 855-858 (2004).
- Galluzzi, L., Lopez-Soto, A., Kumar, S., Kroemer, G. Caspases connect cell-death signaling to organismal homeostasis. Immunity. 44 (2), 221-231 (2016).
- Fernandes-Alnemri, T., Litwack, G., Alnemri, E. S. CPP32, a novel human apoptotic protein with homology to Caenorhabditis elegans cell death protein Ced-3 and mammalian interleukin-1 beta-converting enzyme. Journal of Biological Chemistry. 269 (49), 30761-30764 (1994).
- Tewari, M., et al. Yama/CPP32 beta, a mammalian homolog of CED-3, is a CrmA-inhibitable protease that cleaves the death substrate poly(ADP-ribose) polymerase. Cell. 81 (5), 801-809 (1995).
- Nicholson, D. W., et al. Identification and inhibition of the ICE/CED-3 protease necessary for mammalian apoptosis. Nature. 376 (6535), 37-43 (1995).
- Stennicke, H. R., et al. Pro-caspase-3 is a major physiologic target of caspase-8. Journal of Biological Chemistry. 273 (42), 27084-27090 (1998).
- Twiddy, D., Cohen, G. M., Macfarlane, M., Cain, K. Caspase-7 is directly activated by the approximately 700-kDa apoptosome complex and is released as a stable XIAP-caspase-7 approximately 200-kDa complex. Journal of Biological Chemistry. 281 (7), 3876-3888 (2006).
- Kesavardhana, S., Malireddi, R. K. S., Kanneganti, T. D. Caspases in cell death, inflammation, and pyroptosis. Annual Reviews of Immunology. 38, 567-595 (2020).
- Kerr, J. F., Wyllie, A. H., Currie, A. R. Apoptosis: a basic biological phenomenon with wide-ranging implications in tissue kinetics. British Journal of Cancer. 26 (4), 239-257 (1972).
- Taylor, R. C., Cullen, S. P., Martin, S. J. Apoptosis: Controlled demolition at the cellular level. Nature Reviews Molecular Cell Biology. 9 (3), 231-241 (2008).
- Morioka, S., Maueröder, C., Ravichandran, K. S. Living on the edge: Efferocytosis at the interface of homeostasis and pathology. Immunity. 50 (5), 1149-1162 (2019).
- Wang, Y., et al. Chemotherapy drugs induce pyroptosis through caspase-3 cleavage of a gasdermin. Nature. 547 (7661), 99-103 (2017).
- Rogers, C., et al. Cleavage of DFNA5 by caspase-3 during apoptosis mediates progression to secondary necrotic/pyroptotic cell death. Nature Communications. 8, 14128(2017).
- Kayagaki, N., et al. Caspase-11 cleaves gasdermin D for non-canonical inflammasome signalling. Nature. 526 (7575), 666-671 (2015).
- Shi, J., Gao, W., Shao, F. Pyroptosis: Gasdermin-mediated programmed necrotic cell death. Trends in Biochemical Sciences. 42 (4), 245-254 (2017).
- Sborgi, L., et al. GSDMD membrane pore formation constitutes the mechanism of pyroptotic cell death. EMBO Journal. 35 (16), 1766-1778 (2016).
- Aglietti, R. A., et al. GsdmD p30 elicited by caspase-11 during pyroptosis forms pores in membranes. Proceedings of the National Academy of Sciences of the United States of America. 113 (28), 7858-7863 (2016).
- Hagar, J. A., Powell, D. A., Aachoui, Y., Ernst, R. K., Miao, E. A. Cytoplasmic LPS activates caspase-11: implications in TLR4-independent endotoxic shock. Science. 341 (6151), 1250-1253 (2013).
- Kayagaki, N., et al. Noncanonical inflammasome activation by intracellular LPS independent of TLR4. Science. 341 (6151), 1246-1249 (2013).
- Shi, J., et al. Inflammatory caspases are innate immune receptors for intracellular LPS. Nature. 514 (7521), 187-192 (2014).
- Lamkanfi, M., et al. Targeted peptidecentric proteomics reveals caspase-7 as a substrate of the caspase-1 inflammasomes. Molecular & Cellular Proteomics. 7 (12), 2350-2363 (2008).
- Kalai, M., et al. Tipping the balance between necrosis and apoptosis in human and murine cells treated with interferon and dsRNA. Cell Death & Differentiation. 9 (9), 981-994 (2002).
- Li, C., et al. Development of atopic dermatitis-like skin disease from the chronic loss of epidermal caspase-8. Proceedings of the National Academy of Sciences of the United States of America. 107 (51), 22249-22254 (2010).
- Kovalenko, A., et al. Caspase-8 deficiency in epidermal keratinocytes triggers an inflammatory skin disease. Journal of Experimental Medicine. 206 (10), 2161-2177 (2009).
- Kang, T. B., et al. Caspase-8 serves both apoptotic and nonapoptotic roles. Journal of Immunology. 173 (5), 2976-2984 (2004).
- Oberst, A., et al. Catalytic activity of the caspase-8-FLIP(L) complex inhibits RIPK3-dependent necrosis. Nature. 471 (7338), 363-367 (2011).
- Kaiser, W. J., et al. RIP3 mediates the embryonic lethality of caspase-8-deficient mice. Nature. 471 (7338), 368-372 (2011).
- Zhang, H., et al. Functional complementation between FADD and RIP1 in embryos and lymphocytes. Nature. 471 (7338), 373-376 (2011).
- Shi, J., et al. Cleavage of GSDMD by inflammatory caspases determines pyroptotic cell death. Nature. 526 (7575), 660-665 (2015).
- Hitomi, J., et al. Identification of a molecular signaling network that regulates a cellular necrotic cell death pathway. Cell. 135 (7), 1311-1323 (2008).
- Malireddi, R. K., Ippagunta, S., Lamkanfi, M., Kanneganti, T. D. Cutting edge: Proteolytic inactivation of poly(ADP-ribose) polymerase 1 by the Nlrp3 and Nlrc4 inflammasomes. Journal of Immunology. 185 (6), 3127-3130 (2010).
- Tsuchiya, K., et al. Caspase-1 initiates apoptosis in the absence of gasdermin D. Nature Communications. 10 (1), (2019).
- Taabazuing, C. Y., Okondo, M. C., Bachovchin, D. A. Pyroptosis and apoptosis pathways engage in bidirectional crosstalk in monocytes and macrophages. Cell Chemical Biology. 24 (4), 507-514 (2017).
- Gurung, P., et al. FADD and caspase-8 mediate priming and activation of the canonical and noncanonical Nlrp3 inflammasomes. Journal of Immunology. 192 (4), 1835-1846 (2014).
- Man, S. M., et al. Inflammasome activation causes dual recruitment of NLRC4 and NLRP3 to the same macromolecular complex. Proceedings of the National Academy of Sciences of the United States of America. 111 (20), 7403-7408 (2014).
- Man, S. M., et al. Salmonella infection induces recruitment of Caspase-8 to the inflammasome to modulate IL-1beta production. Journal of Immunology. 191 (10), 5239-5246 (2013).
- Van Opdenbosch, N., et al. Caspase-1 engagement and TLR-induced c-FLIP expression suppress ASC/caspase-8-dependent apoptosis by inflammasome sensors NLRP1b and NLRC4. Cell Reports. 21 (12), 3427-3444 (2017).
- Pierini, R., et al. AIM2/ASC triggers caspase-8-dependent apoptosis in Francisella-infected caspase-1-deficient macrophages. Cell Death & Differentiation. 19 (10), 1709-1721 (2012).
- Lee, S., et al. AIM2 forms a complex with pyrin and ZBP1 to drive PANoptosis and host defence. Nature. 597 (7876), 415-419 (2021).
- Sagulenko, V., et al. AIM2 and NLRP3 inflammasomes activate both apoptotic and pyroptotic death pathways via ASC. Cell Death & Differentiation. 20 (9), 1149-1160 (2013).
- Lukens, J. R., et al. Dietary modulation of the microbiome affects autoinflammatory disease. Nature. 516 (7530), 246-249 (2014).
- Gurung, P., Burton, A., Kanneganti, T. D. NLRP3 inflammasome plays a redundant role with caspase 8 to promote IL-1beta-mediated osteomyelitis. Proceedings of the National Academy of Sciences of the United States of America. 113 (16), 4452-4457 (2016).
- Kuriakose, T., et al. ZBP1/DAI is an innate sensor of influenza virus triggering the NLRP3 inflammasome and programmed cell death pathways. Science Immunology. 1 (2), (2016).
- Malireddi, R. K. S., et al. TAK1 restricts spontaneous NLRP3 activation and cell death to control myeloid proliferation. Journal of Experimental Medicine. 215 (4), 1023-1034 (2018).
- Malireddi, R. K. S., et al. Innate immune priming in the absence of TAK1 drives RIPK1 kinase activity-independent pyroptosis, apoptosis, necroptosis, and inflammatory disease. Journal of Experimental Medicine. 217 (3), (2020).
- Christgen, S., et al. Identification of the PANoptosome: A molecular platform triggering pyroptosis, apoptosis, and necroptosis (PANoptosis). Frontiers in Cellular and Infection Microbiology. 10, 237(2020).
- Malireddi, R. K. S., et al. RIPK1 distinctly regulates Yersinia-induced inflammatory cell death, PANoptosis. Immunohorizons. 4 (12), 789-796 (2020).
- Zheng, M., Karki, R., Vogel, P., Kanneganti, T. D. Caspase-6 is a key regulator of innate immunity, inflammasome activation, and host defense. Cell. 181 (3), 674-687 (2020).
- Karki, R., et al. ADAR1 restricts ZBP1-mediated immune response and PANoptosis to promote tumorigenesis. Cell Reports. 37 (3), 109858(2021).
- Wang, Y., et al. Single cell analysis of PANoptosome cell death complexes through an expansion microscopy method. Cellular and Molecular Life Sciences. 79 (10), 531(2022).
- Malireddi, R. K. S., et al. Inflammatory cell death, PANoptosis, mediated by cytokines in diverse cancer lineages inhibits tumor growth. Immunohorizons. 5 (7), 568-580 (2021).
- Kesavardhana, S., et al. The Zα2 domain of ZBP1 is a molecular switch regulating influenza-induced PANoptosis and perinatal lethality during development. Journal of Biological Chemistry. 295 (24), 8325-8330 (2020).
- Banoth, B., et al. ZBP1 promotes fungi-induced inflammasome activation and pyroptosis, apoptosis, and necroptosis (PANoptosis). Journal of Biological Chemistry. 295 (52), 18276-18283 (2020).
- Karki, R., et al. Interferon regulatory factor 1 regulates PANoptosis to prevent colorectal cancer. JCI Insight. 5 (12), 136720(2020).
- Zheng, M., et al. Impaired NLRP3 inflammasome activation/pyroptosis leads to robust inflammatory cell death via caspase-8/RIPK3 during coronavirus infection. Journal of Biological Chemistry. 295 (41), 14040-14052 (2020).
- Karki, R., et al. Synergism of TNF-α and IFN-γ triggers inflammatory cell death, tissue damage, and mortality in SARS-CoV-2 infection and cytokine shock syndromes. Cell. 184 (1), 149-168 (2021).
- Karki, R., et al. ZBP1-dependent inflammatory cell death, PANoptosis, and cytokine storm disrupt IFN therapeutic efficacy during coronavirus infection. Science Immunology. 7 (74), (2022).
- Jiang, W., Deng, Z., Dai, X., Zhao, W. PANoptosis: A new insight into oral infectious diseases. Frontiers in Immunology. 12, 789610(2021).
- Chi, D., et al. Real-time induction of macrophage apoptosis, pyroptosis, and necroptosis by Enterococcus faecalis OG1RF and two root canal isolated strains. Frontiers in Cellular and Infection Microbiology. 11, 720147(2021).
- Lin, J. F., et al. Phosphorylated NFS1 weakens oxaliplatin-based chemosensitivity of colorectal cancer by preventing PANoptosis. Signal Transduction and Targeted Therapy. 7 (1), 54(2022).
- Song, M., et al. Self-assembled polymeric nanocarrier-mediated co-delivery of metformin and doxorubicin for melanoma therapy. Drug Delivery. 28 (1), 594-606 (2021).
- Boucher, D., Chan, A., Ross, C., Schroder, K. Quantifying caspase-1 activity in murine macrophages. Methods in Molecular Biology. 1725, 163-176 (2018).
- Boucher, D., Duclos, C., Denault, J. B. General in vitro caspase assay procedures. Methods in Molecular Biology. 1133, 3-39 (2014).
- Kaushal, V., Herzog, C., Haun, R. S., Kaushal, G. P. Caspase protocols in mice. Methods in Molecular Biology. 1133, 141-154 (2014).
- Swacha, P., Gekara, N. O., Erttmann, S. F. Biochemical and microscopic analysis of inflammasome complex formation. Methods in Enzymology. 625, 287-298 (2019).
- Talley, S., et al. A caspase-1 biosensor to monitor the progression of inflammation in vivo. Journal of Immunology. 203 (9), 2497-2507 (2019).
- Pelegrin, P., Barroso-Gutierrez, C., Surprenant, A. P2X7 receptor differentially couples to distinct release pathways for IL-1beta in mouse macrophage. Journal of Immunology. 180 (11), 7147-7157 (2008).
- Yu, J. W., et al. Cryopyrin and pyrin activate caspase-1, but not NF-kappaB, via ASC oligomerization. Cell Death & Differentiation. 13 (2), 236-249 (2006).
- Henry, C. M., Martin, S. J. Caspase-8 acts in a non-enzymatic role as a scaffold for assembly of a pro-inflammatory "FADDosome" complex upon TRAIL stimulation. Molecular Cell. 65 (4), 715-729 (2017).
- Hoffmann, E., Neumann, G., Kawaoka, Y., Hobom, G., Webster, R. G. A DNA transfection system for generation of influenza A virus from eight plasmids. Proceedings of the National Academy of Sciences of the United States of America. 97 (11), 6108-6113 (2000).
- Simpson, R. J. Homogenization of mammalian tissue. Cold Spring Harbor Protocols. (7), (2010).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
