Здесь мы представляем компиляцию анализов для непосредственного измерения функции митохондрий в клетках млекопитающих независимо от их способности потреблять молекулярный кислород.
Методическая статья
Кислородно-независимые анализы для измерения функции митохондрий у млекопитающих
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Поток электронов в митохондриальной цепи переноса электронов (ETC) поддерживает многогранные биосинтетические, биоэнергетические и сигнальные функции в клетках млекопитающих. Поскольку кислород (O 2) является наиболее распространенным концевым акцептором электронов для внеземных цивилизаций млекопитающих, норма потребления O2 часто используется в качестве прокси для митохондриальной функции. Однако новые исследования показывают, что этот параметр не всегда указывает на функцию митохондрий, поскольку фумарат можно использовать в качестве альтернативного акцептора электронов для поддержания митохондриальных функций при гипоксии. В этой статье собрана серия протоколов, которые позволяют исследователям измерять функцию митохондрий независимо от нормы потребленияO2. Эти анализы особенно полезны при изучении функции митохондрий в гипоксической среде. В частности, мы описываем методы измерения продукции митохондриальной АТФ, биосинтеза пиримидина de novo, окисления НАДН комплексом I и производства супероксида. В сочетании с классическими экспериментами по респирометрии эти ортогональные и экономичные анализы предоставят исследователям более полную оценку функции митохондрий в интересующей их системе.
Введение
Функция митохондрий является важнейшим показателем клеточного здоровья, поскольку она поддерживает ключевые биосинтетические, биоэнергетические и сигнальные функции в клетках млекопитающих1. Подавляющее большинство митохондриальных функций требуют потока электронов через цепь переноса электронов (ETC), а нарушения потока электронов в ETC вызывают тяжелое заболевание митохондрий2. ETC состоит из серии реакций восстановления и окисления (окислительно-восстановительных), которые встроены во внутреннюю митохондриальную мембрану, и эти реакции переноса электронов высвобождают свободную энергию, которая может быть использована для поддержки синтеза АТФ, физиологических процессов, таких как термогенез, путей биосинтеза, таких как биосинтез пиримидина de novo, и баланса окислительно-восстановительного статуса кофакторов, таких как НАДН. Комплексы ETC I и III продуцируют активные формы кислорода (АФК)3,4,5, которые, в свою очередь, регулируют ключевые сигнальные пути, такие как HIF, PI3K, NRF2, NFκB и MAPK 6. Следовательно, метрики потока электронов в ETC классически используются в качестве прокси для митохондриальной функции в клетках млекопитающих.
Эксперименты по респирометрии часто используются для измерения функции митохондрий в клетках млекопитающих. Поскольку O2 является наиболее распространенным концевым акцептором электронов для внеземных цивилизаций млекопитающих, его восстановление используется в качестве прокси для митохондриальной функции. Тем не менее, новые данные показывают, что митохондрии млекопитающих могут использовать фумарат в качестве акцептора электронов для поддержания митохондриальных функций, которые зависят от ETC, включая биосинтез пиримидина de novo 7, окислениеNADH 7 и детоксикацию сероводорода8. Таким образом, в определенных контекстах, особенно в гипоксических средах, измерения скорости потребленияO2 (OCR) не дают точного или точного указания на функцию митохондрий.
Здесь мы описываем серию анализов, которые можно использовать для измерения функции митохондрий независимо от OCR. Мы предоставляем анализы для непосредственного измерения комплексного I-опосредованного окисления НАДН, биосинтеза дигидрооротатдегидрогеназы, опосредованного de novo пиримидина, комплексного V-зависимого синтеза АТФ, чистой направленности комплекса сукцинатдегидрогеназы (SDH) и митохондриального происхождения АФК. Эти анализы предназначены для проведения на культивируемых клетках млекопитающих, хотя многие из них могут быть адаптированы для изучения митохондриальных функций in vivo. Примечательно, что анализы, описанные в этом протоколе, являются более прямыми измерениями митохондриальных функций, чем OCR. Кроме того, они позволяют измерять функцию митохондрий при гипоксии, контексте, в котором OCR не является ориентировочным измерением. Взятые вместе, эти анализы в сочетании с классическими экспериментами по респирометрии предоставят исследователям более полную оценку функции митохондрий в клетках млекопитающих.
Протокол
1. Анализы пролиферации для измерения активности комплекса I, дигидрооротатдегидрогеназы (DHODH) и активности комплекса V
- Посев клеток для анализов пролиферации
ПРИМЕЧАНИЕ: В этом протоколе используется клеточная линия 143B остеосаркомы человека, приобретенная в коммерческих целях у ATCC. Эта клеточная линия использовалась в соответствии с руководящими принципами нашего утвержденного протокола Институционального комитета по биобезопасности (IBC).- Извлеките пластины из инкубатора для тканевых культур. Аспирируйте среду с пластин и промойте 1x фосфатно-буферным физиологическим раствором (PBS), чтобы удалить остатки среды. Аспирируйте PBS и накройте блюдо 0,05%-0,25% трипсина, чтобы поднять клетки со дна тарелки.
- Подождите 3-5 минут, пока трипсин освободит клетки от пластины, а затем погасите трипсин 10 мл желаемой питательной среды, содержащей 10% фетальной бычьей сыворотки (FBS).
- Соберите клетки в коническую пробирку и центрифугу при 1000 × г в течение 5 мин, чтобы гранулировать клетки.
- Аспирируйте среду из трубки, не нарушая гранулы. Ресуспендируйте гранулу с полной средой.
- Подсчитайте клетки и количественно определите объем, необходимый для посева от 10 000 до 25 000 клеток в 6-луночную тарелку.
ПРИМЕЧАНИЕ: Каждая клеточная линия должна быть оптимизирована для количества ячеек, которые будут посеяны. Достигнутое идеальное слияние составляет ~10% в начале эксперимента и ~80% в конце эксперимента. - Поместите клетки пипеткой в 6-луночную пластину и добавьте в лунки 2 мл полной среды. Оставьте на 24 часа, прежде чем перейти на условия экспериментальной среды.
ПРИМЕЧАНИЕ: Засейте не менее трех повторений в каждом условии и достаточном количестве лунок для тестирования необработанного контрольного состояния, контрольного состояния, обработанного ингибитором, необработанного экспериментального условия и экспериментального условия, обработанного ингибиторами.
- Изменение среды для оценки активности комплекса V за счет пролиферации
ПРИМЕЧАНИЕ: Клетки, пролиферирующие в среде с галактозой, зависят от активности комплекса V для синтеза АТФ 9,10. В отличие от глюкозы, которая дает чистые два АТФ в результате гликолиза, галактоза не дает ни одного, заставляя клетки зависеть от комплекса V для синтеза АТФ (рис. 1). В качестве контроля используется комплексный ингибитор V олигомицин.- Изготовьте 10 мМ глюкозосодержащей среды (см. Таблицу 1).
- Изготовьте 10 мМ, содержащую галактозу среду (см. Таблицу 1).
- Измените среду в каждой лунке либо на глюкозосодержащую ДМЭМ, либо на галактозосодержащую ДМЭМ. Добавьте 5 мкМ олигомицина (ингибитор комплекса V) в соответствующие лунки и такой же объем ДМСО в необработанные лунки. Запас олигомицина составляет 10 мМ, ресуспендированное в ДМСО. Поместите пластину обратно в инкубатор для тканевых культур на 2 дня.
- Изменение среды для оценки активности комплекса I путем пролиферации
ПРИМЕЧАНИЕ: Клетки, размножающиеся в среде, не содержащей пирувата, в большей степени зависят от активности комплексаI 11,12. Без пирувата культивируемым клеткам требуется комплекс I, чтобы облегчить большую часть переокисления НАДН обратно в НАД + (рис. 2). В качестве контроля используется ингибитор комплекса I ротенон.- Сделайте среду DMEM без пирувата с добавлением 10% FBS и 1% пенициллина-стрептомицина.
- Делают 1 М раствор пирувата (см. табл. 1).
- Измените среду в каждой лунке либо на среду, не содержащую пирувата, либо на среду, содержащую пируват. Добавьте 2 мкМ ротенона (ингибитор комплекса I) в обработанные лунки и такой же объем ДМСО в необработанные лунки. Запас ротенона составляет 25 мМ, ресуспендированный в ДМСО. Поместите пластину обратно в инкубатор для тканевых культур на 2 дня.
- Изменение среды для оценки активности DHODH за счет пролиферации
ПРИМЕЧАНИЕ: Клетки, пролиферирующие в среде, свободной от уридина, требуют активности дигидрооротатдегидрогеназы (DHODH)11,12,13. В отсутствие экзогенного уридина культивируемые клетки синтезируют пиримидины путем de novo. Ингибитор DHODH брекхинар используется в качестве контроля.- Сделайте DMEM без уридина с добавлением 10% FBS и 1% пенициллина-стрептомицина.
- Сделайте исходный раствор уридина 10 мг/мл, а затем приготовьте среду уридина 100 мкг/мл (см. Таблицу 1).
- Измените среду в каждой лунке на среду, не содержащую уридина, или среду, содержащую уридин. Добавьте 5 мкМ брехинара (ингибитор DHODH) в обработанные лунки и такой же объем ДМСО в необработанные лунки. Запас брекхинара составляет 10 мМ, ресуспендированный в ДМСО. Поместите пластину обратно в инкубатор для тканевых культур на 2 дня.
- Подсчет клеток для анализов пролиферации
- Для всех опытов пополняйте среду каждые 2 дня. Если среда приобретает желтый цвет, увеличьте частоту изменений среды. Дайте клеткам размножаться до 7 дней и прекратите эксперимент, если какая-либо из лунок начнет выглядеть заросшей. Колодцы считаются заросшими, когда слияние превышает 80%.
- Аспирируйте среду, промойте 1x PBS и покройте дно лунки 0,25% трипсином (500 мкл для 6-луночной чашки).
- Подождите 5 минут, пока ячейки не отойдут от блюда. Проверьте это под микроскопом.
- Погасить трипсин 1 мл полного DMEM, содержащего 10% FBS.
- Пипеткой вверх и вниз, чтобы разбить клеточные комки.
- Подготовьте прилавочные чашки Coulter, наполнив каждую из них 10 мл изотонного буфера (по одной чашке на лунку). Подсчитайте количество ячеек на счетчике ячеек и запишите данные. Если показания составляют клетки на миллилитр (клетки / мл), умножьте записанное значение на 1.5, чтобы получить общее количество клеток в лунке.
ПРИМЕЧАНИЕ: Других методов подсчета клеток, таких как гемоцитометр, будет достаточно, если в лаборатории нет счетчика Коултера.
2. Отслеживание стабильных изотопов 13C 4-аспартата и анализ LC-MS для измерения активности DHODH
- 13 См.Отслеживание стабильных изотопов С4-аспартата в адгезивных клетках
ПРИМЕЧАНИЕ: Активность DHODH можно непосредственно контролировать, измеряя включение 13 C 4-аспартата в 13C3-UMP. Бреконар используется в качестве контроля активности DHODH (рис. 3). Результирующие уровни 13C3-UMP являются мерой активности DHODH.- Засейте от 250 000 до 500 000 клеток в чашку с 6 лунками, чтобы на следующий день достичь слияния 75%.
- Приготовьте исходный раствор 250 мМ 13 С 4-аспартата и 10мМ 13С4-аспартатной среды (см. Таблицу 1).
- Замените среду в каждой лунке на среду, содержащую 10 мМ 13С 4-аспартата. Инкубируйте в течение соответствующего количества часов, чтобы достичь устойчивого состояния для маркировки интересующих клеток.
ПРИМЕЧАНИЕ: Устойчивое состояние определяется как временные рамки, в течение которых процент меченных метаболитов плато с течением времени14. Для клеток остеосаркомы 143B 13C 4-аспартат достигает устойчивого состояния через 8 часов. Лучше всего определить эти временные рамки до эксперимента, проведя эксперимент с интересующим стабильным изотопом.
- Выделение метаболитов из адгезивных клеток
- Прежде чем начать, подготовьте ведро сухого льда и приготовьте 80% MeOH для ВЭЖХ в воде класса ВЭЖХ. Охладите этот буфер в морозильной камере с температурой -80 °C на ночь или поместите его прямо на сухой лед.
- Вынимая по одной тарелке из инкубатора, аспирируйте среду из лунок и промываем 2 раза 1x PBS. Удалите все остатки PBS из скважин, прежде чем переходить к следующему шагу.
ПРИМЕЧАНИЕ: Обязательно наклоняйте тарелку во время аспирации и пипетку к стенке чашки, чтобы предотвратить разрушение прилипших клеток. - Поместите тарелку на сухой лед и сразу же добавьте 800 мкл 80% MeOH класса LCMS в 20% воды класса LCMS в каждую лунку.
- Инкубируйте пластину не менее 15 минут в морозильной камере с температурой -80 °C, чтобы облегчить лизис клеток.
ПРИМЕЧАНИЕ: На этом этапе следующую пластину можно вынуть из инкубатора и повторить шаги 2.2.1-2.2.4. Продолжайте это до тех пор, пока все тарелки не будут инкубироваться в морозильной камере с температурой -80 °C. - Вынимая по одной тарелке из морозильной камеры, соскребите каждую лунку на сухом льду с помощью подъемника клеток и перенесите лизат в микроцентрифужную пробирку объемом 1,5 мл. Держите тюбик на сухом льду до следующего шага.
- Вихрите все пробирки в течение 10 мин при 4 °C, а затем центрифугу при 4 °C в течение 10 мин при максимальной скорости (не менее 17 000 × g).
- Перенесите надосадочную жидкость в микроцентрифужную пробирку объемом 1,5 мл и высушите в вакуумном концентраторе с температурой 4 °C, оснащенном холодной ловушкой с температурой -105 °C, в режиме высокого вакуума в течение примерно 6 часов или до тех пор, пока образцы не испарятся. После высыхания лизата храните гранулы метаболита при -80 ° C до тех пор, пока они не будут готовы подготовить их к жидкостной хроматографии в сочетании с масс-спектрометрией (LCMS).
- Жидкостная хромато-масс-спектрометрия (LC-MS) измерение полярных метаболитов
ПРИМЕЧАНИЕ: Любого хроматографического и масс-спектрометрического процесса, который позволяет обнаруживать аспартат, промежуточные продукты в биосинтезе пиримидина de novo и UMP, будет достаточно14.- Подготовьте образцы для LCMS на льду, добавив 100 мкл воды класса ВЭЖХ к высушенным гранулам и встряхивайте в течение 10 минут при 4 ° C.
- Центрифугируют образцы при 4 °C в течение 10 мин при максимальной скорости (не менее 17 000 × г) и перемещают 25 мкл в каждый флакон с ЖХ-МС.
- Введите 2 мкл лизата в систему LC-MS. Ниже приводится наиболее часто используемая методология:
- Приготовьте подвижную фазу А , состоящую из 20 мМ карбоната аммония (марки ЖК-МС) и 0,1% гидроксида аммония (марки ЖХ-МС), растворенной в воде марки ЖХ-МС.
- Выберите 100% ацетонитрил (класс LC-MS) в качестве подвижной фазы B.
- Для хроматографии выберите аналитическую колонку размером 5 мкм, размером 150 мм x 2,1 мм, оснащенную защитной колонкой размером 2,1 мм x 20 мм для гидрофильных соединений (см. Таблицу материалов). Установите духовку на 25 °C.
- Используйте следующие настройки жидкостной хроматографии: постоянный расход 0,15 мл/мин; линейный градиент от 80% до 20% подвижной фазы B в течение 20 мин, затем линейный градиент от 20% до 80% подвижной фазы B в течение 0,5 мин, а затем удержание на 80% подвижной фазы B в течение 7,5 мин.
- Выберите следующие настройки масс-спектрометра: полное сканирование в диапазоне от m/z 70 Да до 1 000 Да; резолюция 70 000; целевой показатель СМЖЛ 1 × 10⁶; и максимальное время впрыска 20 мс. Работайте с источником в режиме переключения полярности. Установите напряжение распыления на 3,0 кВ, нагретый капилляр на 275 °C, зонд HESI на 350 °C, расход газа в оболочке на 40 единиц, расход вспомогательного газа на 15 единиц и поток газа на 1 единицу.
- Выполняйте анализ данных с помощью любого программного обеспечения, которое взаимодействует с рабочим процессом LCMS.
ПРИМЕЧАНИЕ: Программное обеспечение, используемое в вышеуказанном рабочем процессе, - это XCalibur (Thermo) и TraceFinder (Thermo). Основные соображения по анализу данных изложены ниже:- Ожидаемое время хранения: Определите время удержания каждого метаболита, выполнив стандарты для каждого интересующего метаболита с использованием хроматографического метода до начала эксперимента.
ПРИМЕЧАНИЕ: Время удержания UMP и его изотопологов, включая 13C 3-UMP, точно такое же. - Ожидаемый M/Z для метаболитов: Если метаболит ионизируется в режиме отрицательных ионов (например, UMP), рассчитайте ожидаемую точную массу, используя молекулярную формулу UMP минус протон [C 9 H14N2O9P]. Для метаболитов, которые ионизируются в режиме положительных ионов, рассчитайте точную массу, используя молекулярную формулу плюс протон.
- Массовая точность: Ожидается, что при использовании масс-спектрометра orbitrap интересующий метаболит и его изотопологи будут иметь массовую точность ±5 мМе. Используйте программное обеспечение для расчета этого, учитывая ожидаемый M/Z и фактически обнаруженный M/Z.
- Коррекция естественного изобилия: Ожидается, что все данные отслеживания будут подвергнуты коррекции естественной численности, чтобы учесть ~ 1% 13C и ~ 0,5% 15 N-изотопов в природе 15.
- Ожидаемое время хранения: Определите время удержания каждого метаболита, выполнив стандарты для каждого интересующего метаболита с использованием хроматографического метода до начала эксперимента.
3. Отслеживание стабильных изотопов 13C 5-глутамина для измерения активности SDH
- 13 См.Отслеживание стабильных изотопов C5-глутамина в адгезивных клетках
ПРИМЕЧАНИЕ: Активность SDH можно непосредственно контролировать, измеряя взаимное превращение определенных изотопологов фумарата и сукцината при отслеживании 13 C 5-глутамина 7,16,17. Ингибитор комплекса III антимицин используется в качестве контроля для изменения чистой направленности комплекса SDH (рис. 4).- Засейте от 250 000 до 500 000 клеток в чашку с 6 лунками, чтобы на следующий день достичь слияния 75%.
- Приготовьте запас из 50 мМ 13С 5-глютамина (см. Таблицу 1).
- Приготовьте калькульирующую среду, содержащую 2 мМ 13С 5-глютамина (см. таблицу 1).
- Измените среду в каждой лунке на среду, содержащую 2 мМ 13С 5-глютамина. Инкубируйте в течение соответствующего количества часов для достижения устойчивого состояния маркировки интересующих клеток (см. примечание на шаге 2.1.3).
- Изолируйте метаболиты в соответствии с протоколом, приведенным на шаге 2.2.
- Проанализируйте образцы на LC-MS в соответствии с рабочим процессом, описанным в шаге 2.3.
- Анализ активности SDH на основе паттернов маркировки
ПРИМЕЧАНИЕ: Сукцинатную окислительную активность комплекса SDH можно контролировать, оценивая соотношение 13 C 4-фумарата к13 C 4-сукцинату при отслеживании 13C 5-глутамина. Активность восстановления фумарата комплекса SDH можно контролировать, оценивая соотношение 13 C 3-сукцината к 13 C3-фумарату при отслеживании 13C 5-глутамина.- Рассчитайте процентную маркировку 13 С 3-фумарата, 13 С 4-фумарата, 13 С3-сукцината и 13 С4-сукцината. Например, чтобы определить процентное содержание 13 C 3-фумарата, суммируйте все интегрированные пиковые площади для изотопологов фумарата (немеченый фумарат, 13 C 1-фумарат, 13 C2-фумарат, 13 C 3-фумарат и 13 C4-фумарат) и разделите площадь пика для 13C 3-фумарата на общую площадь изотополога. Умножьте на 100.
- Чтобы рассчитать окисление сукцината, разделите процентное содержание 13С 4-фумарата на процентное содержание 13С4-сукцината.
- Чтобы рассчитать снижение фумарата, разделите процентное содержание 13 С 3-сукцината на процентное содержание 13С 3-фумарата.
4. Прямой комплексный анализ активности I
ПРИМЕЧАНИЕ: DCPIP является искусственным акцептором электронов; Он переходит в восстановленную форму при приеме электронов из убихинола. В этом анализе убихинон восстанавливается до убихинола посредством комплексного I-опосредованного окисления НАДН до НАД+. Таким образом, измерение оборота окисленного DCPIP в этом бесклеточном анализе является прокси для активности комплексаI 7,18.
- Очистка и количественное определение митохондрий из клеток
ПРИМЕЧАНИЕ: Для этого анализа19 можно использовать любой протокол очистки митохондрий.- Расширяйте ячейки до тех пор, пока не получится 25-100 миллионов клеток. Отдохните средство от посуды, вымойте 1x PBS, аспирируйте PBS и попробуйте выпить клетки 0,25% трипсина. Погасить трипсин питательной средой и гранулировать клетки в дозе 1000 × г в течение 5 мин.
- Промойте гранулы клеток 2x в 5 мл 1x PBS и повторите центрифугирование при 1,000 × г в течение 5 минут, чтобы гранулировать клетки. Храните промытые гранулы в морозильной камере с температурой -20 °C до очистки митохондрий.
ПРИМЕЧАНИЕ: Не замораживайте-размораживайте гранулы ячейки более одного раза. - Подготовьте буфер для изоляции митохондрий (см. Таблицу 1).
ПРИМЕЧАНИЕ: Натрийсодержащие реагенты, такие как NaOH, не следует использовать для приготовления буферов для изоляции митохондрий, так как натрий тускнеет потенциал митохондриальной мембраны20 и нарушает гомеостаз митохондриального кальция21. - Ресуспендируют клеточные гранулы до 10 миллионов клеток на 1 мл буфера изоляции митохондрий. Например, ресуспендировать 100 миллионов гранулированных клеток в 10 мл изоляционного буфера митохондрий.
ПРИМЕЧАНИЕ: Убедитесь, что вы разрушили клеточные скопления, не вводя пузырьки в буфер. - Переместите 2 мл клеточной суспензии в предварительно охлажденный стеклянный гомогенизатор с рабочим объемом 3-8 мл, совместимый с пестиком из ПТФЭ Potter-Elvehjem. Гомогенизируйте клетки с помощью 10-20 штрихов, наблюдая за клетками под микроскопом, чтобы подтвердить лизис клеток на протяжении всего процесса гомогенизации. При необходимости увеличьте количество ударов, чтобы обеспечить эффективный лизис клеток.
ПРИМЕЧАНИЕ: Если гомогенизация клеток с помощью вышеуказанного метода неэффективна для лизирования клеток, переключитесь на метод шприцевого лизиса22. - Перенесите 2 мл клеточного лизата в микроцентрифужную пробирку на льду и повторяйте вышеуказанные шаги до тех пор, пока вся клеточная суспензия не будет гомогенизирована.
- Гранулируйте ядра и клеточный мусор в дозе 650 × г в течение 10 мин в центрифуге с температурой 4 °C.
- Переместите надосадочную жидкость в новую пробирку объемом 2,0 мл и повторите вышеуказанное центрифугирование при 650 × г в течение 10 мин при 4 °C.
- Переместите надосадочную жидкость в новую пробирку объемом 2,0 мл и гранулируйте сырые митохондрии в дозе 7000 × г в течение 10 мин в центрифуге с температурой 4 ° C.
- Выбросьте надосадочную жидкость и ресуспендируйте гранулу в 1 мл изоляционного буфера митохондрий. Переместите 50 мкл в новую пробирку для количественного определения белка. Повторите описанный выше этап центрифугирования на двух аликвотах образца (образец 50 мкл и оставшийся ~ 950 мкл).
- Выбросьте надосадочную жидкость и храните гранулы в морозильной камере с температурой до 80 °C до готовности.
- Добавьте 200 мкл буфера RIPA к гранулам из аликвоты 50 мкл для извлечения белка, встряхните в течение 10 мин и центрифугу при 21 000 × г для выделения белка. Количественно определите количество белка в аликвоте 50 мкл и используйте это число для количественного определения оставшегося белка в образце 950 мкл. Например, если количественное определение белка для аликвоты 50 мкл составляет 1 мкг/мкл, общий белок в оставшейся митохондриальной грануле составляет 950 мкг (1 мкг/мкл × 950 мкл).
- Выполнение комплексного анализа активности I
ПРИМЕЧАНИЕ: Для этого анализа использовалась клеточная линия остеосаркомы 143B, но протокол может быть адаптирован для любых культивируемых клеток.- Ресуспендировать очищенные митохондрии в буфере ресуспензии митохондрий (см. Таблицу 1) до конечной концентрации 5 мг белка / мл.
- Выполните пять циклов замораживания/оттаивания в морозильной камере с температурой -20 °C, чтобы проникнуть в митохондрии.
- Сделайте сложный буфер анализа активности (см. Таблицу 1).
- Смешайте 50 мкг из запаса митохондрий 5 мг/мл с 90 мкл буфера активности комплекса I. Подготовьте пять необработанных репликатов и пять обработанных ротеноном (5 мкМ) реплик для контроля активности комплекса I.
- Считывание базового уровня поглощения на длине волны 600 нм в считывателе планшетов, настроенном на 37 °C.
- Инициируйте реакцию, добавляя НАДН до конечной концентрации 2 мМ, и отслеживайте поглощение (600 нм) в течение 1 ч, измеряя, по крайней мере, каждые 2 минуты на протяжении всего времени. Снижение поглощения свидетельствует о снижении DCPIP за счет активности комплекса I.
ПРИМЕЧАНИЕ: НАДН следует добавлять с помощью многоканальной пипетки, чтобы гарантировать, что все образцы инициируются одновременно.
5. Анализ на основе LC-MS для измерения уровней супероксида
ПРИМЕЧАНИЕ: Флуоресцентные свойства MitoSox Red могут изменяться независимо от его реакции с супероксидом23. Этот анализ на основе LC-MS напрямую измеряет продукт из супероксида, реагирующего с MitoSox Red. Следующий анализ немного изменен по сравнению с Xiao et al.24. 2-гидроксимитоэтидий (2-OH MitoE2+) является продуктом супероксидной реакции (рис. 5). Для этого анализа использовалась клеточная линия Caki1, но протокол может быть адаптирован для любых культивируемых клеток.
- Лечение адгезивных клеток препаратом MitoSox Red
- Засейте от 250 000 до 500 000 клеток в чашку с 6 лунками, чтобы на следующий день достичь слияния 75%. Обязательно засейте набор планшетов для анализа LC-MS и дублирующий набор планшетов для нормализации количества клеток.
- Приготовьте полный DMEM, содержащий 10% инактивированного теплом FBS и 1% пенициллина-стрептомицина в модифицированной среде Eagle Дульбекко.
- Освежите среду во всех лунках для всех условий с помощью 2 мл полного DMEM. Обязательно добавьте любые лекарства или методы лечения, представляющие интерес на этом этапе.
- Инкубируют клетки в инкубаторе для тканевых культур в течение 1 ч.
- Подготовьте положительные и отрицательные элементы управления. Приготовьте 50 мМ запаса трет-бутилгидропероксида, разбавленного в PBS, и 250 мМ запаса N-ацетилцистеина (NAC), разбавленного в ДМСО (см. Таблицу 1).
ПРИМЕЧАНИЕ: Третбутилгидропероксид (tBuOOH) является мощным активным кислородом, который будет действовать как положительный контроль и увеличивает количество 2-OH MitoE2+. NAC является мощным антиоксидантом, который будет действовать как отрицательный контроль и нейтрализовать выработку супероксида, вызванную tBuOOH. - Добавьте 1 мкл tBuOOH в положительные контрольные лунки и 1 мкл tBuOOH + 100 мкл NAC в отрицательные контрольные лунки.
ПРИМЕЧАНИЕ: Использование пипетки P2 (диапазон 0,1-2 мкл) является оптимальным способом переноса 1 мкл. - Инкубировать в течение 1 ч в инкубаторе для тканевых культур.
- Приготовьте 1 мМ сырья MitoSox Red (см. Таблицу 1) и добавьте 2 мкл 1 мМ MitoSox Red в каждую лунку для достижения конечной концентрации 1 мкМ. Инкубируйте в течение 30 мин в инкубаторе для тканевых культур.
- Во время этой окончательной инкубации подсчитайте одну из дубликатов планшетов, чтобы получить количество клеток для нормализации окончательных данных LC-MS.
- Выделение окисленного продукта Mitosox Red из адгезивных клеток
- Возьмите ведро сухого льда и поместите прохладный изопропанол класса ВЭЖХ на сухой лед перед началом изоляции.
- Вынимая по одной пластине за раз, аспирируйте среду из лунок и промываем 2 раза 1 мл 1x PBS. Аспирируйте все остатки PBS из скважин, прежде чем переходить к следующему шагу.
ПРИМЕЧАНИЕ: Обязательно наклоняйте тарелку во время аспирации и пипетку к стенке чашки, чтобы предотвратить разрушение прилипших клеток. - Поместите тарелку на сухой лед и добавьте 800 мкл изопропанола класса ВЭЖХ в каждую лунку.
- Инкубируйте пластину не менее 15 минут в морозильной камере с температурой -80 °C, чтобы облегчить лизис клеток.
ПРИМЕЧАНИЕ: На этом этапе следующую пластину можно вынуть из инкубатора и повторить шаги 5.2.1-5.2.4. Продолжайте это до тех пор, пока все тарелки не будут инкубироваться в морозильной камере с температурой -80 °C. - Вынимая по одной тарелке из морозильной камеры, соскребите каждую лунку на сухом льду с помощью подъемника клеток и перенесите лизат в микроцентрифужную пробирку объемом 1,5 мл. Держите тюбик на сухом льду до следующего шага.
- Вихрите все пробирки в течение 10 мин при 4 °C, а затем центрифугу при 4 °C в течение 10 мин при максимальной скорости (не менее 17 000 × g).
- Перенесите надосадочную жидкость в микроцентрифужную пробирку объемом 1,5 мл и высушите в вакуумном концентраторе. После высыхания лизата храните гранулы метаболита при температуре -80 ° C до готовности к LC-MS.
- LC-MS измерение MitoSox Red и 2-гидроксимитоэтидия (2-OH MitoE2+)
- Подготовьте образцы для LCMS на льду, добавив 100 мкл смеси MeOH:хлороформ:вода для ВЭЖХ 3:3:1. Вихревая в течение 10 мин при 4 °C.
- Переместите 25 мкл в каждый флакон LC-MS. Храните оставшийся образец в морозильной камере при температуре −80 °C.
- Приготовьте следующие буферы для жидкостной хроматографии: i) буфер А: вода класса ВЭЖХ с 0,1% муравьиной кислоты; ii) буфер B: ацетонитрил класса ВЭЖХ с 0,1% муравьиной кислоты.
- Откройте приложение Thermo XCalibur Instrument Setup, чтобы начать разработку метода.
- Найдите два поля на левой боковой панели этого окна: первое поле позволяет разрабатывать метод хроматографии, а второе поле позволяет разрабатывать метод масс-спектрометрии.
- Разработка метода жидкостной хроматографии:
- Установите расход 0,25 мл/мин и начните метод с 20% B, увеличивая до 95% B в течение 12 минут. В течение следующей минуты уменьшите буфер B до 20% B и поддерживайте этот уровень в течение следующих 2 минут.
ПРИМЕЧАНИЕ: Последние 2 минуты расхода при 20% B имеют решающее значение для того, чтобы давление в колонне упало до начального давления и уравновесило колонну с соответствующими буферными соотношениями. Если не включить этот шаг балансировки, время хранения сместится для всех последующих выборок.
- Установите расход 0,25 мл/мин и начните метод с 20% B, увеличивая до 95% B в течение 12 минут. В течение следующей минуты уменьшите буфер B до 20% B и поддерживайте этот уровень в течение следующих 2 минут.
- Создайте файл мелодии со следующими параметрами:
- Откройте приложение Tune и создайте новый файл мелодии.
- Примените к этому файлу настройки все перекрывающиеся настройки из модуля Method Setup (см. этап 5.3.9.3), включая диапазон сканирования, разрешение, полярность, целевой объект AGC и максимальное значение IT.
- Установите газ оболочки на 30, вспомогательный газ на 3 и газ развертки на 3. Установите напряжение распыления на 3 кВ, температуру капилляра на 300, а уровень RF объектива S-lens на 60.
- Разработка метода масс-спектрометрии:
- Из нижнего левого списка потенциальных сканирований перетащите Full MS в центр окна. Обязательно нажмите на квадрат Full MS после падения, чтобы настроить параметры. Общая продолжительность метода МС составляет 13 мин.
ПРИМЕЧАНИЕ: Метод LC длиннее, чем метод MS, потому что последние 2 минуты предназначены для восстановления колонки, а не для количественного определения метаболитов. - В правой части модуля в разделе " Свойства метода" убедитесь, что для параметров "Продолжительность метода " и " Время выполнения " задано значение 13,00 мин.
- Запустите это полное сканирование в положительном режиме с разрешением 70 000 и целевым значением AGC 1 × 10⁶. Установите для параметра Максимальный ИТ значение 100 мс, а для параметра Диапазон сканирования — от 300 м/з до 700 м/з.
- В разделе " Файлы настройки" в верхней части модуля обратите внимание, что только что созданный файл мелодии связан с этим методом.
- Из нижнего левого списка потенциальных сканирований перетащите Full MS в центр окна. Обязательно нажмите на квадрат Full MS после падения, чтобы настроить параметры. Общая продолжительность метода МС составляет 13 мин.
- Запустите метод обнаружения MitoSox Red с инъекциями образца 2 мкл.
Результаты
Активность DHODH, комплекса I и комплекса V может быть оценена с помощью анализов пролиферации. При удалении уридина из питательной среды клетки становятся более зависимыми от пути de novo для биосинтеза пиримидина. Таким образом, когда клеткам было предложено размножаться в среде, свободной от уридина, они были более чувствительны к ингибированию активности DHODH брекхинаром, чем клетки, культивируемые в среде, содержащей уридин (рис. 6A). Точно так же лишение пирувата из питательной среды делает клетки более зависимыми от активности комплекса I для пролиферации. Таким образом, когда клеткам было предложено размножаться в среде, свободной от пирувата, они были более чувствительны к ингибированию активности комплекса I ротеноном, чем клетки, культивируемые в среде, содержащей пируват (рис. 6B). Активность комплекса V можно оценить, заставляя клетки размножаться в среде, содержащей галактозу вместо глюкозы. Поскольку галактоза дает чистый нулевой АТФ при гликолизе, клетки, растущие в этом топливе, в большей степени зависят от синтеза митохондриальной АТФ за счет активности комплекса V. Таким образом, клетки, пролиферирующие в среде, содержащей галактозу, были более чувствительны к ингибированию комплекса V олигомицином, чем клетки, пролиферирующие в глюкозосодержащей среде (рис. 6C).
Активность SDH может быть измерена с помощью отслеживания 13C 5-глутамина и мониторинга его включения в изотопологи фумарата и сукцината. В условиях, обработанных носителем, комплекс SDH благоприятствовал прямой активности, и включение13 C 4-сукцината в 13 C 4-фумарат было выше, чем включение 13 C 3-фумарата в 13C 3-сукцинат (рис. 7). В условиях, обработанных антимицином, комплекс SDH способствовал обратной активности, и включение 13 C 3-фумарата в 13 C3-сукцинат было больше, чем включение 13 C 4-сукцината в 13C 4-фумарат (рис. 7).
Образование супероксида внутри митохондрий можно измерить с помощью флуоресцентного репортера MitoSox, который генерирует 2-гидроксимитоэтидий при реакции с супероксидом. В этом исследовании клетки, обработанные MitoSox в присутствии третбутилпероксида водорода, имели более высокие уровни 2-гидроксимитоэтидия таким образом, который подавлялся добавлением NAC, антиоксиданта, который гасит клеточные АФК (рис. 8).
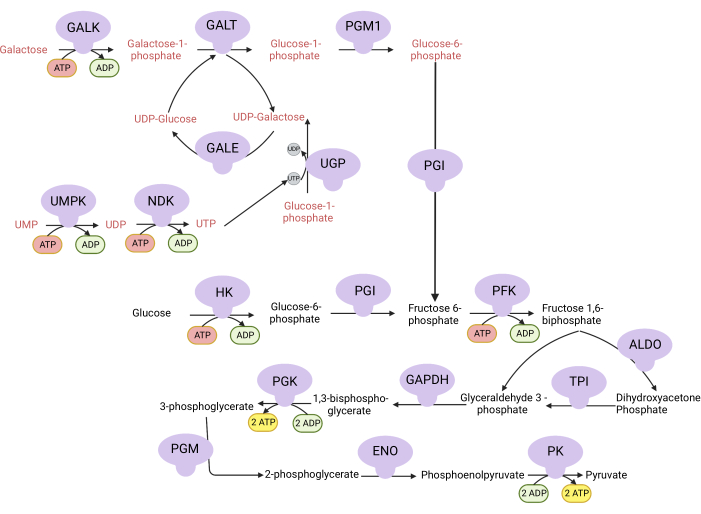
Рисунок 1: Механистическая основа комплексного анализа V-образной пролиферации. Окисление глюкозы и галактозы путем гликолиза. Глюкоза дает чистые два АТФ в результате гликолиза, тогда как галактоза дает чистый ноль АТФ, потому что для UDP-галактозы требуется синтез UTP. Таким образом, клетки, выращенные в галактозе, более зависимы от синтеза митохондриального АТФ из-за недостатка АТФ, образующегося при гликолизе. Сокращения: GALK = галактокиназа; GALT = галактоза-1-фосфат уридилилтрансфераза; PGM1 = фосфоглюкомутаза 1; GPI = глюкозо-6-фосфатизомераза, UGP = UDP-глюкозопирофосфорилаза; GALE = UDP-галактоза-4-эпимераза; NDK = нуклеотиддифосфаткиназа; UMPK = уридинмонофосфаткиназа; HK = гексокиназа; ПФК = фосфофруктокиназа; ALDO = альдолаза; TPI = триозофосфатизомераза; GAPDH = глицеральдегид-3-фосфатдегидрогеназа; PGK = фосфоглицераткиназа; МПГ = фосфоглюкомутаза; ENO = енолаза; PK = пируваткиназа. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.

Рисунок 2: Механистическая основа комплексного анализа пролиферации I. Схема метаболических путей, которые изменяются при ингибировании активности комплекса I. В средах с высоким содержанием пирувата ингибирование комплекса I обходится путем окисления НАДН, опосредованного ЛДГ. В средах с низким содержанием пирувата эта адаптация менее осуществима, что делает клетки более зависимыми от активности комплекса I для повторного окисления НАДН. Сокращения: ЛДГ = лактатдегидрогеназа; Цикл ТСА = цикл трикарбоновых кислот. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
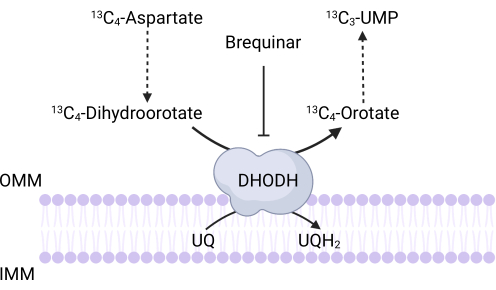
Рисунок 3: Схема реакции DHODH при трассировке 13C 4-аспартата. Бреконар ингибирует окисление дигидрооротата до оротата, тем самым предотвращая последующий синтез UMP. 13 См.С4-аспартат включается в 13С3-УМЗ посредством активности DHODH. Сокращения: OMM = наружная митохондриальная мембрана; IMM = внутренняя митохондриальная мембрана; DHODH = дигидрооротатдегидрогеназа. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.

Рисунок 4: Измерение прямой и обратной активности комплекса II с помощью трассировки 13C 5-глютамина. Для измерения прямой активности комплекса II (слева) контролируется включение 13 С 5-глутамина в 13 С 4-сукцинат и 13С 4-фумарат. Для измерения активности обратного комплекса II (справа) контролируется включение 13 С 5-глутамина в 13 С 3-сукцинат и 13С 3-фумарат. Сокращения: SDH = сукцинатдегидрогеназа; CytC = цитохром С. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
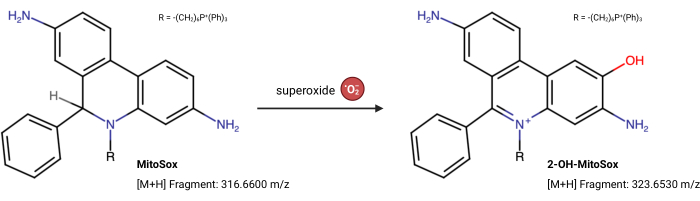
Рисунок 5: Реакция MitoSox Red с супероксидом. Реакция MitoSox с митохондриальными супероксидами с образованием 2-OH-MitoE2+. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.

Рисунок 6: Анализы на основе пролиферации для измерения функции митохондрий (A) Пролиферация клеток остеосаркомы 143B, обработанных 5 мкМ брекенаром, ингибитором DHODH, в среде с ±100 мкг / мл уридина. Данные являются средними ± SEM; N = 3 на условие. (B) Пролиферация клеток остеосаркомы 143B, обработанных 2 мкМ ротеноном, ингибитором комплекса I, в среде с пируватом ±5 мМ. Данные являются средними ± SEM; N = 3 на условие. (C) Пролиферация клеток остеосаркомы 143B, обработанных 5 мкМ олигомицином, комплексным ингибитором V, в среде с 10 мМ глюкозы или 10 мМ галактозы в качестве единственного центрального источника углерода. Данные являются средними ± SEM; N = 3 на условие. * указывает p < 0,05 с использованием одностороннего теста ANOVA в Graphpad Prism. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
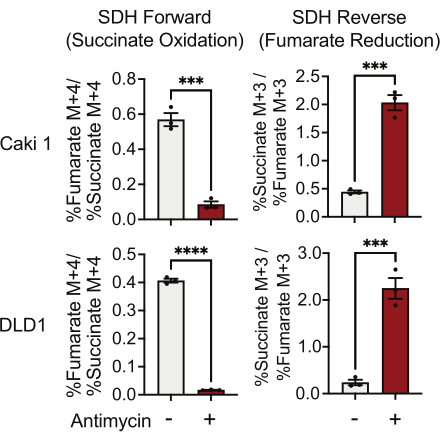
Рисунок 7: Отслеживание 13C 5-глутамина для измерения активности комплекса II. Сукцинатное окисление и восстановление фумарата (обратный SDH) в клетках Caki1 и DLD1, обработанных ДМСО и антимицином А 500 нМ. Данные представляют собой среднее значение ± SEM; N = 3 на условие. указывает p < 0,05 с использованием непарного t-критерия в GraphPad Prism. Сокращения: SDH = сукцинатное окисление; SDH реверс = восстановление фумарата. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
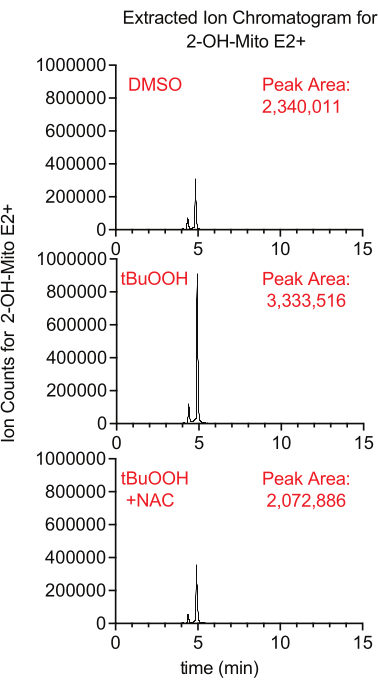
Рисунок 8: Анализ MitoSox на основе LCMS для обнаружения супероксида. Экстрагированная ионная хроматограмма 2-OH-Mito E2+, выделенная из клеток Caki1, обработанных MitoSox в течение 30 мин в присутствии tBuOOH ± NAC. Сокращения: LCMS = жидкостная хромато-масс-спектрометрия; NAC = N-ацетилцистеин. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Таблица 1: Состав реагентов, буферов и сред, используемых в этом протоколе. Пожалуйста, нажмите здесь, чтобы загрузить эту таблицу.
Обсуждение
Поскольку новые исследования показывают, что митохондрии млекопитающих могут функционировать без потребления молекулярного кислорода, для исследователей крайне важно использовать ортогональные анализы, помимо измерений OCR, для точной количественной оценки функции митохондрий. Здесь мы составили серию анализов, которые можно использовать для непосредственной оценки активности комплекса I, комплекса II, комплекса V и DHODH путем измерения митохондриального баланса NAD + / NADH, использования адаптивных концевых акцепторов электронов, производства АТФ, биосинтеза de novo пиримидина и митохондриального АФК. Примечательно, что эти анализы более непосредственно измеряют функцию митохондрий, чем измерения OCR. Кроме того, эти анализы предоставляют исследователям удобные способы количественной оценки функции митохондрий во время гипоксии, для которых измерения OCR в значительной степени не имеют значения из-за того, что фумарат используется в качестве предпочтительного концевого акцептора электронов. Наконец, описанные здесь методы, основанные на пролиферации, более рентабельны, чем классические эксперименты по респирометрии, что обеспечивает широко доступный способ изучения функции митохондрий в системах млекопитающих.
Существуют ключевые соображения при использовании этих анализов для измерения функции митохондрий в культивируемых клетках. Что касается анализов пролиферации, важно скорректировать количество посеянных клеток с учетом скорости удвоения каждой клеточной линии. Клетки должны быть засеяны по крайней мере до 10% слияния и с достаточным пространством, чтобы обеспечить от трех до четырех удвоений, чтобы можно было количественно оценить различия в пролиферации. Еще одним соображением для каждого анализа является концентрация малых молекул, используемых в качестве контроля активности каждого комплекса внеземных цивилизаций. Поскольку разные клеточные линии могут проявлять разную чувствительность к этим ингибиторам, крайне важно проверить дозу этих малых молекул, чтобы определить оптимальную концентрацию.
Универсальным ограничением анализов, изучающих функцию митохондрий in vitro, включая измерения OCR и все описанные здесь анализы, является метаболический состав питательной среды. Стандартная среда для культивирования клеток имеет тенденцию смещать системы к поверхностно высоким уровням функции митохондрий. Например, супрафизиологические уровни глутамина увеличивают его анаплерозцикла TCA 25, который подпитывает синтез митохондриального НАДН и, следовательно, увеличивает окислительное фосфорилирование. Точно так же парциальное давление кислорода колеблется от 3 мм рт.ст. до 100 мм рт.ст. (приблизительно 0,1%-13% O2) в тканях млекопитающих, но является атмосферным (140 мм рт.ст., приблизительно 21%) in vitro26,27. Этот избытокO2 максимизирует дыхательную способность митохондрий и выработку супероксида28. В последнее время были предприняты усилия по разработке культуральных сред, чтобы они были более физиологичными29,30. Примечательно, что культивирование клеток в плазмоподобных средах человека снижает митохондриальное дыхание в некоторых линияхраковых клеток 30, митохондриальные АФК в Т-клетках31 и митохондриальную адаптацию к терапии рака32. Таким образом, очень важно помнить о составе используемых питательных сред и понимать, как это может повлиять на функцию митохондрий.
Другим важным и универсальным ограничением в интерпретации функции митохондрий является возможность различий в количестве митохондрий. Поэтому крайне важно измерять содержание митохондрий либо путем количественного определения мтДНК33, либо измерения массы митохондрий с помощью нечувствительных к потенциалу мембранных красителей34, либо вестерн-блоттинга митохондриальных маркеров. Это критический контроль, чтобы уменьшение количества митохондрий не было ошибочно принято за снижение функции митохондрий.
Существуют также определенные ограничения и устранение неполадок, которые применяются к описанным здесь анализам. Во-первых, учитывая, что дифференцированные клетки не размножаются, анализы, основанные на пролиферации, не будут полезны для оценки функции митохондрий в этом контексте. Ключевым ограничением протокола отслеживания 13C 4-аспартата для измерения активности DHODH является то, что поглощение аспартата в клетках может быть крайне неэффективным35. Чтобы преодолеть это потенциальное ограничение, исследователи могут сверхэкспрессировать транспортер аспартата, SLC1A3, чтобы облегчить поглощение 13C 4-аспартата35.
Ограничением протокола, использующего отслеживание 13C 5-глутамина для измерения активности SDH, является то, что этот анализ требует, чтобы клетки использовали восстановительный путь карбоксилирования для обогащения изотопологов M + 3 для измерения обратной активности. Некоторые клеточные линии не способны к восстановительному потоку карбоксилирования из-за низкой экспрессии цитратлиазыАТФ 36, недостаточной стабилизации HIF37 или слишком низкого соотношения α-кг к цитрату38. Чтобы преодолеть это ограничение, можно использовать трассировку 13C 4-аспартата для измерения прямой и обратной активности SDH7. В этом анализе прямую активность SDH можно измерить по соотношению фумарата M + 2: сукцинат M + 2, а обратную реакцию сукцината M + 4: фумарат M + 4. Примечательно, что это отслеживание обходит большинство ферментов в пути восстановительного карбоксилирования.
Ограничением анализа активности комплекса I с использованием сокращения DCPIP в качестве считывания является то, что митохондрии не являются структурно неповрежденными. Процесс замораживания-оттаивания митохондрий для обеспечения их поглощения НАДН для анализа, безусловно, может запятнать структурную целостность митохондриальной мембраны39. Этот анализ следует проводить параллельно с такими анализами, как анализ пролиферации комплекса I, чтобы убедиться, что наблюдаемые изменения активности комплекса I также верны для интактных клеток.
В будущих исследованиях некоторые из этих методов могут быть адаптированы для измерения митохондриальных функций in vivo с использованием модельных организмов, таких как мыши и Caenorhabditis elegans. Современные методы, используемые для измерения функции митохондрий in vivo, сосредоточены на OCR на уровне организма, в частности, на скорости дыхательного обмена при использовании мышиных моделей. Явным ограничением этого метода является то, что кислород выполняет множество биохимических и сигнальных функций, помимо своей роли вездесущего концевого акцептора электронов в митохондриальных ETC. Например, кислород «потребляется» каталитической активностью ферментов семейства диоксигеназ. Хотя эти ферменты вносят свой вклад в скорость потребления кислорода клетками, они не участвуют, не регулируют и не отражают функцию митохондрий. Классические эксперименты по респирометрии in vitro обычно контролируют «немитохондриальное OCR», тогда как эксперименты с коэффициентом дыхательного обмена организма (RER) не могут контролировать это, ограничивая интерпретацию RER как метрики митохондриальной функции in vivo. Тем не менее, можно адаптировать протоколы для измерения активности DHODH с помощью отслеживания 13 C 4-аспартата, активности комплекса II с помощью отслеживания 13C5-глутамина, активности комплекса I в митохондриях, очищенных от тканей, и митохондриальных АФК с использованием дружественных к LC-MS соединений, таких как MitoB, для измерения функции митохондрий in vivo . Эти прямые анализы для опроса митохондриальных функций в сочетании с классическими экспериментами по респирометрии предоставляют исследователям более полную и точную оценку функции митохондрий в клетках и тканях млекопитающих.
Раскрытие информации
У авторов нет конфликтов интересов, о которых можно было бы сообщить.
Благодарности
Фигуры, представленные в этой рукописи, были созданы с помощью BioRender.com. Мы благодарны Эми Уокер за отзыв об этой статье. J.B.S. был поддержан грантом Вустерского фонда биомедицинских исследований.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 1,5 мл тубы | Cell Treat | 667443 | |
| 2,0 мл трубки | Cell Treat | 229446 | |
| 6-луночный планшет | Cell Treat | 229106 | |
| 12-луночный планшет | Cell Treat | 229112 | |
| 13C4-аспартат | Sigma-Aldrich | 604852 | |
| 13C5-глутамин | Кембриджские изотопные лаборатории | 285978-14-5 | |
| 15 мл центрифужная пробирка | Cell Treat | 667411 | |
| 50 мл центрифужная пробирка | Cell Treat | 667421 | |
| 150 мм чашка для культуры тканей | Cell Treat | 229651 | |
| 1x Фосфатно-солевой буфер | Gibco | 10010049 | |
| 2,6- дихлорфенолиндофенол | Honeywell | 33125 | |
| Карбонат аммония | Sigma-Aldrich | 37999 | |
| Антимицин | Sigma-Aldrich | A8674 | |
| Ascentis Express C18 | Sigma-Aldrich | 53825-U | |
| Фильтр для бутылки 500 мл, 0.22 &; m, PES 9 Диаметр мембраны 9 мм | Клеточный Обработитель | 229717 | |
| Бычья сыворотка Альбумин | Sigma-Aldrich | A3294 | |
| Брекинор | Sigma-Aldrich | SML0113 | |
| Клеточный подъемник, Двустороннее плоское и узкое лезвие | Клеточное лечение | 229305 | |
| CentriVap -105 Холодная ловушка | Labconco | 7385020 | |
| полный ингибитор протеазы Таблетки | Сигма-Олдрич | ||
| Контрчашки Coulter | Fisher Scientific | 07-000-694 | |
| Децилубихинон | Sigma-Aldrich | D7911 | |
| DMSO | Invitrogen | D12345 | |
| Dulbecco' s Модифицированная среда Eagle (DMEM) | Gibco | 11995-065 | |
| EDTA | Sigma-Aldrich | E6758 | |
| EGTA | Sigma-Aldrich | E3889 | |
| Центрифуга Eppendorf 5425R | Eppendorf | 2231000908 | |
| Центрифуга Eppendorf 5910 Ri | Eppendorf | 5943000343 | |
| Galactose | Sigma-Aldrich | G5388 | |
| Глюкоза | Sigma-Aldrich | G7021 | |
| Глюкоза безглюкозная DMEM | Gibco | 11966025 | |
| Безглютаминовая DMEM | Thermo Fisher | 11960044 | |
| термоинактивированная фетальная сыворотка крупного рогатого скота | Sigma-Aldrich | F4135 | |
| Hepes | Sigma-Aldrich | H3375 | |
| ВЭЖХ 35% гидроксид | аммонияThermo Scientific | 460801000 | |
| Ацетонитрил класса ВЭЖХ | Sigma-Aldrich | 900667 | |
| Хлороформ класса ВЭЖХ | Sigma-Aldrich | 366927 | |
| муравьиной кислотой класса ВЭЖХ | Thermo Scientific | 28905 | |
| Изопропанол класса ВЭЖХ | Sigma-Aldrich | 563935 | |
| Уровень ВЭЖХ MeOH | Sigma-Aldrich | ||
| Вода для ВЭЖХ | Sigma-Aldrich | 270733 | |
| Клеточная линия человеческого остеосаркома 143B | ATCC | CRL-8303 | |
| Соляная кислота | Sigma-Aldrich | 320331-500ML | |
| Изотоновый буфер | Beckman Coulter | 8546719 | |
| K2HPO4 | Sigma-Aldrich | P2222 | |
| Mannitol | Sigma-Aldrich | M4125 | |
| MitoSox Red | Invitrogen | M36008 | |
| N-ацетил-L-цистеин | Sigma-Aldrich | A9165 | |
| Олигомицин | Sigma-Aldrich | 75351-5MG | |
| Pencillin Streptomycin | Gibco | 15140-122 | |
| Potter-Elvehjem Измельчитель тканей, размер 21 | Kimble | 885502-0021 | |
| Пируват | Sigma-Aldrich | P5280 | |
| Пируват DMEM media | Gibco | 11965175 | |
| Q Exactive Plus Масс-спектрометр | Thermo Scientific | 726030 | |
| ReCO2ver инкубатор | Baker | ||
| Рефрижераторный Centrivap Настольный вакуумный концентратор | Labconco | 7310020 | |
| RIPA Buffer | Millipore Sigma | 20188 | |
| Rotenone | Sigma-Aldrich | R8875 | |
| SeQuant ZIC-pHILIC 5μ m 150 x 2,1 мм аналитическая колонка | Sigma-Aldrich | 1.50460.0001 | |
| SeQuant ZIC-pHILIC защитный комплект | Millipore Sigma | 1.50438.0001 | |
| Гидроксид натрия, гранулы | Millipore Sigma | 567530-250GM | |
| Сахароза | Sigma-Aldrich | S0389 | |
| SW, TRACEFINDER 5.1 SP3 | Thermo Scientific | OPTON-31001 | |
| Раствор трет-бутилгидропероксида | Sigma-Aldrich | 458139 | |
| Tris | Sigma-Aldrich | 93352 | |
| Трипсин-ЭДТА (0,25%), феноловый красный | Gibco | 25-200-114 | |
| Uridine | Sigma-Aldrich | U3003 | |
| VANQUISH HORIZON / FLEX HPLC | Thermo | Scientific VF-S01-A-02 | |
| Z2 Coulter Количество и размер частиц анализатор | Beckman Coulter | BZ10131270 |
Ссылки
- Spinelli, J. B., Haigis, M. C. The multifaceted contributions of mitochondria to cellular metabolism. Nature Cell Biology. 20 (7), 745-754 (2018).
- Gorman, G. S., et al. Mitochondrial diseases. Nature Reviews Disease Primers. 2, 16080(2016).
- Chandel, N. S., et al. Reactive oxygen species generated at mitochondrial complex III stabilize hypoxia-inducible factor-1alpha during hypoxia: A mechanism of O2 sensing. Journal of Biological Chemistry. 275 (33), 25130-25138 (2000).
- Cadenas, E., Boveris, A., Ragan, C. I., Stoppani, A. O. M. Production of superoxide radicals and hydrogen peroxide by NADH-ubiquinone reductase and ubiquinol-cytochrome C reductase from beef-heart mitochondria. Archives of Biochemistry and Biophysics. 180 (2), 248-257 (1977).
- Murphy, M. P. How mitochondria produce reactive oxygen species. Biochemical Journal. 417 (1), 1-13 (2009).
- Schieber, M., Chandel, N. S. ROS function in redox signaling and oxidative stress. Current Biology. 24 (10), 453-462 (2014).
- Spinelli, J. B., et al. Fumarate is a terminal electron acceptor in the mammalian electron transport chain. Science. 374 (6572), 1227-1237 (2021).
- Kumar, R., et al. A redox cycle with complex II prioritizes sulfide quinone oxidoreductase-dependent H(2)S oxidation. Journal of Biological Chemistry. 298 (1), 101435(2022).
- Warburg, O., Geissler, A. W., Lorenz, S. On growth of cancer cells in media in which glucose is replaced by galactose. Hoppe-Seyler's Zeitschrift für Physiologische Chemie. 348 (12), 1686-1687 (1967).
- Marroquin, L. D., Hynes, J., Dykens, J. A., Jamieson, J. D., Will, Y. Circumventing the Crabtree effect: replacing media glucose with galactose increases susceptibility of HepG2 cells to mitochondrial toxicants. Toxicological Sciences. 97 (2), 539-547 (2007).
- Attardi, G., King, M. P. Human cells lacking mtDNA: Repopulation with exogenous mitochondria by complementation. Science. 246 (4929), 500-503 (1989).
- Bodnar, A. G., Cooper, M., Leonard, J. V., Schapira, A. H. Respiratory-deficient human fibroblasts exhibiting defective mitochondrial DNA replication. Biochemical Journal. 305, 817-822 (1995).
- Gregoire, M., Morais, R., Quilliam, M. A., Gravel, D. On auxotrophy for pyrimidines of respiration-deficient chick embryo cells. European Journal of Biochemistry. 142 (1), 49-55 (1984).
- Mackay, G. M., Zheng, L., vanden Broek, N. J., Gottlieb, E. Analysis of cell metabolism using LC-MS and isotope tracers. Methods in Enzymology. 561, 171-196 (2015).
- Heinrich, P., et al. Correcting for natural isotope abundance and tracer impurity in MS-, MS/MS- and high-resolution-multiple-tracer-data from stable isotope labeling experiments with IsoCorrectoR. Scientific Reports. 8 (1), 17910(2018).
- Lee, P., Chandel, N. S., Simon, M. C. Cellular adaptation to hypoxia through hypoxia inducible factors and beyond. Nature Reviews Molecular Cell Biology. 21 (5), 268-283 (2020).
- Bisbach, C. M., et al. Succinate can shuttle reducing power from the hypoxic retina to the O(2)-rich pigment epithelium. Cell Reports. 31 (2), 107606(2020).
- Angebault, C., et al. Idebenone increases mitochondrial complex I activity in fibroblasts from LHON patients while producing contradictory effects on respiration. BMC Research Notes. 4, 557(2011).
- Liao, P. C., Bergamini, C., Fato, R., Pon, L. A., Pallotti, F. Isolation of mitochondria from cells and tissues. Methods in Cell Biology. 155, 3-31 (2020).
- Iwai, T., et al. Sodium accumulation during ischemia induces mitochondrial damage in perfused rat hearts. Cardiovascular Research. 55 (1), 141-149 (2002).
- Murphy, E., Eisner, D. A. Regulation of intracellular and mitochondrial sodium in health and disease. Circulation Research. 104 (3), 292-303 (2009).
- Lampl, T., Crum, J. A., Davis, T. A., Milligan, C., Del Gaizo Moore, V. Isolation and functional analysis of mitochondria from cultured cells and mouse tissue. Journal of Visualized Experiments. (97), e52076(2015).
- Murphy, M. P., et al. Guidelines for measuring reactive oxygen species and oxidative damage in cells and in vivo. Nature Metabolism. 4 (6), 651-662 (2022).
- Xiao, Y., Meierhofer, D. Are hydroethidine-based probes reliable for reactive oxygen species detection. Antioxidants and Redox Signaling. 31 (4), 359-367 (2019).
- DeBerardinis, R. J., et al. Beyond aerobic glycolysis: Transformed cells can engage in glutamine metabolism that exceeds the requirement for protein and nucleotide synthesis. Proceedings of the National Academy of Sciences of the United States of America. 104 (49), 19345-19350 (2007).
- Keeley, T. P., Mann, G. E. Defining physiological normoxia for improved translation of cell physiology to animal models and humans. Physiological Reviews. 99 (1), 161-234 (2019).
- Ast, T., Mootha, V. K. Oxygen and mammalian cell culture: Are we repeating the experiment of Dr. Ox. Nature Metabolism. 1 (9), 858-860 (2019).
- Gu, C., Jun, J. C. Does hypoxia decrease the metabolic rate. Frontiers in Endocrinology. 9, 668(2018).
- Voorde, J., et al. Improving the metabolic fidelity of cancer models with a physiological cell culture medium. Scientific Advances. 5 (1), 7314(2019).
- Cantor, J. R., et al. Physiologic medium rewires cellular metabolism and reveals uric acid as an endogenous inhibitor of UMP synthase. Cell. 169 (2), 258-272 (2017).
- MacPherson, S., et al. Clinically relevant T cell expansion media activate distinct metabolic programs uncoupled from cellular function. Molecular Therapy. Methods and Clinical Development. 24, 380-393 (2022).
- Torres-Quesada, O., Doerrier, C., Strich, S., Gnaiger, E., Stefan, E. Physiological cell culture media tune mitochondrial bioenergetics and drug sensitivity in cancer cell models. Cancers. 14 (16), 3917(2022).
- Chan, S. W., Chen, J. Z. Measuring mtDNA damage using a supercoiling-sensitive qPCR approach. Methods in Molecular Biology. 554, 183-197 (2009).
- Doherty, E., Perl, A. Measurement of mitochondrial mass by flow cytometry during oxidative stress. Reactive Oxygen Species. 4 (10), 275-283 (2017).
- Birsoy, K., et al. An essential role of the mitochondrial electron transport chain in cell proliferation is to enable aspartate synthesis. Cell. 162 (3), 540-551 (2015).
- Beigneux, A. P., et al. ATP-citrate lyase deficiency in the mouse. Journal of Biological Chemistry. 279 (10), 9557-9564 (2004).
- Gameiro, P. A., et al. In vivo HIF-mediated reductive carboxylation is regulated by citrate levels and sensitizes VHL-deficient cells to glutamine deprivation. Cell Metabolism. 17 (3), 372-385 (2013).
- Fendt, S. M., et al. Reductive glutamine metabolism is a function of the alpha-ketoglutarate to citrate ratio in cells. Nature Communications. 4, 2236(2013).
- Lee, C. P. Biochemical studies of isolated mitochondria from normal and diseased tissues. Biochimica et Biophysica Acta. 1271 (1), 21-28 (1995).
Перепечатки и разрешения
