В этом исследовании представлен простой, удобный для пользователя ратиометрический анализ FRET для обнаружения и количественной оценки активности ДНКазы, а также демонстрируется его применение в анализе слабой нуклеазы.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Оценка активности ДНКазы с помощью ратиометрического флуоресцентного резонансного переноса энергии
В этой статье
Краткое содержание
Аннотация
Настоящий протокол описывает простой и чувствительный ратиометрический анализ резонансного переноса энергии Фёрстера (FRET) для обнаружения и количественной оценки активности ДНКазы. Ратиометрические измерения FRET используют соотношение сигналов излучения донора и акцептора. Анализ обнаруживает одноцепочечные разрывы ДНК с помощью скобовидного олигозонда с двумя метками 38-мерного FRET-олигозонда, используемого в качестве датчика расщепления ДНК в режиме реального времени. Основным применением описанного подхода является количественная оценка влияния условий реакции, таких как рН, температура и состав буфера, на активность ДНКазы. Благодаря своей способности обнаруживать даже незначительное и медленное расщепление ДНК, этот анализ особенно хорошо подходит для исследования слабой нуклеолитической активности, требующей длительных периодов наблюдения, а также для изучения влияния pH на активность ДНКазы. Эти специфические преимущества этого ратиометрического протокола FRET иллюстрируются его применением для обнаружения и анализа активности ДНКазы ингибитора лейкоцитарной эластазы (LEI).
Введение
Ратиометрический флуоресцентный подход — это аналитический метод, который использует отношения флуоресцентных сигналов вместо того, чтобы полагаться исключительно на интенсивность одного сигнала 1,2. Преимущество использования соотношений заключается в том, что они обеспечивают внутреннюю калибровку и компенсируют множество случайных факторов, таких как изменения концентраций образцов и зондов, параметров прибора и т. д. Это повышает точность и чувствительность флуоресцентных зондов.
В конкретном контексте зондов резонансного переноса энергии (FRET) фирмы Фёрстер термин «ратиометрический» относится к тому факту, что измерение основано на соотношении двух сигналов излучения от пары донорных и акцепторных флуорофоров FRET. Для количественной оценки активности целевого аналита ратиометрические FRET-зонды используют отношение интенсивностей излучения акцептора/донора (или, в некоторых случаях, инвертированное соотношение донор/акцептор). Коэффициент напрямую связан с эффективностью FRET. Он обеспечивает механизм самонормализации, который сводит к минимуму фоновый шум и учитывает изменения условий освещения и концентрации зонда3.
Недавние интересные применения ратиометрического метода включают его использование в ратиометрических электрохимических биосенсорах для детектирования циркулирующей опухолевой ДНК (цДНК)4,5, в броуновских био-наномашинах для FRET-детектирования фагоцитарной фазы апоптоза6, а также для экспресс-маркировки FRET и анализа фагоцитарного клиренса7. Описанный в данной работе ратиометрический подход FRET полезен для количественной оценки активности ДНКазы. Измерения анализа основаны на соотношениях излучения пары FRET. Благодаря своей способности обнаруживать даже незначительное и медленное расщепление ДНК, этот анализ особенно хорошо подходит для исследования слабой нуклеолитической активности, требующей более длительных периодов наблюдения, и для экспериментов при различных уровнях pH.
Некоторые конкретные преимущества ратиометрического анализа FRET иллюстрируются его применением для изучения активности ДНКазы слабого ингибитора нуклеазы-лейкоцитарной эластазы (LEI). Отчет включает в себя подробный протокол с пошаговой инструкцией и описанием анализа данных ратиометрии.
Описание ратиометрического преобразователя FRET
Ратиометрический FRET-зонд представляет собой самокомплементарный 38-мерный олиголиго ДНК, несущий донор-акцепторную пару FRET FAM-TAM (флуоресцеин-тетраметилродамин). Его последовательность: 5'-AAGGGT(TAM) CCTGCTGCAGGACCCTTAACGCATTATGCGT(FAM)T-3'. Самогибридизирующийся 38-мер имеет степеобразную конформацию, состоящую из двух соединенных шпилек из 23 и 15 нуклеотидов, которые располагают два его флуорофора на расстоянии 23,8 Å друг от друга. Это значительно ближе, чем радиус Фёрстера для этой пары, R0 = 55 Å8. Такое позиционирование соответствует очень высокой эффективности передачи энергии от донора к акцептору7: EFRET = 0,993477. В результате, при освещении на длине волны возбуждения FAM (488 нм) FRET-зонд излучает флуоресценцию на длине волны излучения акцептора TAM (580 нм), в то время как излучение FAM (525 нм) подавляется.
На рисунке 1A показана предсказанная ранее вторичная структура зонда с небольшими петлями на обеих вершинах шпилек из-за стерического препятствия из-за узкой кривизны. Схема обнаружения разрыва ДНК с помощью FRET-зонда представлена на рисунке 1B. Это показывает, что разрыв олигозонда ДНКазой разделяет его пару FRET. Это разделение приводит к резким изменениям в спектрах излучения обоих флуорофоров в зонде. На рисунке 1C представлены спектры излучения зонда до и после его расщепления и показано, что расщепление пары FRET после расщепления зонда DNase II увеличивает донорское излучение на длине волны 525нм (I D 525 нм) и одновременно уменьшает акцепторное излучение на длине волны 580нм (I A 580 нм). На рисунке 1D показаны отношения геля и FRET PAGE, соответствующие спектрам излучения. При расщеплении зонда DNase II образовались две широкие полосы, соответствующие 12-16-мерным FAM (зеленый) и 20-24-мерный TAM (красный) фрагментам, указывающим на случайные разрезы 38-мера по обе стороны от T23 в непосредственной близости от области соединения между шпильками.
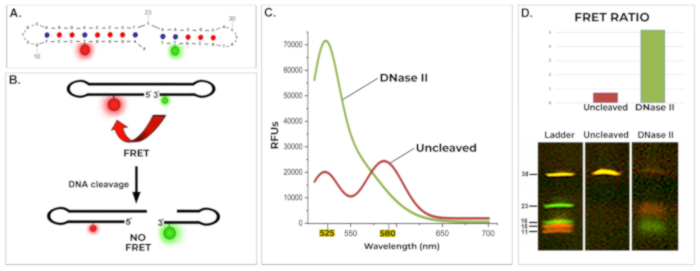
Рисунок 1: Структура и работа ратиометрического FRET-зонда. (A) Прогнозируемая вторичная структура FRET-зонда, сгенерированного UNAFold. (B) Схематическое изображение рабочего преобразователя FRET. Ратиометрический зонд FRET представляет собой штапельный олигонуклеотид с 38 мерами, меченный донором FRET (FAM) и акцептором (TAM) на эффективном расстоянии FRET 23,8 Å, обеспечивая эффективность FRET >99%. Расщепление олигозонда ДНКазой разделяет пару FRET, устраняя FRET. (C) Спектры излучения FRET-зонда до и после ДНКазы II-опосредованного расщепления. Перед расщеплением излучение FAM подавляется, и излучение TAM становится заметным. ДНКаза-опосредованное расщепление разделяет FAM и TAM, восстанавливая излучение FAM (пик 525 нм) и отменяя излучение TAM (падение 580 нм). λвозбуждение = 488 нм. (D) Ратиометрическая и электрофоретическая оценка FRET зонда до и после расщепления ДНКазы II. Верхняя панель: отношения FRET (RD/A = ID 525 нм / IA 580 нм), представляющие собой количественную меру состояния зонда. Красный: раздетый; зеленый: ДНКаза II-расщепленная. Нижняя панель: Денатурирующий гель PAGE, соответствующий флуориметрическим данным. Расщепление ДНКазы II дает фрагменты, меченные FAM (12-16 нт, зеленый) и меченые TAM фрагменты (20-24 нт, красный), что указывает на расщепление вблизи соединения между шпильками, фланкирующими T23. В разрозненном контроле наблюдается желтая флуоресценция. Лестница: FAM- и TAM-меченые олигонуклеотиды, соответствующие 5'- и 3'-сегментам 38-мерного зонда, с флуоресцентными метками в их исходных положениях. Условия реакции: 10 мМ буфер ацетата натрия (pH 5,2), 1 пмоль/мкл FRET зонд, 0,0033 ед/мкл ДНКазы II, 24 ч при 37 °C. RD/A = ID 525 нм/IA 580 нм; λвозбуждение = 488 нм. Старые условия: 1 мкМ FRET зонд, 10 мМ Na+, 0 мМ Mg2+, 37 °C. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
В то время как изменения в отдельных тестовых спектрах излучения очевидны, количественные сравнения между большим числом спектров излучения требуют более удобного для пользователя и компактного количественного параметра. Эту роль играет коэффициент FRET. Представленный метод флуоресценции относится к группе ратиометрических подходов, которые для их количественнойоценки опираются на прямые (двухканальные) отношения флуоресцентных излучений членов пары FRET 2,9.
В подходе используется соотношение донорских/акцепторных излучений (RD/A = ID 525 нм / IA 580 нм), которое связано с эффективностью FRET и количественно характеризует состояние 38-мера (сломанное или неповрежденное). Соотношение ID/IA обеспечивает самонормализующийся механизм, который по своей сути учитывает изменения таких факторов, как концентрация зонда, интенсивность возбуждения и фотообесцвечивание3. Этот подход подходит только для FRET-зондов, у которых донор и акцептор связаны в одном и том же зонде, где их соотношение известно и постоянно. По этой причине в подходе нет необходимости учитывать ни прямое возбуждение акцептора, ни перекрестные помехидонора2. Фиксированная стехиометрия донор-акцептор зонда гарантирует, что эти изменения не влияют на соотношение донор/акцептор излучения и непосредственно отражают состояние зонда. В результате соотношение донорно-акцепторных излучений обеспечивает количественный параметр расщепления ДНК со встроенной нормализацией сигнала 2,3.
В анализе используется соотношение ID / IA ( а не противоположное соотношение IA / ID ), поскольку это соотношение описывает прекращение FRET после расщепления зонда и, таким образом, изменяется в том же направлении, что и активность ДНКазы - увеличивается с увеличением расщепления. Это проиллюстрировано на рисунке 1D, на котором показано отношение FRET ратиометрического зонда и его электрофорез PAGE до и после его расщепления ДНКазой II, что соответствует спектрам на рисунке 1C. Чтобы продемонстрировать удобство, экономию времени и простоту использования ратиометрического анализа FRET, он был применен для выявления и изучения активности ДНКазы слабого нуклеазы-лейкоцитарного ингибитора эластазы (LEI).
Слабая нуклеаза LEI
Ингибитор протеазы LEI по своей природе метастабилен, т.е. топологически несбалансирован. Эта особенность имеет важное значение для его тормозного механизма. Когда протеаза-мишень расщепляет петлю реактивного сайта LEI (RSL), молекула-ингибитор протеазы претерпевает резкое конформационное изменение, механически растягивая протеазу в неактивную форму10,11. Примечательно, что это также разрушает и растягивает саму молекулу LEI и обнажает скрытый сайт ДНКазы, который покрыт своей нативной складкой, тем самым превращая LEI в активную эндонуклеазу L-ДНКазу II (ДНКаза II, производная от LEI)11,12. Криптозный сайт ДНКазы также может быть подвергнут воздействию в результате денатурации и разрушения кода LEI, вызванного его ночной инкубацией при pH 2 в серной кислоте 10,13. Использование этого анализа FRET для изучения кодов LEI показало, что жесткие методы химической денатурации и целенаправленное ферментативное расщепление не являются строго обязательными для выявления скрытой нуклеолитической активности кодов LEI.
Представленное приложение и протокол ратиометрического подхода FRET описывают выявление слабой активности ДНКазы, присущей нормальным, неденатурированным кодам LEI. Открытие внутренней нуклеолитической способности неиспользуемого кода LEI и его анализ стали возможными благодаря пригодности анализа для длительных периодов наблюдения при различных уровнях кислотного pH.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Оценка активности ДНКазы с помощью ратиометрического флуоресцентного резонансного переноса энергии
Метод подходит для обнаружения и анализа нуклеолитических свойств растворимого белка. Для изучения рН-зависимости исследуемой ДНКазы в рамках процедуры одновременно оценивается активность ДНКазы в диапазоне значений рН. Методика может быть использована для изучения слабой и медленной активности нуклеазы. Подробная информация о реагентах и оборудовании, использованных в этом исследовании, приведена в Таблице материалов.
1. Подготовка компонентов инкубационной смеси для системы флуориметрической оценки
- Приготовьте буферные растворы при желаемом диапазоне pH. Для диапазона pH от 6,8 до 8,0 используйте Tris-HCl или фосфатные буферы. Используйте буфер Tris-HCl для физиологических условий pH (pH от 7,2 до 8,0) из-за его стабильности и минимального влияния на активность ферментов.
ПРИМЕЧАНИЕ: Фосфатные буферы подходят для этого диапазона pH, но менее подходят для более высоких значений pH (>7,5) из-за ограничений их буферной способности.
Для диапазона pH от 4,2 до 7,2 используйте ацетатные или цитратные буферы. Ацетатный буфер эффективен при более низких значениях pH, вплоть до pH 4,2.
ПРИМЕЧАНИЕ: Цитратный буфер можно использовать при несколько более высоких значениях pH (pH от 5,6 до 7,2) и он обладает хорошей буферной способностью. Эти буферы подходят для изучения активности ДНКазы в кислых и нейтральных условиях. В представленном исследовании нуклеолитической активности LEI использовались 10 мМ буферы из ацетата натрия с pH в диапазоне от 4,8 до 6,5. - Разведите образец белка до подходящей концентрации в каждом буферном растворе. Когда активность в образце совершенно неизвестна, приготовьте ряд разведений белка. Оптимальное разведение зависит от силы активности ДНКазы и должно быть определено экспериментально путем тестирования нескольких концентраций белка.
ПРИМЕЧАНИЕ: В представленном исследовании сверхслабой нуклеолитической активности LEI использовался его в концентрации 1 мкМ.- Всегда проверяйте pH конечного раствора при использовании высококонцентрированных буферов, потому что pH концентрированных буферов может измениться при разбавлении.
- Приготовьте раствор ратиометрического зонда FRET в воде, не содержащей нуклеаз. Используйте концентрацию зонда FRET, близкую к 1 мкМ (1 пмоль/мкл). Избегайте использования зондов с очень высокой концентрацией.
Быстро нагрейте и охладите раствор зонда перед применением, чтобы обеспечить полную диссоциацию нежелательных пар оснований.
ПРИМЕЧАНИЕ: В представленном исследовании нуклеолитической активности кодов LEI использовалась концентрация 1 мкМ (1 пмоль/мкл) зонда FRET в воде, не содержащей нуклеаз.
2. Индукция ДНКазной реакции с использованием ратиометрического FRET зонда в качестве подложки
- Подготовьте три лунки в 96-луночной пластине для каждого тестируемого условия pH. Включите три дополнительные лунки, каждая для положительного и отрицательного контроля.
- В каждой лунке для серии pH комбинируйте следующее:
70 мкл воды без нуклеазы
10 μL of 10X Buffer (буфер на ваш выбор)
10 мкл образца с белком
10 μл ратиометрического зондового раствора (концентрация 10 пмоль/μл исходной концентрации)
ПРИМЕЧАНИЕ: В представленном исследовании нуклеолитической активности LEI при кислом pH использовался следующий 10X Buffer: 100 мМ Na Ацетат pH 5,2 - В каждой положительной контрольной колодке сочетайте следующее:
79 мкл воды без нуклеаз
10 мкл 10X буфера ДНКазы II (100 мМ Na ацетата pH 5,2)
0,33 мкл ДНКазы II (1 ед/мкл запаса)
10 μл ратиометрического зондового раствора (концентрация 10 пмоль/μл исходной концентрации)
ПРИМЕЧАНИЕ: Для исследований кислого pH используйте ДНКазу II в качестве положительного контроля. При оценке активности ДНКазы вблизи рН 7 (в частности, рН 6,5-8) переключитесь на ДНКазу I и связанный с ней буфер (например, 10 мМ Tris-HCl, 2,5 мМ MgCl2, 0,5 мМ CaCl2, рН 7,6) вместо ДНКазы II и ацетатного буфера. - В каждую лунку отрицательного контроля добавьте безнуклеазную воду вместо образца белка.
- В каждой лунке для серии pH комбинируйте следующее:
- Индуцировать реакцию ДНКазы путем добавления растворов зондов к реакционным смесям, содержащим белок ДНКазы с различными значениями pH.
ПРИМЕЧАНИЕ: Тщательно перемешайте все образцы, избегая образования пузырьков. Для образцов активной ДНКазы запускайте все реакции как можно ближе к одновременному. Для сверхслабой активности, такой как код LEI, строгое определение времени менее критично.
ПРИМЕЧАНИЕ: Чтобы обеспечить стабильное время инкубации, особенно при работе с активными нуклеазами, добавляйте образцы в шахматном порядке в зависимости от времени, необходимого для каждого измерения. Например, если каждое измерение занимает 10 с, добавьте второй образец через 10 с после первого.
3. Инкубация
- Инкубируйте исследуемую ДНКазу с помощью ратиометрического зонда FRET при температуре 37°C на водяной бане или в инкубаторе с регулируемой температурой в течение различных периодов времени. Используйте несколько временных точек с регулярными интервалами отбора проб для точной оценки скорости обновления ферментов и минимизации артефактов. В представленном исследовании сверхслабой нуклеолитической активности LEI использовалась 24-часовая инкубация для регистрации медленной нуклеолитической реакции.
ПРИМЕЧАНИЕ: Определяйте оптимальное время инкубации в предварительных экспериментах, потому что оно зависит от силы изучаемой ДНКазы. Активной нуклеазе потребуется очень короткое время для завершения расщепления зонда, поэтому начните с 15-30-минутной инкубации. Если образец слишком концентрированный, а реакция слишком быстрая, концентрацию белка следует снизить. Если белок образца слишком слабый, время инкубации может увеличиваться по мере необходимости.
4. Нормализация сигнала к тем же условиям pH
- Остановите все инкубационные реакции, добавив 100 мкл 250 мМ Tris-HCL (pH 8,0). На этом этапе также выравнивается pH во всех образцах.
ПРИМЕЧАНИЕ: Этап выравнивания pH важен при сравнении реакций, начатых при различных условиях pH. Процедура обеспечивает полное разделение фрагментов зонда, максимизируя его сигнал на основе FRET. Кроме того, излучение флуорофоров FAM зонда снижено при кислом pH и является оптимальным при pH 8,0. Для образцов с более высокой ионной силой, чем те, которые использовались в данном исследовании, для достижения эффективной регулировки pH может потребоваться более концентрированный (>250 мМ) и более высокий pH (>8,0) раствор для выравнивания.
ПРИМЕЧАНИЕ: Щелочной pH эффективно останавливает активность кислотных нуклеаз, таких как LEI, как показано в текущем исследовании. Для нейтральных или щелочных нуклеаз следует определить соответствующие специфические методы инактивации и применять их до оценки сигнала.
5. Обнаружение флуориметрических сигналов и расчет соотношений FRET
- Сразу после этапа выравнивания pH используйте спектрофлуориметр для записи спектров излучения как донорного, так и акцепторного флуорофора. Выполняйте измерения непосредственно в 96-луночном планшете, возбуждая донорный флуорофор на длине волны 488 нм и одновременно регистрируя излучение на волнах 525 нм (донор) и 580 нм (акцепторный сигнал, полученный от FRET).
- Используйте записанные интенсивности флуоресценции для оценки активности ДНКазы в каждом образце. Применяйте соответствующие статистические методы для анализа данных и оценки значимости.
ПРИМЕЧАНИЕ: Рассчитайте отношение FRET по формуле: RFRET = донорское излучение при 525 нм/акцепторное излучение при 580 нм. В этом анализе расщепление ДНК нарушает работу FRET путем разделения флуорофоров, что приводит к увеличению донорской эмиссии и снижению эмиссии акцептора. Этот сдвиг повышает отношение FRET (RFRET), которое служит индикатором активности ДНКазы.
6. Постраничная проверка спайности
- Проверьте расщепление датчика FRET, выполнив денатурирующий электрофорез в полиакриламидном геле (PAGE)14. Зонд FRET и его продукты расщепления имеют флуоресцентную маркировку и видны без дополнительного окрашивания.
ПРИМЕЧАНИЕ: В репрезентативном исследовании LEI-опосредованное расщепление 38-мерного зонда FRET было подтверждено с помощью денатурации PAGE (см. Рисунок 2). Анализ показал, что с помощью кода LEI были получены фрагменты, меченные FAM, и фрагменты, меченные TAM на 15-16 мер, что соответствует спайности вблизи обеих вершин шпилек. Этот паттерн отличался от профиля фрагмента, сгенерированного ДНКазой II.- Загрузите 15 мкл каждого образца в 20% денатурирующий гель PAGE.
- Запустите гель в течение 1 часа при 100 В.
- Получение изображений геля с помощью системы документирования, оснащенной цветной камерой высокого разрешения.
Примечание: Изображения в репрезентативном исследовании были получены с помощью цифровой зеркальной камеры.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
В этом репрезентативном исследовании подчеркиваются конкретные преимущества ратиометрического подхода FRET для изучения медленных ферментативных реакций, требующих длительных периодов наблюдения. В частности, приложение демонстрирует обнаружение и анализ присущей коду LEI активности ДНКазы с помощью ратиометрической системы FRET. Результаты этого исследования представлены на рисунке 2.
Используя это...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
В данном исследовании демонстрируется применение ратиометрического FRET для обнаружения и оценки активности ДНКазы с использованием слабой нуклеазы - ингибитора лейкоцитарной эластазы (LEI). Этот подход обеспечивает удобный и количественный метод оценки ДНКазных свойств белков и биомолекул. Его протокол прост, а процедура анализа данных прямолинейна и проста. В анализе используется 38-мерный зонд FRET, который выдерживает длительную инкубацию при различных кислотных pH. Это свойство, как...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
Это исследование было поддержано грантом R01 GM148812 от Национального института общих медицинских наук, NIH; грантами R21 CA255979 от Национального института рака, NIH; и гранты R21 AG073887 и R21 AG071978 от Национального института по проблемам старения, NIH (все V.V.D.).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Планшет на 96 лунок | Сокол | 353219 | |
| DNA FRET Probe | ДНК IDT | 5'-AAG GGT(TAM)CCT GCT GCA GGA CCC TTA ACG CAT TAT GCG T(FAM)T- 3'; FAM – Флуоресцеин-dT; TAM – Тетраметилродамин-дТ. | |
| ДНКаза II | Сигма Олдрич | Д8764 | |
| Цифровая зеркальная камера EVOLT | Олимп | Е500 | |
| Аппарат для гелевого электрофореза с блоком питания | Био-Рад | ||
| ЛЕЙ | Новопротеин | CJ01 | |
| Система визуализации LiCOR Gel | LiCOR | ||
| Вода без нуклеаз | Инвитроген | 10977015 | |
| Предварительно отлитый гель PAGE | Инвитроген | EC68852 | |
| Буферный раствор ацетата натрия pH 5,2 | Сигма Олдрич | С2899-100МЛ | |
| Спектрофлуориметр | Текан | Саффайр 2 |
Ссылки
- A guide to ratiometric fluorescence. , AZoM. https://www.azom.com/article.aspx?ArticleID=16081 (2018).
- Müller, S. M., Galliardt, H., Schneider, J., Barisas, B. G., Seidel, T. Quantification of Förster resonance energy transfer by monitoring sensitized emission in living plant cells. Front Plant Sci. 4, 413(2013).
- Lakowicz, J. R. Principles of fluorescence spectroscopy. , Springer Science & Business Media. (2006).
- Chai, H., Tang, Y., Guo, Z., Miao, P. Ratiometric electrochemical switch for circulating tumor DNA through recycling activation of blocked DNAzymes. Anal Chem. 94 (6), 2779-2784 (2022).
- Liu, G., Ma, X., Tang, Y., Miao, P. Ratiometric fluorescence method for ctDNA analysis based on the construction of a DNA four-way junction. Analyst. 145 (4), 1174-1178 (2020).
- Minchew, C. L., Didenko, V. V. Nanoblinker: Brownian motion powered bio-nanomachine for FRET detection of phagocytic phase of apoptosis. PLoS One. 9 (9), e108734(2014).
- Didenko, V. V. Express FRET labeling and analysis of phagocytic clearance. Methods Mol Biol. 1644, 3-11 (2017).
- Domingo, B., Sabariegos, R., Picazo, F., Llopis, J. Imaging FRET standards by steady-state fluorescence and lifetime methods. Microsc Res Tech. 70 (12), 1010-1021 (2007).
- Lee, M. H., Kim, J. S., Sessler, J. L. Small molecule-based ratiometric fluorescence probes for cations, anions, and biomolecules. Chem Soc Rev. 44 (13), 4185-4191 (2015).
- Torriglia, A., Leprêtre, C., Padrón-Barthe, L., Chahory, S., Martin, E. Molecular mechanism of L-DNase II activation and function as a molecular switch in apoptosis. Biochem Pharmacol. 76 (11), 1490-1502 (2008).
- Padron-Barthe, L., Leprêtre, C., Martin, E., Counis, M. F., Torriglia, A. Conformational modification of serpins transforms leukocyte elastase inhibitor into an endonuclease involved in apoptosis. Mol Cell Biol. 27 (11), 4028-4036 (2007).
- Torriglia, A., Martin, E., Jaadane, I. The hidden side of SERPINB1/leukocyte elastase inhibitor. Semin Cell Dev Biol. 62, 178-186 (2017).
- Torriglia, A., et al. L-DNase II, a molecule that links proteases and endonucleases in apoptosis, derives from the ubiquitous serpin leukocyte elastase inhibitor. Mol Cell Biol. 18 (6), 3612-3619 (1998).
- Summer, H., Grämer, R., Dröge, P. Denaturing urea polyacrylamide gel electrophoresis (Urea PAGE). J Vis Exp. (32), e1485(2009).
- Lauková, L., Konečná, B., Janovičová, Ľ, Vlková, B., Celec, P. Deoxyribonucleases and their applications in biomedicine. Biomolecules. 10 (7), 1036(2020).
- Minchew, C. L., Didenko, V. V. Dual detection of nucleolytic and proteolytic markers of lysosomal cell death: DNase II-type breaks and cathepsin D. Methods Mol Biol. 1554, 229-236 (2017).
- Nucleases (DNases and RNases). , Sigma-Aldrich. https://www.sigmaaldrich.com/US/en/products/protein-biology/proteins-and enzymes/nucleases (2025).
- Altairac, S., Zeggai, S., Perani, P., Courtois, Y., Torriglia, A. Apoptosis induced by Na+/H+ antiport inhibition activates the LEI/L-DNase II pathway. Cell Death Differ. 10 (5), 548-557 (2003).
- Li, J. J., Geyer, R., Tan, W. Using molecular beacons as a sensitive fluorescence assay for enzymatic cleavage of single-stranded DNA. Nucleic Acids Res. 28 (11), E52(2000).
- Ma, C., Tang, Z., Huo, X., Yang, X., Li, W., Tan, W. Real-time monitoring of double-stranded DNA cleavage using molecular beacons. Talanta. 76 (2), 458-461 (2008).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
