Здесь мы представляем исследование, проведенное в iDiv Ecotron, наземных мезокосмических камерах с контролируемыми условиями окружающей среды над и под землей, для изучения независимых и интерактивных эффектов истории растений и почвы на функционирование экосистем луговых сообществ вдоль градиента разнообразия растений.
Методическая статья
JenaTron - экспериментальный подход к изучению влияния истории растений и почвы на функционирование экосистемы лугопастбищных угодий
В этой статье
Краткое содержание
Аннотация
Глобальная утрата биоразнообразия послужила толчком к проведению многих исследований, в которых экспериментально варьируются видовое богатство растений и изучаются последствия для функционирования экосистем. Такие эксперименты, как правило, показывают положительную взаимосвязь между надземным и подземным биоразнообразием и функционированием наземных экосистем. Более того, эта взаимосвязь имеет тенденцию укрепляться с течением времени, что проявляется в улучшении функционирования разнообразных растительных сообществ и снижении функционирования растительных сообществ с низким разнообразием. Предполагается, что различия в сборке мультитрофных сообществ и биотических взаимодействиях в растительных сообществах с высоким и низким разнообразием влияют на производительность растений, изменяя структуру и функции потребительского сообщества и вызывая пластические или микроэволюционные реакции видов растений в растительных сообществах. Чтобы разрешить это сложное взаимодействие истории сообщества, мы разделили эти эффекты на историю растений и почвы. История растений относится ко всем реакциям растений на прошлые абиотические и биотические селекционные нагрузки, испытываемые в их сообществах, в то время как история почвы относится ко всем абиотическим и биотическим свойствам почвы, развившимся как наследие взаимодействий растений и почвы при изменчивом разнообразии растений. Мы провели эксперимент по биоразнообразию в экотроне, наземном мезокосме, который позволяет контролировать условия окружающей среды над и под землей, чтобы проверить, связано ли укрепление отношений между биоразнообразием и функционированием экосистемы с историей почвы, историей растений или комбинацией того и другого. Мы установили градиент разнообразия растений, состоящий из 1, 2, 3 и 6 видов луговых растений и факторно вложенный с историей почвы и обработки истории растений для каждого уровня богатства видов растений. Репрезентативные результаты демонстрируют успешное применение целевых обработок в эксперименте Ecotron, наблюдая за влиянием истории растений и почвы на начальное развитие и окончательный рост растений. Кроме того, мы предоставляем тематическое исследование для анализа данных по отдельным переменным ответа. Мы излагаем цели и методы исследования для всесторонней оценки многофункциональных ответов на экспериментальные методы лечения, необходимых для окончательного решения всеобъемлющей гипотезы.
Введение
За последние три десятилетия растущая обеспокоенность по поводу утраты биоразнообразия привела к проведению обширных исследований, направленных на экспериментальное манипулирование богатством видов растений для изучения его влияния на функционирование экосистем 1,2. Экспериментальные исследования продемонстрировали положительную связь между разнообразием растений и функционированием экосистемы1, которая имеет тенденцию к увеличению с течением времени 3,4,5,6,7,8,9. Это важный вывод, поскольку он позволяет предположить, что экспериментальные результаты, полученные от молодых, недавно созданных сообществ, вероятно, недооценивают последствия утраты биоразнообразия, подчеркивая при этом важность сохранения более старых, богатых видами экосистем10.
Изменения в биотических и абиотических процессах с течением времени, которые можно наблюдать только в ходе долгосрочных экспериментов, являются одним из возможных объяснений усиливающего воздействия биоразнообразия на функционирование экосистем. Высокое разнообразие растений связано с увеличением концентраций углерода и питательных веществ в почве 3,9,11,12,13, оптимизацией комплементарности ресурсов 3,8,14, усилением дифференциации ниш среди растений15, накоплением мутуалистов на всех трофических уровнях10,16, и снижение угроз со стороны патогенов и травоядных животных за счет более сильных нисходящих регуляторных механизмов 17,18,19. И наоборот, низкое разнообразие растений было связано с селективным давлением в сторону увеличения инвестиций в защиту растений и менее эффективным использованием ресурсов 10,20,21,22. В совокупности предполагается, что различия в сборке мультитрофных сообществ и биотических взаимодействиях в растительных сообществах с высоким и низким разнообразием влияют на производительность растений, изменяя структуру и функции потребительского сообщества, а также вызывая пластические или микроэволюционные изменения видов растений на уровне растительных сообществ 23,24,25,26. Чтобы разрешить сложное взаимодействие истории сообщества, эти эффекты были разделены на два важных компонента: история растений и история почвы. История растений относится ко всем реакциям растений на прошлые абиотические и биотические селекционные нагрузки, испытанные в их соответствующих сообществах, в то время как история почвы относится ко всем абиотическим и биотическим свойствам почвы, развившимся в результате взаимодействия растений и почвы 23,24,27,28. Оба компонента все чаще признаются в качестве ключевых приводных механизмов, влияющих на долгосрочное воздействие на биоразнообразие 29,30,31.
Экспериментальные полевые исследования дают ценную информацию о долгосрочных последствиях истории почвы и растений в реальных условиях окружающей среды и в большом пространственном масштабе 32,33. Однако полевые эксперименты подвержены воздействию различных неконтролируемых внешних факторов, таких как колебания погоды, природные возмущения и взаимодействие с другими организмами. В отличие от них, эксперименты на микрокосме, хотя и ограничены в охвате сложности и динамики природных экосистем, предлагают точный контроль над абиотическими факторами, такими как температура, свети вода. Чтобы объединить преимущества обоих подходов, в 1990-х годах появились новые экспериментальные установки под названием «Экотроны» (например, Экотрон в Силквуде, Великобритания34; Ecotron в Монпелье, Франция35; Экотрон в Хасселте, Бельгия36). Roy et al. (2021)37 определяют экотрон как экспериментальную установку, состоящую из реплицированных корпусов, предназначенных для размещения образцов экосистемы, что позволяет реалистично моделировать надземные и подземные условия окружающей среды, одновременно способствуя одновременному и автоматизированному измерению экосистемных процессов. Таким образом, экотроны позволяют комплексно изучать сложные экосистемные процессы, мультитрофические взаимодействия и функции экосистем. Они могут содержать множество надземных и подземных организмов с нескольких трофических уровней в большой серии независимых мезокосмических камер, что позволяет точно контролировать и отслеживать условия окружающей среды как в надземных, так и в подземных системах37,38.
В этом исследовании мы провели эксперимент на iDiv Ecotron38,39, известный как «Эксперимент JenaTron» (Рисунок 1 и Рисунок 2), чтобы проверить, модулируются ли отношения между биоразнообразием и функционированием экосистемы (BEF) в сообществах с разным уровнем богатства видов растений историей почвы, общей историей растений или совокупным эффектом того и другого. iDiv Ecotron специально разработан для экспериментов по мультитрофному биоразнообразию, уделяя особое внимание совместному исследованию надземных и подземных взаимодействий в наземных экосистемах 38,39,40. Он состоит из 24 идентичных экспериментальных блоков, называемых «экоединицами» (рис. 2F, G), каждая из которых способна вместить до четырех отдельных экосистем в изолированных отсеках (рис. 2K), что позволяет создавать сложные, почти естественные экосистемы, сводя к минимуму воздействие изменчивости окружающей среды. Одним из ключевых преимуществ является возможность создания множественных реплик монолитов неповрежденной почвы (рисунок 2A-C) в контролируемых условиях окружающей среды, что позволяет измерять сложные экосистемные процессы, включая эффекты обратной связи между растениями и растениями и почвой, которые часто трудно уловить в экспериментах на микромире в небольших масштабах 38,39.
В Европе полуестественные луга являются одними из самых биоразнообразных и сложных наземных экосистем, обеспечивая жизненно важные экосистемные услуги. Тем не менее, с начала20-го века эти широко управляемые луга сталкиваются с растущими угрозами со стороны изменений в землепользовании, что делает их ключевым направлением для сохранения биоразнообразия и исследований. Одним из самых продолжительных в мире экспериментов по сохранению биоразнообразия на широко управляемых лугах является Йенский эксперимент32,33, расположенный в Йене, Германия (50,951° с.ш., 11,621° в.д., 139 м над у.м.; веб-сайт: https://the-jena-experiment.de). В рамках эксперимента, начатого в 2002 году, исследуются взаимосвязи между разнообразием луговых растений и функционированием экосистем, уделяя особое внимание круговороту питательных веществ и трофическим взаимодействиям32,33. Для установки JenaTron Experiment в iDiv Ecotron мы использовали Trait-Based Experiment41 (TBE), компонент Йенского эксперимента, начатого в 2010 году и завершенного в 2021 году. В 2022 году было выбрано 23 участка TBE для установления градиента разнообразия растений в диапазоне от одного до шести видов, охватывающего более 24 растительных сообществ в пределах iDiv Ecotron. Эти сообщества включали шесть видов луговых растений, которые пересекались с основным экспериментом Йенского эксперимента и представляли три вида трав (Anthoxanthum odoratum L., Dactylis glomerata L., Holcus lanatus L.) и три вида разнотравья (Leucanthemum vulgare agg., Plantago lanceolata L. и Ranunculus acris L.; см. таблицу 1 для получения подробной информации о видовом составе растений и репликации для каждого уровня разнообразия растений). Эти виды, широко распространенные и часто сосуществующие на полуестественных европейских лугах, также различаются по своим особенностям приобретения временных ресурсов, что делает их идеальными для всесторонних исследований использования временных ресурсов, таких как фенология растений41. 24 растительные композиции были случайным образом распределены по всем экоединицам (рис. 1C), при этом каждая экоединица была дополнительно разделена на четыре отсека, чтобы учесть факторные комбинации обработки истории почвы и истории растений.
История почвы (рис. 1A) была установлена путем раскопок в общей сложности 96 монолитов почвы из Йенского эксперимента. Почва участка представляет собой богатую питательными веществами пойменную почву, классифицируемую как эвтрийский флувизол, развитую из суглинистых речных отложений32,33. Подробную информацию о pH почвы, изменениях текстуры почвы и органическом веществе в профиле почвы Йенского эксперимента можно найти в Lange et al. (2023)9. Из 96 монолитов 48 были получены путем раскопок по два монолита с каждого из 22 участков TBE, охватывающих монокультуры, двух- и трехвидовые смеси. Кроме того, четыре монолита были взяты из участка из восьми видов, которые будут служить смесью из шести видов в эксперименте JenaTron. Каждый из этих 48 почвенных монолитов (глубина: 0,8 м; диаметр: 0,5 м) с 2010 г. вмещал в себя специфическое для участка жилое сообщество, таким образом, представляя собой почвенную историю, специфичную для растительного сообщества (+SH). Остальные 48 монолитов были выкопаны на четырех голых участках земли, которые были свободны от растительности с момента начала Йенского эксперимента в 2002 году, таким образом, в них отсутствовала какая-либо почвенная история, специфичная для растительных сообществ (-SH). На каждом из четырех участков с голой землей было раскопано по 12 монолитов. Две обработки истории почвы (+SH; -SH) были факторно объединены с двумя обработками истории растений путем посадки предварительно выращенных растений, которые отражали специфичный для растительного сообщества состав КЭ с одинаковой плотностью, с отдельными растениями, расположенными на расстоянии 6 см друг от друга.
История растений (рис. 1B) была установлена с использованием двух различных источников семян для каждого из выбранных видов растений из пула видов Йенского эксперимента: первый источник состоял из семян, собранных с растений, которые с 2010 года имели специфическую для сообщества историю, соответствующую точным участкам эксперимента, основанного на признаках (TBE), на которых были извлечены монолиты почвы (+PH). Эти семена были собраны с мая по сентябрь 2019 года в зависимости от фенологии цветения вида, что гарантировало минимум пять особей на вид и участок. После сбора семена очищались и хранились при температуре -20°C до начала эксперимента JenaTron. Вторым источником семян были семена, полученные от коммерческого поставщика семян, производящего семена регионального происхождения. Эти семена были использованы для создания участков TBE в 2010 году, таким образом, представляя растения без истории селекции, специфичной для сообщества, в рамках Йенского эксперимента (-PH) и хранились при температуре -20°C с 2010 года до начала эксперимента JenaTron. Обе истории шести видов многолетних растений были предварительно выращены с февраля по май 2022 года в четырех камерах исследовательской теплицы iDiv, расположенной в Лейпциге, Германия (51,330° с.ш., 12,393° в.д., 120 м над уровнем моря).
Факторная комбинация истории почвы (SH) и истории растений (PH) на каждом уровне видового богатства растений привела к четырем обработкам в рамках каждой из 24 экоединиц: (1) с историей почвы, с историей растений (+SH/+PH), (2) с историей почвы, без истории растений (+SH/-PH), (3) без истории почвы, с историей растений (-SH/+PH) и (4) без истории почвы, без истории растений (-SH/-PH; Рисунок 1С). Основная цель эксперимента JenaTron заключается в том, чтобы выяснить, связано ли укрепление взаимосвязи между биоразнообразием и функционированием экосистемы с историей почвы, историей растений или комбинацией того и другого. Мы предполагаем, что растительные сообщества с общей историей растений и почвы, специфичной для сообщества, продемонстрируют самую сильную связь BEF, в то время как экспериментальное исключение истории почвы, истории растений или того и другого может оказать пагубное влияние на положительные связи разнообразия растений и функционирования экосистемы. В конечном счете, если бы история почвы или растений изменила взаимосвязь между богатством видов растений и функционированием экосистемы, это послужило бы важным фактором для сохранения и мониторинга локально сохраненных и новых восстановленных сообществ.
Протокол
ПРИМЕЧАНИЕ: Убедитесь, что на всех этапах протокола предоставляются соответствующие средства индивидуальной защиты (например, шлемы, перчатки, жилеты, защитная обувь и т. д.).
1. Грунты: подготовка, выемка грунта, монтаж
- Почвенные источники, выбор и подготовка участка (февраль 2022 г.)
- Выберите два источника почвы на полевом участке Jena Experiment:
- Выберите 23 участка КЭ, на которых в течение 12 лет проживало сообщество, специфичное для данного участка, чтобы охватить градиент разнообразия растений в 1, 2, 3 и 6 видов. Обозначить эти участки как обработку JenaTron Experiment «с историей почвы, специфичной для растительного сообщества» (+SH).
- Выберите 4 участка с голой землей с теми же свойствами почвы, что и участки TBE (pH, содержание песка и т.д.), но без растительного покрова с 2002 года. Обозначьте эти участки как обработки эксперимента JenaTron «без истории, специфичной для растительного сообщества» (-SH).
- Аккуратно удалите верхние 5 см почвы со всех выбранных участков с помощью мини-экскаватора, чтобы выровнять условия по обработке истории почвы.
- Выберите два источника почвы на полевом участке Jena Experiment:
- Выемка грунта монолита (март 2022 г.)
- Установите монолитное устройство для извлечения на каждом участке, установите режущую систему на пустой стальной цилиндр и вставьте ее в устройство для извлечения (Рисунок 2A).
- Включите устройство, и режущая система будет вращаться вокруг внешней стенки цилиндра. Система вырезает в почве выемку, в которую вытяжное устройство одновременно вдавливает стальной цилиндр. Параллельно с этим используйте мини-экскаватор для выемки ямы сбоку от стального цилиндра (Рисунок 2B).
- Как только стальной цилиндр будет полностью погружен в почву, заберитесь в боковую яму и закрепите монолит на нижнем краю стального цилиндра, установив временную нижнюю пластину, и используйте устройство для извлечения монолита, чтобы поднять его из котлована (Рисунок 2C).
- Демонтируйте режущую систему со стального цилиндра, установите временную верхнюю пластину на стальной цилиндр, поднимите монолит с помощью подвески, прикрепленной к мини-экскаватору, и переверните его вверх дном.
- Монтаж системы отсоса воды (март 2022 г.)
- Демонтируйте нижнюю плиту, удалите примерно 5 см слоя почвы с помощью шпателя и уберите его на хранение для последующего использования.
- Заделайте кольцо из щупов для всасывания воды (8 свечей, соединенных шлангами из поливинилхлорида [ПВХ]) в кварцевый порошок, смочите его деминерализованной водой (ВЭ) и наполните стальное дно цилиндра предварительно удаленным грунтом.
- Подсоедините наконечник ПВХ кольца водовсасывающего щупа к нижней пластине и затем закрепите его болтами.
- Снова переверните стальной цилиндр с подвеской на мини-экскаваторе в вертикальное положение, промаркируйте его по отдельности, отверстия в стенках цилиндра заклейте скотчем, а баллон оберните полиэтиленовой пленкой для защиты при транспортировке.
- Транспортировка грунтовых монолитов на грузовике на станцию iDiv Ecotron, расположенную на экспериментальной полевой станции Центра экологических исследований им. Гельмгольца (UFZ) в Бад-Лаухштедте, Германия (51,392° с.ш., 11,876° в.д., 116 м над у.м.).
- Установка датчиков почвы (апрель 2022)
- После распаковки вырежьте точно подходящие отверстия для датчиков горизонтально в монолите почвы с помощью специального стального лезвия, используя отверстия в стенке цилиндра на трех разных глубинах (9,5 см, 21,5 см и 43,5 см).
- Поместите датчики почвы в отверстия, с помощью деревянного бревна установите их в нужное положение, и закрутите отверстия болтами с помощью изготовленных на заказ заглушек.
- Монтаж грунтовых монолитов в ЭкоЮниты (апрель 2022)
- Осторожно поднимите техническую и верхнюю часть каждого EcoUnit из нижней части (Рисунок 2G). Транспортируйте нижнюю часть к стальным цилиндрам, в которых укрываются монолиты неповрежденного грунта, оснащенные датчиками грунта.
- Прикрепите каждый стальной цилиндр к подвеске, поднимите его с помощью вилочного погрузчика и установите соединитель на кольцо всасывающей свечи, подключенное к нижней пластине.
- Поднимите четыре почвенных монолита в нижний контейнер каждой из 24 единиц EcoUnit (Рисунок 2F), причем два из них имеют одинаковую историю почвы, специфичную для растительного сообщества (+SH), и два без истории почвы, специфичную для растительного сообщества (-SH). Проведите кабели датчиков почвы через отверстия контейнера с землей.
- Закрепите стальные цилиндры к нижней части винтами и впоследствии подсоедините кольца свечей всасывания воды каждого цилиндра к системе всасывания воды EcoUnit через ранее установленный разъем.
- С помощью вилочного погрузчика можно транспортировать контейнер, оборудованный монолитами грунта, в цех (24 м х 24 м).
- Аккуратно поместите техническую и верхнюю части (с внутренними стенками между субъединицами [Рисунок 2K]) каждого EcoUnit обратно на нижнюю часть.
- Расположите все 24 ЭкоЮнита в три ряда, каждый из которых состоит из двух групп по четыре ЭкоЮнита, образуя в общей сложности шесть блоков. Обеспечьте межосевое расстояние 6 м между блоками в каждом ряду и 8,2 м между рядами. В каждом блоке случайным образом назначьте четыре уровня разнообразия растений (1, 2, 3 и 6) четырем экоединицам, обеспечивая равномерное распределение видов по всем экоединицам, где это возможно.
2. Растения: подготовка и установка для выращивания
- Выбор вида и семенного материала
- Выберите следующие шесть видов растений из пула видов Йенского эксперимента: Anthoxanthum odoratum L. (Poaceae), Dactylis glomerata L. (Poaceae), Holcus lanatus L. (Poaceae), Leucanthemum vulgare agg. (Asteraceae), Plantago lanceolata L. (Plantaginaceae) и Ranunculus acris L. (Ranunculaceae).
- Для каждого вида выберите семенной материал, происходящий из двух разных источников семян:
- Используйте семена растений, которые росли на участках КЭ в рамках Йенского эксперимента с 2010 года (с историей растений +PH).
- Используйте исходный семенной материал, который был использован для начала КЭ в 2010 году, полученный от регионального производителя семян (без истории растений, -PH).
- Подготовка основания (февраль 2022 г.)
- Соберите почву для конкретного участка с каждого из выбранных участков на полевом участке Йенского эксперимента. Наполните почву в пластиковые ящики объемом 20 л и храните при температуре 4 °C до использования для выращивания растений.
- Просейте почву для каждого участка через ячейку толщиной 4 мм. Перед просеиванием смешайте почву с четырех участков с голой землей.
- Чтобы удалить нежелательную биоту, переложите кварцевый песок в контейнеры из нержавеющей стали и нагрейте в сушильном шкафу в течение 4 часов при температуре 200 °C.
- Смешайте почву для конкретного участка и кварцевый песок по объему в соотношении 3:1 и заполните почвенно-песчаную смесь в многогоршковые пластины с помощью пластиковой лопаты (всего n = 152).
- Промаркируйте каждую плиту мультигоршка по отдельности и поместите их в теплицу с циклом день-ночь 16 ч/18 °C и 8 ч/12 °C, поддерживая умеренную влажность 60%-70% относительной влажности (RH).
- Поливайте тарелки по требованию и держите их голыми в течение двух недель, чтобы почва дала семенным банкам прорасти. Дважды пропалывайте все пластины, чтобы удалить нежелательную рассаду.
- Посевная кампания (март-апрель 2022 г.)
- Определите порядок посева в зависимости от времени прорастания для конкретного вида следующим образом:
- Сеют R. acris за 2 недели до применения других трав
- Сеют P. lanceolata и L. vulgare на 1 неделю раньше трав A. odoratum, D. glomerata и H. lanatus.
- Высевайте все виды, кроме R. acris, непосредственно в почвенно-песчаный субстрат для конкретного участка (3:1) в многогоршковые пластины по два-три семени в горшке. После успешного прорастания проредите все виды до одиночных сеянцев с помощью пинцета из пружинной стали.
- Предварительно обработайте семена R. acris в чашках Петри на фильтровальной бумаге, смоченной раствором гиббереллиновой кислоты (1000 мг. L−1) для выхода из состояния покоя (рисунок 2D). Инкубируйте семена в течение 24 ч.
- Переложите семена R. acris на фильтровальную бумагу, смоченную деминерализованной водой (VE) до появления всходов. Как только семена достигнут стадии корешка, проколите рассаду в почвенно-песчаный субстрат для конкретного участка (3:1) в подготовленных многогоршковых пластинах с помощью пинцета из пружинной стали.
- Поливайте всех особей растений деионизированной водой по требованию и храните их в теплице до транспортировки в iDiv Ecotron (Рисунок 2E-H)
- Определите порядок посева в зависимости от времени прорастания для конкретного вида следующим образом:
- Посадочная кампания (май 2022)
- Проектирование индивидуальных схем посадки для всех почвенных монолитов со следующими характеристиками:
- Обеспечение сбалансированного числа особей на вид в пределах растительных сообществ.
- Соблюдайте дистанцию 6 см между каждым растением и его соседом.
- Рандомизируйте схему посадки по экоединицам, но сохраняйте ее постоянной в пределах подединиц.
- С помощью изготовленного на заказ трафарета для посадки отметьте точное положение каждого растения в отдельности на монолитах почвы. Для маркировки используйте пластиковые зубочистки разного цвета, присваивая каждому виду определенный цвет. После разметки снимите трафарет (рисунок 2I).
- Предварительно выращенные растения высадить на все монолиты почвы в течение одной недели с помощью луковичных сеялок диаметром 4 см (всего 5280 особей растений; Рисунок 2J).
- Проектирование индивидуальных схем посадки для всех почвенных монолитов со следующими характеристиками:
3. Ход эксперимента
- Трехнедельный этап становления (май 2022 г.):
- Замените всех особей, которые не пережили посевную кампанию в течение 2 недель после первоначальной посадки (n = 124 [2,35%]).
- Включите свет и установите режим освещения на цикл день-ночь 16/8 ч. Чтобы воспроизвести продолжительность дня в регионе в конце весны и летом в начале эксперимента, смоделируйте сумерки, приглушив интенсивность освещения со 100% до 75% в течение одного часа, а затем до 0% в течение следующего часа (интенсивность 100%: ~370 моль/(м²·с)). Имитируйте рассвет, обратив этот шаблон затемнения.
- Выровняйте верхнюю влажность почвы до 20% (± 3%) по объему с помощью набора для измерения влажности почвы.
- Установите начальное орошение на 450 мл каждые 12 ч для каждой субъединицы.
- Подключите датчики воздуха и почвы для контроля температуры и влажности на протяжении всего эксперимента.
- Экспериментальная фаза (июнь-октябрь 2022 г.)
- Следуя естественной сезонности, сокращайте продолжительность дня на целый час каждые 2 недели с августа по октябрь, чтобы учесть продолжительность дня в регионе с конца лета до осени.
- Увеличьте первоначальное орошение до 650 мл каждые 12 часов в июле и до 750 мл каждые 12 часов в августе, приспосабливаясь к потребностям растений в воде.
- Постоянно отсеивайте нежелательную рассаду на стадии семядолей с помощью пинцета, чтобы поддерживать густоту растений и свести к минимуму нарушение структуры почвы.
- В соответствии со стандартом управления для интенсивно обрабатываемых лугов выполнить два сбора надземной биомассы, срезая растения ножницами на высоте 3 см над поверхностью почвы.
Результаты
Чтобы получить первоначальное представление об эффективности этого подхода при тестировании независимых и интерактивных эффектов истории растений и почв на взаимосвязи между биоразнообразием и функционированием экосистемы, мы сначала оценили фотографии двух репрезентативных экоединиц после 3-недельной фазы создания эксперимента JenaTron, где эффекты обработки быстро стали заметны (рис. 3). Помимо различий в высоте и цвете растительного сообщества (рис. 3A), мы также выявили специфические для лечения различия во времени цветения R. acris. В частности, растения, выращенные из семян без истории растений, по-видимому, имели более раннее начало цветения, чем растения, выращенные из семян с историей растений в Йенском эксперименте (рис. 3B).
Чтобы оценить, точно ли вновь созданные сообщества в iDiv Ecotron отражают исходные полевые сообщества, был проведен сравнительный анализ видоспецифичной высоты вегетативных растений в качестве индикатора конечного развития растений между участками JenaTron Experiment и TBE. В эксперименте JenaTron высота растений была определена как среднее значение наивысшего вегетативного листа в три особи на вид растений в каждом из 24 сообществ и комбинаций обработки непосредственно перед первой уборочной кампанией в конце июля 2022 года. В июле 2012 г. в КЭ вегетативная высота растений была определена как среднее значение наивысшего вегетативного листа из трех особей на вид растения и участок. Измерения высоты растений с помощью iDiv Ecotron демонстрируют сильную корреляцию с измерениями, полученными на полевых участках Йенского эксперимента (дополнительный рисунок 1).
Чтобы обеспечить дальнейшее тематическое исследование для анализа данных, была более подробно исследована высота вегетативного растения в iDiv Ecotron. Мы сосредоточились на анализе на уровне видов и сообществ и проверили, влияют ли история растений, история почвы и разнообразие растений на вегетативный рост растений. Для этого мы использовали линейные модели смешанных эффектов (LMM) и обобщили результаты с помощью ANOVA (сумма квадратов типа I; подробные результаты ANOVA см. в дополнительной таблице 1). На уровне участка переменными отклика были средняя вегетативная высота растений и коэффициент вариации высоты растений (CV = sd/среднее 100). Фиксированные эффекты включали разнообразие растений (численное), обработку истории растений и почвы и их взаимодействие. Случайные эффекты включали в себя EcoUnit, вложенный в блок зала Экотрон. На видовом уровне мы дополнительно включили виды и их взаимодействие с растительным разнообразием и историей в фиксированных терминах. Преобразования данных (log для высоты растения и квадратный корень для высоты (CV)) обеспечили выполнение допущений модели. Анализ проводился с использованием R (Версия 4.3.1)42 и пакета nlme для LMM43. Результаты показали значительные видовые различия в высоте растений, причем травы были выше разнотравья (Рисунок 4, Дополнительный рисунок 2). По всем видам история почвы оказала положительное влияние на высоту растений (F(1,66) = 11,11, P = 0,001), в то время как история и разнообразие растений не оказали существенного влияния (F(1,66) = 0,22, P = 0,64 и F(1,17) = 1,52, P = 0,23 соответственно; Рисунок 4). На уровне сообществ разнообразие растений не влияло на высоту (F(1,17) = 0,01, P = 0,91; Рисунок 5А) но значительно увеличилась высота растений CV в пределах сообществ (F(1,17) = 14,29, P = 0,002; Рисунок 5В). Не было обнаружено существенного влияния истории растений или почвы на высоту растений CV (F(1,68) = 0,55; Р = 0,46; F(1,68) = 0,09, P = 0,76; Рисунок 5). Мы загрузили данные и скрипт R в базу данных Jena Experiment (https://doi.org/10.25829/QN9R-J839).

Рисунок 1: Установка эксперимента JenaTron. (A) История почвы (SH) была установлена путем выемки 96 неповрежденных монолитов почвы из Йенского эксперимента (JE), из которых половина (n = 48) была получена с 23 участков, на которых в течение 12 лет проживало сообщество, специфичное для данного участка (+SH), в то время как другая половина (n = 48) была получена с четырех участков голой земли, лишенных растительности с начала Йенского эксперимента в 2002 году (-SH). (B) История растений (PH) была установлена с использованием двух источников семян для каждого из шести видов растений: семян, собранных с растений, выращенных с 2010 года на тех же участках, где монолиты были выкопаны в ходе Йенского эксперимента (+ PH), и исходных семян, использованных для посева этих сообществ в полевых условиях в 2010 году (-PH). (C) История растений и история почвы были независимо скрещены для каждой композиции на разных уровнях разнообразия растений (1, 2, 3 и 6), в результате чего было проведено четыре обработки в каждой экоединице iDiv Ecotron: (1) +SH/+PH, (2) +SH/-PH, (3) -SH/+PH и (4) -SH/-PH. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.

Рисунок 2: iDiv Ecotron на научно-исследовательской станции Центра экологических исследований им. Гельмгольца (UFZ) в Бад-Лаухштедте, Германия. (A) Оборудование для выемки грунта монолита в поле, (B) Выемка грунта монолита в поле, (C) Котлован в поле, (D) Подготовка семенного материала Ranunculus acris в чашках Петри на фильтровальной бумаге, смоченной раствором гиббереллиновой кислоты в теплице, (E) Предварительное выращивание растений с почвенным субстратом для конкретного участка в многогоршковых пластинах в теплице, (F) EcoUnits в зале iDiv Ecotron, (G) Схематическое изображение одной экспериментальной установки («EcoUnit») с техническим оборудованием (адаптировано из Eisenhauer et al. (2019)23 и Schmidt et al. (2021)38), (H) Тарелки со всеми особями, которые будут посажены в эксперименте JenaTron) после транспортировки в iDiv Ecotron, (I) Видоспецифичная маркировка посадочных мест для всех особей растений на почвенном монолите, выполненном с помощью трафарета для посадки, (J) Посадка особей растений на монолит почвы с помощью сеялок для луковиц, (K) Четыре лизиметра в EcoUnit с внутренними стенками. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.

Рисунок 3: Два представителя 24 EcoUnits, каждый из которых содержит по одному сообществу во всех комбинациях обработки растений и почвы. (A) EcoUnit со смесью из 3 видов (A. odoratum, H. lanatus и P. lanceolata) со специфическими для обработки различиями в высоте и цвете растительности сообщества. (B) EcoUnit с монокультурой R. acris, указывающей на различия во времени цветения в зависимости от истории растений. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
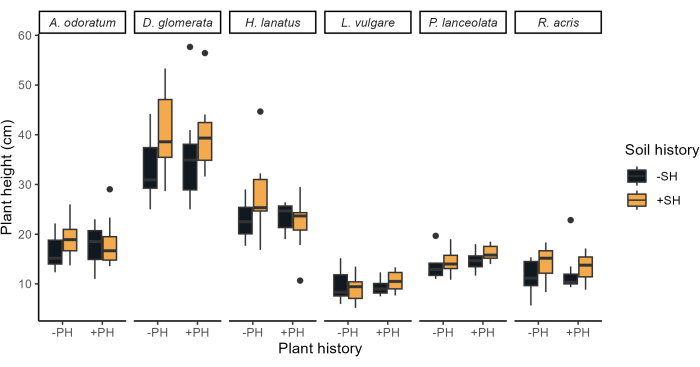
Рисунок 4: Влияние истории растений и почвы на вегетативную высоту растений (см) шести видов луговых растений до первого урожая в июле 2022 года. Виды перечислены в алфавитном порядке внутри функциональных групп (травы, за которыми следуют разнотравье). Обработка истории растений (+PH/-PH) находится на оси x, а история почвы (+SH/-SH) имеет цветовую кодировку (желтый/черный) на коробочных графиках. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
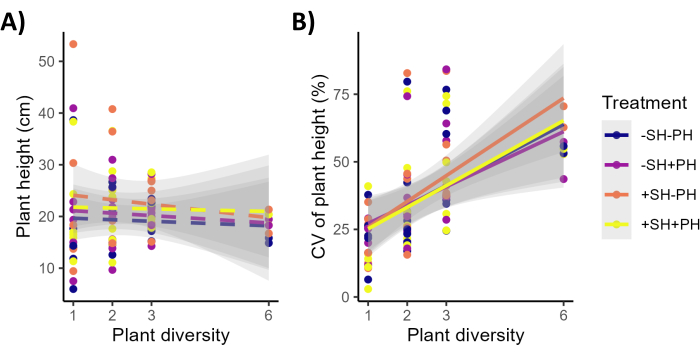
Рисунок 5: Влияние видового богатства на среднее значение по сообществу и изменение высоты вегетативных растений. (A) Среднее значение по сообществу. (B) Изменение высоты вегетативных растений. (+PH/-PH) для истории растений, (+SH/-SH) для истории почвы. Изменение высоты растения (CV) показано для каждой субъединицы. Пунктирные линии обозначают незначительные, сплошные линии представляют значительное влияние на разнообразие растений. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
Таблица 1 Растительные сообщества в эксперименте JenaTron. Монокультуры всех отобранных видов растений (n = 6); 2-видовые смеси (n = 9); 3-видовые смеси (n = 7) все с разным составом; и две идентичные реплики смеси из 6 видов (n = 2). Пожалуйста, нажмите здесь, чтобы скачать эту таблицу.
Дополнительный рисунок 1: Средняя высота растения вида. Средняя высота растений вида на (A) участках эксперимента JenaTron (июль 2022 г.) и на полевых участках (B) TBE (июль 2012 г.). В панель А были включены только данные обработки с историей растений и историей почвы. Существует значимая корреляция между высотой растений в эксперименте JenaTron и на полевых участках (корреляция Пирсона r(49) = 0,45, p = 0,0008). Пожалуйста, нажмите здесь, чтобы загрузить этот файл.
Дополнительный рисунок 2: Влияние обработки растений и истории почвы на вегетативную высоту растений (см) шести видов растений на разных уровнях разнообразия растений (SR). Символы условных обозначений +PH и -PH обозначают обработки с историей растений и без нее, в то время как +SH и -SH обозначают обработки с историей почвы и без нее, соответственно. Пожалуйста, нажмите здесь, чтобы загрузить этот файл.
Дополнительная таблица 1: ANOVA является результатом линейных моделей смешанных эффектов, оценивающих влияние разнообразия растений (богатство видов, SR), история почвы (SH) и история растений (PH) на высоту растений как на уровне видов, так и на уровне участка. F-значения и p-значения выводятся для каждого термина. Примечание: numDF и denDF представляют собой числитель и знаменатель степеней свободы для каждого члена модели. P-значения < 0,05 свидетельствуют о статистически значимом влиянии на высоту растения. Пожалуйста, нажмите здесь, чтобы загрузить этот файл.
Дополнительная таблица 2: Надземные и подземные измерения, переменные отклика и методы. Спектр наземных и подземных измерений, переменных отклика и методов, проведенных в эксперименте JenaTron для изучения независимых и интерактивных эффектов истории растений и почвы на взаимосвязи BEF для экосистем в целом. Пожалуйста, нажмите здесь, чтобы загрузить этот файл.
Обсуждение
С помощью эксперимента JenaTron мы предлагаем дополнительный экспериментальный подход к полевому участку32,33 Йенского эксперимента, чтобы улучшить наше механистическое понимание взаимосвязей BEF. Полевой эксперимент позволяет нам изучить долгосрочное влияние истории почвы и истории растений на функционирование экосистемы в реальных условиях окружающей среды, с большими, ненарушенными участками, позволяющими проводить повторные измерения в течение многих лет. Случайно выбранные комбинации видов растений из большого пула видов вдоль хорошо установленного градиента разнообразия растений от монокультур до 60 видов помогают выявить эффекты разнообразия, исключая как можно больше видовоспецифичных эффектов32,33. Тем не менее, полевой эксперимент, прямо ссылаясь здесь на «Эксперимент ΔBEF» как часть Йенского эксперимента (подробнее см. Vogel et al. (2019)29), ограничен в исследовании истории почвы и истории растений, полностью независимых друг от друга и от потенциального влияния различных внешних факторов, таких как колебания погоды, природные возмущения и взаимодействия с другими организмами29. На этом этапе в центре внимания исследований BEF оказывается дополнительный подход к использованию экспериментов Ecotron. Эксперименты на экотронах представляют собой важное связующее звено между мелкомасштабными, краткосрочными экспериментами на микромире, которые изучают только несколько или даже только один вид и тем самым снижают высокую сложность полевых экспериментов или дажереального мира. Следовательно, основная цель экспериментов «Экотрон» заключается не в том, чтобы имитировать всю сложность природы, а в том, чтобы создать упрощенные, но биологически значимые экосистемы. Это позволяет лучше понять многие, но, конечно, не все, биологические процессы и взаимодействия, происходящие вреальном мире. Кроме того, замкнутые системы экотрона позволяют изучать потоки и процессы, которые часто не могут быть легко изучены в полевыхусловиях.
В предыдущих исследованиях использовались различные модификации экспериментальной методики, что подчеркивает значительную адаптивность установки iDiv Ecotron. Например, эксперимент «Армагеддон насекомых»44, проведенный в 2018 году, включал в себя реконфигурацию EcoUnit путем удаления надземных внутренних стен и подземного рассечения с помощью стальных цилиндров. Вместо этого подземные контейнеры были полностью заполнены почвенно-песчаной смесью, что способствовало созданию лугопастбищных сообществ, состоящих из 12 европейских видов растений, на площади поверхности почвы 1,5м2 на EcoUnit. Этот экспериментальный план позволил ввести два различных уровня численности наземных беспозвоночных, что позволило исследователям изучить воздействие снижения биомассы беспозвоночных на функции и услуги экосистем в экосистемах лугопастбищных угодий Центральной Европы. Еще одним показательным примером является эксперимент «ЭкоЛюкс», проведенный в 2020 году, в котором была продемонстрирована модификация светового режима для изучения влияния светового загрязнения в ночное время суток на разнообразие и продуктивность растений45 , а также его влияния на почвенные сообщества и функции46. Заглядывая в будущее, можно сказать, что потенциал для дальнейших модификаций остается значительным. Предстоящий эксперимент «ResCUE», запланированный на 2026 год, направлен на изучение взаимосвязи между разнообразием растений и стабильностью экосистемы в условиях экстремальныхклиматических условий. Этот эксперимент будет реализовывать стандартизированную жаркую засуху, условия окружающей среды, которые трудно воспроизвести в естественных условиях, путем моделирования уменьшения количества осадков наряду с повышением температуры на градиенте разнообразия луговых растений, установленном в iDiv Ecotron. Основное внимание в исследовании будет уделено оценке устойчивости и восстановления многочисленных функций экосистем в ответ на контролируемое экстремальное климатическое явление26.
Тем не менее, использование установок «Экотрон» для объединения полевых экспериментов и мелкомасштабных экспериментов в микромире также влечет за собой ограничения, такие как в основном относительно небольшой пространственный масштаб, малое количество повторений, более низкая биологическая сложность и недостаточная репрезентация естественной климатической изменчивости. Кроме того, установка iDiv Ecotron не может моделировать все виды климатических сценариев, таких как зима, что ограничивает ее способность изучать отдельные растения в реалистичном годовом цикле на протяжении нескольких поколений. Следовательно, как упоминалось ранее, очень важно рассматривать исследования экотрона как дополнительные исследовательские подходы, которые в конечном итоге должны рассматриваться в сочетании с результатами других экспериментальныхподходов. Тем не менее, установка iDiv Ecotron предоставляет нам уникальную возможность изучать монолиты нетронутой почвы в контролируемых условиях окружающей среды, ортогонально скрещивать растения с разной историей растительных сообществ с почвами с разной историей растительных сообществ и изучать их влияние на функционирование экосистемы вдоль градиента разнообразия растений, что трудно достичь в полевых условиях23. 35. Кроме того, этот метод позволяет изучать растения в целом, как надземные, так и подземные, в контролируемых условиях окружающей среды, что нелегко достижимо в полевых условиях. Наконец, в эксперименте JenaTron посаженные (а не посеянные) растительные сообщества были созданы для обеспечения равной общей плотности растений, при этом каждый вид был представлен в равных пропорциях. Напротив, в засеянных сообществах виды часто укореняются с разной скоростью, и некоторые целевые виды могут не приживаться полностью или оставаться на очень низкой численности.
Чтобы обеспечить воспроизводимость представленного протокола, необходимо тщательно продумать несколько критических этапов во время выполнения: (1) Выемка монолита из грунта: Одним из ключевых преимуществ установки iDiv Ecotron является ее способность создавать значительное количество реплик неповрежденных монолитов почвы в контролируемых условиях окружающей среды. Для обеспечения целостности монолитов грунта важно поддерживать оптимальные полевые условия для извлечения монолитов грунта. В частности, чрезмерная влажность почвы может привести к уплотнению почвенного столба, в то время как слишком сухая или замерзшая почва может привести к образованию трещин. В тех случаях, когда монолит находится под угрозой из-за этих факторов, его необходимо выбросить, что требует повторения процесса раскопок. (2) Выбор видов: В описанном протоколе используются шесть видов луговых растений КЭЭ, которые были отобраны на основе совпадения с основным экспериментом, сбалансированного представления трав и разнотравья, а также возможности изучения различных стратегий использования ресурсов (например, фенологии растений)41. Для эксперимента по биоразнообразию шесть видов являются небольшим числом видов, и отбор других видов, обладающих другими комбинациями признаков, может привести к различным экспериментальным результатам и должен быть тщательно рассмотрен. (3) Плотность растений и равные пропорции всех видов: Заметным преимуществом эксперимента JenaTron является то, что растительные сообщества формируются с одинаковой общей плотностью растений и что каждый вид представлен одинаковым количеством особей. Обеспечение постоянной плотности посадки и равных пропорций посадки имеет решающее значение для экспериментальной воспроизводимости, поскольку это предотвращает смешивающие эффекты, связанные с дифференциацией укоренения отдельных видов. Следовательно, точный контроль плотности растений имеет важное значение для сохранения плана эксперимента и обеспечения надежных результатов.
После начала эксперимента JenaTron в соответствии с протоколом с особым акцентом на рассмотрение упомянутых наиболее важных шагов, быстро проявились заметные эффекты обработки на высоту растительного сообщества, цвет и время цветения. Последующий сравнительный анализ высот вегетативных растений между JenaTron и TBE ясно подтвердил, что сообщества, созданные в iDiv Ecotron, действительно напоминают первоначальные сообщества в полевых условиях. Чтобы в дальнейшем предоставить тематическое исследование для анализа данных, мы более подробно проанализировали высоту вегетативного растения в эксперименте JenaTron. Анализ видоспецифичной высоты вегетативных растений в JenaTron подтвердил успешное приживание всех целевых видов и выявил значительные различия между видами и функциональными группами. Этот результат ожидаем, так как известно, что травы вырастают выше, чем другие функциональные группы в Йенском эксперименте47. Значительный положительный эффект истории почвы был обнаружен у всех видов, что указывает на то, что предшествующие почвенные условия формируют рост растений в Экотроне, что может быть обусловлено положительными эффектами обратной связи от почв, в которых ранее существовало растительное сообщество (независимо от уровня разнообразия), и отрицательной обратной связью от почв, свободных от растительности. Биотические и абиотические свойства истории почвы, по-видимому, различаются, что дает растениям в почвах с историей, специфичной для растительного сообщества, преимущество перед растениями на почвах без соответствующей истории, поскольку высота растений играет важную роль в их способности конкурировать за свет и, таким образом, является жизненно важным признакомдля прироста углерода. Напротив, не было обнаружено существенного влияния истории растений, специфичной для растительных сообществ, на среднюю высоту вегетации, что означает, что свойства почвы могут оказывать более сильное влияние, чем источники семян, в условиях окружающей среды экотрона. Тем не менее, эту гипотезу необходимо проверить целостным образом, исследуя множество функций экосистемы, которые были измерены в эксперименте JenaTron.
Ни видоориентированный, ни популяционный анализ не предоставили доказательств того, что видовое богатство влияет на среднюю высоту вегетативных растений, в отличие от предыдущих результатов полевого эксперимента, где высота растений увеличивалась с более высокими видами49, вероятно, из-за более сильной конкуренции света47,50. Большая взаимодополняемость между видами в более разнообразных сообществах может привести к более высокой плотности растений51, потенциально дополнительно увеличивая рост высоты растений52. Таким образом, отсутствие влияния разнообразия растений на высоту растений в эксперименте JenaTron может быть связано с отсутствием зависящих от биоразнообразия вариаций плотности растений, что указывает на потенциальную важность этого механизма для зависящей от разнообразия индивидуальной производительности растений в реальном мире. Тем не менее, видовое богатство оказало значительное влияние на высоту растений CV, предполагая, что разнообразие растений увеличивает структурную сложность растительности, что согласуется с исследованиями, связывающими разнообразие с более сложными надземными пологами 49,50,52,53,54.
В совокупности результаты подтверждают успешное внедрение целевых методов лечения в рамках эксперимента JenaTron, что дает первое представление об эффективности нашего подхода за счет быстрого проявления значительных эффектов лечения (Рисунок 3, Рисунок 4 и Рисунок 5). Кроме того, сравнительный анализ высоты вегетативных растений для конкретных видов показывает, что вновь созданные сообщества в iDiv Ecotron действительно напоминают первоначальные полевые наблюдения. Подробный анализ высоты вегетативных растений служит тематическим исследованием для анализа данных и визуализации переменных с одним откликом. Тем не менее, это тематическое исследование подчеркивает ограниченность сосредоточения внимания на одной переменной отклика при целостном рассмотрении всеобъемлющей гипотезы о том, связано ли укрепление взаимосвязи между биоразнообразием и функционированием экосистемы с течением времени историей почвы, историей растений или комбинацией того и другого. Это подчеркивает важность нашего совместного подхода к исследованию независимых и интерактивных эффектов истории растений и истории почв на взаимосвязи BEF23. Одиннадцать подпроектов Йенского экспериментального исследовательского центра (FOR 5000) тесно сотрудничали друг с другом в рамках эксперимента JenaTron, измеряя широкий спектр переменных отклика в различных областях исследований, таких как микробиология, химическая экология, фенология, проксимальное зондирование, генетика, эпигенетика, экология почвы и моделирование пищевых сетей. Эта интегративная работа направлена на (1) отделение эффектов истории растений от воздействия истории почвы на многочисленные трофические уровни и функции экосистемы, (2) исследование видовых эффектов растений и взаимодействий на всех уровнях видового богатства растений, и (3) изучение основных механизмов взаимоотношений BEF23(Дополнительная таблица 249, 50,55,56,57,58,59,60,61,62,63,64,65,66,67,68,69,70,71,72,
73,74,75,76,77,78,79,80,81,82,83,84).
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
Исключительная благодарность выражается Л. Букману, Т. Майеру, Н. Надери и Л.-М. Уолтеру за их поддержку в качестве научных ассистентов на протяжении всего эксперимента JenaTron. Большое спасибо всем сотрудникам компании Umwelt-Geräte-Technik GmbH (UGT) за профессиональное и теплое сотрудничество во время выемки грунта монолита в рамках Йенского эксперимента. Мы также хотели бы поблагодарить К. Лаутервассера, H.-C. Шульц и Р. Видувилс за поддержку UGT при выемке грунта монолита. Выражаем огромную благодарность техническому персоналу Йенского эксперимента С. Айсману, Ф. Фретеру, Г. Кратчу, У. Кёберу, К. Кунце и Х. Шеффлеру за их поддержку в полевых условиях и их усердную помощь во время посевной кампании на iDiv Ecotron. Мы благодарны И. Мербаху и техническому персоналу научно-исследовательской станции Центра экологических исследований им. Гельмгольца (UFZ) в Бад-Лаухштедте, особенно О. Беднорцу и К. Киршу, за их жизненно важную поддержку. Мы хотим поблагодарить А.К. Барта и Р. Альтмана за их отличное сотрудничество в теплице iDiv. Большое спасибо С. Хенцелю, А. Лохнеру и А. Цойнеру за их незаменимую помощь в управлении, организации и лабораторной работе. Мы благодарим стипендиатов Меркатора Д. Кавендер-Бареса, Ф. Исбелла, Л. Моммера и К. Мюллера, а также близкого соратника Б. Шмида и главных исследователей У. Брозе, Х. Шилзета, Н. ван Дама, В. В. Вайссера, К. Вирта и Й. Вольфа за их важный вклад в концепцию, планирование и реализацию эксперимента JenaTron. Наконец, мы благодарим Немецкое научно-исследовательское общество (DFG) за финансовую поддержку (FOR 5000), а также Немецкий центр интегративных исследований биоразнообразия (iDiv, финансируемый Немецким научно-исследовательским обществом [DFG-FZT 118, 202548816]), Лейпцигский университет, Йенский университет имени Фридриха Шиллера и Институт биогеохимии им. Макса Планка в Йене за финансовую и логистическую поддержку.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Сеялка для луковиц ( 4 см в диаметре) | Kent & Хозяйственный магазин Stowe | https://www.bauhaus.info/gartenhandgeraete/kent-stowe-hand-blumenzwiebelpflanzer/p/27516825?cid=SSAGoo 8995092923_90652787883& gad_ источник=1& gclid=CjwKCAiAqNSs BhAvEiwAn_tmxcMcdbxDo72K6g O6FX7hNePwWoc_8JIcgwA4qrY sbv-diJjHf_osDhoCXxEQAvD_BwE | |
| Соединитель всасывающей свечи | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Лоток для выращивания ( без дренажа) | Бонсай-шоппинг | 59000/5-m.D._1 | https://www.bonsai-shopping.eu/Anzuchtschale-59000-5er.html |
| Деминерализованная вода (VE) | Alfiltra | VEWA1000B | https://www.alfiltra.de/zubehoer/1000-liter-ve-wasser-im-ibc-behaelter |
| Клейкая лента | хозяйственного магазина | T-Rex | https://www.bauhaus.info/panzertape/t-rex-gewebeband/p/25421491?cid=SSAGoo8843016955_1500 14388930& gad_source=1& gclid= CjwKCAiAqNSsBhAvEiwAn_tmxX 5KDl2CRPyAgi7nx2ILVTSy7dUfNY 2DvvCi0ZvtnU8opjA-stwmvRoCflwQAvD_BwE |
| iDiv Ecotron | iDiv | n.a.https://www.idiv.de/en/research/platforms-and-networks/idiv-ecotron.html | |
| Пластиковые ящики (20 л) | Auer Packaging | EG 43/22 HG | https://www.auer-packaging.com/de/de/Eurobeh%C3%A4lter-geschlossen/EG-4322-HG.html?customer_type=private&gad_source =1& gclid=Cj0KCQjw4Oe4BhCc ARIsADQ0csk38dwQfgiSU63e KE-xapuDT3f2f6EpzwKCJdjknbGP NbEwv4iOg0YaApUKEALw_wcB |
| Фильтровальная бумага (диаметр 150 мм) | Labsolute | 7697996 | https://www.thgeyer.com/lab/shop/qualitativ-rundfilter-sorte-2005/labsolute-/7697990_de?variant=7697996 |
| Вилочный погрузчик | NEW-10084 | https://www.hirsch.expert/elektro-gabelstapler-2-tonnen_1794_13098/?gad_source=1&gclid=Cj0KCQjw4O e4BhCcARIsADQ0csmqfjWn 46WlTGVGnZDoDv4WkqUh WT0eYrsGnvIWcjemrOYCp 3c3QC4aAn3WEALw_wcB | |
| Gibberellic acid ( 90%) | Rotichrom | 7697996 | https://www.carlroth.com/de/de/weitere-vergleichssubstanzen/gibberellinsaeure/p/7464.2 |
| Мерные кувшины ( 3000 мл) | Hü Хозяйственный магазин Nersdorff | https://www.hornbach.de/p/messkanne-3000-ml-huenersdorff/6481831/ | |
| Мерные кувшины ( 5000 мл) | Hü Хозяйственный магазин Nersdorff | https://www.hornbach.de/p/messkanne-5000-ml-huenersdorff/6481832/ | |
| Металлические сита (размер ячеек 4 мм) | Blau-Metall | 711082 | https://analysensiebe.de/shop/produkt/analysensieb-400-maschenweite-2000/ |
| Мини-экскаватор | Zeppelin Cat | ZCS196577 | https://www.zeppelin-cat.de/shop/produkte/minibagger-kaufen/cat-301-8-minibagger-inkl-loeffel-und-schnellwechsler/?srsltid=AfmBOoqOG9_VONO0EmP<чел/> K0GAYEr1onMxM-v3YyM 14hZFK0i9YHXJ_0ddggcs |
| Ванны для раствора ( 90 л) | Магазин скобяных изделий | Gripline https://www.hornbach.de/p/moertelkuebel-pe-eckig-78-5-x-46-3-x-31-0-cm-90-l/274293/ | |
| Планшеты для мультигоршков (QuickPotPlates - QP 96T) | Herkuplast | 741238 | https://www.meyer-shop.com/product/view/37052?variantProductId=29253 |
| Чашки Петри (диаметр 150 мм) | Labsolute | 7696412 | https://www.thgeyer.com/lab/shop/petrischalen-ps-mit-nocken--aseptis/labsolute-/7696390_de?variant=7696412 |
| Трафарет для посадки (на заказ) | UFZ | n.a. | Трафарет для посадки, изготовленный мастерской Центра экологических исследований им. Гельмгольца (UFZ), г. Лейпциг, Германия, специально для посадки металлических цилиндров iDiv Ecotron. |
| Пластиковая фольга | Cargo Point | хозяйственного магазина | https://www.hornbach.de/p/cargo-point-stretchfolie-0-50-x-300-m-20/7152950/ |
| Лопаты пластиковые | Hü Хозяйственный магазин Nersdorff | https://www.hornbach.de/p/abfuellschaufel-huenersdorff-1390-ml/6481824/ | |
| Напорный распылитель (1500 мл) | Bü Ркл | 9223162 | https://shop.thgeyer-lab.com/erp/catalog/search/search.action?model.query=9223162 |
| Порошок | кварца Quarzsande | n.a.https://quarzsand-shop.de/p/quarzmehl-25-kg-papier-sack-feinpulverig?srsltid=AfmBOoptmSFCMO-9KTIKo< | br/> StSkd6aV2OobmBa2__ UUcpYHXJisHGdq0JG |
| Кварцевый песок HQS (размер 0,3 - 0,8 мм) | Quanzsande | WMQ-10040 | https://quarzsand-shop.de/p/quarzsand-hqs?variant=1185 |
| Уплотнительные заглушки | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Семенной материал | Rieger-Hofmann GmbH | n.a.https://www.rieger-hofmann.de/startseite-rieger-hofmann.html | |
| Набор для измерения влажности почвы (ML3 ThetaKit) | Delta-T Devices | ML3 ThetaKit | https://delta-t.co.uk/product/ml3/ |
| Экстракция монолита почвы аппарат | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Датчики почвы ( СМТ-100) | Truebner GmbH | SMT-100 | https://www.truebner.de/en/smt100.php#scroll-target |
| Пинцет из пружинной стали (105 мм) | Roth | AL99.1 | https://www.carlroth.com/de/de/spezialpinzetten-wafer-hakenpinzetten/federstahlpinzette/p/al99.1 |
| Лезвие из нержавеющей стали (на заказ) | UFZ | n.a.Лезвие | из нержавеющей стали изготовлено мастерской Центра экологических исследований им. Гельмгольца (UFZ), Бад-Лаухстä dt, Германия, специально для установки датчиков почвы в металлические цилиндры iDiv Ecotron. |
| Цилиндр из нержавеющей стали | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Наклеиваемые этикетки (12 см x 2 см) | Meyer | 160140 | https://www.meyer-shop.com/product/view/36273?variantProductId=31841 |
| Подвеска | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Временная верхняя/нижняя плита | Umwelt Gerä te Technik (UGT) | 1871000 | https://ugt-online.de/en/solutions/ugt-lysimeter-sampling-technology-for-mineral-soils/ |
| Зубочистки | Bü roshop24 | 269946 | https://www.bueroshop24.de/500-papstar-party-picker-drop-kunststoff-269946?srpId=c8e0fcec04cb5e7e68a9bfe94 096A8AA& storeType=B2C& lkz= 1131602& obt=20& kwdid=54 40413105-16705681638-135 559674952-pla-32800987645 8& gad_source=1& gclid=CjwK CAiAqNSsBhAvEiwAn_tmxfR EZBIPohPHqFs2n6v_elmZTx L6QgkYdjBjMgZ2eYONmM05 Иво-CRoCfWsQAvD_BwE |
| Мастерок | хозяйственного магазина | Кауфмана | https://www.hornbach.de/p/berner-edelstahl-putzkelle-kaufmann-mit-softgriff/7940328/?marketNo=566&wt_mc=de.paid.sea. google.alwayson_assortment.bod. pla.868482949.79838688391.& wt _cc1=868482949& wt_cc2=798386 88391& wt_cc3=377419910580& wt _cc4=& wt_cc6=7940328& wt_cc7= 566& gad_source=1& gclid=Cj0KCQ jw4Oe4BhCcARIsADQ0cslOTaWzp RLoaIVADaAOi5ZcHJEtFbKXvXJU ocTnzbhZTWgEUTlXr0waAp1q EALw_wcB |
| Truck | Europcar | n.a.https://www.europcar.de/de-de/reservation/vehicles?utm_source=google&utm_medium | = cpc& utm_campaign& utm_term и gad_source=1& gclid=Cj0KCQjw4 Oe4BhCcARIsADQ0csn2Ph3mak wxbwrSHzKvJNJq9jaD-aiUvo8-4l RdCaUy8Gw_hgNW6KsaAiR2 EALw_wcB& gclsrc=aw.ds& vehicle Тип=TR& pickupLocation=ZJSC04 & dropoffLocation=ZJSC04& pickupYe ar=2024& pickupMonth=12& самовывоз<чел/> День=11& dropoffYear=2024& dropoff Месяц=12& dropoffDay=18& пикап<чел/> час=10& pickupMinute=00& высадка<чел/> час=18& dropoffMinute=00& водитель Возраст = 26& countryOfResidence=DE |
| Пинцет | Bochem Instrumente | 9171013 | https://www.thgeyer.com/lab/shop/pinzette-105-mm-18/10-stahl/bochem-instrumente-1000/9171010_de?variant=9171013 |
| Зонды для всасывания воды | Umwelt Gerä te Technik (UGT) | 1211000 | https://ugt-online.de/en/solutions/ugt-suction-probe-with-ceramic-cup/ |
| Древесина для сенсорного бревна | Konsta | хозяйственного магазина | https://www.hornbach.de/p/konsta-konstruktionsvollholz-40x60x3000-mm-fichte-nsi-nicht-sichtbarer-einbau/8465807/ |
Ссылки
- Cardinale, B. J., et al. Biodiversity loss and its impact on humanity. Nature. 486 (7401), 59-67 (2012).
- Eisenhauer, N., et al. Chapter One - A multitrophic perspective on biodiversity-ecosystem functioning research. Adv Ecol Res. 61, 1-54 (2019).
- Reich, P. B., et al. Impacts of biodiversity loss escalate through time as redundancy fades. Science. 336 (6081), 589-592 (2012).
- Meyer, S. T., et al. Effects of biodiversity strengthen over time as ecosystem functioning declines at low and increases at high biodiversity. Ecosphere. 7 (12), e01619(2016).
- Guerrero-Ramírez, N. R., et al. Diversity-dependent temporal divergence of ecosystem functioning in experimental ecosystems. Nat Ecol Evol. 1 (11), 1639-1642 (2017).
- Huang, Y., et al. Impacts of species richness on productivity in a large-scale subtropical forest experiment. Science. 362 (6410), 80-83 (2018).
- Bongers, F. J., et al. Functional diversity effects on productivity increase with age in a forest biodiversity experiment. Nat Ecol Evol. 5 (12), 1594-1603 (2021).
- Wagg, C., et al. Biodiversity-stability relationships strengthen over time in a long-term grassland experiment. Nat Commun. 13 (1), 7752(2022).
- Lange, M., Eisenhauer, N., Chen, H., Gleixner, G. Increased soil carbon storage through plant diversity strengthens with time and extends into the subsoil. Glob Change Biol. 29 (9), 2627-2639 (2023).
- Eisenhauer, N., Reich, P. B., Scheu, S. Increasing plant diversity effects on productivity with time due to delayed soil biota effects on plants. Basic Appl Ecol. 13 (7), 571-578 (2012).
- Fornara, D. A., Tilman, D. Plant functional composition influences rates of soil carbon and nitrogen accumulation. J Ecol. 96 (2), 314-322 (2008).
- Leimer, S., et al. Mechanisms behind plant diversity effects on inorganic and organic N leaching from temperate grassland. Biogeochemistry. 131 (3), 339-353 (2016).
- Dietrich, P., Eisenhauer, N., Roscher, C. Linking plant diversity-productivity relationships to plant functional traits of dominant species and changes in soil properties in 15-year-old experimental grasslands. Ecol Evol. 13 (3), e9883(2023).
- Roscher, C., et al. A functional trait-based approach to understand community assembly and diversity-productivity relationships over 7 years in experimental grasslands. Perspect Pl Ecol Evol Syst. 15 (3), 139-149 (2013).
- Zuppinger-Dingley, D., Schmid, B., Petermann, J. S., Yadav, V., De Deyn, G. B., Flynn, D. F. B. Selection for niche differentiation in plant communities increases biodiversity effects. Nature. 515 (7525), 108-111 (2014).
- Latz, E., et al. Plant diversity improves protection against soil-borne pathogens by fostering antagonistic bacterial communities. J Ecol. 100 (3), 597-604 (2012).
- Barnes, A. D., et al. Biodiversity enhances the multitrophic control of arthropod herbivory. Sci. Adv. 6 (45), eabb6603(2020).
- Huang, Y., et al. Effects of enemy exclusion on biodiversity-productivity relationships in a subtropical forest experiment. J Ecol. 110 (9), 2167-2178 (2022).
- Wan, N. -F., et al. Species richness promotes plant productivity by suppressing plant antagonists. Research Square. , (2023).
- Schnitzer, S. A., et al. Soil microbes drive the classic plant diversity-productivity pattern. Ecology. 92 (2), 296-303 (2011).
- Kulmatiski, A., Beard, K. H., Heavilin, J. Plant-soil feedbacks provide an additional explanation for diversity-productivity relationships. Proc Biol Sci. 279 (1740), 3020-3026 (2012).
- Mommer, L., et al. Lost in diversity: the interactions between soil-borne fungi, biodiversity and plant productivity. New Phytol. 218 (2), 542-553 (2018).
- Eisenhauer, N., et al. Biotic interactions, community assembly, and eco-evolutionary dynamics as drivers of long-term biodiversity-ecosystem functioning relationships. Res Ideas Outcomes. 5, e47042(2019).
- Thakur, M. P., et al. Plant-soil feedbacks and temporal dynamics of plant diversity-productivity relationships. Trends Ecol Evol. 36 (7), 651-661 (2021).
- Eisenhauer, N. Aboveground-below-ground interactions as a source of complementarity effects in biodiversity experiments. Plant Soil. 351 (1), 1-22 (2012).
- Eisenhauer, N., et al. The multiple-mechanisms hypothesis of biodiversity-stability relationships. Basic Appl Ecol. 79, 153-166 (2024).
- Bever, J. D. Soil community feedback and the coexistence of competitors: conceptual frameworks and empirical tests. New Phytol. 157 (3), 465-473 (2003).
- Schmid, M. W., Hahl, T., van Moorsel, S. J., Wagg, C., De Deyn, G. B., Schmid, B. Feedbacks of plant identity and diversity on the diversity and community composition of rhizosphere microbiomes from a long-term biodiversity experiment. Mol Ecol. 28 (4), 863-878 (2019).
- Vogel, A., et al. A new experimental approach to test why biodiversity effects strengthen as ecosystems age. Adv Ecol Res. 61, 221-264 (2019).
- Dietrich, P., Eisenhauer, N., Otto, P., Roscher, C. Plant history and soil history jointly influence the selection environment for plant species in a long-term grassland biodiversity experiment. Ecol Evol. 11 (12), 8156-8169 (2021).
- van Moorsel, S. J., et al. Co-occurrence history increases ecosystem stability and resilience in experimental plant communities. Ecology. 102 (1), e03205(2021).
- Roscher, C., et al. The role of biodiversity for element cycling and trophic interactions: an experimental approach in a grassland community. Basic Appl Ecol. 5 (2), 107-121 (2004).
- Weisser, W. W., et al. Biodiversity effects on ecosystem functioning in a 15-year grassland experiment: Patterns, mechanisms, and open questions. Basic Appl Ecol. 23, 1-73 (2017).
- Lawton, J. H., et al. The Ecotron: a controlled environmental facility for the investigation of population and ecosystem processes. Philos Trans R Soc Lond B Biol Sci. 341 (1296), 181-194 (1993).
- Milcu, A., et al. Functional diversity of leaf nitrogen concentrations drives grassland carbon fluxes. Ecol Lett. 17 (4), 435-444 (2014).
- Rineau, F., et al. Towards more predictive and interdisciplinary climate change ecosystem experiments. Nat Clim Chang. 9 (11), 809-816 (2019).
- Roy, J., et al. Ecotrons: Powerful and versatile ecosystem analysers for ecology, agronomy and environmental science. Glob Change Biol. 27 (7), 1387-1407 (2021).
- Schmidt, A., et al. The iDiv Ecotron-A flexible research platform for multitrophic biodiversity research. Ecol Evol. 11 (21), 15174-15190 (2021).
- Eisenhauer, N., Türke, M. From climate chambers to biodiversity chambers. Front Ecol Environ. 16 (3), 136-137 (2018).
- Eisenhauer, N., et al. Ecosystem consequences of invertebrate decline. Curr Biol. 33 (20), 4538-4547.e5 (2023).
- Ebeling, A., et al. A trait-based experimental approach to understand the mechanisms underlying biodiversity-ecosystem functioning relationships. Basic Appl Ecol. 15 (3), 229-240 (2014).
- R: A Language and Environment for Statistical Computing. , R Core Team. Available from: https://www.R-project.org/ (2023).
- Theory and Computational Methods for Nonlinear Mixed-Effects Models. Mixed-Effects Models in S and S-PLUS. Statistics and Computing. , Springer. New York, NY. (2000).
- Ulrich, J., et al. Invertebrate decline leads to shifts in plant species abundance and phenology. Front Plant Sci. 11, 542125(2020).
- Bucher, S. F., et al. Artificial light at night decreases plant diversity and performance in experimental grassland communities. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220358(2023).
- Cesarz, S., Eisenhauer, N., Bucher, S. F., Ciobanu, M., Hines, J. Artificial light at night (ALAN) causes shifts in soil communities and functions. Philos Trans R Soc Lond B Biol Sci. 378 (1892), 20220366(2023).
- Schmidtke, A., Rottstock, T., Gaedke, U., Fischer, M. Plant community diversity and composition affect individual plant performance. Oecologia. 164 (3), 665-677 (2010).
- Westoby, M., Falster, D. S., Moles, A. T., Vesk, P. A., Wright, I. J. Plant ecological strategies: Some leading dimensions of variation between species. Annu Rev Ecol Syst. 33 (1), 125-159 (2002).
- Guimarães-Steinicke, C., et al. Biodiversity facets affect community surface temperature via 3D canopy structure in grassland communities. J Ecol. 109 (5), 1969-1985 (2021).
- Roscher, C., et al. Interspecific trait differences rather than intraspecific trait variation increase the extent and filling of community trait space with increasing plant diversity in experimental grasslands. Perspect Pl Ecol Evol Syst. 33, 42-50 (2018).
- Marquard, E., Weigelt, A., Roscher, C., Gubsch, M., Lipowsky, A., Schmid, B. Positive biodiversity-productivity relationship due to increased plant density. J Ecol. 97 (4), 696-704 (2009).
- Lorentzen, S., Roscher, C., Schumacher, J., Schulze, E. -D., Schmid, B. Species richness and identity affect the use of aboveground space in experimental grasslands. Perspect Pl Ecol Evol Syst. 10 (2), 73-87 (2008).
- Williams, L. J., Paquette, A., Cavender-Bares, J., Messier, C., Reich, P. B. Spatial complementarity in tree crowns explains overyielding in species mixtures. Nat Ecol Evol. 1 (4), 1-7 (2017).
- Roscher, C., et al. Using plant functional traits to explain diversity-productivity relationships. PLoS One. 7 (5), e36760(2012).
- Abbas, M., et al. Biodiversity effects on plant stoichiometry. PLoS One. 8 (3), e58179(2013).
- Pérez-Harguindeguy, N., et al. New handbook for standardised measurement of plant functional traits worldwide. Aust J Bot. 61 (3), 167-234 (2013).
- Bassi, L., et al. Uncovering the secrets of monoculture yield decline: trade-offs between leaf and root chemical and physical defence traits in a grassland experiment. Oikos. 2023, e10061(2023).
- Medina-van Berkum, P., et al. Plant geographic distribution influences chemical defences in native and introduced Plantago lanceolata populations. Funct Ecol. 38 (4), 883-896 (2024).
- Motohka, T., Nasahara, K. N., Oguma, H., Tsuchida, S. Applicability of green-red vegetation index for remote sensing of vegetation phenology. Remote Sens. 2 (10), 2369-2387 (2010).
- Yin, G., Verger, A., Descals, A., Filella, I., Peñuelas, J. A Broadband green-red vegetation index for monitoring gross primary production phenology. J Remote Sens. 2022, 9764982(2022).
- Chen, B., Jin, Y., Brown, P. An enhanced bloom index for quantifying floral phenology using multi-scale remote sensing observations. ISPRS J Photogramm Remote Sens. 156, 108-120 (2019).
- Dean, J. M., Mescher, M. C., De Moraes, C. M. Plant dependence on rhizobia for nitrogen influences induced plant defenses and herbivore performance. Int J Mol Sci. 15 (1), 1466-1480 (2014).
- McCormick, A. C., Reinecke, A., Gershenzon, J., Unsicker, S. B. Feeding experience affects the behavioral response of polyphagous gypsy moth caterpillars to herbivore-induced poplar volatiles. J Chem Ecol. 42 (5), 382-393 (2016).
- Waldbauer, G. P. The consumption and utilization of food by insects. Adv In Insect Phys. 5, 229-288 (1968).
- Bachmann, D., Roscher, C., Buchmann, N. How do leaf trait values change spatially and temporally with light availability in a grassland diversity experiment. Oikos. 127 (7), 935-948 (2018).
- van Gurp, T. P., Wagemaker, N. C. A. M., Wouters, B., Vergeer, P., Ouborg, J. N. J., Verhoeven, K. J. F. epiGBS: reference-free reduced representation bisulfite sequencing. Nat Methods. 13 (4), 322-324 (2016).
- Eichenberg, D., Ristok, C., Kröber, W., Bruelheide, H. Plant polyphenols - implications of different sampling, storage and sample processing in biodiversity-ecosystem functioning experiments. J Chem Ecol. 30 (7), 676-692 (2014).
- Scheu, S. Automated measurement of the respiratory response of soil microcompartments: Active microbial biomass in earthworm faeces. Soil Biol Biochem. 24 (11), 1113-1118 (1992).
- Freschet, G. T., et al. A starting guide to root ecology: strengthening ecological concepts and standardising root classification, sampling, processing and trait measurements. New Phytol. 232 (3), 973-1122 (2021).
- Fiore-Donno, A. M., Richter-Heitmann, T., Bonkowski, M. Contrasting responses of Protistan plant parasites and phagotrophs to ecosystems, land management and soil properties. Front Microbiol. 11, 1823(2020).
- Fiore-Donno, A. M., Bonkowski, M. Different community compositions between obligate and facultative oomycete plant parasites in a landscape-scale metabarcoding survey. Biol Fertil Soils. 57 (2), 245-256 (2021).
- Albracht, C., et al. Common soil history is more important than plant history for arbuscular mycorrhizal community assembly in an experimental grassland diversity gradient. Biol Fertil Soils. 60 (4), 547-562 (2024).
- Breitkreuz, C., Herzig, L., Buscot, F., Reitz, T., Tarkka, M. Interactions between soil properties, agricultural management and cultivar type drive structural and functional adaptations of the wheat rhizosphere microbiome to drought. Environ Microbiol. 23 (10), 5866-5882 (2021).
- Barnes, A. D., et al. Energy flux: The link between multitrophic biodiversity and ecosystem functioning. Trends Ecol Evol. 33 (3), 186-197 (2018).
- Gauzens, B., et al. fluxweb: An R package to easily estimate energy fluxes in food webs. Methods Ecol Evol. 10 (2), 270-279 (2019).
- Anderson, J. P. E., Domsch, K. H. A physiological method for the quantitative measurement of microbial biomass in soils. Soil Biol Biochem. 10 (3), 215-221 (1978).
- Pausch, J., et al. Small but active - pool size does not matter for carbon incorporation in below-ground food webs. Funct Ecol. 30 (3), 479-489 (2016).
- Macfadyen, A. Improved funnel-type extractors for soil arthropods. J Anim Ecol. 30 (1), 171(1961).
- Kempson, D., Lloyd, M., Ghelardi, R. A new extractor for woodland litter. Pedobiologia. 3, 1-21 (1963).
- Cesarz, S., Eva Schulz, R., Beugnon, A., Eisenhauer, N. Testing soil nematode extraction efficiency using different variations of the Baermann-funnel method. Soil Org. 91 (2), 61-72 (2019).
- Ohno, T., Sleighter, R. L., Hatcher, P. G. Comparative study of organic matter chemical characterization using negative and positive mode electrospray ionization ultrahigh-resolution mass spectrometry. Anal Bioanal Chem. 408 (10), 2497-2504 (2016).
- Swenson, T. L., Jenkins, S., Bowen, B. P., Northen, T. R. Untargeted soil metabolomics methods for analysis of extractable organic matter. Soil Biol Biochem. 80, 189-198 (2015).
- Steinbeiss, S., Temperton, V. M., Gleixner, G. Mechanisms of short-term soil carbon storage in experimental grasslands. Soil Biol Biochem. 40 (10), 2634-2642 (2008).
- Roth, V. N., et al. Persistence of dissolved organic matter explained by molecular changes during its passage through soil. Nat Geosci. 12, 755-761 (2019).
Перепечатки и разрешения
Теги
