Здесь мы представляем протокол установления клеточной модели болезни Альцгеймера, индуцированной окадаиновой кислотой, в клетках SH-SY5Y, и оценки нейропротективных эффектов гастродина с помощью окислительного стресса и анализа путей AKT/GSK-3β.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Исследовательская статья
Гастродин смягчает гиперфосфорилирование Тау, связанное с изменениями сигнализации AKT/GSK-3β в модели клеток болезни Альцгеймера
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Болезнь Альцгеймера (АД) — это распространённое нейродегенеративное заболевание, для лечения которого в настоящее время существует ограниченное количество эффективных препаратов. Как основной биоактивный компонент, получаемый из Gastrodia elata, Гастродин (GAS) проявил явный терапевтический потенциал для лечения АД; однако молекулярный механизм его действия остаётся неясным. В данном исследовании мы стремимся изучить механизм воздействия GAS на клетки-модели AD. Сетевая фармакология используется для анализа целей и сигнальных путей, на которые влияет GAS при АД. Модель клеток AD создаётся путём индукции человеческих нейробластомы SH-SY5Y клеток с помощью окадаиновой кислоты (OA). Жизнеспособность клеток оценивалась с помощью анализа CCK-8, а уровни SOD, MDA и T-AOC измерялись. Скорость апоптоза была определена с помощью двойного окрашивания Annexin V-FITC/PI, а экспрессия факторов, связанных с апоптозом, а также AKT, GSK-3β, p-Tau (Ser396) и p-Tau (Thr181), была проанализирована с использованием RT-qPCR и методов Western blotting. Анализ фармакологии сети показывает, что GAS обладает потенциалом регулировать клеточный апоптоз и связанные с ним сигнальные пути, включая PI3K/AKT. Наши эксперименты показывают, что GAS может ингибировать уровень MDA, увеличивать T-AOC и SOD в клетках модели AD и снижать апоптоз клеток. Результаты вестерн-блоттинга показывают, что GAS смягчает ингибирующие эффекты OA на экспрессию p-AKT (Ser473) и p-GSK-3β (Ser9). Кроме того, он ослабляет гиперэкспрессию p-Tau (Ser396) и p-Tau (Thr181), подавляет экспрессию Bax и усиливает экспрессию Bcl-2. GAS демонстрирует способность смягчать окислительное стрессовое повреждение, вызванное ОА, и смягчать апоптоз. GAS может подавлять гиперфосфорилирование Tau, которое связано с изменениями сигнального пути AKT/GSK-3β, тем самым оказывая потенциальный нейропротекторный эффект.
Введение
Болезнь Альцгеймера (AD) — это прогрессирующее нейродегенеративное заболевание, характеризующееся преимущественно потерей памяти и когнитивными нарушениями, являющейся самой распространённой формой деменции в мире, составляющей примерно 60–80%случаев 1. Основной патогенез АД остаётся сложным и ещё не полностьюпрояснено 2. Ключевые патологические признаки, наблюдаемые в клинических случаях ДА, включают накопление старческих бляшек (SP) и нейрофибриллярных узлов (NFT) вмозге 3,4. Хорошо известно, что два основных патологических события при АД — это внеклеточное отложение β-амилоидного белка (Aβ) для образования старческих бляшек и внутриклеточная агрегация гиперфосфорилированного белка Тау с образованием нейрофибриллярныхузлов 5,6,7. Кроме того, окислительный стресс и нейровоспаление являются дополнительными факторами, способствующими обострению стадии 8,9,10,11 н.э.
По мере усиления глобальной тенденции старения численность пациентов с деменцией значительновыросла на 12,13 человека. Однако варианты лечения АД остаются ограниченными, преимущественно включая препараты для одной цели, такие как мемантин, донепезил игалантамин 14. Однако их терапевтический эффект в первую очередь паллиативный, а не модифицирующий болезнь, и были отмечены некоторые побочные эффекты, такие как желудочно-кишечные нарушения, головокружение и брадикардия. Поэтому разработка более безопасных и эффективных терапевтических стратегий остаётся важным приоритетомисследований 15,16. Недавно выпущенные моноклональные препараты, такие как Леканемаб, принесли новую надежду пациентам с лёгкой формой АД. Однако их высокие затраты и ограничения не удовлетворяют значительный терапевтический спрос. Профилактика и лечение АД продолжают представлять значительные проблемы17,18. Результаты различных исследований показали, что лекарственные растения, особенно традиционная китайская медицина, обладают многокомпонентным эффектом, воздействующим на множество путей, связанных с нейродегенеративными заболеваниями, такими как AD. Исследования показали, что активные соединения Ganoderma lucidum могут облегчать окислительное повреждение мозговой ткани мышей с АД, подавлять апоптоз, уменьшать некроз нейронов гиппокампа и улучшать когнитивные нарушения19. В исследованиях АД Бао и соавторы использовали сетевую фармакологию для выявления ключевых мишеней астрагалазида IV при воспалении, связанном с АД. Их результаты показали, что рецептор эпидермального фактора роста (EGFR) и интерлейкин-1β (IL-1β) являются ключевыми мишенями, предоставляя потенциальные терапевтические кандидаты и цели для клинического лечения нейродегенеративных заболеваний20. Dartigues и др.21 проанализировали экстракт гинкго билоба и показали, что он оказывает положительное влияние на снижение риска деменции и смертности у пожилых людей. Пациенты, получавшие экстракт гинкго билобы, демонстрировали более низкуюсмертность — 22.
Gastrodia elata, принадлежащая к семейству орхидеевых, — это традиционная китайская трава, съедобная и лечебная. Корневище Gastrodia elata встречается в изобилии в гастродине (GAS), полисахаридах гастродии и алкалоидах. Недавние фармакологические исследования показали, что эти активные соединения обладают эффектами для улучшения памяти и когнитивных функций, а также нейропротекторными свойствами и эффективностью при лечении бессонницы иголовокружения 23. Основным биоактивным соединением Gastrodia elata является GAS, который извлекается из клубня и обладает лечебными свойствами. GAS, также известный как 4-гидроксибензил-спирт 4-O-β-d-глюкозид, относится к классу фенольныхгликозидов 24. Химическая структура GAS показана на рисунке 1, где молекулярная масса составляет 286,278. Относительно низкая молекулярная масса гликозидов и моногликозидов способствует их эффективному проникновению через гематоэнцефалический барьер, что служит фундаментальной основой нейропротективной ролиGAS 25. Кроме того, их высокая всасываемость дополнительно повышаетэффективность 26. В последние годы многочисленные исследования продемонстрировали потенциал ГАС в лечении различных заболеваний мозга, включая27, 28, 29, 30 годы н.э., болезнь Паркинсона (PD)31 и ишемиюмозга 32. ГАС обладает широким спектром фармакологических свойств, включая антиоксидантные, гиполипидемические, противовоспалительные и антивозрастныеэффекты 33,34. Механизм действия включает несколько сигнальных путей, таких как Nrf2, NF-κB и AMPK35. GAS оказывает нейропротекторное действие в мышиной модели неврологического повреждения, вызванного Pb, модулируя путь Wnt/Nrf236, а также проявляет антиапоптотический эффект при лечении нейродегенеративных заболеваний через регуляцию сигнального путиNrf2 37. GAS также оказывал положительное влияние на AD, подавляя экспрессию гиппокампа BACE1 через сигнальный путь 38 — протеинкиназный/эукариотический инициационный фактор-2α (PKR/eIF2α). Кроме того, GAS проявил тормозирующее действие на активацию сигналов NF-κB, вызванную TCDD, тем самым ослабляя апоптоз нейронов PC12 и активациюастроцитов 39.
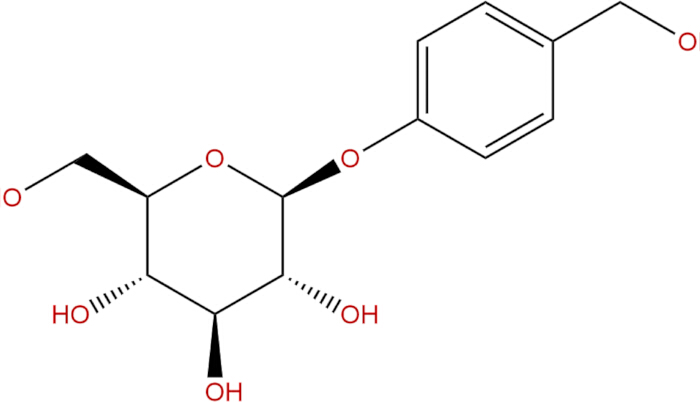
Рисунок 1: Химическая структурная формула GAS. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
ОА, полученный от чёрной губки рода Halichondria, относится к классу длинноцепочечных жирных кислот и является основным компонентом диаретического яда моллюсков (DSP). Он эффективно ингибирует активность белковых фосфатаз, особенно PP1A и PP2A, что приводит к клеточной гиперфосфорилированию и нарушению клеточного гомеостаза40,41. Эта характеристика делает его ценным инструментом для изучения заболеваний, связанных с фосфорилированием белков. Таким образом, использование ОА позволяет создавать модели клеток АД с изменениями фосфорилирования белков Тау. Цель данного исследования — изучить влияние и механизм GAS, основного активного компонента Gastrodia elata, на модель клеток AD, индуцированную ОА, а также прояснить его нейропротективное действие на клетки модели AD путём нацеливания на сигнальный путь AKT/GSK-3β.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Все операции по фармакологии сети проводились в соответствии с Руководящими принципами по методам оценки сетевой фармакологии. Все экспериментальные процедуры проводились в соответствии с требованиями управления лабораторией Чжэцзянского университета наук-технологий.
Сетевая фармакология
Прогноз потенциальных целей GAS: канонический SMILES GAS (PubChem CID: 1150) был извлечен из базы данныхPubChem 42. Структура SMILES была загружена в базу данных SwissTargetPrediction (http://www.swisstargetprediction.ch/)43. Параметр вида был установлен как Homo sapiens. Прогнозируемые цели с вероятностным значением > 0,1 сохранялись для снижения ложноположительных прогнозов. Все предсказанные белковые мишени были стандартизированы по официальным генным символам с помощью базы данныхUniProt 43 (виды, ограниченные Homo sapiens), а дублирующиеся записи были удалены.
Гены, связанные с АД, были собраны из базы данных GeneCards (https://www.genecards.org/)44,45 и базы данных OMIM (https://www.omim.org/)46 с использованием запроса «болезнь Альцгеймера». В GeneCards были отобраны гены с показателем релевантности > 10. Цели, полученные из GeneCards и OMIM, были объединены, дубликаты удалены, а имена генов стандартизированы с помощью UniProt.
Предсказанные мишени GAS и гены, связанные с АД, были импортированы в онлайн-платформу Venny 2.1 для получения перекрывающихся целей. Всего было выявлено 52 пересекающихся гена (см. дополнительную таблицу 1) как потенциальные терапевтические мишени GAS при АД.
52 пересекающихся целей были загружены в базу данных STRING (https://string-db.org/)47 для анализа PPI. Вид был установлен как Homo sapiens, а минимально необходимый балл взаимодействия — 0,4 (средняя уверенность). Отключённые узлы были скрыты. Полученные данные взаимодействия экспортировались и визуализировались с помощью программного обеспечения Cytoscape (версия 3.9.1).
Анализ обогащения GO и KEGG: 52 пересекающихся мишени были загружены в базу данных Metascape (https://metascape.org/)48 для анализа обогащения генной онтологии (GO) и Киотской энциклопедии генов и геномов (KEGG). Вид был настроен на Homo sapiens. Критерии обогащения были определены как p-значение < 0,01, минимальное пересечение ≥ 3 и коэффициент обогащения > 1,5. Пути KEGG были ранжированы по p-значениям, а для визуализации были выбраны 20 наиболее значительных обогащённых путей. Результаты обогащения визуализировались с помощью онлайн-платформы биоинформатики.
Файл структуры белка GSK-3β был получен из базы данных RCSB PDB. Структурный файл GAS в формате SDF был скачан из базы данных PubChem и впоследствии конвертирован в формат Mol2 с помощью программного обеспечения Open Babel. Упомянутые выше файлы были обработаны с помощью программного обеспечения AutoDock для добавления атомов водорода, удаления молекул воды и назначения зарядов. Обработанные файлы впоследствии сохранялись в формате PDBQT. После обнаружения и обработки кручных связей в молекулах лиганда файлы сохранялись в формате PDBQT. Минимальная энергия связи между двумя молекулами была достигнута при выполнении молекулярного стыковки с помощью программного обеспечения AutoDock Vina. Впоследствии результаты стыковки визуализировались и анализировались с помощью PyMOL.
Подготовка бульонного раствора
Порошок OA (25 мкг) полностью растворялся в 1200 мкл 10% диметилсульфоксида (DMSO), приготовленном с использованием стерильного фосфатно-буферного физиологического раствора (PBS) для получения стандартного раствора объемом 25 мкм. Стандартный раствор был аликкотирован и хранён при -80 °C. Перед каждым экспериментом OA свежеразбавлялся полным Modified Eagle Medium (DMEM) от Dulbecco (см. таблицу материалов) до желаемых рабочих концентраций. Порошок GAS (20 мг) растворялся в 1,4 мл стерильного PBS, фильтровался через мембрану диаметром 0,22 мкм для стерилизации и готовился в виде стандартного раствора объёмом 50 мм, который хранился при -20 °C. Перед применением настоящий раствор разбавлялся полным DMEM до указанных рабочих концентраций.
Построение модели ячеек AD
В этом исследовании были получены и использованы человеческие нейробластомы SH-SY5Y (см. таблицу материалов). Клетки SH-SY5Y индуцировались с градиентными концентрациями ОА (0, 10, 20, 40, 80, 160 нм) на протяжении 12, 24 и 36 нМ соответственно, чтобы создать модель клеток AD.
Анализ жизнеспособности клеток
Для определения оптимальной концентрации и продолжительности индукции ОА для установления модели клеток АД клетки SH-SY5Y обработали градиентными концентрациями ОА (0, 10, 20, 40, 80 и 160 нМ) для разных временных периодов (12, 24 и 36 ч), а жизнеспособность клетки оценивалась с помощью анализаCCK-8 49. Клетки SH-SY5Y были засеяны в пластины с 96 лунками при плотности 7,5 × 10³ ячейки на каждую скважину при 100 мкл полного DMEM. Пластины инкубировали при 37 °C в увлажнённом инкубаторе с 5% CO₂ в течение 24 часов, чтобы обеспечить прикрепление клеток. После 24-часового прикрепления в каждую скважину добавляли 100 мкл рабочего раствора ОА для достижения конечных концентраций 0, 10, 20, 40, 80 и 160 нМ при общем объёме 200 мкл на скважину. Контрольная группа (CON) получила равный объём полного DMEM без OA, тогда как OA группа получила OA при указанных концентрациях. Клетки инкубировали в течение 12, 24 или 36 часов в стандартных условиях культуры. Каждая концентрация и точка времени устанавливались шестью копиями. Для коррекции фона были включены три пустых скважины (только средне).
Определение индекса клеточного окислительного стресса
Клетки SH-SY5Y в логарифмической фазе роста были засеяны в пластину с 6 ячелинами. После обработки клетками предыдущая среда была удалена из колодцев. Впоследствии скважины были промыты три раза с предварительно охлаждённым PBS при 4 °C. После этого был добавлен буфер для лизиса клеток, и клетки лизировали на льду соответствующим методом, рекомендованным набором. Содержание белка в образцах было количественно измерено с помощью белкового теста BCA (см. Таблицу материалов). Деятельность T-AOC, SOD и MDA определялась согласно инструкциям, предоставленным в соответствующих наборах для анализов (см. Таблицу материалов).
Обнаружение клеточного апоптоза
Апоптоз клеток оценивался с помощью двойного окрашивающего набора Annexin V-FITC/PI (см. таблицу материалов) согласно инструкциям производителя. Кратковременно были собраны как плавающие, так и прилипшие клетки. Клеечные клетки переваривались с помощью трипсина без ЭДТА для предотвращения искусственного повреждения мембран и комбинировались с плавающими клетками. Клетки дважды промывались холодным PBS и повторно суспендированы в 500 мкл 1× связывающего буфера с плотностью 0,5–1 × 10⁶ клеток.
Впоследствии к каждому образцу добавляли 5 мкл Annexin V-FITC и 5 мкл проидиев йодида (PI), аккуратно смешивали и инкубировали при комнатной температуре в темноте в течение 10–20 минут. Образцы помещались на лёд и анализировались в течение 1 часа с помощью потокового цитометра.
Для цитометрического анализа потока использовались неокрашенные и однократные контроли (только Annexin V-FITC и только PI) для настройки параметров компенсации и квадрантных элементов. Первым был применён фронтальный и боковой рассеяние (FSC/SSC) гейтинг для исключения мусора и элементов. Было получено минимум 10 000 событий на образец. Данные анализировались с помощью программного обеспечения FlowJo.
Количественный анализ ПЦР в реальном времени (RT-qPCR)
Согласно инструкциям, предоставленным набором для обратной транскрипции AG, экстракция РНК подвергалась обратной транскрипции для получения комплементарной ДНК (кДНК), которая затем разбавялась в 10 раз стерильной водой в качестве шаблона. Система реакции RT-qPCR была подготовлена по протоколу комплекта Green Master Mix (No Rox), а анализ проводился с помощью флуоресцентного количественного ПЦР-прибора (см. таблицу материалов). Полученные значения CT были обработаны и проанализированы, а уровни экспрессии целевых генов рассчитаны с помощью метода 2-ΔΔCt, где ΔCt представляет разницу между значениями CT в лечебной группе и GAPDH, а ΔΔCt — разницей между значениями ΔCt в лечебной и контрольной группе. Список праймеров можно найти в Дополнительной таблице 2.
Вестерн-блоттинг-анализ
Буфер лизиса клеток вместе с ингибитором протеазы и ингибитором фосфатазы был комбинирован в соотношении 100:1:1. Клетки лизировали для извлечения клеточных белков. Концентрация белка была определена с помощью набора для анализа BCA. Белки (20–30 мкг на полосу) разделялись на 10% гелях SDS-PAGE при 80 В для стекирующего геля и 120 В для разрешающего геля. Белки переносились на мембраны PVDF (0,45 мкм) при 300 мА в течение 90 минут с использованием влажного переноса. Мембрана была заблокирована 5% обезжиренным молоком при комнатной температуре в течение 2 часов, после чего следовала ночная инкубация первичным антителом (см. таблицу материалов) при 4 °C. После инкубации с вторичным антителом при комнатной температуре в течение 1 часа мембрана была промыта четыре раза с помощью TBST по 5 минут каждая. Полосы визуализировались с помощью реагентов для обнаружения усовершенствованного хемилюминесценции (ECL) (см. таблицу материалов), а обнаружение осуществлялось с помощью гелевой системы визуализации. Значения в оттенках серого анализировались с помощью программного обеспечения ImageJ для анализа данных.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Скрининг, связанный с GAS, для лечения АД
Определение целей GAS для лечения АД включало поиск в базе данных и анализ программного обеспечения. База данных Swiss Target Prediction предоставила 100 потенциальных целей, а OMIM и GeneCards (с показателем релевантности > 10) были запрошены для целей, связанных с AD, в результате чего получилось 2376 потенциальных целей. Впоследствии, использование онлайн-платформы Venny 2.1 позволило выявить 52 потенциальных терапевтически...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
В последние годы во всем мире наблюдается рост распространённости АЦ. Это состояние характеризуется хроническим течением, необратимым характером, инвалидностью и повышенной смертностью, что делает его серьёзной проблемой в условиях старения мирового населения. Несмотря на свою значимость, этиология АД сложна, а его патогенез остаётся неполностьюизученным 51.
Традиционная китайская медицина предлагает значительные преимущества в профилак...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
Это исследование было поддержано Открытым фондом Чжэцзянского научного технологического университета, Шаосинской академией биомедицины (SXAB202007).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Система ПЦР реального времени 7500 | APExBIO | S0080 | Используется для обнаружения апоптотических клеток |
| Инструмент для маркировки ферментов A450 | Proteintech | 50599-2-Ig | WB, разбавление 1:1000 |
| Комплект для обнаружения апоптоза Annexin V-FITC | Proteintech | 60178-1-Ig | WB, разбавление 1:1000 |
| Антитела к Баксу | Proteintech | 10494-1-AP | WB, разбавление 1:1000 |
| Анти-Bcl-2 антитела | Abcam | AB32057 | WB, разбавление 1:1000 |
| Антиантитела к GAPDH | Proteintech | 28866-1-AP | WB, разбавление 1:1000 |
| Анти-p-Tau (Ser396) антитела | Biofroxx | 1172 | Блокирующий буфер для WB |
| Анти-p-Tau (Thr181) антитела | Vazyme Biotech | A311-01/02 | Используется для анализа жизнеспособности клеток |
| Обезжиренное молоко Biofroxx | Solarbio Science & Технологии | D8371 | Растворитель для соединений |
| Комплект CCK-8 | Wisent Biotechnology | 319-105-CL | Для клеточной культуры |
| Диметилсульфоксид (DMSO) | APExBIO (США) | K1231 | Реагент для обнаружения WB |
| Среда с высоким содержанием глюкозы DMEM | Aladdin Biochemical Technology | G111309 | Активное соединение |
| Хемилюминесцентный реагент ECL | Promega | A6101 | Для усиления qPCR |
| Потоковый цитометр | Solarbio Science & Технологии | BC6410 | Анализ переокисления липидов |
| порошок гастродина (GAS), чистота и ге; 98% | MedChemExpress | HY-N6785 | Индуктор гиперфосфорилирования тау |
| Гелевая система визуализации | Beyotime Biotechnology | C0221A | Помой камеры |
| GoTaq qPCR мастер-микс | Proteintech | SA00001-1 | WB, разбавление 1:5000 |
| Набор для анализа MDA (malondialdehyde) | Proteintech | SA00001-2 | WB, разбавление 1:5000 |
| Окадаиновая кислота (ОА) | ATCC | CRL-2266 | Ячейка |
| PBS | Beyotime Biotechnology | S0101M | Для анализа окислительного стресса |
| Вторичные антитела (козлый антимышиный IgG, конъюгированный с HRP) | Solarbio Science & Технологии | 1315 г. до н.э. | Обнаружение антиоксидантной ёмкости |
| Вторичные антитела (козячий антикроличий IgG, конъюгированный с HRP) | Beyotime Biotechnology | R0016 | Экстракция РНК |
| SH-SY5Y | Sigma-Aldrich | 9002-07-7 | Расщепление клеток |
| Набор для анализа SOD (тотальная супероксиддисмутаза) | Термо Фишер Сайентифик | A45072 | Многофункциональный считыватель микропластин для обнаружения поглощения |
| Набор для полного антиоксидантного запаса (T-AOC) | Бектон, Дикинсон и компания | 661310 | Для многопараметрического анализа с одной ячейкой и сортировки ячеек. |
| Реагент тризола | Термо Фишер Сайентифик | 4351104 | Анализ экспрессии генов |
| Трипсин | Био Рад | 1708195 | Визуализация ДНК/РНК/белковых гелей |
Ссылки
- Hu, X., Wang, T., Jin, F. Alzheimer's disease and gut microbiota. Sci China Life Sci. 59 (10), 1006-1023 (2016).
- Qiu, C., Du, Y. A call for action to strengthen research on population interventions against Alzheimer's disease and senile dementia. J Shandong Univ Health Sci. 55 (10), 1-6 (2017).
- Livingston, G., et al. Dementia prevention, intervention,and care: 2020 report of the Lancet Commission. Lancet. 396 (10248), 413-446 (2020).
- Li, T. F., Guo, Z. Q., Wang, Y. Abnormal ß-amyloid metabolism and Alzheimer disease. J Neurosci Ment Health. 22 (12), 904-908 (2022).
- Zheng, J., et al. Oral administration of a fusion protein between the cholera toxin B subunit and the 42-amino acid isoform of amyloid-β peptide produced in silkworm pupae protects against Alzheimer's disease in mice. PLoS One. 9 (12), e113585(2014).
- La Spada, A. R., et al. A Becn1 mutation mediates hyperactive autophagic sequestration of amyloid oligomers and improved cognition in Alzheimer's disease. PLoS Genet. 13 (8), e1006962(2017).
- Aboelwafa, H. R., El-Kott, A. F., Abd-Ella, E. M., Yousef, H. N. The possible neuroprotective effect of silymarin against aluminum chloride-prompted Alzheimer's-like disease in rats. Brain Sci. 10 (9), 628(2020).
- Tobore, T. O. On the central role of mitochondria dysfunction and oxidative stress in Alzheimer's disease. Neurol Sci. 40 (8), 1527-1540 (2019).
- Kawamoto, E. M., et al. Oxidative state in platelets and erythrocytes in aging and Alzheimer's disease. Neurobiol Aging. 26 (6), 857-864 (2005).
- Stancu, I. C., et al. Aggregated Tau activates NLRP3–ASC inflammasome exacerbating exogenously seeded and non-exogenously seeded Tau pathology in vivo. Acta Neuropathol. 137 (4), 599-617 (2019).
- Connolly, K., et al. Potential role of chitinase-3-like protein 1 (CHI3L1/YKL-40) in neurodegeneration and Alzheimer's disease. Alzheimers Dement. 19 (1), 9-24 (2022).
- Yingquan, W., Jing-Hong, L., Ruixia, J. Alzheimer disease in China (2015-2050) estimated using the 1% population sampling survey in 2015. China J Alzheimers Dis Relat Disord. 2 (1), 289-298 (2019).
- Amat-Ur-Rasool, H., Ahmed, M., Hasnain, S., Carter, W. G. Anti-cholinesterase combination drug therapy as a potential treatment for Alzheimer's disease. Brain Sci. 11 (2), 184(2021).
- Cummings, J., Lee, G., Mortsdorf, T., Ritter, A., Zhong, K. Alzheimer's disease drug development pipeline: 2017. Alzheimers Dement (N Y). 3 (3), 367-384 (2017).
- Birks, J. S., Harvey, R. J. Donepezil for dementia due to Alzheimer's disease. Cochrane Database Syst Rev. 6 (6), CD001190(2018).
- Knopman, D. S., et al. Alzheimer's disease. Nat Rev Dis Primers. 7 (1), 33(2021).
- Silva, T., Reis, J., Teixeira, J., Borges, F. Alzheimer's disease, enzyme targets and drug discovery struggles: from natural products to drug prototypes. Ageing Res Rev. 15, 116-145 (2014).
- Liu, X., Yi, W., Xi, B., Dai, Q., Lu, L. Identification of drug-disease associations using a random walk with restart method and supervised learning. Comput Math Methods Med. 2022 (1), 7035634(2022).
- Yu, N., et al. Ganoderma lucidum triterpenoids (GLTs) reduce neuronal apoptosis via inhibition of ROCK signal pathway in APP/PS1 transgenic Alzheimer's disease mice. Oxid Med Cell Longev. 2020 (1), 1-11 (2020).
- Bao, M., et al. Astragaloside IV against Alzheimer's disease via microglia-mediated neuroinflammation using network pharmacology and experimental validation. Eur J Pharmacol. 957, 175992(2023).
- Dartigues, J. F., et al. Ginkgo biloba extract consumption and long-term occurrence of death and dementia. J Prev Alzheimers Dis. 4 (1), 16-20 (2017).
- Savaskan, E., Mueller, H., Hoerr, R., von Gunten, A., Gauthier, S. Treatment effects of Ginkgo biloba extract EGb 761® on the spectrum of behavioral and psychological symptoms of dementia: meta-analysis of randomized controlled trials. Int Psychogeriatr. 30 (3), 285-293 (2017).
- Wang, D., Liu, W., Lu, M., Xu, Q. Neuropharmacological effects of Gastrodia elata Blume and its active ingredients. Front Neurol. 16, 1574277(2025).
- El Menyiy, N., et al. Chemistry, biological activities,and pharmacological properties of gastrodin: mechanism insights. Chem Biodivers. 21 (6), e202400402(2024).
- Yu, H., et al. Research progress on classification of chemical constituents from Gastrodia elata and their pharmacological effects. Chin Tradit Herbal Drugs. 53, 5553-5562 (2022).
- Tang, C., et al. Comparative pharmacokinetics of gastrodin in rats after intragastric administration of free gastrodin, parishin and Gastrodia elata extract. J Ethnopharmacol. 176, 49-54 (2015).
- Fu, X., et al. Antioxidation effects and mechanism of gastrodin in AD rat models. Acta Anat Sin. 41 (4), 485-490 (2010).
- Shi, R., et al. Gastrodin alleviates vascular dementia in a 2-VO vascular dementia rat model by altering amyloid and Tau levels. Pharmacology. 105 (7-8), 386-396 (2020).
- Fasina, O. B., et al. Gastrodin from Gastrodia elata enhances cognitive function and neuroprotection of AD mice via the regulation of gut microbiota composition and inhibition of neuron inflammation. Front Pharmacol. 13, 814271(2022).
- Zheng, Q., et al. MicroRNA-452 promotes tumorigenesis in hepatocellular carcinoma by targeting cyclin-dependent kinase inhibitor 1B. Mol Cell Biochem. 389 (1-2), 187-195 (2014).
- Yan, J., Yang, Z., Zhao, N., Li, Z., Cao, X. Gastrodin protects dopaminergic neurons via insulin-like pathway in a Parkinson's disease model. BMC Neurosci. 20 (1), 31(2019).
- Xiao, H., et al. Gastrodin promotes hippocampal neurogenesis via PDE9-cGMP-PKG pathway in mice following cerebral ischemia. Neurochem Int. 150, 105171(2021).
- Liu, Y., et al. A review on central nervous system effects of gastrodin. Front Pharmacol. 9, 24(2018).
- Fu, J., et al. Gastrodia elata specific miRNA attenuates neuroinflammation via modulating NF-κB signaling pathway. Int J Neurosci. 134 (12), 1652-1662 (2023).
- Wang, Y., et al. Gastrodin: a comprehensive pharmacological review. Naunyn Schmiedebergs Arch Pharmacol. 397 (6), 3781-3802 (2024).
- Liu, C. M., et al. Effects of gastrodin against lead-induced brain injury in mice associated with the Wnt/Nrf2 pathway. Nutrients. 12 (6), 1805(2020).
- De Oliveira, M. R., Brasil, F. B., Fürstenau, C. R. Nrf2 mediates the anti-apoptotic and anti-inflammatory effects induced by gastrodin in hydrogen peroxide-treated SH-SY5Y cells. J Mol Neurosci. 69 (1), 115-122 (2019).
- Zhang, J. S., et al. Gastrodin suppresses BACE1 expression under oxidative stress condition via inhibition of the PKR/eIF2α pathway in Alzheimer's disease. Neuroscience. 325, 1-9 (2016).
- Jiao, M., et al. Effect of the SSeCKS–TRAF6 interaction on gastrodin-mediated protection against 2,3,7,8-tetrachlorodibenzo-p-dioxin-induced astrocyte activation and neuronal death. Chemosphere. 226, 678-686 (2019).
- Cohen, P., Holmes, C. F., Tsukitani, Y. Okadaic acid: a new probe for the study of cellular regulation. Trends Biochem Sci. 15 (3), 98-102 (1990).
- Qin, Y., et al. Okadaic acid detection through a rapid and sensitive amplified luminescent proximity homogeneous assay. Toxins (Basel). 15 (8), 501(2023).
- Kim, S., et al. PubChem 2023 update. Nucleic Acids Res. 51 (D1), D1373-D1380 (2022).
- Daina, A., Michielin, O., Zoete, V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 47 (W1), W357-W364 (2019).
- Stelzer, G., et al. The GeneCards suite: from gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 54 (1), 1.30.31-1.30.33 (2016).
- Safran, M., et al. Practical guide to life science databases. , Springer Nature. Singapore. (2021).
- Amberger, J. S., Bocchini, C. A., Schiettecatte, F., Scott, A. F., Hamosh, A. OMIM.org: Online Mendelian Inheritance in Man (OMIM®), an online catalog of human genes and genetic disorders. Nucleic Acids Res. 43 (D1), D789-D798 (2014).
- Szklarczyk, D., et al. The STRING database in 2021: customizable protein–protein networks,and functional characterization of user-uploaded gene/measurement sets. Nucleic Acids Res. 49 (D1), D605-D612 (2020).
- Zhou, Y., et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 10 (1), 1523(2019).
- Tominaga, H., et al. A water-soluble tetrazolium salt useful for colorimetric cell viability assay. Anal Commun. 36 (2), 47-50 (1999).
- Ton, A. M. M., et al. Oxidative stress and dementia in Alzheimer's patients: effects of synbiotic supplementation. Oxid Med Cell Longev. 2020 (1), 2638703(2020).
- Roth, K. A. Caspases, apoptosis,and Alzheimer disease: causation,correlation,and confusion. J Neuropathol Exp Neurol. 60 (9), 829-838 (2001).
- Cheng, M., et al. The effects of Porphyromonas gingivalis on the apoptosis of hippocampal cells in Sprague-Dawley rats and its underlying mechanisms. Int J Clin Exp Med. 13 (1), 300-309 (2020).
- Liu, H., et al. Development of chemical fingerprints for quality control of Xiong Ma Tang and its related preparations by high-performance liquid chromatography. J Chromatogr Sci. 54 (2), 206-215 (2016).
- Liu, S. J., et al. Gastrodin attenuates microglia activation through renin-angiotensin system and Sirtuin3 pathway. Neurochem Int. 120, 49-63 (2018).
- Hu, Y., Li, C., Shen, W. Gastrodin alleviates memory deficits and reduces neuropathology in a mouse model of Alzheimer's disease. Neuropathology. 34 (4), 370-377 (2014).
- Liu, J., et al. Systems pharmacology uncovers the multiple mechanisms of Xijiao Dihuang decoction for the treatment of viral hemorrhagic fever. Evid Based Complement Alternat Med. 2016 (1), 9025036(2016).
- Ran, B., et al. Drug-drug interactions prediction using fingerprint only. Comput Math Methods Med. 2022 (1), 7818480(2022).
- Sharma, V. K., Singh, T. G., Singh, S., Garg, N., Dhiman, S. Apoptotic pathways and Alzheimer's disease: probing therapeutic potential. Neurochem Res. 46 (12), 3103-3122 (2021).
- Zhou, W., Gao, Y., Xu, S., Yang, Z., Xu, T. Purification of a mannose-binding lectin Pinellia ternata agglutinin and its induction of apoptosis in Bel-7404 cells. Protein Expr Purif. 93, 11-17 (2014).
- Goedert, M., Spillantini, M. G., Jakes, R., Rutherford, D., Crowther, R. Multiple isoforms of human microtubule-associated protein tau: sequences and localization in neurofibrillary tangles of Alzheimer's disease. Neuron. 3 (4), 519-526 (1989).
- Hernández, F., Gómez De Barreda, E., Fuster-Matanzo, A., Lucas, J. J., Avila, J. GSK3: a possible link between beta amyloid peptide and tau protein. Exp Neurol. 223 (2), 322-325 (2010).
- Lu, Z., et al. Neuroprotection and mechanism of Gas-miR36-5p from Gastrodia elata in an Alzheimer's disease model by regulating glycogen synthase kinase-3β. Int J Mol Sci. 24 (24), 17295(2023).
- Vossel, K. A., et al. Tau reduction prevents Aβ-induced axonal transport deficits by blocking activation of GSK3β. J Cell Biol. 209 (3), 419-433 (2015).
- Singh, A. K., et al. Berberine: a plant-derived alkaloid with therapeutic potential to combat Alzheimer's disease. CNS Agents Med Chem. 19 (3), 154-170 (2019).
- Belsare, K. D., et al. Soluble TREM2 inhibits secondary nucleation of Aβ fibrillization and enhances cellular uptake of fibrillar Aβ. Proc Natl Acad Sci U S A. 119 (5), e2114486119(2022).
- Matsuda, S., et al. Roles of PI3K/AKT/GSK3 pathway involved in psychiatric illnesses. Diseases. 7 (1), 22(2019).
- Pan, S., et al. Oleanolic acid derivatives induce apoptosis in human leukemia K562 cell involved in inhibition of both Akt1 translocation and pAkt1 expression. Cytotechnology. 67 (5), 821-829 (2014).
- Zhou, F., et al. Network pharmacology-based strategy to investigate pharmacological mechanisms of Tinospora sinensis for treatment of Alzheimer's disease. J Ethnopharmacol. 259, 112940(2020).
- Liu, Z., Wang, Z. Protein tyrosine kinase 2 regulates tau phosphorylation through PI3K/AKT/Gsk3β signaling pathway. Labeled Immunoassays Clin Med. 29 (3), 464-470 (2022).
- Cope, P. J., Ourradi, K., Li, Y., Sharif, M. Models of osteoarthritis: the good, the bad and the promising. Osteoarthritis Cartilage. 27 (2), 230-239 (2019).
- Wang, X., Blanchard, J., Tung, Y. C., Grundke-Iqbal, I., Iqbal, K. Inhibition of protein phosphatase-2A (PP2A) by I1PP2A leads to hyperphosphorylation of tau, neurodegeneration,and cognitive impairment in rats. J Alzheimers Dis. 45 (2), 423-435 (2015).
- Liu, T. T., et al. Gastrodin alleviates Aβ25-35-induced glycolytic dysfunction via activating PI3K/AKT/BACH1 signaling in Alzheimer's disease models. Exp Neurol. 389, 115225(2025).
- Zuo, H. J., et al. Gastrodin regulates PI3K/AKT-Sirt3 signaling pathway and proinflammatory mediators in activated microglia. Mol Neurobiol. 61 (5), 2728-2744 (2024).
- Wang, Y. P., Mandelkow, E. Tau in physiology and pathology. Nat Rev Neurosci. 17, 22-35 (2015).
- Pardridge, W. M. Drug transport across the blood–brain barrier. J Cereb Blood Flow Metab. 32 (11), 1959-1972 (2012).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.