Этот протокол даёт комплексное описание метода одновременной записи кальциевых сигналов от нейронов и астроцитов в нескольких областях мозга, связанных с памятью, и демонстрирует его применение в парадигме обучения и поведения памяти.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Метод двухцветной фотометрии волокон для записи активности астроцит-нейронов в нескольких областях мозга во время обучения и запоминания
В этой статье
Краткое содержание
Аннотация
Обучение и память критически зависят от координации между нейронами и астроцитами в распределённых областях мозга. Астроциты модулируют синаптическую трансмиссию и возбудимость нейронов, тем самым способствуя кодированию и консолидации информации в цепях, связанных с памятью. Внутри- и межрегиональные корреляции между астроцитами и нейронами имеют решающее значение для понимания нарушений памяти и когнитивных расстройств. Однако одновременный мониторинг активности астроцитов и нейронов в нескольких областях во время поведения памяти остаётся технически сложным. Здесь представлен метод, способствующий одновременной записи этих кальциевых сигналов от астроцитов и нейронов в нескольких областях, связанных с памятью. Эта стратегия сочетает специфические для клеток генетически кодируемые кальциевые индикаторы (GECI), многоканальную систему фотометрии волокон и синхронизированное поведенческое отслеживание для достижения мониторинга нейронных и астроцитных активностей в медиальной префронтальной коре (mPFC), области гиппокампа CA1 и медиальной энторинальной коре (MEC). Репрезентативные результаты демонстрируют координированную динамику кальция между регионами и типами клеток в ходе задачи распознавания объектов. Этот метод обеспечивает воспроизводимую и эффективную экспериментальную основу для изучения взаимодействий астроцитов и нейронов, лежащих в основе процессов обучения и памяти.
Введение
Обучение и память — это фундаментальные когнитивные процессы, связанные с получением, хранением и извлечением информации, что имеет решающее значение для формирования адаптивного поведения. Эти процессы лежат в основе различных сложных функций, таких как пространственная навигация, распознавание объектов, контекстуальная ассоциация и принятие решений. Кроме того, когнитивные дисфункциональные заболевания, включая болезнь Альцгеймера, возрастные когнитивные заболевания и травматические повреждения мозга, демонстрируют нарушения в формировании памяти 1,2,3. Поэтому для всестороннего понимания нейронных основ обучения и памяти необходимо прояснить динамическое взаимодействие между различными типами клеток. Это взаимодействие происходит внутри и между этими областями во время кодирования и извлечения информации.
Традиционно считалось, что образование памяти в основном определяется нейронной активностью. Однако обширные исследования показали, что астроциты существенно регулируют кодирование, консолидацию и поиск информации. Они достигают этого, модулируя синаптическую передачу, регулируя возбудимость нейронов, высвобождая глиотрансмиттеры и обеспечивая метаболическуюподдержку 4,5,6,7,8. Астроциты динамически взаимодействуют с нейронами, и двунаправленная коммуникация в совокупности называется «астроцит-нейронная сеть»9,10,11. Поэтому понимание координированных взаимодействий между астроцитами и нейронами крайне важно для понимания клеточных и сетевых механизмов обучения и памяти.
Обучение и память зависят от динамической интеграции информации между несколькими областями мозга. Взаимодействия между астроцитами и нейронами не ограничиваются локальными микросхемами, а распространяются на распределённые области мозга, связанные с памятью, включая медиальную префронтальную кору (mPFC), область гиппокампа CA1 и медиальную энторинальную кору (MEC). mPFC участвует в консолидации памяти и регуляции долгосрочной памяти; CA1 является центральным элементом эпизодического кодирования и реактивации памяти; а MEC служит центром пространственной и мультимодальной интеграции информации, предоставляя важный вход в гиппокампально-кортикальный контур 12,13,14,15,16. Накопленные данные свидетельствуют о том, что астроциты в этих областях участвуют в координированной межрегиональной динамике с нейронами, играя ключевую роль в потоке информации и переходах состояний во время обучения и памяти17,18.
Хотя признание синергетической функции астроцитов и нейронов в обработке памяти увеличилось, остаётся значительная техническая задача — одновременно отслеживать активность кальция как в астроцитах, так и в нейронах в нескольких областях мозга, связанных с памятью, во время поведения свободно движущихся животных. Двухфотонная съёмка обеспечивает высокое пространственное разрешение, но ограничена глубиной и фиксациейголовы — 19,20; Многоканальная электрофизиология позволяет записывать с высоким временным разрешением, но не обладает специфичностью к клеточному типу и не может различать астроцитные кальциевые сигналы. Таким образом, был разработан метод, позволяющий одновременно записывать астроцитные и нейронные кальциевые сигналы в нескольких областях мозга, связанных с памятью, у свободно движущихся мышей. Генетически кодированные кальциевые индикаторы (GECI) сообщают о внутриклеточной динамикеCa2+ черезCa2+-зависимые конформационные изменения CaM/M13, которые модулируют флуоресценцию генетически закодированных флуорофоров. Двухцветные подходы GECI используют спектрально разделяемые индикаторы, такие как зелёные и красные кальциевые сенсоры, а также промоторы, специфичные к типу клеток, чтобы одновременно записывать активность астроцитарной и нейроннойCa2+ в одной области мозга. Объединяя клеточно-специфические двуцветные GECI (GCaMP6f и jRGECO1a) и многоканальную систему фотометрии волокон, был достигнут мониторинг активности кальция в нейронах и астроцитах в mPFC, CA1 и MEC. Кроме того, взяв в пример задачу нового распознавания объектов (NOR), была продемонстрирована координация динамики кальция между областями мозга и типами клеток в учебных задачах. Этот метод является воспроизводимым, надёжным и масштабируемым протоколом для исследования активности ансамбля астроцит-нейронов в областях мозга во время обучения и памяти.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Все эксперименты на животных были одобрены Комитетом по уходу и использованию животных Третьего военного медицинского университета (Одобрение этики животных No: AMUWEC20230126) и проводились в соответствии с Руководством Третьего военного медицинского университета по уходу и использованию лабораторных животных для обеспечения этического обращения с животными. Реагенты и используемое оборудование перечислены в Таблице материалов.
Для обеспечения безопасности экспериментатора все экспериментальные процедуры с участием живых животных и вирусных векторов проводились в защитной одежде, стерильных перчатках и маске. Все приборы тщательно стерилизовались перед использованием, а экспериментальные поверхности очищались 70% этанолом до и после каждого эксперимента. Оставшиеся материалы утилизировались в соответствии с институциональными правилами по утилизации отходов. Все реагенты и оборудование использовались так, чтобы избежать прямого контакта с кожей или глазами.
1. Подготовка животных и обработка вирусов
- Содержать 4-месячных мышей C57BL/6 (обоих полов) в 12-часовом цикле свет/темнота с импровзационным доступом к еде и воде.
- Оттаять аликвоты AAV5-GfaABC1D-GCaMP6f или AAV9-hSyn-jRGECO1a на льду при 0–4 °C непосредственно перед использованием.
- Подключите вытянутую стеклянную микропипетку (диаметр наконечника 15–25 мкм) к шприцу и установите её на микроинъекционный насос.
- Положите мышь на стерильную хирургическую платформу и продезинфицируйте все инструменты 70% этанолом.
2. Стереотаксичная вирусная инъекция
ПРИМЕЧАНИЕ: В этом исследовании использовалась двухэтапная стратегия инъекции вируса. В текущих экспериментальных условиях эту стратегию можно надёжно и стабильно реализовать, а результирующий паттерн экспрессии соответствует ожидаемому, специфическому промотору для типа клетки.
- Первая операция: инъекция астроцитов AAV5-GfaABC1D-GCaMP6f (титр: 7 × 10¹² vg/mL)
- Индуцировать анестезию с помощью 3% изофлурана в камере, затем поддерживать анестезию с помощью 0,8–1,2% изофлурана через носовой конус (согласно утверждённым институциональными протоколами).
- Поддерживайте температуру тела на уровне 37–38 °C с помощью грелки и наносите офтальмологическую мазь для предотвращения высыхания роговицы.
- Удалите волосы с кожи головы и тщательно продезинфицируйте кожу. Сделайте разрез по средней линии, чтобы открыть поверхность черепа.
- Поместите головку в стереотаксичный прибор, отрегулируйте швы брегмы и лямбда в одинаковую горизонтальную плоскость, а затем отрегулируйте раму, чтобы точки с 2 мм латеральности брегмы с обеих сторон были ровными.
- Определите стереотаксичные координаты с помощью атласа мозга мыши, с брегмой в качестве точки отсчёта.
mPFC: AP +1,8 мм, ML +0,3 мм, DV −3,0 мм
CA1: AP −2,1 мм, ML +1,6 мм, DV −1,2 мм
MEC: AP −4,5 мм, ML −2,9 мм, DV −2,0 мм - Просверлите краниотомию диаметром 0,6 мм над каждым участком, поддерживайте твердую матер влажной и целой после открытия черепа.
- Заполните вирус GCaMP6f в шприц со скоростью 5 nL/s и вставьте шприц в стереотаксический рычаг.
- Медленно опускайте пипетку, вводите 150 нл при скорости 0,6 нл/с, держите 8 минут, затем вытягиваете при 0,1 мм/с. Повторите эту процедуру для всех регионов.
- Запечатайте разрез тканевым клеем и дайте 2 недели для проявления вируса.
- Вторичная хирургия: инъекция нейронов AAV9-hSyn-jRGECO1a (титр: 1 × 10¹³ vg/mL).
ПРИМЕЧАНИЕ: Операция была проведена через 14 дней после первой инъекции вируса.- Индуцировать и поддерживать анестезию, как описано выше (шаг 2.1.1).
- Поддерживайте температуру тела и защищайте глаза.
- Откройте кожу головы по средней линии и выровняйте череп.
ПРИМЕЧАНИЕ: Череп был выровнен путём выравнивания брегмы и лямбды в одной горизонтальной плоскости. - Очистить тканевые остатки в тех же местах, где были краниотомические окна после первой операции, обнажая твердую грудь целой.
- Корректируйте координаты, используя bregma как точку отсчёта, выполняйте инъекции строго на тех же координатах и на тех же глубинах, что и описано ранее.
- Заполните вирус jRGECO1a со скоростью 5 nL/s и установите шприц.
- Введите 150 нл при 0,6 нл/с, задержите 8 минут и медленно выведите. Повторите эту процедуру для всех регионов и дайте 3 недели для экспрессии вируса.
3. Имплантация зонда с многопрофильной фотометрией волокон
ПРИМЕЧАНИЕ: Проводите сразу после инъекции jRGECO1a.
- Установите оптоволоконную феррулу в стереотаксический держатель.
- Расположите волокно (феррула 1,25 мм, сердцевина 200 мкм, NA 0,39) на 100–150 мкм над глубиной инъекции вируса:
mPFC: AP +1,8 мм, ML +0,3 мм, DV −2,9 мм
CA1: AP −2,1 мм, ML +1,6 мм, DV −1,1 мм
MEC: AP −4,5 мм, ML −2,9 мм, DV −1,9 мм - Запечатайте краниотомию тканевым клеем и закрепите феррулу зубным цементом.
4. Многоканальная фотометрическая запись
ПРИМЕЧАНИЕ: Для обеспечения стабильной и полной экспрессии двух индикаторов кальция была проведена многоканальная оптоволоконная фотометрия через три недели после второй инъекции вируса для записи.
- Приучите мышей к волокнистой системе и арене один раз в день в течение трёх дней.
- После 3 недель экспрессии вируса кратковременно анестезируйте мышь 3% изофлураном.
- Подключите один конец оптического волокна с системой фотометрии волокна.
- Настройте возбуждающий свет на две длины волн: 470 нм и 560 нм.
- Установите частоту приёма на 30 Гц.
- Соедините три ветви на другом конце оптоволокна с тремя областями мозга: канал 1 с mPFC, канал 2 к CA1, канал 3 к MEC.
- Разместите мышей на открытом участке с длиной 50 см и дайте свободное исследование.
- Через 10 минут отключите волокно и верните мышей в их домашние клетки.
- Запись фотометрии волокна во время задачи распознавания новых объектов
ПРИМЕЧАНИЕ: Перед каждым испытанием очищайте платформу и предметы 75% этанола.- Разместите два идентичных объекта в диагонально противоположных квадрантах.
- Соедините пучок волокон в слегка анестезиированном состоянии.
- Позвольте мышам исследовать предметы в течение 10 минут, затем возвращайте их в домашние клетки, не удаляя волокно.
- Проведите запись фотометрии на волокон во время нового теста распознавания объектов у мышей.
ПРИМЕЧАНИЕ: Исключайте судебное разбирательство, если артефакты ходатайства являются чрезмерными для стабильной записи.- Корректируйте стимуляционные лазеры:
470 нм для GCaMP6f (астроциты)
560 нм для jRGECO1a (нейроны) - Записывайте кальциевые сигналы на частоте 30 Гц, синхронизируя с видеотрекингом на 30 Гц. При начале захвата разместить лазерный диод внутри видеокадра (вне поля зрения мыши) в качестве временного маркера.
- Через десять минут после этапа обучения замените один объект на новый и положите мышь на 10 минут исследования во время записи.
- Отсоедините волокно керамическим феррулом и верните мышей в домашние клетки.
- Корректируйте стимуляционные лазеры:
5. Обработка и анализ данных
ПРИМЕЧАНИЕ: Классифицируйте переходный процесс Ca2⁺ в фотометрических записях как подлинный сигнал только если его амплитуда превышает в три раза стандартное отклонение шумовой зоны21, 22, 23. Novel Object Recognition Test (NORT) Protocol24 :D efine object interactions — это события, когда мыши физически соприкасаются с объектом — либо тыкая его, либо нюхая носом. Для количественной оценки сигнала определите исходную линию: средний сигнал в окне -2 до -1 s (относительно начала взаимодействия при t=0). Установите окно анализа перисобытий так, чтобы оно охватывало от 2 с до 4 с после начала каждого взаимодействия объекта, следуя установленным протоколам.
- Импорт флуоресцентных трассировок в программное обеспечение для анализа.
ПРИМЕЧАНИЕ: Обработка флуоресцентных сигналов проводилась с использованием проприетарного программного обеспечения для анализа, следуя стандартным рабочим процессам фотометрии оптоволокна. Само программное обеспечение не является открытым исходным кодом и не может быть распространено. Для общих методологических соображений, связанных с обработкой сигналов фотометрии волокна, см. отчеты о последнихметодологиях 25. - Выполните коррекцию исходной линии и выровняйте кальциевые сигналы с началом задачи NOR с помощью синхронизированного видео.
- Преобразовать ΔF/F в Z-оценки для межрегиональных и двухцветныхсравнений 9:
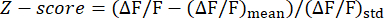
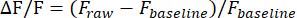
ПРИМЕЧАНИЕ:
(ΔF/F)mean: среднее ΔF/F.
(ΔF/F)std: стандартное отклонение ΔF/F.
Fraw: чистая флуоресцентная интенсивность.
Базовый уровень F: базовая интенсивность флуоресценции (среднее за заранее определённый базовый период). - Количественно определите метрики, такие как площадь под кривой (AUC) для реакций астроцитов и нейронных кальций при исследовании новых и знакомых объектов.
6. Гистологическая проверка после записи
- Анестезиируйте мышь с помощью передозировки пентобарбитала до полной потери рефлексов.
- Проведите транскардиальную перфузию с обычным физиологическим раствором, затем введите 4% параформальдегида (PFA).
- Тщательно вскрытие мозга и постфиксировать его в 4% PFA при 4 °C в течение 12–24 часов.
- Переведите мозг в 30% сахарозы в PBS при 4 °C, пока ткани не опустятся для криозащиты.
- Вживите мозг в оптимальную температуру резки, заморозьте его и вырезайте корональные срезы (толщиной 40 мкм) с помощью криостата.
- Проведите иммунофлуоресцентное окрашивание для проверки экспрессии вирусов и расположения волокон.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
В соответствии с описанным выше протоколом была проведена двухцветная многоточечная оптоволоконная запись с целью mPFC, CA1 и MEC 4-месячных мышей C57. В настоящем исследовании мы реализовали двухэтапную стратегию инъекции вируса для последовательного введения двух индикаторов. В наших экспериментальных условиях эту стратегию можно надёжно и стабильно реализовать, и полученный паттерн экспрессии соответствует ожидаемому, специфическому промоторному профилю клеточного типа.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
В этом исследовании был разработан метод для одновременного записи активности астроцитных и нейронных кальций в нескольких областях мозга, связанных с памятью, во время обучения и поведения, связанных с памятью. В отличие от однорегиональной визуализации28 или электрофизиологических методов, многорегиональная синхронная запись фиксирует скоординированную динамику между распределёнными сетями памяти, что является мощным инструментом для исследования обучения и памя...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы не объявляют конфликтов интересов, финансовых или иных.
Благодарности
Госпожа Цзя Лоу отмечена за техническую помощь, а Sai Te Xin Si (инструмент искусственного интеллекта) — за помощь в редактировании языка. Эта работа получила поддержку Национального фонда естественных наук Китая (гранты No 82371485, 82588301, 32400932) и Фонда естественных наук Чунцина, Китай (грант No CSTB2024NSCQ-JQX0024, 2024NSCQ-MSX1104).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 75 RN 5uL SYR W/O NEEDLE | Hamilton | 7634-01 | Соединяется с микропипеткой для вирусной инъекции |
| AAV5-GfaABC1D-GCaMP6f | Addgene | 52925 | Астроцит-специфическая экспрессия GCaMP6f |
| AAV9-hSyn-NES-jRGECO1a | Addgene | 100854 | Нейрон-специфичный красносдвинутый кальциевый индикатор |
| Мазь для глаз и носа Bepanthen | Bepanthen | MA0008 | Предотвращает высыхание роговицы |
| Оптические волокна с керамичными втулками | Inper | BFO-1x3-W1.25 | Соединяет имплантированные волокна с системой фотометрии |
| Камера | Mind Vision | MV-SUA502C-T | Поведение видео синхронизировано с кальциевыми сигналами |
| Стоматологический цемент | NISSIN | Super-Bond C&B | Используется для закрепления втулок на черепе |
| Держатель втулки | Inper | SCH-1.25 | Держит керамическую втулку надежно во время имплантаци |
| Изофлуранный воздуходув и система анестезии | RWD Life Science | R510-29 | Для индуцирования и поддержания анестезии |
| Многоканальная система фотометрии с волокнами | RWD Life Science | R821 | Для двухцветной записи |
| Программное обеспечение OFRS | RWD Life Science | Анализ записанных кальциевых сигналов | |
| Оптические волокна | RWD Life Science | R-FOC-BL200C-39N | Имплантируется в целевую область мозга |
| Стереотаксический инструмент | RWD Life Science | 68801 | Используется для точной инъекции вируса и имплантаци волокон |
| Шприцевый насос | KD Scientific | 788130 | Подача вируса с контролируемыми скоростями |
| Тканевый клей | 3M Animal Care Products | 1469SB Vetbond | Для закрытия разрезов |
Ссылки
- Eichenbaum, H. Memory: Organization and Control. Annu Rev Psychol. 68, 19-45 (2017).
- Kamatham, P. T., Shukla, R., Khatri, D. K., Vora, L. K. Pathogenesis, diagnostics, and therapeutics for Alzheimer’s disease: Breaking the memory barrier. Ageing Res Rev. 101, 102481(2024).
- Graff-Radford, J., et al. New insights into atypical Alzheimer’s disease in the era of biomarkers. Lancet Neurol. 20 (3), 222-234 (2021).
- Araque, A., et al. Gliotransmitters travel in time and space. Neuron. 81 (4), 728-739 (2014).
- Khakh, B. S., Sofroniew, M. V. Diversity of astrocyte functions and phenotypes in neural circuits. Nat Neurosci. 18 (7), 942-952 (2015).
- Di Castro, M. A., et al. Local Ca2+ detection and modulation of synaptic release by astrocytes. Nat Neurosci. 14 (10), 1276-1284 (2011).
- Savtchouk, I., Volterra, A. Gliotransmission: Beyond Black-and-White. J Neurosci. 38 (1), 14-25 (2018).
- Perea, G., Navarrete, M., Araque, A. Tripartite synapses: Astrocytes process and control synaptic information. Trends Neurosci. 32 (8), 421-431 (2009).
- Wang, H., et al. Mapping multi-regional functional connectivity of astrocyte-neuronal networks during behaviors. Neurophotonics. 11 (4), 045010(2024).
- Lines, J., Martin, E. D., Kofuji, P., Aguilar, J., Araque, A. Astrocytes modulate sensory-evoked neuronal network activity. Nat Commun. 11 (1), 3689(2020).
- Lines, J., et al. Astrocyte-neuronal network interplay is disrupted in Alzheimer’s disease mice. Glia. 70 (2), 368-378 (2022).
- Brincat, S. L., Miller, E. K. Frequency-specific hippocampal-prefrontal interactions during associative learning. Nat Neurosci. 18 (4), 576-581 (2015).
- DeNardo, L. A., et al. Temporal evolution of cortical ensembles promoting remote memory retrieval. Nat Neurosci. 22 (3), 460-469 (2019).
- Kitamura, T., et al. Engrams and circuits crucial for systems consolidation of a memory. Science. 356 (6333), 73-78 (2017).
- Gonzalo Cogno, S., et al. Minute-scale oscillatory sequences in medial entorhinal cortex. Nature. 625 (7994), 338-344 (2024).
- Roudi, Y., Moser, E. I. Grid cells in an inhibitory network. Nat Neurosci. 17 (5), 639-641 (2014).
- Williamson, M. R., et al. Learning-associated astrocyte ensembles regulate memory recall. Nature. 637 (8045), 478-486 (2025).
- Curreli, S., Bonato, J., Romanzi, S., Panzeri, S., Fellin, T. Complementary encoding of spatial information in hippocampal astrocytes. PLoS Biol. 20 (3), e3001530(2022).
- Oheim, M., Michael, D. J., Geisbauer, M., Madsen, D., Chow, R. H. Principles of two-photon excitation fluorescence microscopy and other nonlinear imaging approaches. Adv Drug Deliv Rev. 58 (7), 788-808 (2006).
- Helmchen, F., Denk, W. Deep tissue two-photon microscopy. Nat Methods. 2 (12), 932-940 (2005).
- Zhang, K., Chen, X. Sensory response in host and engrafted astrocytes of adult brain in vivo. Glia. 65 (12), 1867-1884 (2017).
- Qin, H., et al. A visual-cue-dependent memory circuit for place navigation. Neuron. 99 (1), 47-55.e44 (2018).
- Yao, J., et al. A corticopontine circuit for initiation of urination. Nat Neurosci. 21 (11), 1541-1550 (2018).
- Mirzayi, P., Shobeiri, P., Kalantari, A., Perry, G., Rezaei, N. Optogenetics: Implications for Alzheimer’s disease research and therapy. Mol Brain. 15 (1), 20(2022).
- Simpson, E. H., et al. Lights, fiber, action! A primer on in vivo fiber photometry. Neuron. 112 (5), 718-739 (2024).
- Chen, T. W., et al. Ultrasensitive fluorescent proteins for imaging neuronal activity. Nature. 499 (7458), 295-300 (2013).
- Dana, H., et al. Sensitive red protein calcium indicators for imaging neural activity. Elife. 5, 12727(2016).
- Serikov, A., Martsishevska, I., Shin, W., Kim, J. Protocol for in vivo dual-color fiber photometry in the mouse thalamus. STAR Protoc. 5 (2), 102931(2024).
- Gilbert, C. D. Horizontal integration and cortical dynamics. Neuron. 9 (1), 1-13 (1992).
- de Pasquale, F., Corbetta, M., Betti, V., Della Penna, S. Cortical cores in network dynamics. Neuroimage. 180 (Pt B), 370-382 (2018).
- Suthard, R. L., et al. Engram reactivation mimics cellular signatures of fear. Cell Rep. 44 (10), 116409(2025).
- Sandoval, K. C., Rychlik, J., Choe, K. Y. Calcium dynamics in hypothalamic paraventricular oxytocin neurons and astrocytes associated with social and stress stimuli. eNeuro. 12 (5), (2025).
- Srinivasan, R., et al. Ca(2+) signaling in astrocytes from Ip3r2(-/-) mice in brain slices and during startle responses in vivo. Nat Neurosci. 18 (5), 708-717 (2015).
- Spellman, T., et al. Hippocampal-prefrontal input supports spatial encoding in working memory. Nature. 522 (7556), 309-314 (2015).
- Hu, W., et al. Optogenetics sheds new light on tissue engineering and regenerative medicine. Biomaterials. 227, 119546(2020).
- Liddelow, S. A., et al. Neurotoxic reactive astrocytes are induced by activated microglia. Nature. 541 (7638), 481-487 (2017).
- Shah, D., et al. Astrocyte calcium dysfunction causes early network hyperactivity in Alzheimer’s disease. Cell Rep. 40 (8), 111280(2022).
- Jiménez-Balado, J., Eich, T. S. GABAergic dysfunction, neural network hyperactivity and memory impairments in human aging and Alzheimer’s disease. Semin Cell Dev Biol. 116, 146-159 (2021).
- Lin, R., Guo, Y., Jiang, W., Wang, Y. Advanced technologies for the study of neuronal cross-organ regulation: a narrative review. Adv Technol Neurosci. 1 (2), 166-176 (2024).
- Reitman, M. E., et al. Norepinephrine links astrocytic activity to regulation of cortical state. Nat Neurosci. 26 (4), 579-593 (2023).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
