В данном протоколе описаны методы создания комбинированных трансгенных линий данио-рерио (zebrafish), визуализации иммунных клеток, ассоциированных с опухолями у личинок и взрослых особей, а также количественного определения частоты появления иммунных клеток в микроокружении опухоли.
Методическая статья
Визуализация и количественный анализ иммунных клеток в микроокружении опухоли с использованием модели нейробластомы на зебрафишках
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Привлечение иммунных клеток в микроокружение опухоли (МОО) является важным компонентом иммунорегуляции и прогрессирования опухоли. Изучение пространственных и временных взаимосвязей между иммунными и опухолевыми клетками in vivo позволяет получить представление о взаимодействиях внутри МОО. Однако визуализация и количественная оценка этих взаимодействий в неповрежденных организмах с помощью традиционных методов визуализации и гистологического анализа остается сложной задачей. Данио-рерио (Zebrafish) представляют собой ценную модель для исследований рака благодаря их генетической доступности, быстрому развитию и оптической прозрачности на ранних стадиях развития, что позволяет визуализировать флуоресцентно меченные клетки. in vivoВ данной работе мы представляем протокол получения, идентификации, визуализации и количественного анализа иммунных и опухолевых клеток, дифференциально помеченных флуоресцентными маркерами, на модели нейробластомы уrafishки (zebrafish). Протокол включает разведение и скрининг компаундных трансгенных линий данио-рерио, прижизненную визуализацию личинок, подготовку и визуализацию взрослых рыб с опухолями, а также количественную оценку иммунных клеток, окружающих опухолевые области и находящихся внутри них. С использованием трансгенных репортерных линий CD4+ иммунные клетки и MYCNнейробластомы можно визуализировать и анализировать на разных стадиях развития. Данный рабочий процесс позволяет оценить локализацию иммунных клеток относительно опухолей как у личинок, так и у взрослых рыб, а также может быть использован для сравнения количества иммунных клеток на различных стадиях заболевания. В данном протоколе представлен воспроизводимый подход к визуализации и количественному определению иммунных клеток в микроокружении опухоли (TME) in vivo с использованием данио-рерио и может способствовать изучению взаимодействий между иммунной системой и опухолью в других моделях рака.
Введение
Микроокружение опухоли (TME) представляет собой экосистему, состоящую из опухолевых, иммунных, фибробластных и сосудистых клеток1. TME играет важную роль в прогрессировании рака, ответе на терапию и противоопухолевом иммунитете. Внутри TME иммунные клетки являются ключевыми регуляторами судьбы опухоли, участвуя либо в противоопухолевом ответе, либо индуцируя иммуносупрессию2. Понимание механизмов привлечения, распределения и функции иммунных клеток в TME имеет решающее значение для выяснения того, каким образом опухоли уклоняются от иммунного надзора. Однако традиционные подходы к изучению TME, такие как конечная гистология, проточная цитометрия и секвенирование единичных клеток, дают лишь статические снимки и часто требуют разрушения структуры ткани, что приводит к потере пространственной информации и данных о межклеточных взаимодействиях3,4,5,6,7. Кроме того, возможности этих методов ограничены в визуализации и количественной оценке иммунных клеток в TME, особенно на ранних стадиях развития опухоли.
Рыбки-зебра (Danio rerio) являются мощной моделью для исследований рака благодаря своей низкой стоимости, быстрому развитию, относительной прозрачности и высокой генетической консервативности8,9. Эти преимущества обеспечивают воспроизводимую и масштабируемую экспериментальную систему, которая позволяет использовать большие выборки и проводить эффективный микроскопический скрининг в короткие сроки10. Важно отметить, что рыбки-зебра обладают значительным иммунологическим сходством с человеком, включая ключевые компоненты как врожденного, так и адаптивного иммунитета, что делает полученные результаты применимыми к заболеваниям человека11. Эти свойства особенно полезны для изучения детских видов рака, таких как нейробластома8. Вследствие этого было разработано множество иммунных репортерных линий и моделей рака на рыбках-зебра11. Таким образом, рыбки-зебра служат ценной моделью in vivo для изучения взаимодействий между опухолевыми и иммунными клетками, позволяя понять, как иммунная регуляция влияет на развитие опухоли, особенно на ранних стадиях.
Предыдущие исследования микроокружения опухоли (TME) у zebrafish в значительной степени опирались на модели ксенотрансплантатов опухолей в сочетании с конечной визуализацией для оценки локализации иммунных клеток внутри опухолей12,13,14,15,16,17. Несмотря на то что эти методы дают полезные сведения, они ограничены использованием двумерной визуализации, которая не позволяет полностью зафиксировать трехмерную организацию TME и пространственные взаимосвязи между опухолевыми и иммунными клетками в процессе развития14. Кроме того, модели ксенотрансплантатов опухолей предполагают искусственную трансплантацию опухолевых клеток человека и могут не в полной мере воспроизводить естественное возникновение опухоли18. Такие модели также обычно являются краткосрочными и не позволяют полноценно проследить прогрессирование опухоли или изменения в пространственной связи между опухолевыми и иммунными клетками в ходе развития14,19. Более того, данный подход обеспечивает ограниченное представление о пространственной организации, контексте развития и физиологической значимости поведения иммунных клеток внутри TME. Недавно мы и другие авторы применили комбинированных трансгенных zebrafish, в которых опухолевые и иммунные клетки дифференциально помечены флуоресцентными маркерами, для визуализации иммунных клеток, ассоциированных с опухолями20,21. Эти комбинированные трансгенные рыбки позволяют изучать TME на протяжении всего развития животного и опухоли, облегчая исследование взаимодействий между иммунными клетками и опухолью in vivo.
В данной работе мы представляем метод с использованием конфокальной микроскопии для изучения иммунных клеток в микроокружении опухоли (TME) на модели нейробластомы у zebrafish. В этом подходе мы использовали репортерные линии zebrafish, маркирующие иммунные клетки, и генетически модифицированную линию zebrafish с гиперэкспрессией человеческого онкогена MYCN под промотором дофамин-β-гидроксилазы (dβh), что приводит к развитию нейробластомы, напоминающей заболевание у человека20. В этой комбинированной трансгенной модели zebrafish опухолевые клетки и иммунные клетки дифференциально маркированы EGFP и mCherry соответственно. Промотор dβh активен в клетках симпатоадреналового ряда и использовался в нескольких моделях нейробластомы у zebrafish22,23,24,25. Кроме того, мы использовали промотор Cd4, управляющий флуоресценцией mCherry, для визуализации CD4+ клеток15. Конфокальная визуализация с получением Z-стека применялась для трехмерного анализа TME на разных стадиях развития опухоли, что позволило оценить пространственные взаимоотношения между опухолевыми и иммунными клетками в неповрежденной ткани. Данный метод позволяет анализировать организацию иммунных клеток относительно опухолевых клеток на различных этапах развития опухоли.
Протокол
All animal procedures were approved by the Institutional Animal Care and Use Committee (IACUC) at Boston University Chobanian & Avedisian School of Medicine under protocol PROTO202100001. The overall workflow for generation of compound transgenic zebrafish, larval imaging, adult tissue preparation, and image analysis is summarized in Figure 1.
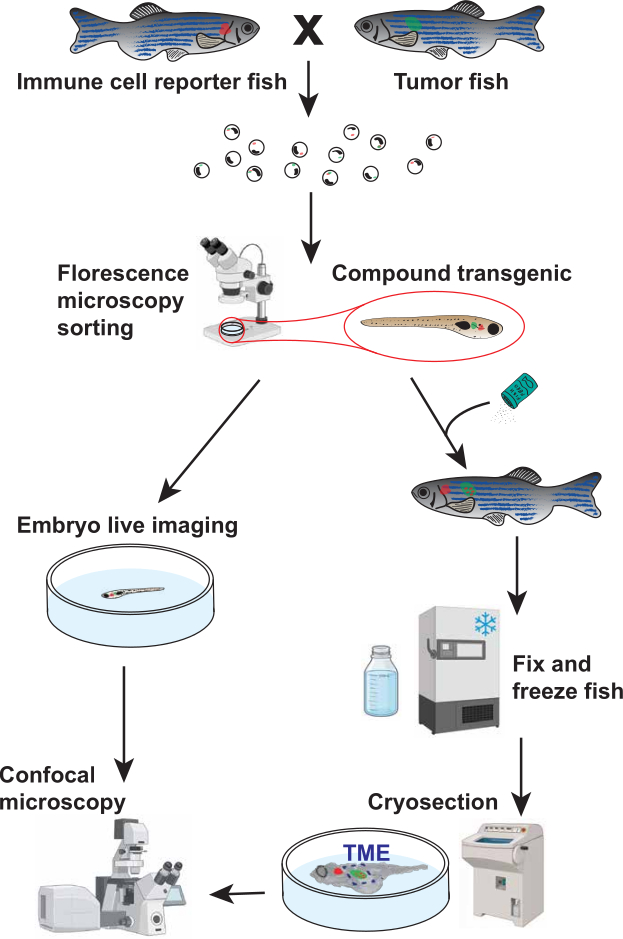
Figure 1. Workflow for visualization and quantification of immune cells within the zebrafish tumor microenvironment (TME). Schematic overview of the experimental workflow. Immune-reporter zebrafish were crossed with tumor-prone zebrafish to generate compound transgenic offspring expressing fluorescent markers in both immune cells (red) and tumor cells (green). Embryos were screened by fluorescence microscopy to identify compound transgenic fish. Selected fish were either subjected to live confocal imaging during larval development (<21 days post-fertilization [dpf]) or processed by fixation, cryosectioning, and confocal imaging for fish older than 21 dpf. This workflow enables visualization and quantification of immune cells associated with the TME across multiple developmental stages. Part of the illustration was created using BioRender. Please click here to view a larger version of this figure.
1. Generation of Compound Transgenic Zebrafish Lines Through Breeding
- Select adult immune-reporter fish and tumor fish that are at least 3 months old for natural breeding.
NOTE: For the representative results, Tg(cd4-1:mCherry) heterozygous fish were crossed with Tg(dβh:MYCN; dβh:EGFP) heterozygous fish to differentially label immune cells and tumor cells15,23. - On the evening before breeding, fill a two-chamber mating tank two-thirds full with fish water.
- Place a grated top insert into the mating chamber. Use dividers to separate one male from one or two females.
- Leave the dividers in place overnight. Add artificial plants or other enrichment items to simulate natural breeding conditions.
NOTE: A 1:2 male-to-female ratio increases the likelihood of successful spawning when breeding tumor male fish with immune-reporter fish. Do not breed two males with one female, as competition between males may occur. - On the following morning, remove the dividers after the facility lights turn on.
- Tilt the grated top chamber slightly using the divider as a wedge to create a shallow water area. Allow the fish to spawn for at least 1 h.
- Collect eggs from the bottom of the mating chamber by pouring the water through a fine-mesh net.
- Transfer the eggs to a sterile Petri dish containing fish water at a density no greater than 1 egg per 50 mm2 (approximately 200 eggs per 100 mm dish).
- Remove dead and unfertilized eggs.
NOTE: Healthy fertilized eggs are translucent and round. Remove cloudy, white, unfertilized, or deformed eggs. - Double-check the fish to avoid mixing sexes or cross-contaminating transgenic tanks.
- Return the males and females to their respective tanks.
- Place the embryos in a 28.5°C incubator overnight. Do not exceed the embryo density specified in Step 1.8.
- Bleach the embryos on the following morning to remove contaminants.
- Prepare a working bleach solution consisting of 100 µL bleach in 200 mL system water. Prepare a neutralization solution consisting of 0.5 g sodium thiosulfate in 150–200 mL system water.
- Sort and transfer viable embryos into a mesh-net well insert. Submerge the insert in the bleach solution for 5 min.
- Transfer the insert directly into the sodium thiosulfate solution. Incubate for 2 min to neutralize residual bleach.
- Rinse the embryos in a final bath of fresh system water. Use a squirt bottle to gently transfer the embryos into clean petri dishes containing fresh system water.
- Return the embryos to the incubator after bleaching.
- Transfer larvae at 5–7 days post-fertilization (dpf) or later to a larger tank containing 5 ppt rotifer water for rearing.
- Prepare 5 ppt rotifer water by mixing 1 part stock rotifer water (15 ppt) with 2 parts zebrafish system water.
- Verify that the final salinity is 5 ppt using a conductivity meter before transferring the larvae.
NOTE: Sorting EGFP+ MYCN larvae at 3–5 dpf facilitates identification of tumor-prone fish before rearing. Sorting MYCN embryos at this stage avoids false-negative identification because EGFP expression in neural crest cells may decrease later in development due to MYCN-induced apoptosis.
2. Screening Zebrafish for Fluorescent Markers
- Prepare a 0.4% (w/v) tricaine stock solution using system water.
- Transfer the fish to a clean petri dish containing only enough system water to cover the bottom.
- Add the tricaine stock solution to achieve a final concentration of approximately 0.005% (50 mg/L) for fish younger than 14 dpf or 0.012% (120 mg/L) for fish older than 14 dpf. Confirm adequate anesthesia by observing little to no voluntary movement.
- Remove excess water from the dish once the fish are anesthetized and no longer capable of swimming while maintaining visible opercular or cardiac movement.
- Screen the fish for fluorescence. Identify green or red fluorescence in the expected region (e.g., the interrenal gland region in MYCN fish).
- Separate the fish into groups using a stiff-bristled sorting tool.
NOTE: Sort tumor-prone fish as early as possible because MYCN-induced apoptosis during later developmental stages may result in false-negative identification. Sort immune-reporter fish immediately before imaging at the larval stage or between 2 and 4 months of age for adult studies. This approach minimizes handling-associated stress and maximizes survival. - Transfer positive and negative fish to separate tanks containing system water for continued rearing.
NOTE: Step 3 describes handling and imaging of larvae younger than 21 dpf. Steps 4–6 describe fixation, tissue preparation, imaging, and image analysis of older fish.
3. Larval Live-Mounting and Imaging
- Place sorted larvae in a 100 mm petri dish containing tricaine fish water (see Step 2.3 for age-appropriate concentrations).
- Transfer the sedated larvae to a glass-bottom imaging dish.
- Use only enough solution to cover the larva and maintain sedation.
- Prepare 1%–1.5% low-melting agarose in fish water. Heat the agarose solution until fully dissolved.
- Allow the agarose to cool for 1–2 min. Maintain the agarose at 30°C using a heat block to prevent solidification prior to mounting.
- Position each larva laterally in the imaging dish.
- Apply approximately 30–200 µL of agarose over the larva to immobilize it. Use larger volumes for larger larvae and smaller volumes for smaller larvae.
- Once the agarose has solidified, add approximately 100 µL of 0.005% tricaine solution over the agarose.
- Image the larvae using a confocal microscope.
- Use a standard laser-scanning confocal microscope with a resonant scanner. Use a 40× objective with a numerical aperture greater than 1.10.
- Set the pinhole to 1.0 Airy unit (AU) for all imaging channels.
- Use a 488 nm laser for EGFP excitation and a 594 nm laser for mCherry excitation. Keep laser output below 25 mW to minimize photobleaching and phototoxicity. Adjust detector gain and laser power using a range indicator lookup table (LUT) to avoid pixel saturation and black clipping. Do not exceed a detector gain of 800 V because higher voltages introduce excessive noise.
- Use a voxel size of 0.42 × 0.42 × 6.0 µm (x, y, z) at a resolution of 1024 × 1024 pixels and a Z-step interval of 6.0 µm. Acquire optical sections continuously through the full volume of interest, typically spanning 90–120 µm in total imaging depth. Use highly sensitive photodetectors operating in 16-bit acquisition mode.
- Acquire images using unidirectional line scanning at a resonant scan frequency of 33.3 kHz (approximately 1.58 µs pixel dwell time). Use 2× or 4× averaging to reduce motion artifacts while limiting laser exposure.
NOTE: Optimize tricaine exposure to maintain larval survival during imaging. After imaging, add fish water until the imaging dish is approximately half full.
- Add fresh fish water to the imaging dish immediately after imaging.
- Gently remove the larva from the agarose using a stiff-bristled stick and transfer the larva to a dish containing clean fish water for recovery.
- Return the fish to its original tank once normal swimming behavior resumes.
NOTE: For fish older than 21 dpf, the skin overlying the tumor must be removed by cryosectioning to enable high-resolution confocal imaging.
4. Fish Fixation and Cryosectioning
- Euthanize fish in accordance with approved institutional animal care guidelines.
- Make a ventral incision extending from the anal pore to the pectoral girdle to expose the abdominal cavity and facilitate fixative penetration into internal tissues.
- Transfer the fish using forceps into a 1.5 mL tube containing 4% paraformaldehyde (PFA) in phosphate-buffered saline (PBS) or a volume of fixative at least 10-fold greater than the tissue volume.
NOTE: Avoid handling the region containing the tumor to preserve tissue integrity. - Place the samples on a nutating rocker set to gentle continuous agitation (30 rpm) and incubate overnight for at least 12 h at 4°C.
CAUTION: PFA is hazardous, toxic, and potentially carcinogenic. Wear appropriate personal protective equipment, including gloves and eye protection. Perform all procedures involving PFA in a fume hood and avoid inhalation of vapors. - Remove the PFA and wash the samples at least four times with 1.5 mL of 1× PBS. Gently invert the tube two to three times during each wash.
- Transfer the fish to 30% sucrose prepared in PBS.
- Incubate the fish in a cold room overnight until the specimen sinks to the bottom of an upright tube (approximately 12 h), indicating adequate sucrose penetration.
- Remove excess sucrose solution by gently blotting the fish on a laboratory tissue.
- Transfer the fish to storage tubes.
- Store the samples at −80°C until imaging.
NOTE: Process samples within 3 months to minimize fluorescent protein degradation and signal loss. - Transport the fixed fish to the cryostat room on dry ice.
- Place the fish flat in a plastic mold with one sagittal side facing downward.
- Add Optimal Cutting Temperature (OCT) compound until the fish is fully covered.
- Freeze the mold at −20°C or in the cryostat until the OCT turns white.
NOTE: Position the fish as flat as possible before freezing to facilitate consistent sectioning. - Cryosection the zebrafish in the sagittal plane to remove the skin for subsequent whole-mount imaging.
- Cool the cryostat chuck.
- Apply room-temperature OCT to the chuck.
- Press the OCT fish block firmly into the OCT layer.
- Freeze the chuck and block until the newly applied OCT turns white.
- Mount the chuck in the cryostat.
- Cryosection the block at a thickness of 14 µm until the blade reaches the specimen.
NOTE: Specimen shifting may occur during freezing, causing the fish to sit higher in the block than expected. Entry into the specimen is indicated by the appearance of translucent tissue replacing the opaque OCT background. - Reduce the section thickness to 7 µm.
- Continue sectioning for one additional cut.
NOTE: This procedure removes the skin while preserving a uniform sagittal profile across the specimen. - Confirm the endpoint by identifying skin in the collected sections.
NOTE: Skin appearance in sections provides a more reliable indicator than eye morphology. Perform this procedure only when the skin obscures imaging of the tumor microenvironment.
- Warm the chuck gently with your hands.
- Remove the OCT block from the chuck using forceps. Avoid disturbing the cut surface of the specimen.
- Trim excess OCT surrounding the fish while the OCT remains frozen.
- Remove the fish from the OCT block using forceps once the OCT softens to a viscous consistency.
5. Mounting and Imaging of Fish with Skin Removed
- Place the fish in a glass-bottom dish with the sectioned sagittal side facing the glass surface.
NOTE: Maintain the orientation of the fish during handling. Identifying the sectioned side may become difficult after the fish is removed from the OCT block. - Prepare 1%–1.5% low-melting agarose.
- Apply approximately 30–50 µL of agarose to the dorsal and ventral sides of the fish to secure the sample.
NOTE: Avoid placing agarose beneath the fish because it can reduce image quality. Use only the minimum amount of agarose required for stabilization. - Keep the sample on ice during transport. Image the sample within 2 h of mounting.
- Transport the sample to the confocal microscopy facility.
- Image the sample using confocal microscopy.
- Use a standard laser-scanning confocal microscope with a resonant scanner. A two-photon microscope may be used when autofluorescence limits image quality. Use a corrected 20× objective lens with a numerical aperture of at least 0.80.
- Set the pinhole to 1.0 Airy unit (AU) for all imaging channels.
- Use a 488 nm laser for EGFP excitation and a 594 nm laser for mCherry excitation. Keep laser output below 25 mW. Adjust detector gain and laser power using a range indicator lookup table (LUT) to avoid pixel saturation and black clipping. Do not exceed a detector gain of 800 V because higher voltages introduce excessive noise.
- Configure image acquisition parameters as follows.
- Use a voxel size of 0.42 × 0.42 × 6.0 µm (x, y, z) at a resolution of 1024 × 1024 pixels and a Z-step interval of 6.0 µm.
- Acquire spectral image stacks through the full volume of interest, typically spanning a total Z-stack acquisition range of 90–120 µm (15–20 optical sections).
- Initiate image acquisition in the fluid space immediately above the tissue surface and continue through the full target imaging depth to ensure complete coverage of the specimen.
- Acquire images using highly sensitive photodetectors operating in 16-bit acquisition mode.
- Acquire images using unidirectional line scanning at a resonant scan frequency of 33.3 kHz (approximately 1.58 µs pixel dwell time) with 8× line averaging.
6. Image Analysis and Quantification
- Image visualization using Fiji (version 1.54p).
- Open the confocal z-stack images.
- Merge colors to see channel overlay by selecting Image > Color > Merge Channels.
- Generate a projection of the full z-range containing the imaging region by selecting Image > Stacks > Z Project. Enter the slice range of interest, as well as Max Intensity projection type. This will display the 2D projection of the image.
NOTE: For larval fish, it is feasible to capture the whole TME by confocal microscopy. Therefore, we recommend the volumetric normalization and quantification method for the TME analysis. For older fish, it is impossible to capture the whole TME by confocal microscopy; therefore, we recommend applying the area-based normalization and quantification method. Based on our analysis and quantification of the larval fish, both methods can provide reliable biological results.
- Volumetric normalization and quantification of the TME in the larval fish.
- Quantifying tumor volume using MATLAB R2022b (download the package from the Matlab website) and Bio-Formats package (download from the openmicroscopy website).
- The user runs a script that performs the following tasks:
- Prompt the user to select a .CZI file from their computer.
- Read the image and extract the data from the channel containing the tumor region.
- Identify the region for each slice that is the tumor region through a threshold of fluorescence (can be through user input or machine learning), keeping the same threshold for all analyzed images for consistency.
- Outline the tumor region and display the image with the tumor region outlined in a collage of all slices for user verification.
- Calculate the area of the tumor region per slice in pixels and convert to mm2 using the scale of the image and imaging settings.
- Multiply the area of the tumor region by the depth (stored in the file’s metadata) to get the volume of each slice.
- Sum the calculated values of each slice to obtain the total volume of the imaged tumor and its surrounding region in voxels or mm3.
- Scale both volume measurements by multiplying by 104 for tumor volume and 106 for the surrounding region. This will create a more reasonable cell number:volume ratio during normalization.
- Quantifying cell number.
- Open the confocal z-stack images.
- Merge colors to see channel overlay by selecting Image > Color > Merge Channels.
- Generate a 3D view of the full z-range containing the imaging region by selecting Image > Stacks > 3D Project. Select Brightest Point as the projection method and other settings to the desired values.
- Due to the small number of cells, manually count and tabulate the cells, separating cells located within the tumor boundary from those located outside the tumor boundary.
NOTE: Cells on the boundary of the tumor region are counted as being outside.
- Normalization.
- For infiltrating cells inside the tumor region, divide the number of cells by the scaled tumor volume. For the cells outside the tumor region, divide the number of cells outside the tumor volume by the scaled volume of the full image minus the tumor volume.
- Generate a table that includes the following headings: “fish identification”, “tumor volume”, “# of cells inside tumor region”, “# of cells outside tumor region”, “normalized cells inside”, “normalized cells outside”.
- Area-based normalization and quantification of the TME.
- Define the tumor region of interest (ROI) using the Rectangle or Freehand selection tool to outline the tumor.
- Add the ROI to the ROI Manager by pressing T or by selecting Analyze > Tools > ROI Manager > Add.
- Measure the ROI area using Analyze > Measure.
- Confirm that Area is selected under Set Measurements before recording measurements.
- Save the ROI in the ROI Manager.
- Apply the same ROI to all images using ROI Manager > More > Multi-Measure.
- Do not resize the ROI between images.
- Manually count cells within the ROI. If cells are more, count cells using the Cell Counter plugin by selecting Plugins > Analyze > Cell Counter.
- Mark each counted cell by left-clicking when its centroid falls within the ROI.
- Scroll through the z-stack to verify cell identity.
- Avoid counting the same cell more than once across multiple image planes.
- Count infiltrating cells separately if they contact or lie within the tumor boundary.
- Record infiltrating cells as a distinct category even when the cell centroid falls outside the ROI.
- Convert the ROI area from pixels to mm2.
- Obtain the pixel width, pixel height, and Z-step interval from Image > Properties.
- Calculation of normalized cell counts.
- Divide the raw cell count for each fish by the corresponding ROI area value.
- Record the resulting value as the normalized cell count.
- For absolute density measurements, calculate the physical area using the image calibration values obtained from Image > Properties.
- Divide the raw cell count by the calculated area (mm2).
- Record the result as cell density expressed as cells/mm2.
Результаты
Общая схема экспериментального процесса показана на рисунке 1. Взрослых зебрафишей Tg(cd4-1:mCherry) скрещивали с зебрафишами Tg(dβh:MYCN;dβh:EGFP) для получения комбинированного трансгенного потомства, в котором клетки CD4+ и клетки, экспрессирующие dβh, были дифференциально помечены флуоресценцией mCherry и EGFP соответственно. Эмбрионы проверяли на наличие соответствующих флуоресцентных маркеров, после чего анализировали с помощью конфокальной микроскопии живых организмов в ходе развития личинок или конфокальной микроскопии после фиксации и криосекционирования у более старых рыб (рисунок 1).
Для оценки связи клеток CD4+ с предмалигнальными очагами нейробластомы в ходе личиночного развития проводили визуализацию компаунд-трансгенных рыб на 7-й и 14-й дни после оплодотворения (dpf). Эти временные точки были выбраны с учетом стадий развития лимфоцитов уrafishки-зебрафиш26,27. Репрезентативные конфокальные изображения представлены на рисунке 2A. На 7-й день dpf клетки CD4+ редко наблюдались внутри или вокруг области экспрессии dβh как у контрольных рыб, так и у рыб, экспрессирующих MYCN (рисунок 2A; дополнительные видео 1 и 2). На 14-й день dpf у рыб, экспрессирующих MYCN, наблюдалось повышенное количество клеток CD4+, ассоциированных с предмалигнальной опухолью, производной от нейрального гребня, по сравнению с областью симпатоадренальных предшественников, производных от нейрального гребня, у контрольных рыб (рисунок 2A; дополнительные видео 3 и 4).
Чтобы учесть различия в размере опухоли и способность конфокальной микроскопии охватить всю опухоль у личинок рыб, мы сравнили методы нормализации по объему и по площади. Важно отметить, что методы нормализации по объему и по площади дали сопоставимые результаты у личинок рыб, что подтверждает возможность использования нормализации по площади для взрослых опухолей, когда полный объем опухоли не может быть зафиксирован с помощью конфокальной микроскопии. Количественный анализ не выявил значимых различий в количестве окружающих CD4+ клеток между группами в обе временные точки (Рисунок 2B, снизу; n = 4 и 6 на 7-е сутки после оплодотворения (dpf) и n = 4 и 5 на 14-е сутки dpf для контрольной группы и группы MYCN соответственно). Напротив, у рыб, экспрессирующих MYCN, наблюдалась значительно более выраженная инфильтрация CD4+ клетками в анализируемой области на 14-е сутки dpf по сравнению с контрольными рыбами (Рисунок 2B, сверху; P < 0.05; n = 4 и 5 для контрольной группы и группы MYCN соответственно). Данные представлены в виде нормализованного количества клеток относительно объема опухоли (cells/mm3) и выражены как среднее значение ± SEM.
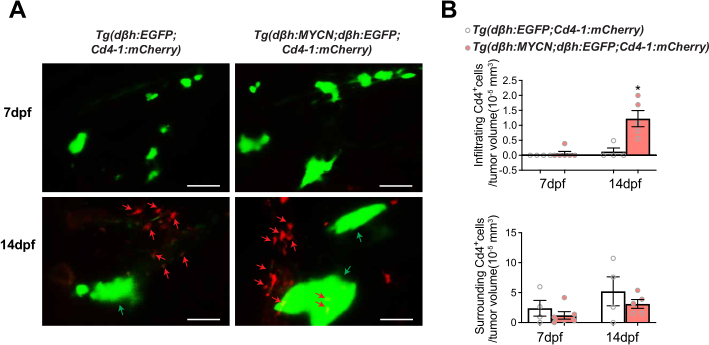
Рисунок 2Повышение ассоциации CD4+ клеток с очагами нейробластомы, экспрессирующими MYCN, на 14-й день после оплодотворения. (A) Репрезентативные конфокальные изображения Tg(dβh:EGFP;Cd4-1:mCherry) контрольная группа рыб и Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry) рыб на 7-е и 14-е сутки после оплодотворения (dpf). EGFP-положительные клетки (зеленого цвета) отмечают дβчэкспрессирующие [ген/белок]-клетки, производные нервного гребня/нейробластомы, и CD4+ клетки помечены mCherry (красный). Стрелки указывают на репрезентативные CD4+ клетки, ассоциированные с областью нервного гребня/опухоли. Масштабные отрезки = 50 µm. (B) Количественное определение CD4+ клетки, окружающие (снизу) и инфильтрирующие (сверху) область нейрального гребня/опухоли у контрольных рыб и рыб, экспрессирующих MYCN, на 7-й и 14-й дни после оплодотворения (dpf). Количество клеток было нормализовано по объему опухоли (клеток/мм³)3). Данные представлены в виде среднего значения ± SEM. Статистические сравнения проводили с использованием независимых двухсторонних Пожалуйста, предоставьте текст для перевода.-тесты. P < 0,05. n = 4 и 6 на 7-й день после оплодотворения (dpf) и n = 4 и 5 на 14-й день после оплодотворения (dpf) для контрольной группы и группы MYCN соответственно. Репрезентативные данные трех независимых экспериментов. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Для изучения связи CD4+-клеток с сформировавшимися опухолями сортированные компаундные трансгенные рыбы были выращены до взрослого состояния и проанализированы после фиксации, криосекционирования и конфокальной визуализации (Рисунок 1). Репрезентативные изображения локализованной и метастатической нейробластомы у 4-месячных рыб представлены на Рисунке 3A. Опухоли классифицировались как метастатические, если EGFP-положительные опухолевые клетки обнаруживались за пределами периферических симпатических ганглиев. Мы применили метод количественного анализа на основе площади, так как конфокальная микроскопия не позволяет охватить весь объем опухоли. Наш анализ выявил значительное увеличение количества CD4+-клеток, окружающих метастатические опухоли или инфильтрирующих их, по сравнению с локализованными опухолями (Рисунок 3B; P < 0.05; n = 4 на группу). Данные представлены в виде нормализованного количества клеток на площадь опухоли (cells/mm2) и выражены как среднее значение ± SEM.
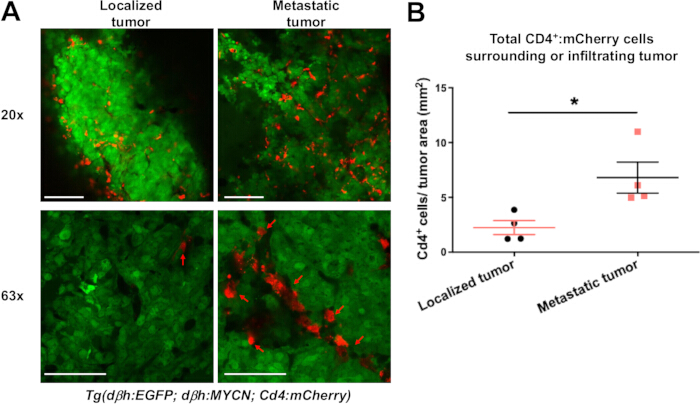
Рисунок 3. Метастатическая нейробластома характеризуется повышенной инфильтрацией CD4+ клетками в микроокружении опухоли. (A) Репрезентативные конфокальные изображения локализованной и метастатической нейробластомы у 4-месячных сиблингов зебрани-зебра Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry). Опухолевые клетки помечены EGFP (зеленый), а CD4+ клетки — mCherry (красный). Стрелки указывают на репрезентативные CD4+ клетки, связанные с опухолевой тканью. Изображения, полученные с использованием объективов 20× и 63×, представлены как отдельные поля зрения. Масштабные отрезки = 100 µm (20×) и 50 µm (63×). (B) Количественный анализ общего числа CD4+ клеток, окружающих или инфильтрирующих локализованные и метастатические опухоли. Количество клеток было нормализовано по размеру опухоли, как описано в протоколе. Данные представлены как среднее ± SEM. Статистические сравнения проводились с использованием двухсторонних непарных t-критериев. P < 0.05. n = 4 в группе. Репрезентативные данные трех независимых экспериментов. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Эти результаты демонстрируют, что данный протокол может быть использован для визуализации и количественного анализа CD4+ клеток, связанных с очагами нейробластомы на различных стадиях развития опухоли у zebrafish.
Дополнительное видео 1. Репрезентативный конфокальный z-стек контрольной рыбки зебрафиш на 7-й день после оплодотворения. Трехмерная конфокальная визуализация контрольной рыбки зебрафиш линии Tg(dβh:EGFP;Cd4-1:mCherry) на 7-й день после оплодотворения (dpf). EGFP-положительные клетки, производные от нервного гребня, показаны зеленым цветом, а CD4+ клетки — красным. На данной стадии развития в области экспрессии dβh или вокруг нее наблюдается малое количество CD4+ клеток. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительное видео 2. Репрезентативный конфокальный z-стек личинки zebrafish, экспрессирующей MYCN, на 7-й день после оплодотворения. Трехмерная конфокальная визуализация zebrafish Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry) на 7-й день после оплодотворения (dpf). EGFP-положительные предмалигностические клетки нейробластомы, экспрессирующие MYCN, показаны зеленым цветом, а CD4+ клетки — красным цветом. Подобно контрольным рыбам, на этой ранней стадии развития в области опухоли или вокруг нее наблюдается малое количество CD4+ клеток. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительное видео 3. Репрезентативный конфокальный z-стек контрольной рыбки данио-рерио на 14-й день после оплодотворения. Трехмерная конфокальная визуализация контрольной рыбки данио-рерио линии Tg(dβh:EGFP;Cd4-1:mCherry) на 14-й день после оплодотворения (dpf). EGFP-положительные клетки, производные от нервного гребня, показаны зеленым цветом, а CD4+ клетки — красным. CD4+ клетки распределены редко и демонстрируют ограниченную ассоциацию с областью экспрессии dβh. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительное видео 4. Репрезентативный конфокальный z-стек зебрафиш, экспрессирующей MYCN, на 14-й день после оплодотворения. Трехмерная конфокальная визуализация зебрафиш Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry) на 14-й день после оплодотворения (dpf). Премалигнантные клетки нейробластомы, экспрессирующие MYCN и положительные по EGFP, показаны зеленым цветом, а CD4+ клетки — красным цветом. Наблюдается повышенное накопление и инфильтрация CD4+ клеток в области увеличенной опухоли по сравнению с контрольными рыбами того же возраста, что согласуется с количественными данными, представленными на рисунке 2B. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
В описанном здесь протоколе используются рыбки данио-рерио в качестве модели in vivo для визуализации и количественной оценки иммунных клеток в микроокружении опухоли (TME). Для успешной реализации данного подхода критически важны несколько факторов. Во-первых, необходим правильный подбор и валидация комбинированных трансгенных линий данио-рерио. Личинок следует проверять на наличие ожидаемых паттернов флуоресцентной экспрессии и, при необходимости, подтверждать результат генотипированием. Перед началом экспериментов следует проверить экспрессию иммунных репортеров и онкогенов, чтобы обеспечить точное распределение по экспериментальным и контрольным группам. Во-вторых, при конфокальном сканировании критически важна точная идентификация области интереса. Визуализация в светлом поле может быть использована для определения анатомических ориентиров и облегчения локализации целевой ткани. Например, при визуализации опухолей в передней части тела в качестве ориентира для локализации можно использовать глаз. В-третьих, правильное позиционирование рыбки необходимо для обеспечения достаточной экспозиции сканируемой области. Неправильное выравнивание может привести к снижению качества изображения или перекрытию интересующей ткани. Наконец, для минимизации артефактов движения при прижизненной визуализации требуются надлежащий монтаж и иммобилизация. Концентрацию трикаина и продолжительность сканирования следует оптимизировать таким образом, чтобы поддерживать жизнеспособность личинок, сохраняя при этом качество изображений.
Фототоксичность можно минимизировать, снизив интенсивность лазерного излучения и время экспозиции во время прижизненной визуализации. Образцы взрослых особей следует содержать на льду во время манипуляций и подготовки к визуализации, так как повторное размораживание может нарушить целостность ткани. Особое внимание при работе с образцами необходимо уделять этапам после криосекционирования и извлечения из блока OCT.
Интерпретация результатов визуализации требует учета специфичности репортеров. Несколько линий с иммунными репортерами маркируют несколько популяций иммунных клеток. Например, экспрессия CD4 была зарегистрирована в популяциях клеток, помимо традиционных T-клеток, включая макрофаги28. Кроме того, помимо макрофагов, экспрессия mpeg также обнаруживается в B-клетках29. Lysc может маркировать как нейтрофилы, так и макрофаги30. Следовательно, экспрессии одного лишь флуоресцентного репортера может быть недостаточно для окончательного определения типа клеток. Дополнительные методы валидации, такие как RNAscope, проточная цитометрия, количественная полимеразная цепная реакция с обратной транскрипцией или секвенирование РНК единичных клеток, могут дополнить наблюдения на основе визуализации и обеспечить дополнительную молекулярную характеристику маркированных популяций клеток.
Данный метод имеет несколько ограничений. Подход основан на экспрессии флуоресцентных репортеров и, следовательно, не позволяет независимо подтвердить идентичность или функциональное состояние иммунных клеток. Кроме того, анализ изображений в представленном рабочем процессе для взрослых рыб основан на проекционных конфокальных наборах данных с ограниченным количеством слоев и может не в полной мере отражать сложные трехмерные клеточные взаимосвязи внутри TME. Наконец, метод также требует создания и поддержания сложных трансгенных линий zebrafish, что может ограничить его доступность для некоторых лабораторий.
Несмотря на эти ограничения, данный протокол предлагает практический подход к визуализации иммунных клеток, связанных с очагами нейробластомы у zebrafish. По сравнению с традиционной конечной гистологией, этот метод сохраняет архитектуру тканей и позволяет проводить визуализацию флуоресцентно-меченных клеток в интактных тканях20,21. Данный рабочий процесс может быть применен на различных стадиях развития и адаптирован для дополнительных линий флуоресцентных репортеров. Помимо нейробластомы, в ряде исследований изучалось TME для анализа взаимодействия между меланомой и иммунными клетками, включая CD4+ клетки, макрофаги и CD8+ клетки15,21,31,32. В совокупности эти особенности делают данный протокол полезной платформой для изучения локализации иммунных клеток внутри TME zebrafish.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Мы благодарим за поддержку Национальные институты здравоохранения (NIH; 1UL1TR001430, CA215059 и NS140967), Американское общество рака (RSG-17-204-01-TBG), Национальный научный фонд (1911253) и фонд Alex’s Lemonade Stand Foundation в лице H.F., а также стипендию Warren Alpert Distinguished Scholars Fellowship в лице X.Q. Y.W. поддерживался программой возможностей для исследований студентов бакалавриата Бостонского университета (UROP) и летней стипендиальной программой St. Baldrick’s. M.V. поддерживался летней стипендиальной программой St. Baldrick’s. Содержание этой статьи является исключительной ответственностью авторов и не обязательно отражает официальные взгляды NIH.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Наконечник для нанесения геля 200 µL | MilliporeSigma | 1022-0600 | Используется для манипуляций с личинками |
| Искусственные растения | The Hidden Reef | 62874200000000000 | Дополнительное обогащение среды для разведения |
| Отбеливатель | Fisher Scientific | 50371500 | Используется для деконтаминации эмбрионов |
| Плагин Cell Counter | National Institutes of Health (NIH) | N/A | Плагин Fiji для количественного анализа клеток |
| Компьютер и монитор | HP | 2TB68A8#ABA | Используются для получения и анализа изображений |
| Конфокальный микроскоп | Zeiss | LSM 710 | Используется для визуализации личинок и взрослых особей |
| Криоформа, пластиковая | Epredia | 22-050-160 | Используется для заливки в OCT |
| Криостат | Thermo Fisher Scientific | 95-664-0EC70 | Используется для криосеционирования |
| Сухой лед | Fisher Scientific | N/A | Используется для транспортировки образцов |
| Программное обеспечение Fiji | National Institutes of Health (NIH) | Version 1.54p | ПО для анализа изображений |
| Сеть с мелкими ячейками | Carolina Biological | 651345 | Используется для сбора эмбрионов |
| Инкубатор для рыб | VWR | 35960-056 | Поддерживается температура 28.5°C |
| Пинцет | Fisher Scientific | 10-316B | Используется для работы с образцами |
| Чашка со стеклянным дном | IBIDI | 81218-200 | Используется для визуализации |
| Низкоплавящий агароза | Prolab Supply | 9012-36-6 | Используется для фиксации личинок и взрослых особей |
| Резервуар для спаривания (основной резервуар, разделитель, решетчатая секция) | Carolina Biological | 161937 | Используется для разведения zebrafish |
| Нутирующий шейкер | Midsci | R2D-30 | Используется для фиксации при инкубации в течение ночи |
| Соединение OCT | Tissue-Tek | 4583 | Среда для заливки при криосеционировании |
| Параформальдегид (PFA) | Sigma Aldrich | 158127-500G | Фиксатор |
| Чашка Петри, пластиковая | MilliporeSigma | BR452000 | Используется для работы с эмбрионами и личинками |
| Фосфатно-солевой буфер (PBS) | Gibco | 14080-055 | Используется для промывки и процедур фиксации |
| Пластиковая трансферная пипетка | Fisher Scientific | 50-998-100 | Используется для переноса эмбрионов и личинок |
| Лезвие бритвы | Fisher Scientific | 12-640 | Используется при подготовке образцов |
| Кондуктометр | YSI | EC300ACC-04 | Используется для проверки солености воды с ротиферами |
| Ротиферы | The Hidden Reef | 116151603 | Используются для выкармливания личинок |
| Тиосульфат натрия | Thermo Fisher Scientific | AAA1762936 | Используется для нейтрализации отбеливателя |
| Сахароза | Fisher Scientific | S25590A | Криопротекторный реагент |
| Трикаинметансульфонат | Western Chemical | NC0872873 | Анестетик; продается через Fisher Scientific |
| Пинцет | Fisher Scientific | 12-000-122 | Используется для работы с образцами |
| Вертикальный флуоресцентный микроскоп | Leica | M165 | Используется для флуоресцентного скрининга |
Ссылки
- Anderson NM, Simon MC. The tumor microenvironment. Curr Biol. 2020;30(16):R921-R925.
- Kumagai S, Momoi Y, Nishikawa H. Immunogenomic cancer evolution: A framework to understand cancer immunosuppression. Sci Immunol. 2025;10(105):eabo5570.
- Keren L, et al. A structured tumor-immune microenvironment in triple negative breast cancer revealed by multiplexed ion beam imaging. Cell. 2018;174(6):1373-1387.e19.
- Gerner MY, et al. Histo-cytometry: A method for highly multiplex quantitative tissue imaging analysis applied to dendritic cell subset microanatomy in lymph nodes. Immunity. 2012;37(2):364-376.
- Pittet MJ, Weissleder R. Intravital imaging. Cell. 2011;147(5):983-991.
- Wienke J, et al. The immune landscape of neuroblastoma: Challenges and opportunities for novel therapeutic strategies in pediatric oncology. Eur J Cancer. 2021;144:123-150.
- Spitzer MH, Nolan GP. Mass cytometry: Single cells, many features. Cell. 2016;165(4):780-791.
- Roy D, et al. Zebrafish—A suitable model for rapid translation of effective therapies for pediatric cancers. Cancers (Basel). 2024;16(7):1361.
- White RM, et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2008;2(2):183-189.
- MacRae CA, Peterson RT. Zebrafish as tools for drug discovery. Nat Rev Drug Discov. 2015;14(10):721-731.
- Miao KZ, et al. Tipping the scales with zebrafish to understand adaptive tumor immunity. Front Cell Dev Biol. 2021;9:660969.
- Povoa V, et al. Innate immune evasion revealed in a colorectal zebrafish xenograft model. Nat Commun. 2021;12(1):1156.
- Wang J, et al. Novel mechanism of macrophage-mediated metastasis revealed in a zebrafish model of tumor development. Cancer Res. 2015;75(2):306-315.
- Loveless R, Shay C, Teng Y. Unveiling tumor microenvironment interactions using zebrafish models. Front Mol Biosci. 2020;7:611847.
- Dee CT, et al. CD4-transgenic zebrafish reveal tissue-resident Th2- and regulatory T cell-like populations and diverse mononuclear phagocytes. J Immunol. 2016;197(9):3520-3530.
- Murali Shankar N, et al. Preclinical assessment of CAR-NK cell-mediated killing efficacy and pharmacokinetics in a rapid zebrafish xenograft model of metastatic breast cancer. Front Immunol. 2023;14:1254821.
- Tan KE, et al. LMO1 expression in neuroblastoma cells reprograms tumor-associated macrophages to promote metastasis. iScience. 2026;29(3):115144.
- Fior R, et al. Single-cell functional and chemosensitive profiling of combinatorial colorectal therapy in zebrafish xenografts. Proc Natl Acad Sci U S A. 2017;114(39):E8234-E8243.
- Fazio M, et al. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 2020;20(5):263-273.
- Qin X, et al. CKLF instigates a “cold” microenvironment to promote MYCN-mediated tumor aggressiveness. Sci Adv. 2024;10(11):eadh9547.
- Ludin A, et al. CRATER tumor niches facilitate CD8+ T cell engagement and correspond with immunotherapy success. Cell. 2025;188(24):6720-6736.e26.
- Zhu S, et al. LMO1 synergizes with MYCN to promote neuroblastoma initiation and metastasis. Cancer Cell. 2017;32(3):310-323.e5.
- Tao T, et al. The pre-rRNA processing factor DEF is rate limiting for the pathogenesis of MYCN-driven neuroblastoma. Oncogene. 2017;36(27):3852-3867.
- Zimmerman MW, et al. MYC drives a subset of high-risk pediatric neuroblastomas and is activated through mechanisms including enhancer hijacking and focal enhancer amplification. Cancer Discov. 2018;8(3):320-335.
- Dankert EN, Look AT, Zhu S. Unraveling neuroblastoma pathogenesis with the zebrafish. Cell Cycle. 2018;17(4):395-396.
- Langenau DM, et al. In vivo tracking of T cell development, ablation, and engraftment in transgenic zebrafish. Proc Natl Acad Sci U S A. 2004;101(19):7369-7374.
- Lam SH, et al. Development and maturation of the immune system in zebrafish, Danio rerio: A gene expression profiling, in situ hybridization and immunological study. Dev Comp Immunol. 2004;28(1):9-28.
- Zhen A, et al. CD4 ligation on human blood monocytes triggers macrophage differentiation and enhances HIV infection. J Virol. 2014;88(17):9934-9946.
- Ferrero G, et al. The macrophage-expressed gene (mpeg)1 identifies a subpopulation of B cells in the adult zebrafish. J Leukoc Biol. 2020;107(3):431-443.
- Hall C, et al. The zebrafish lysozyme C promoter drives myeloid-specific expression in transgenic fish. BMC Dev Biol. 2007;7:42.
- Lorenzini F, et al. Melanoma innervation, noradrenaline and cancer progression in zebrafish xenograft model. Cell Death Discov. 2025;11(1):260.
- Ramakrishnan G, et al. Real-time imaging reveals a role for macrophage protrusive motility in melanoma invasion. J Cell Biol. 2025;224(2):e202403096.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно