В данном разделе представлен протокол препарирования средней кишки, яичников и слюнных желез Aedes albopictus с последующей экстракцией тотальной РНК для молекулярного анализа тканей переносчика в исследованиях передачи трансмиссивных вирусов.
Методическая статья
Диссекция Aedes albopictus и экстракция суммарной РНК из тканей после диссекции
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
В июле 2025 года в городе Фошань провинции Гуандун, Китай, произошла вспышка лихорадки денге и чикунгуньи. Ae. albopictus является основным переносчиком этих вирусов. В данном протоколе описывается простой стандартизированный метод препарирования средней кишки, слюнных желез и яичников Ae. albopictus и выделение тотальной РНК из препарированных тканей. Самки комаров трехсуточного возраста, не подвергавшиеся кормлению кровью, анестезировали путем замораживания при −20 °C в течение 2 мин, после чего проводили препарирование целевых тканей. Тотальную РНК экстрагировали с помощью набора для экстракции РНК из тканей, количественно определяли с помощью микрообъемного спектрофотометра и использовали для анализа методом количественной полимеразной цепной реакции с обратной транскрипцией (ОТ-кПЦР). Результаты показывают, что данный метод препарирования обеспечивает быстрое и полное разделение тканей, а РНК, выделенная из разделенных тканей, характеризуется относительно высокой степенью чистоты. Методом ОТ-кПЦР были изучены профили экспрессии и относительная стабильность трех референсных генов (GAPDH, β$\alpha$-актини RPS6). Метод является простым, валидированным и обеспечивает стандартизированную техническую поддержку для Ae. albopictus сопутствующие исследования
Введение
Aedes albopictus (Ae. albopictus) является переносчиком нескольких патогенов, включая вирус денге (DENV) и вирус чикунгунья (CHIKV)1,2,3. Этот вид широко распространен и стал причиной вспышек трансмиссивных заболеваний во многих регионах4,5. Способность Ae. albopictus передавать патогены, известная как векторная компетенция, варьирует между популяциями и связана со специфической экспрессией генов в средней кишке, яичниках и слюнных железах6. Понимание структуры этих тканей и выделение высококачественной РНК имеют решающее значение для изучения репликации, распространения и передачи вирусов, переносимых переносчиками7.
Определение относительной экспрессии генов с помощью количественной ПЦР в реальном времени (RT-qPCR) зависит от точности препарирования тканей Ae. albopictus и экстракции высококачественной РНК8,9. На сегодняшний день опубликованные видеопротоколы по препарированию средней кишки, яичников и слюнных желез были сосредоточены преимущественно на Aedes aegypti10. В связи с этим в данном протоколе демонстрируется препарирование средней кишки, яичников и слюнных желез Ae. albopictus, при котором препарированные ткани помещаются непосредственно в пробирки для гомогенизации с раствором для стабилизации РНК, что позволяет избежать этапов переноса тканей и минимизировать потери при их перемещении. Общая РНК экстрагируется из препарированных тканей с использованием колоночного метода, который требует меньше этапов манипуляций и меньше времени, чем традиционный метод TRIzol11. Такая экстракция обычно дает 0,1–0,3 µg общей РНК из слюнных желез пяти особей Ae. albopictus с соотношением A260/A280 от 1,8 до 2,0, что соответствует требованиям к чистоте для последующего проведения RT-qPCR. RT-qPCR проводится для измерения экспрессии трех референсных генов в тканях Ae. albopictus, что позволяет оценить качество РНК, экстрагированной из каждой ткани.
Следует отметить, что данный протокол был валидирован только для средней кишки, яичников и слюнных желез 3-дневных, непитавшихся кровью самок Ae. albopictus и не подходит для экстракции РНК из жирового тела. Получение неповрежденных отдельных тканей является основой для последующего анализа. Благодаря систематической диссекции тканей Ae. albopictus и высококачественной экстракции РНК данный протокол обеспечивает техническую поддержку для последующего определения экспрессии генов, оценки векторной компетенции на уровне популяции и контроля передачи арбовирусов.
Протокол
В данном исследовании использовались только выращенные в лабораторных условиях комары Ae. albopictus . В связи с этим этическое одобрение на уровне учреждения для данного исследования не требовалось. Штамм Ae. albopictus , использованный в эксперименте, был предоставлен Ключевой лабораторией по контролю и профилактике паразитарных заболеваний Национальной комиссии здравоохранения Китая (Цзянсу). Эта колония была первоначально собрана в городе Уси в 1980-х годах и поддерживалась в инсектарии Института паразитарных заболеваний Цзянсу в стандартных условиях. Колония комаров содержалась в камере с искусственным климатом при температуре 25 °C ± 1 °C и относительной влажности 75% ± 5% с фотопериодом 10 ч света и 14 ч темноты. Личинок выращивали в ультрачистой воде и кормили смесью порошка свиной печени и дрожжевого экстракта (Shanghai Brewery) в соотношении 2:1. Взрослых комаров содержали на 5% растворе глюкозы. Используемые реагенты и оборудование перечислены в Таблице материалов.
1. Подготовка материалов
- Приготовление растворов
- Приготовление 1x PBS буфера: Взвесьте 8.0 g NaCl, 0.2 g KCl, 1.44 g Na2HPO4 и 0.24 g KH2PO4. Растворите в 800 mL ультрачистой воды при перемешивании. Доведите pH до 7.4. Доведите конечный объем до 1 L. Автоклавируйте при 121 °C в течение 20 min.
- Приготовление раствора DEPC: Добавьте 1 mL стокового раствора DEPC в 1 L ультрачистой воды. Интенсивно перемешивайте на магнитной мешалке в течение 12–16 h. Автоклавируйте при 121 °C в течение 20 min.
ОСТОРОЖНО: DEPC высокотоксичен и канцерогенен. Работайте в перчатках и защитных очках, используйте вытяжной шкаф.
ПРИМЕЧАНИЕ: Во время интенсивного перемешивания накройте стакан алюминиевой фольгой. Разлейте раствор DEPC по аликвотам и храните при -20 °C до 6 месяцев.
- Подготовка расходных материалов
- Стерилизация инструментов для диссекции: Поместите диссекционные иглы диаметром 1 mm и остроконечные пинцеты в алюминиевый контейнер и автоклавируйте при 121 °C в течение 20 min.
- Подготовьте пробирки для гомогенизации объемом 2 mL, содержащие кварцевые шарики диаметром 0.5–1.0 mm. Поместите их в алюминиевый контейнер и автоклавируйте при 121 °C в течение 20 min.
- Добавьте 200 µL раствора для стабилизации РНК из набора в каждую пробирку для гомогенизации.
ПРИМЕЧАНИЕ: Качество РНК в тканях значительно снижается уже через 1 min после извлечения из организма. Подготовьте пробирки с раствором для стабилизации заранее.
2. Сбор Ae. albopictus
ПРИМЕЧАНИЕ: Наденьте белые лабораторные халаты и перчатки. Не надевайте темную одежду, так как темные цвета привлекают комаров.
- Закройте все двери, окна и системы вентиляции в помещении, где находится клетка с комарами, чтобы предотвратить побег Ae. albopictus.
- Включите электрический аспиратор и вставьте его в клетку. Направьте аспиратор на особей Ae. albopictus, находящихся на внутренних стенках клетки, и соберите комаров.
- Не выключайте аспиратор, медленно вынимая его из клетки. Немедленно герметизируйте клетку и закройте крышку аспиратора.
- Извлеките камеру для сбора и поместите ее при температуре -20 °C на 2 min для холодовой иммобилизации Ae. albopictus.
- Поместите стеклянную чашку диаметром 10 cm на лед для предварительного охлаждения. Перенесите иммобилизованных Ae. albopictus из камеры для сбора в стеклянную чашку.
ПРИМЕЧАНИЕ: Строго контролируйте время холодовой иммобилизации, чтобы избежать повреждения тканей.
3. Идентификация самок Ae. albopictus перед диссекцией
- Выберите морфологически неповрежденных, анестезированных холодом особей Ae. albopictus из стеклянной чашки и перенесите их на предметное стекло. Осмотрите их под стереомикроскопом при 80-кратном увеличении.
- Определите наличие белой продольной полосы на мезонотуме.
- Подтвердите наличие белых колец у основания члеников лапок и у основания абдоминальных тергитов II-VI12.
- Осмотрите антенны при 80-кратном увеличении. Отличите нитевидные антенны (самки) от перистых антенн (самцы), чтобы идентифицировать самок.
4. Диссекция брюшка Ae. albopictus
- Нанесите три капли стерильного 1x PBS слева направо на стерилизованный предметное стекло; объем каждой капли должен составлять примерно 20 µL, а расстояние между ними — примерно 5 mm.
ПРИМЕЧАНИЕ: Капли PBS должны быть достаточно большими, чтобы полностью погрузить в них Ae. albopictus. - С помощью тонкого пинцета захватите крылья Ae. albopictus и поместите комара в самую левую каплю PBS.
- Расположите Ae. albopictus вентральной стороной вверх. Удерживая в левой руке препаровальную иглу, нажмите на второй сегмент брюшка, чтобы зафиксировать Ae. albopictus.
- Правой рукой введите препаровальную иглу диаметром 1 mm в середину шестого сегмента брюшка. Сделайте поперечный полукруглый разрез, чтобы открыть брюшную полость.
- Сместите препаровальную иглу в правой руке примерно на 2 mm кзади и нажмите на среднюю область сегментов брюшка VI–VIII для фиксации брюшка.
ПРИМЕЧАНИЕ: Яичники расположены дорсально в пределах сегментов брюшка II-VI. Избегайте хаотичных движений иглой при нажатии на сегменты VI-VIII, чтобы не повредить морфологию яичников. - Захватите препаровальной иглой в левой руке второй сегмент брюшка и осторожно потяните наружу, чтобы отделить брюшко в области шестого сегмента. При отделении передняя кишка, средняя кишка и мальпигиевы сосуды будут полностью обнажены.
ПРИМЕЧАНИЕ: Мальпигиевы сосуды тонкие и белого цвета. Средняя кишка полупрозрачная и веретенообразная. - Отделите среднюю кишку от передней и задней кишки. Дважды промойте среднюю кишку в центральной капле PBS.
- Перенесите ее в пробирку для гомогенизации, содержащую 200 µL раствора для стабилизации РНК из коммерческого набора для экстракции РНК.
- Нажмите препаровальной иглой на середину восьмого сегмента брюшка, чтобы обнажить парные яичники по обеим сторонам. Извлеките яичники, дважды промойте их в центральной капле PBS и перенесите в пробирку для гомогенизации, содержащую 200 µL раствора для стабилизации РНК.
ПРИМЕЧАНИЕ: Парные яичники симметричны, имеют форму рисового зерна и молочно-белый цвет. Обращайтесь с ними осторожно, чтобы сохранить структурную целостность яичников при извлечении.
5. Препарирование слюнных желез Ae. albopictus
- Увеличьте увеличение микроскопа до 400x. Перенесите диссекированное брюшко Ae. albopictus в крайнюю правую каплю PBS.
- Осторожно надавите на мезоторакс диссекционной иглой в левой руке, пока голова не слегка приподнимется.
- С помощью диссекционной иглы в правой руке поднимите голову в области шеи и медленно потяните ее наружу. Проследите, чтобы слюнные железы (трехлопастная структура) отделялись от торакса вместе с головой.
ПРИМЕЧАНИЕ: Слюнные железы расположены в передней части торакса и соединяются с головой через слюнной проток. Равномерное давление на торакс предотвращает разрыв слюнного протока и позволяет слюнным железам отделиться от торакса вместе с головой в целости. Контроль силы на этом этапе требует многократной практики. - Отделите слюнные железы от головы. Дважды промойте их в центральной капле PBS и перенесите в подготовленную пробирку для гомогенизации.
ПРИМЕЧАНИЕ: Размер слюнных желез составляет примерно 1 mm. Перенесите их в пробирку для гомогенизации, содержащую 200 µL раствора для сохранения РНК, и осмотрите на фоне белого источника света, чтобы подтвердить наличие в растворе плавающих маленьких белых вкраплений.
6. Экстракция РНК из Ae. albopictus, а также из ее слюнных желез, яичников и средней кишки
ПРИМЕЧАНИЕ: Все этапы экстракции РНК выполнялись в соответствии с инструкциями производителя коммерческого набора для экстракции РНК из тканей, без модификаций.
- Предварительно охладите гомогенизатор тканей до 4 °C. Установите следующие параметры: частота 30 Hz, время измельчения 30 s, 10 циклов и время паузы 8 s.
- Поместите пробирки для измельчения с образцами тканей в гомогенизатор и запустите программу.
ПРИМЕЧАНИЕ: После измельчения проверьте, полностью ли диспергирована ткань в растворе для сохранения РНК. Если измельчение не завершено, выполните дополнительные 5 циклов. - Перенесите гомогенат в стерильную центрифужную пробирку объемом 1.5 mL. Центрифугируйте при 12,000 x g при 4 °C в течение 5 min.
- Перенесите супернатант в новую стерильную центрифужную пробирку объемом 1.5 mL. Добавьте 30 µL хлороформа.
ПРЕДОСТЕРЕЖЕНИЕ: Хлороформ токсичен и канцерогенен. Работайте в перчатках и защитных очках, используйте вытяжной шкаф. - Интенсивно перемешайте на вортексе в течение 20 s. Инкубируйте при комнатной температуре в течение 15 min, затем центрифугируйте при 12,000 x g при 4 °C в течение 15 min.
ПРИМЕЧАНИЕ: Осторожно аспирируйте верхнюю водную фазу, не затрагивая средний белый слой, чтобы избежать загрязнения белками. - Перенесите верхнюю водную фазу в новую стерильную центрифужную пробирку объемом 1.5 mL. Добавьте 75 µL изопропанола.
- Перемешайте путем инверсии и перенесите всю смесь в силикационную спин-колонку. Центрифугируйте при 12,000 x g в течение 1 min.
- Добавьте в колонку 600 µL промывочного буфера. Центрифугируйте при 12,000 x g в течение 30 s. Удалите фильтрат.
- Добавьте в колонку 600 µL 80% этанола. Центрифугируйте при 12,000 x g в течение 30 s. Удалите фильтрат. Повторите этот этап промывки еще раз, чтобы в общей сложности было выполнено две промывки.
- Добавьте 30 µL воды, обработанной DEPC, в центр мембраны колонки. Инкубируйте при комнатной температуре в течение 1 min.
- Поместите колонку в стерильную центрифужную пробирку объемом 1.5 mL. Центрифугируйте при 12,000 x g в течение 1 min для элюции РНК.
- Возьмите 1 µL элюированной РНК, измерьте ее концентрацию и чистоту с помощью микрообъемного спектрофотометра.
7. Обратная транскрипция РНК
- Подготовка реакционной системы
- Разморозить на льду 4x мастер-микс для обратной транскрипции, воду без нуклеаз и матричную РНК.
- В пробирке для ПЦР объемом 200 µL подготовить реакционную систему объемом 20 µL, добавив 5 µL 4x мастер-микса для обратной транскрипции, 10 µL общей матричной РНК и 5 µL воды без нуклеаз.
- Кратковременно центрифугировать при 1,000 x g в течение 1 мин для сбора реакционной смеси на дне пробирки.
- Поместить пробирку для ПЦР в амплификатор и запустить программу обратной транскрипции: 50 °C в течение 5 мин; 85 °C в течение 5 с.
ПРИМЕЧАНИЕ: Перед использованием развести продукт обратной транскрипции в 20 раз, чтобы снизить влияние потенциальных ингибиторов на RT-qPCR.
8. Количественная ПЦР в реальном времени (RT-qPCR)
- Подготовка реакционной смеси для RT-qPCR
- Разморозить на льду 2x SYBR Green qPCR master mix, матрицу кДНК, а также прямые и обратные праймеры (10 µM), на протяжении всего процесса оберегая их от света.
- В 96-луночном PCR-планшете подготовить реакционную смесь объемом 20 µL на лунку, добавив 10 µL 2x SYBR Green qPCR master mix, по 0,8 µL прямых и обратных праймеров (10 µM, конечная концентрация 400 nM), 2 µL матрицы кДНК в 20-кратном разведении и 6,4 µL воды, свободной от нуклеаз.
- Заклеить 96-луночный планшет оптической адгезивной пленкой, убедившись, что все лунки полностью герметичны.
- Центрифугировать при 1,000 x g в течение 1 мин, чтобы собрать реакционную смесь на дне лунок.
- Поместить PCR-планшет в систему детекции ПЦР в реальном времени и запустить программу термоциклирования.
ПРИМЕЧАНИЕ: Программа термоциклирования: предварительная денатурация при 95 °C в течение 30 с (1 цикл); амплификация: 95 °C в течение 30 с, 60 °C в течение 30 с (40 циклов); анализ кривых плавления: 95 °C в течение 15 с, 60 °C в течение 1 мин, нагрев до 95 °C со скоростью 0,15 °C/с. Каждый образец РНК ткани подвергается qPCR в четырех технических повторностях. Каждый образец ткани представляет собой пул тканей от 5 Ae. albopictus. Последовательности праймеров, использованных для RT-qPCR, приведены в Таблице 1.
- Анализ данных
- Оценить кривую плавления для каждой пары праймеров, чтобы подтвердить наличие одного четко выраженного пика диссоциации.
- Экспортировать значения Ct из программного обеспечения прибора. Построение графиков и анализ данных выполняются с помощью программного обеспечения для статистического анализа и визуализации данных.
| Названия праймеров | Последовательности праймеров (5''-3') |
| *Ae. albopictus* βпрямой праймер к $\beta$-актину | GGAGAAGATCTGGCATCACA |
| Ae. albopictus βреверс-праймер к $\beta$-актину | TGTCATCTTCTCGCGGTTAG |
| Ae. albopictus прямой праймер к GAPDH | CTGCCAAGGCTGTCGGTAA |
| Ae. albopictus Обратный праймер к GAPDH | TCATAGGAGGCAGGCTTGGA |
| Ae. albopictus Прямой праймер к RPS6 | ACAAGCTGCGTCACTTCTACGACA |
| Ae. albopictus Обратный праймер RPS6 | CTTGTCGTTTCCACCGGCAATCTT |
Таблица 1: Последовательности праймеров для Ae. albopictus, использованные в RT-qPCR.
Результаты
Данное исследование состоит из двух частей: препарирования Ae. albopictus и экстракции РНК из тканей после препарирования. Общий рабочий процесс показан на Рисунке 1, где на Рисунке 1A проиллюстрировано препарирование Ae. albopictus, а на Рисунке 1B — экстракция РНК и последующее определение уровней экспрессии референсных генов.
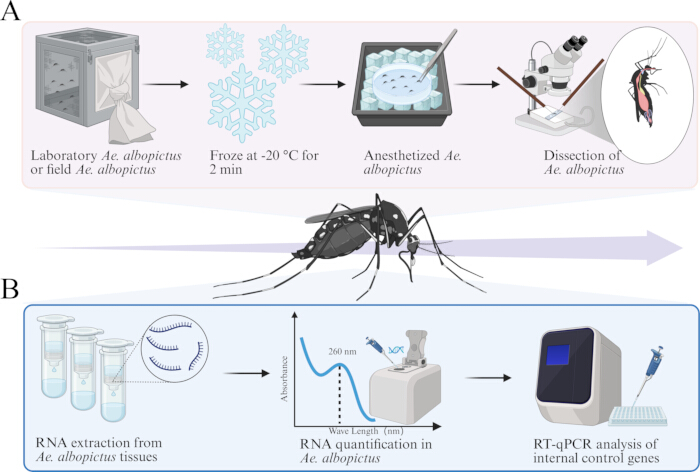
Рисунок 1: Схема препарирования Ae. albopictus и экстракции тотальной РНК из полученных тканей. (A) Сбор, анестезия и препарирование Ae. albopictus. (B) Экстракция РНК из полученных тканей, определение чистоты и анализ уровней экспрессии референсных генов. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Пять выращенных в лабораторных условиях Ae. albopictus были препарированы для выделения средней кишки, слюнных желез и яичников. При увеличении 80×, прозрачные передняя, средняя и задняя кишки Ae. albopictus были отчетливо видны, при этом зернистые яичники располагались по обе стороны и были прикрыты белыми мальпигиевыми сосудами (Рисунок 2A). При установке увеличения в 400×, полупрозрачные слюнные железы Ae. albopictus стали отчетливо наблюдаемыми (Рисунок 2B). Рисунок 2C,D проиллюстрировать изолированные ткани средней кишки и яичников. Результаты показали, что ткани, выделенные с помощью данного метода диссекции, сохранили свою структурную целостность, что имеет важное значение для последующей экстракции тотальной РНК из полученных образцов.
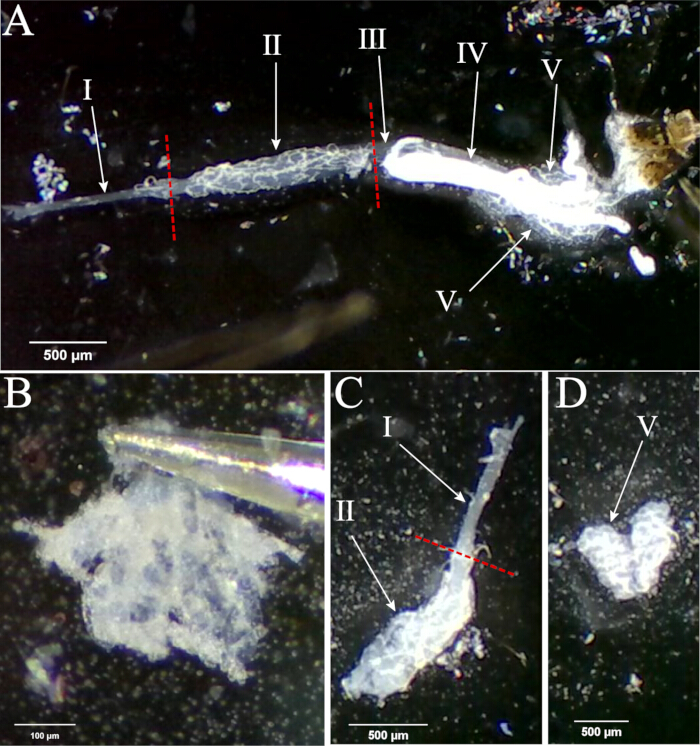
Рисунок 2: Анализ тканей Ae. albopictus после диссекции. (A) Выделение тканей из брюшка Ae. albopictus. (B) Полупрозрачные трехлопастные слюнные железы Ae. albopictus. (C) Передняя и средняя кишки Ae. albopictus. (D) Парные яичники Ae. albopictus, имеющие форму рисового зерна. I: передняя кишка; II: средняя кишка; III: задняя кишка; IV: мальпигиевы сосуды; V: яичники. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Общую РНК экстрагировали из препарированных тканей Ae. albopictus. Перед экстракцией образцы тканей (слюнные железы, средняя кишка и яичники) полностью растирали. Концентрация РНК варьировалась в зависимости от типа ткани: в слюнных железах она составила 7,8 ng/µL, в то время как в средней кишке, яичниках и гомогенатах всего тела самок Ae. albopictus она составила 55,3, 45,7 и 42,7 ng/µL соответственно. Все образцы продемонстрировали высокую чистоту с соотношением A260/A280 от 1,87 до 2,10 и соотношением A260/A230 от 1,73 до 2,13 (Таблица 2). Уровни экспрессии трех потенциальных референсных генов (GAPDH, β-actin и RPS6) оценивали методом RT-qPCR во всех тканях. Хотя их экспрессия несколько варьировалась в зависимости от концентрации РНК, все три гена оставались относительно стабильными в различных типах тканей (Рисунок 3). GAPDH, β-actin и RPS6 пригодны в качестве стабильных референсных генов для нормализации экспрессии генов в различных тканях Ae. albopictus.
| Ткань | Кол-во образцов | Конц. РНК (нг/μL) | A260/A280 | A260/A230 |
| Слюнная железа | 5 | 7.8 | 1.87 | 1.73 |
| Средняя кишка | 5 | 55.3 | 1.94 | 1.98 |
| Яичник | 5 | 45.7 | 2.10 | 2.13 |
| Женский пол | 1 | 42.7 | 2.04 | 1.92 |
Таблица 2: Концентрация и чистота РНК, экстрагированной из тканей Ae. albopictus.
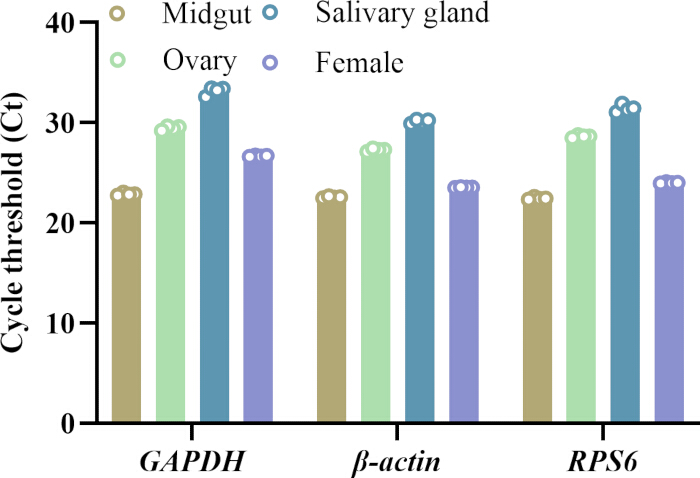
Рисунок 3: Значения Ct референсных генов (GAPDH, β-actin и RPS6), определенные методом RT-qPCR. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Обсуждение
Ae. albopictus широко распространен в умеренных, субтропических и тропических регионах на всех континентах, за исключением Антарктиды13,14. Являясь важным переносчиком арбовирусов, таких как вирус денге (DENV), вирус Зика (ZIKV) и вирус чикунгунья (CHIKV), этот вид неоднократно становился причиной вспышек трансмиссивных заболеваний в провинции Гуандун, Китай15.
Для содействия исследованиям вирусов, связанных с Ae. albopictus, и их передачи мы разработали простой метод препарирования тканей Ae. albopictus. В традиционных протоколах диссекции при отделении головы от груди во время выделения слюнных желез железы могут остаться прикрепленными либо к груди, либо к голове, в зависимости от приложенной силы; поскольку размер слюнных желез составляет всего около 1 mm, их поиск в пределах грудного отдела затруднен16. Данный метод основан на стандартных протоколах изоляции органов комаров и оптимизирует отделение слюнных желез, расположенных под простернальными и мезостернальными стернитами, которые следует рассматривать при увеличении 400×17. Для препарирования следует осторожно нажать на мезоторакс одной иглой, в то время как другой создать давление для отделения головы, что позволит слюнным железам отделиться в целости. Такой подход избавляет от необходимости искать слюнные железы в грудном отделе, предотвращает контаминацию и повреждение желез, а также сокращает общее время диссекции. Яичники расположены рядом с абдоминальными сегментами VI–VIII; для их сохранения диссекцию начинают с шестого сегмента брюшка, осторожно извлекая из него среднюю кишку, мальпигиевы сосуды и яичники18. Этот метод позволяет получить неповрежденные слюнные железы, яичники типичной формы без адгезии и целую среднюю кишку (Рисунок 2). Данная техника препарирования представляет собой ценное руководство для исследований Ae. albopictus, а также процессов репликации, распространения и передачи трансмиссивных вирусов.
Экстракция РНК из тканей Ae. albopictus имеет решающее значение для обнаружения вирусов, переносимых комарами. Традиционный метод с использованием TRIzol занимает много времени и технически сложен, однако он обычно обеспечивает высокий выход РНК и позволяет получить высококачественный материал при правильном выполнении. Напротив, метод на основе спин-колонок обеспечивает лучшую воспроизводимость и проще в исполнении, но может привести к более низкому выходу РНК и работает неэффективно при применении к жировому телу19,20. В данном исследовании выделенные ткани были оперативно законсервированы в стабилизаторе нуклеиновых кислот, тщательно гомогенизированы и обработаны методом спин-колонок для экстракции РНК с целью последующего синтеза кДНК21. Для обеспечения точной нормализации данных RT-qPCR с учетом вариаций качества кДНК необходимы стабильные референсные гены22. Несмотря на то, что референсные гены были установлены для различных стадий развития Ae. albopictus, тканеспецифические референсные гены требуют дальнейшей валидации23,24. RT-qPCR анализ РНК, подвергнутой обратной транскрипции, из всех выделенных тканей показал стабильную амплификацию GAPDH, β-actin и RPS6, что подтверждает достаточность качества РНК, полученной с помощью данного протокола препарирования, для проведения последующих исследований тканеспецифической экспрессии генов у Ae. albopictus.
При препарировании тканей Ae. albopictus по данному протоколу иногда может возникнуть ситуация, когда слюнные железы не отделяются вместе с головой. Обычно это происходит из-за недостаточного давления на грудной отдел в сочетании со слишком быстрым отделением головы. Чтобы решить эту проблему, приложите устойчивое давление к мезотораксу и медленно вытяните голову наружу, чтобы слюнные железы отделились вместе с ней в целости. При переносе слюнных желез в пробирку для гомогенизации с раствором для консервации РНК внимательно осмотрите раствор на просвет на наличие маленьких плавающих белых вкраплений. Если слюнные железы не обнаруживаются в пробирке, немедленно проверьте, не остались ли они прикрепленными к диссекционной игле. При экстракции РНК строго следуйте протоколу производителя набора. Если полученная концентрация РНК низкая, можно провести вторую элюцию с использованием элюирующего буфера. При проведении RT-qPCR на кривой плавления могут появиться несколько пиков; в этом случае сначала проверьте специфичность праймеров. Если значения Ct высоки, скорректируйте температуру отжига в программе в соответствии с температурой плавления праймера. В целом, температуру отжига в программе следует устанавливать на 1–2 °C ниже температуры плавления праймера25.
Данное исследование имеет ряд ограничений. Объем выборки относительно невелик и ограничен только средней кишкой, слюнными железами и тканями яичников, без исследования других тканей, таких как мальпигиевы сосуды и жировое тело26. Кроме того, анализ был ограничен лабораторно выращенными самками комаров в возрасте 3 дней, при этом особи, получившие кровь или зараженные вирусом, были исключены27. В будущих работах следует расширить объем выборки, включив такие ткани, как мальпигиевы сосуды, а также рассмотреть особей Ae. albopictus в различных физиологических состояниях.
Таким образом, препарирование средней кишки, яичников и слюнных желез Ae. albopictus с последующей экстракцией тотальной РНК создает техническую основу для дальнейшей оценки векторной компетенции и исследований по передаче арбовирусов.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Удлиненная пипетка Пастера 3 mL | WHB | WHB-S4 | 3 mL |
| ChamQ Universal SYBR qPCR Master Mix | Vazyme | Q711-02 | 500 rxns |
| HiScript IV All-in-One Ultra RT SuperMix for qPCR kit | Vazyme | R433-01 | 100 rxns |
| Набор для экстракции тотальной РНК Micro Total RNA Extraction Kit | MedTech | MDT-CFR07 | 100T/box |
| Микропипетка 0.5-10μL | Eppendorf | 4043444 | |
| Предметные стекла | CITOTEST | 80302-2104 | 75 mm×25 mm |
| Микроспектрофотометр | KAIAO | K5600C | |
| Буфер для экстракции нуклеиновых кислот | MedTech | MDT-TP01 | 100 mL |
| Фосфатно-солевой буфер PBS (стерильный) | Servicebio | G4202 | 500 ML |
| Термоциклер для ПЦР | Eppendorf | Mastercycler X50s | |
| Система ПЦР в реальном времени QuantStudioTM 7 Pro | Applied biosystems | EN61326-1 | |
| Комплект микроскопа Stemi 305 LAB | ZEISS | 435063-9010-000 |
Ссылки
- Hafsia S et al. Vector competence of Aedes albopictus and Aedes aegypti from the islands of the Southwestern Indian Ocean for epidemic Zika, dengue, and chikungunya viruses. Parasit Vectors. 2025;19(1):34.
- Zhang W, Wang J, Liu Q, Gong Z. A review of pathogens transmitted by the container-inhabiting mosquitoes, Aedes albopictus, a global public health threat. China CDC Wkly. 2023;5(44):984-990.
- Kraemer MUG et al. Past and future spread of the arbovirus vectors Aedes aegypti and Aedes albopictus. Nat Microbiol. 2019;4(5):854-863.
- Zhang M et al. Epidemiological characteristics and transmission dynamics of the early stage Chikungunya fever outbreak in Foshan City, Guangdong Province, China in 2025. Infect Dis Poverty. 2025;14(1):93.
- Meyer AD, Guerrero SM, Dean NE, Anderson KB, Stoddard ST, Perkins TA. Predictability of infectious disease outbreak severity: Chikungunya as a case study. Sci Adv. 2025;11(40):eadt5419.
- Wu Y et al. The making of a dangerous vector: factors shaping the vector competence of Aedes mosquitoes. Front Cell Infect Microbiol. 2025;15:1718737.
- Zhu C et al. Transcriptome analysis of Aedes aegypti midgut and salivary gland post-Zika virus infection. Curr Res Parasitol Vector Borne Dis. 2025;7:100251.
- Liu X, Yang S, Yao Y, Wu S, Wu P, Zhai Z. Opsin1 regulates light-evoked avoidance behavior in Aedes albopictus. BMC Biol. 2022;20(1):110.
- Zhang Y et al. Rapid differential detection of Japanese encephalitis virus and Getah virus in pigs or mosquitos by a duplex TaqMan real-time RT-PCR assay. Front Vet Sci. 2022;9:839443.
- Coleman J, Juhn J, James AA. Dissection of midgut and salivary glands from Ae. aegypti mosquitoes. J Vis Exp. 2007;4(5):228.
- Tesena P, Korchunjit W, Taylor J, Wongtawan T. Comparison of commercial RNA extraction kits and qPCR master mixes for studying gene expression in small biopsy tissue samples from the equine gastric epithelium. J Equine Sci. 2017;28(4):135-141.
- Ramdini C et al. First report of Aedes albopictus in Saint Barthélemy (French West Indies) confirmed by morphological, molecular and MALDI-TOF mass spectrometry approaches. Parasit Vectors. 2025;18(1):258.
- Battaglia V et al. The worldwide spread of Aedes albopictus: new insights from mitogenomes. Front Genet. 2022;13:931163.
- Laporta GZ, Potter AM, Oliveira JFA, Bourke BP, Pecor DB, Linton YM. Global distribution of Aedes aegypti and Aedes albopictus in a climate change scenario of regional rivalry. Insects. 2023;14(1):49.
- Yip SSW, Charm CYC, Ng KS, Lam SC. Chikungunya fever: a re-emerging mosquito-borne threat demanding proactive prevention strategies in Asia. Front Public Health. 2026;14:1745145.
- Tutagata J, Pocquet N, Trouche B, Reveillaud J. Dissection of mosquito ovaries, midgut, and salivary glands for microbiome analyses at the organ level. J Vis Exp. 2024;(212):67128.
- Schmid MA, Kauffman E, Payne A, Harris E, Kramer LD. Preparation of mosquito salivary gland extract and intradermal inoculation of mice. Bio Protoc. 2017;7(14):e2407.
- Airs PM, Nazarchyk MJ, Tucker BJ, Bartholomay LC. Characterizing oogenesis and programmed cell death in the eastern tree hole mosquito Aedes (Protomacleaya) triseriatus. Front Insect Sci. 2022;2:1073308.
- Chomczynski P, Sacchi N. The single-step method of RNA isolation by acid guanidinium thiocyanate-phenol-chloroform extraction: twenty-something years on. Nat Protoc. 2006;1(2):581-585.
- De Azevedo N, Lozano A, Parsons RE, Martin TC. Optimized protocols to extract total transcripts and proteins from lipid-rich tissues. Methods Protoc. 2026;9(2):65.
- García-Longoria L, Ahrén D, Berthomieu A, Kalbskopf V, Rivero A, Hellgren O. Immune gene expression in the mosquito vector Culex quinquefasciatus during an avian malaria infection. Mol Ecol. 2023;32(4):904-919.
- Lü J, Yang C, Zhang Y, Pan H. Selection of reference genes for the normalization of RT-qPCR data in gene expression studies in insects: a systematic review. Front Physiol. 2018;9:1560.
- Dzaki N, Azzam G. Assessment of Aedes albopictus reference genes for quantitative PCR at different stages of development. PLoS One. 2018;13(3):e0194664.
- Vedururu RK et al. RNASeq analysis of Aedes albopictus mosquito midguts after chikungunya virus infection. Viruses. 2019;11(6):513.
- Bustin SA et al. MIQE 2.0: revision of the Minimum Information for Publication of Quantitative Real-Time PCR Experiments guidelines. Clin Chem. 2025;71(6):634-651.
- Skowronek P, Wójcik Ł, Strachecka A. Fat body-multifunctional insect tissue. Insects. 2021;12(6):547.
- Goldman OV et al. A single-nucleus transcriptomic atlas of the adult Aedes aegypti mosquito. Cell. 2025;188(25):7267-90.e26.
Перепечатки и разрешения
