本文介绍了一套简明的小鼠新生期运动功能测试方法。利用这些测试,可在多种新生期运动障碍模型中检测出运动功能缺陷。通过采用标准化的测试方案,不同研究之间的结果可进行比较,从而实现各研究组之间更准确、更可靠的报告与交流。
本文内容
摘要
摘要
随着转基因小鼠品系数量的不断增加以及儿科疾病啮齿类动物模型的增多,人们对一套全面且标准化的新生小鼠运动功能检测方法的需求日益增长。这些检测可用于验证损伤或疾病模型、评估治疗效果,和/或分析新转基因品系的运动行为。本文介绍了一系列用于评估新生小鼠总体运动功能的检测方法,包括自主行走、后肢足角、表面翻正、负向趋地性、前肢与后肢悬吊、抓握反射、四肢握力以及悬崖回避反应。适用于出生后第2至14天的小鼠。此外,这些检测方法还可广泛应用于多种神经系统及神经肌肉系统病理状态的研究,包括脑性瘫痪、缺氧缺血性脑病、创伤性脑损伤、脊髓损伤、神经退行性疾病以及神经肌肉障碍。这些检测也可用于评估药物干预及其他类型治疗措施的效果。在本研究中,采用一种新型的新生小鼠脑性瘫痪模型对运动功能缺陷进行了评估,该模型结合了缺氧、缺血和炎症因素。损伤后48小时,九项检测中有五项显示出显著的运动功能缺陷:自主行走、后肢足角、后肢悬吊、四肢握力和抓握反射。这些结果揭示了后肢肌力减弱以及抓握等精细运动技能的受损,这与人类脑性瘫痪患者所表现出的运动功能障碍相似。
引言
开发儿科损伤或疾病的新啮齿类动物模型常常较为困难,原因是大鼠和小鼠在神经系统损伤后具有极强的快速恢复能力。因此,要验证任何新的儿科疾病模型,必须将细胞与分子水平的变化与行为学结果进行同步深入分析。在许多方面,功能性的行为恢复相较于潜在的细胞变化,可能在治疗或转化研究意义上更为重要。随着研究人员对成年与新生个体损伤机制的深入了解,已明确二者对损伤的反应存在显著差异,无法相互推断。例如,新生小鼠在脊髓损伤后,其神经生长因子、脑源性神经营养因子、神经营养素-3以及胶质细胞系源性神经营养因子的表达水平表现出不同的变化模式 1,2此外,新生儿在中风后存在显著的血脑屏障渗漏 3,展示外周神经损伤后皮层神经元的重组 4,并且在脊髓损伤和缺氧-缺血后出现延迟或减缓的星形胶质细胞增生 5,6因此,转化型儿科研究应采用发育阶段相匹配的模型,并对这些模型的细胞/分子变化进行评估 和 适合年龄的行为学测试
脑性瘫痪(CP)是一种每年影响约3/1000例活产婴儿的运动障碍疾病(NIH)。根据疾病严重程度的不同,患有脑性瘫痪的儿童表现出多种症状和共病情况。最常见的症状是运动和协调困难,以及在达到运动发育里程碑方面出现延迟。其他症状包括肌张力异常(增高或降低)、精细运动技能减退、行走困难、流涎过多和吞咽困难,以及语言发育迟缓(NIH)。目前认为,脑性瘫痪的根本原因是产前或围产期至产后一年内大脑缺氧和/或血流不足。此外,炎症现已被认为是脑性瘫痪发病过程中的关键因素。
大多数脑性瘫痪(CP)病例与脑室周围白质损伤相关,这种损伤被称为脑室周围白质软化(PVL)。这一神经学特征提示,导致CP的初始损伤发生在大脑发育的特定时期,即少突胶质细胞对损伤最为敏感的阶段。在人类中,少突胶质细胞快速生长的时期,也是其最易受损伤的时期,为妊娠24至32周。在啮齿类动物中,对应的时期为出生后第2至7天7,该时期也是本模型中诱导产生CP的时间窗口。
本研究采用的新生小鼠脑性瘫痪(CP)模型结合了缺氧缺血与炎症因素,以模拟更接近人类脑性瘫痪中所见的神经退行性损伤。该模型克服了其他脑性瘫痪动物模型中存在的一些主要缺陷,例如缺乏类似人类脑性瘫痪患者所表现出的明确运动功能障碍以及显著的白质损伤。此前,合作者利用相同模型的研究已证实,加入炎症因素可加重白质损伤,从而更好地模拟脑性瘫痪患儿中观察到的脑室周围白质软化(PVL)8。在既往研究数据的基础上,本文提供了一套全面的新生期运动功能测试方案,用于评估动物随年龄增长过程中运动行为的变化。
方案
注意:所有动物手术均按照天普大学(Temple University)动物资源中心(ULAR)部门以及机构动物护理与使用委员会(IACUC)的政策和程序进行。C57BL/6种鼠购自查尔斯河实验室(Charles River Laboratories),饲养于繁殖笼中,光照周期为12小时光照/12小时黑暗(光照时间:7:00 - 19:00),并可自由获取食物和饮水。繁殖配对产生的每窝仔鼠数量为5至10只。
1. 脑性瘫痪诱导手术
- 注意:脑性瘫痪模型使用出生后第6天(PND 6)的小鼠幼崽诱导,方法如前所述8,9(https://www.jove.com/video/1951/mouse-models-of-periventricular-leukomalacia)。
- 将一只幼崽置于装有冰块的玻璃碗中,并用实验室擦拭纸保护幼崽皮肤。通过夹捏足部并观察是否无反应来检查麻醉深度。随后将幼崽转移至带有软垫的冰袋上进行手术。
- 使用70%乙醇对幼崽皮肤进行消毒。待乙醇干燥后,使用#11无菌手术刀在颈部做1 cm切口。
- 在立体手术显微镜下,用小钩分离右侧颈总动脉,并使用便携式手持电凝器进行电凝。肉眼确认动脉已闭塞。假手术组仅进行颈总动脉的暴露与分离,但不进行电凝。
- 复位皮肤,并使用缝合胶(n-丁基氰基丙烯酸酯)封闭切口。
- 将幼崽置于34 oC的加热垫上30分钟,监测其自主呼吸及正常活动情况。
- 将幼崽放回母鼠身边30分钟。
- 将幼崽置于设定为34 oC的加热垫或其他加热装置上,放入氧浓度为6%的缺氧舱内持续35分钟。氧气由氮气替代。需密切监测舱内氧浓度和温度,以确保损伤结果的一致性。
- 将幼崽从缺氧舱中取出,并放回加热垫上。
- 通过腹腔注射方式给予脂多糖(溶于无菌生理盐水,剂量为1 µg/kg),然后将幼崽归还母鼠。假注射组仅注射生理盐水。
2. 新生儿运动测试
注意:在出生后第8天(PND 8),即诱导脑性瘫痪(CP)模型48小时后,对小鼠幼崽进行神经行为发育检测。为避免昼夜节律对行为的影响,所有检测均在中午前的4小时内完成。每次将幼崽从母鼠身边移开的时间不得超过15分钟,以防止体温迅速下降以及饥饿或分离应激问题。此外,在各项测试之间允许幼崽适当休息,以确保每次测试时能发挥最大努力。新生小鼠运动功能检测方案主要参考Fox的行为测试组合10,11、Wahlsten对Fox测试的改进12,以及Treat-NMD和其他行为学文献(各测试的具体参考文献在文中注明)。Fox的测试组合适用于出生后第2至21天(PND 2–21)的小鼠。本研究采用的Fox测试包括:翻正反射、抓握反射、负向趋地性(在Fox测试组合中称为垂直网格测试)和四肢抓握力(由Fox和Wahlsten的攀爬网格测试改良而来)。此外,本研究还增加了行走能力、前肢力量和后肢力量的检测,以区分假手术组与脑性瘫痪模型组小鼠幼崽在反射性运动行为上的差异。为避免因学习效应导致测试成绩提高,所有注明的测试最多仅进行3次尝试;其余测试每只动物仅进行1次试验。
- 行走能力(图1)(改编自大鼠实验方案13):
注意:爬行是小鼠幼崽在出生后第0至5天(PND 0–5)早期发育出的行为,此后小鼠逐渐从爬行过渡到行走,这一转变过程发生在出生后5至10天14。在PND 8时,行走能力测试可利用这一过渡阶段进行。然而,行走能力可在小鼠整个生命周期内进行评分,并可在任何年龄测定。由于该测试不涉及学习因素,因此在整个实验过程中可根据需要重复进行多次。- 将小鼠置于一个透明的围栏中,确保可从上方和侧面清晰观察小鼠行为。通过轻触幼鼠尾部进行温和刺激,促使其行走。
- 使用以下评分标准对行走能力进行为期3分钟的评分:0分 = 无运动,1分 = 以四肢不对称运动方式爬行,2分 = 缓慢爬行但四肢运动对称,3分 = 快速爬行或行走。
注意:此处定义的四肢对称运动是指每一步中后爪与前爪位置对应,且步态之间过渡平滑;而四肢不对称运动表现为爪部着地位置不规则,且步态之间的转换不连贯。

图1. 通过观察后爪以及头部和尾部,可区分从爬行到行走的转变。 (A) 在爬行过程中,后爪的整个脚掌从脚趾到脚跟均接触地面,如图中(*)所示。当成年小鼠行走时,仅脚趾和后爪前部接触地面(脚跟抬起,以[**]表示)。 (B) 爬行小鼠的头部和尾部贴近地面。在从爬行向行走过渡期间,头部开始抬高。当头部和尾部均抬起,且仅后爪前部接触地面时,表明过渡完成。 请点击此处查看该图的放大版本。
- 后肢足角(图2)
注意:随着小鼠从爬行发育至行走阶段,其后肢姿势表现出明显的发育变化。行走时,后肢位于身体下方,两后肢之间的夹角小于爬行时的夹角。尽管后肢足角随时间发生变化,但相同年龄、不同损伤或疾病状态的小鼠幼崽之间仍可进行比较。与行走能力测试(3.1)类似,该测试不存在学习效应,因此在实验过程中可根据需要重复多次进行后肢足角测试。- 在透明的开放场地盒或封闭区域内,分别从下方或上方安装摄像机,记录幼崽在场地内活动的视频。通过轻触幼崽尾部进行温和刺激,促使其行走。记录时长为两分钟。
- 利用视频记录,测量幼崽的足角:从脚跟/胫骨末端至最长(中趾)脚趾尖端画一条直线,以此计算角度。仅在幼崽沿直线完成完整步态且双足完全平放于地面时进行测量。当幼崽静止不动或正在转弯时,不应进行测量。
- 测量三到五组足角数据,并计算每只测试幼崽的平均足角。
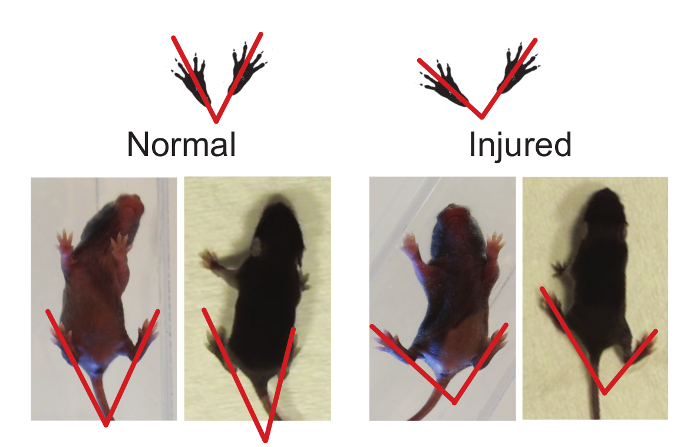
图2. 后肢足角可用于判断步态异常。足角可通过从足跟中点至中间(最长)脚趾连线进行测量。与正常动物相比,受伤动物的足角更大(参见代表性结果中的足角部分)。请点击此处查看该图的放大版本。
- 翻正反射(图3):
注:翻正反射是指幼鼠能够从仰卧位翻转至四肢着地的运动能力。啮齿类动物出现翻正反射的平均日龄为出生后第5天(PND 5),范围为出生后第1至第10天15。由于该测试为一种反射行为,不涉及学习成分,因此可在整个实验期间重复进行。- 将幼鼠仰卧放置于棉布或实验台垫上,并保持其体位5秒。
- 松开幼鼠,记录其恢复至俯卧位所需的时间以及翻正方向(左侧或右侧)。每次试验最多给予1分钟时间,如有需要。
- 重复进行,共完成三次试验。

图3. 表面翻正反射。该测试需要躯干控制能力,可用于检测姿势失衡。人类脑性瘫痪(CP)患者可能存在核心肌群功能缺陷。请点击此处查看该图的放大版本。
- 负向趋地性(图4)
注:啮齿类动物出现负向趋地性反射的平均日龄为出生后第7天(PND 7),范围为出生后第3至15天15。负向趋地性实验用于评估幼鼠的运动协调能力。将小鼠放置于斜坡上,使其头部朝下,由于前庭系统感知重力的刺激,幼鼠会转身朝向斜坡上方。这种对刺激的反应(即趋性)是一种先天行为。- 将幼鼠头部朝下置于45o斜面上,固定5秒。
- 释放幼鼠,记录其转身朝向上方所需的时间及方向。每次测试总时长为2分钟。
- 重复测试,共进行三次试验。对于从斜面跌落或未能转身的幼鼠,可选择重新测试、剔除或给予零分。
注:此评分标准由实验人员自行决定,因为幼鼠有时因困倦而非肌力不足而滚落斜面。一旦确定对跌落幼鼠的评分方式,应在方法部分予以说明,并在所有受试动物的测试过程中保持一致。
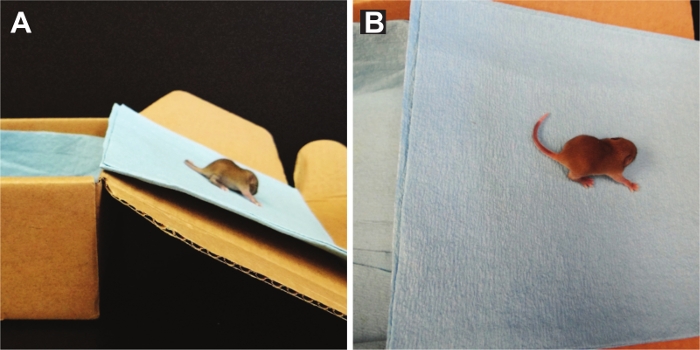
图 4. 负向趋地性。 小鼠识别其在斜坡上的方向并转身需要运动和前庭输入。请点击此处查看该图的放大版本。
- 前肢悬吊(图5)16;改编自17,18:
注:前肢悬吊用于检测幼鼠前肢的力量,包括前臂和前爪的力量。该测试不建议用于出生后第10天(PND 10)之前的幼鼠15。让幼鼠用双侧前爪抓住一根横跨在稳固物体上的金属丝,并悬挂在金属丝上。测试区域下方应设有软垫以缓冲跌落。该测试可检测左右侧力量的差异。学习效应以及缺乏负面强化可能导致幼鼠参与度下降。若幼鼠被释放后立即掉落,或放置于金属丝上时未能抓握,均提示其未参与测试。- 牢固地握住幼鼠身体,使其双侧前爪能够抓住金属丝。
- 松开幼鼠。使用计时器或秒表记录其掉落的总时间,同时记录前爪无力情况。
注:若幼鼠始终以一侧前爪先于另一侧脱离金属丝而掉落,而非双侧前爪同时松开,则判定为前爪无力。 - 重复测试,共进行三次。
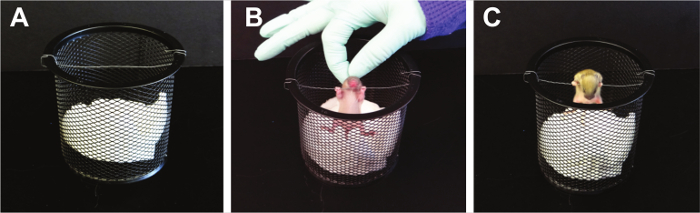
图 5. 前肢悬吊实验。该悬吊实验可使前肢产生张力直至肌肉疲劳。通过此方法,可建立前肢的基础力量值。请点击此处查看该图的放大版本。
- 后肢悬吊(图6):
注:该悬吊试验用于评估后肢力量,专为新生动物设计,最初应用于出生后第2至12天(PND 2–12)的动物19,20,但也可适用于出生后第14天(PND 14)以内的小鼠。该试验可检测左右后肢力量的差异以及神经肌肉功能。使用一个标准的50 ml锥形离心管,并用实验室擦拭纸进行垫衬。与前肢悬吊试验类似,动物可能通过学习掌握该试验,尤其是因为跌落不会带来负面后果。因此,可能出现参与度下降的情况,例如小鼠一被释放即跌落,或在放置于管口边缘时无法维持姿势,应予以记录。- 使用一个50 ml锥形离心管,将幼鼠轻轻以头朝下的姿势放入管中,使其后肢悬挂在管口边缘外。
- 松开幼鼠,观察其后肢姿势。
- 根据以下标准评分:
注:评分为4分表示后肢自然分开且尾巴上翘;3分表示存在明显无力,后肢间距较近但很少接触;2分表示后肢靠近并经常相互接触;1分表示明显无力,后肢几乎始终呈交叉夹紧状态且尾巴上翘;0分表示后肢持续夹紧且尾巴下垂,或无法在管壁上维持任何时长的抓握。 - 必要时记录拉力次数。当幼鼠在锥形管侧壁悬吊时尝试用后肢抬起身体,即计为一次拉力动作。
- 使用计时器或秒表,记录从开始到跌落的时间(跌落潜伏期)。
- 重复整个试验三次。

图6. 后肢悬吊实验。 (A). 该悬吊测试可引起后肢肌肉张力,直至出现肌肉疲劳。用于建立后肢的基础肌力与姿势状态。 (B). 评分方法。注意代表性小鼠上方的数字,表示可能的姿势评分。 请点击此处查看该图的放大版本。
- 抓握力测试(图7):
注意:该测试将同时评估四只爪子的抓握力量。使用一块16 x 18的玻璃纤维丝网。啮齿类动物能够抓握水平网格的平均日龄为出生后第8天(PND 8),范围为出生后第5至15天15。Fox采用四肢体水平网格测试,测试时间为出生后第2至21天10。本测试由标准水平网格测试改良而来;此处将网格从水平位置缓慢旋转至垂直位置,以挑战四肢的抓握能力21;改编自Corti S16。若小鼠在倒置至180°时仍能抓住网格,记录其跌落的潜伏期。同时记录体重。可计算悬吊冲量,公式为[体重(g)× 跌落潜伏期(秒)],反映抵抗重力所需的力。- 取一段金属网,将幼鼠置于网上。让幼鼠适应此环境约5秒。
- 缓慢将网格倒置至180度。记录幼鼠跌落时网格的大致倾角。
- 重复测试共三次,取三次结果的平均值。
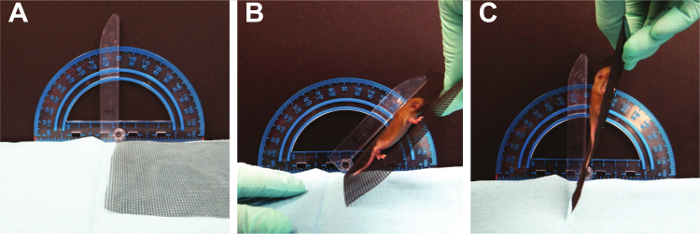
图7. 抓握力。 小鼠需在重力逐渐增加时,维持四肢的肌肉张力。请点击此处查看该图的放大版本。
- 抓握反射(图8)
注意:抓握反射通常在出生后第7天(PND 7)出现在啮齿类动物中,出现时间范围为PND 3–1515。每只爪子需单独测试,因此该测试可揭示前肢或后肢功能异常以及侧向性问题。由于这是一种反射行为,测试可重复进行直至反射出现,且不易受学习影响。需特别注意的是,该测试仅评估抓握能力,而非抓握力量,且必须在15日龄前完成,因为幼鼠在此之后会因恐惧反应而开始出现抓握行为。- 用手捏住小鼠颈背部的皮肤,方式类似于母鼠携带幼崽。这种抓持方式会使幼崽本能地保持静止和放松状态,便于测试操作。
- 用剃须刀片的钝圆边缘轻轻划过幼崽的每只爪子。
- 逐个测试每只爪子,记录是否出现抓握动作,并对每只完成抓握的爪子计1分。
注意:右侧爪子偏好的评分标准为100%,左侧爪子偏好的评分为-100%,双侧爪子均抓握的评分为50%,无任何爪子抓握的评分为0%。计算公式为[(右侧爪子 – 左侧爪子)/(右侧爪子 + 左侧爪子 + 双侧爪子)] × 100%。
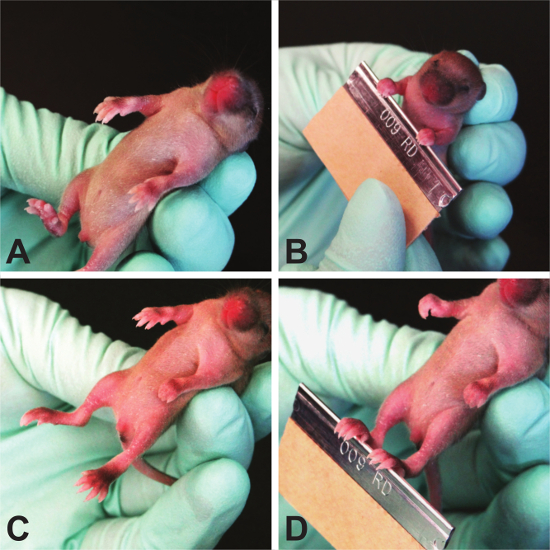
图8. 抓握反射。 由于新生小鼠缺乏强烈的恐惧反应,该实验可严格测定其足底/掌心反射。请点击此处查看该图的放大版本。
- 悬崖回避测试(图9):
注意:悬崖回避测试可用于评估幼鼠的迷路反射、力量和协调能力,适用于出生后第1至14天(PND 1–14)的幼鼠22。使用一个预先留有气味的盒子(即至少5只小鼠曾自由活动过的盒子),其上设有平坦的高台边缘。将幼鼠放置于边缘,使其前爪的脚趾和鼻尖刚好悬于边缘之外。评分方法为记录幼鼠从开始到转身并将其鼻尖和爪子完全移离边缘所需的总时间。若30秒内无任何反应,则终止测试。若幼鼠从边缘跌落,可额外进行一次试验。- 从侧面观察,将幼鼠置于预先留有气味盒子的边缘,确保仅有前爪的脚趾和鼻尖位于边缘之外。
- 释放幼鼠并启动计时器。
- 当鼻尖和双爪均完全离开边缘时,停止计时并记录时间。
- 重复测试,共进行3次试验。若幼鼠在30秒内未离开边缘,则不给予评分。
注意:判断幼鼠为不配合还是存在功能损伤,由实验人员自行决定。可根据幼鼠年龄调整悬崖高度以确保其安全;也可采用较低高度并搭配黑色“地面”以模拟更高落差。
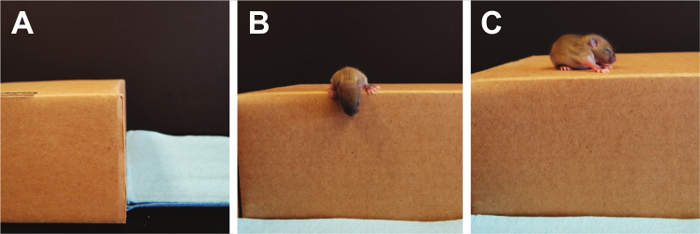
图9. 悬崖回避反应。前庭功能失衡通过悬崖回避实验进行测量。此处幼鼠的眼睛仍处于闭合状态,因此对悬崖边缘的回避并非由恐惧驱动。请点击此处查看该图的放大版本。
3. 统计学显著性
- 使用统计学软件分析结果,数据以均值 ± 均值标准误(SEM)表示。采用参数检验,因此使用 t 检验对数据进行分析。
注意:实验未设计用于检验性别差异。当 p < 0.05 时,认为差异具有统计学显著性。
结果
在术后24小时(P7)至术后1周(P13)期间对小鼠进行测试,每个时间点使用不同的小鼠,以避免学习测试范式成为混杂因素。选择P8作为代表性结果,因为小鼠在此时间点表现出最显著的功能缺陷。
脑性瘫痪新生小鼠从爬行到行走的过渡延迟
脑瘫(CP)患者存在步态异常,从踮脚行走至剪刀步态不等。由于该脑瘫模型表现出与人类相似的步态缺陷,因此对动物的行走能力进行了评估。通过小鼠直线行走过程中的步态对称性及肢体-足垫运动情况进行评分。术后48小时(出生后第8天,PND 8),与假手术组小鼠相比,脑瘫模型小鼠肢体运动对称性降低,呈现“爬行”样步态(平均行走评分:脑瘫组 1.083 ± 0.6337,n = 12;假手术组 1.639 ± 0.4859,n = 9;p < 0.05,图10)。至术后一周时,脑瘫组与假手术组小鼠均已过渡至正常行走状态(数据未显示)。
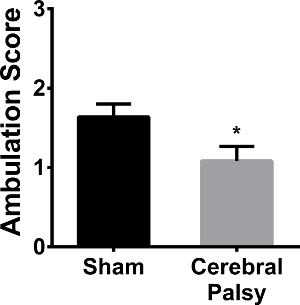
图10. 脑瘫小鼠幼崽的行走能力不如假手术组。 假手术组小鼠(黑色柱)的平均评分为1.639 ± 0.4859(n = 9),表明其行走发育介于肢体非对称运动与缓慢爬行之间。脑瘫组小鼠(灰色柱)的平均评分为1.083 ± 0.6337(n = 12),表明其行走发育更不成熟,倾向于表现为肢体非对称运动。数据以均值 ± 标准误表示;* 表示 p < 0.05。请点击此处查看此图的放大版本。
脑性瘫痪患者的后肢足部角度增大
除了活动能力外,还评估了后肢足部角度。8日龄假手术小鼠幼崽行走时后肢足部朝前,而HIL小鼠在直线行走时后肢足部呈外展状态(图2;平均角度:CP组 77.48 ± 9.848,n = 9,假手术组 54.54 ± 8.043,n = 11;p < 0.0001,图11)。这种增大的角度与步态不稳定性相关,因为幼鼠需要增大后足的角度以稳定步态,并辅助平衡与协调功能。
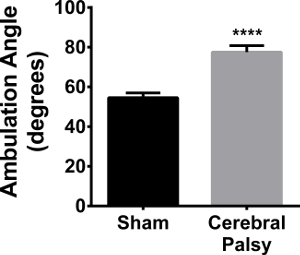
图11. 脑性瘫痪小鼠幼崽行走时后肢外展。 脑性瘫痪小鼠(黑色柱状图)后肢间的平均角度为 77.48 ± 8.043(n = 11),而假手术小鼠(灰色柱状图)的平均角度为 54.54 ± 9.848(n = 9)。数据以均值 ± 标准误表示;**** 表示 p < 0.0001。 请点击此处查看该图的放大版本。
脑瘫小鼠在表面翻正时未表现出缺陷
纳入表面翻正试验是因为部分脑性瘫痪(CP)患者存在躯干控制障碍(Heyrman 等,2013)。此外,前庭系统对于感知翻正需求至关重要,而部分CP患者存在前庭功能缺陷23。与假手术对照组相比,CP小鼠在翻正过程中未表现出显著缺陷(数据未显示)。
CP 小鼠在负向向地性测试中的表现与假手术组相同
负向趋地性用于检测幼鼠的运动协调能力。将小鼠置于倾斜的表面上,使其朝向下方,以此进行挑战实验。若小鼠无法及时或不能够转向朝上方向,可能提示其在协调性、平衡能力或前庭感觉输入方面存在缺陷。与假手术小鼠相比,脑瘫(CP)小鼠在负向趋地性测试中未表现出任何缺陷(数据未显示)。此外,脑瘫小鼠在重新定向时未表现出偏向一侧旋转的偏好。
前肢悬吊试验适用于10日龄以上的小鼠
脑性瘫痪(CP)患者存在肌张力降低以及抓握等精细运动技能障碍。为了检测该小鼠模型中的肌力减弱情况,我们采用了前肢悬吊实验。此外,该模型使用单侧缺血性损伤,可通过此悬吊实验确定损伤侧别。该实验更适用于10日龄以上的小鼠15。在出生后第8天,即损伤后2天,CP小鼠与假手术小鼠之间未观察到显著差异(数据未显示)。
脑瘫小鼠的后肢力量降低
由于运动控制能力和肌力不足,脑性瘫痪(CP)患者常需使用支具或辅助行走装置。为了将啮齿类动物CP模型与人类情况进行比较,采用后肢悬吊实验评估后肢肌力。当从小鼠锥形管侧面悬吊时,CP小鼠表现出后肢无力,表现为悬吊评分降低(后肢悬吊评分:CP组 3.468 ± 0.5561,n = 13,对照假手术组 3.891 ± 0.1329,n = 13;p < 0.05,图 12)。后肢悬吊时间未见显著差异(数据未显示)。因此,与人类CP患者相似,CP小鼠也表现出后肢(腿部)无力。
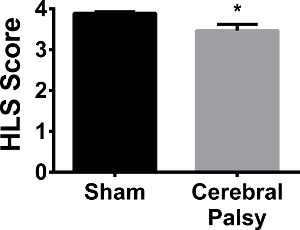
图12. 假手术小鼠的后肢力量略强于脑性瘫痪(CP)小鼠,差异具有统计学意义。 在管缘悬垂实验中,假手术小鼠(黑色柱,n = 13)的平均悬垂评分为 3.891 ± 0.1329,表现出更大的后肢分离程度,即更强的后肢支撑能力;而脑性瘫痪(CP)小鼠(灰色柱,n = 13)的平均悬垂评分为 3.468 ± 0.5561。数据以均值 ± 标准误(SEM)表示;* 表示 p < 0.05。 请点击此处查看该图的放大版本。
CP 损伤后握力下降
啮齿类动物在攀爬和穿越不平坦表面时,使用四肢抓握至关重要。抓握主要依赖于足趾和足掌的持续性力量,而非灵巧性或线性作用力24。实验要求小鼠将自身体重悬挂在倒置的金属丝网筛上。脑瘫(CP)小鼠无法维持抓握,其跌落时的角度显著更小(四肢平均角度:CP组为75.627 ± 24.48,n = 11;假手术组为96.57 ± 10.836,n = 9;p < 0.05,图13)。该数据表明,脑瘫小鼠存在显著的抓握力量缺陷。
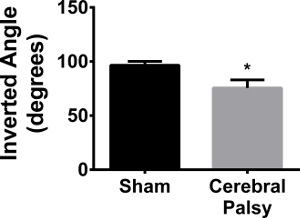
图13. 脑瘫小鼠的抓握力弱于假手术组。 假手术组小鼠(黑色柱)可抓握至平均倒置角度为 96.57 ± 10.836(n = 9)。脑瘫小鼠(灰色柱)仅能达到 75.627 ± 24.48 的倒置角度(n = 11)。数据以均值 ± 标准误表示;* 表示 p < 0.05。请点击此处查看此图的放大版本。
脑瘫小鼠表现出抓握反射缺陷
除了粗大运动功能障碍外,脑性瘫痪(CP)患者也存在精细运动障碍25,26。人类的抓握反射在出生时即存在,通常在出生后5至6个月左右消失。然而,若出现抓握反射异常,例如抓握速度或力量增强、无法完成抓握动作,或在6个月龄后抓握反射重新出现,均提示神经系统受损。为比较CP模型中的抓握功能,本研究评估了反射性抓握缺陷情况。
损伤后48小时,CP小鼠的抓握反射减弱(损伤后48小时平均抓握爪数:CP组为2.429 ± 0.9376,n = 14,假手术组为3.214 ± 0.8018,n = 14;p < 0.05,图14A)。前肢表现出轻微但无统计学意义的右爪偏好(数据未显示)。后肢则表现出显著的右爪偏好(CP组为75.0 ± 42.74,n = 14,假手术组为17.86 ± 54.09,n = 14;p < 0.005,图14B)。损伤后一周,CP小鼠仍存在抓握功能缺陷(一周时平均抓握爪数:CP组为2.75 ± 1.035,n = 8,假手术组为3.80 ± 0.6325,n = 10;p < 0.05,图14C),但未见明显的爪偏好。
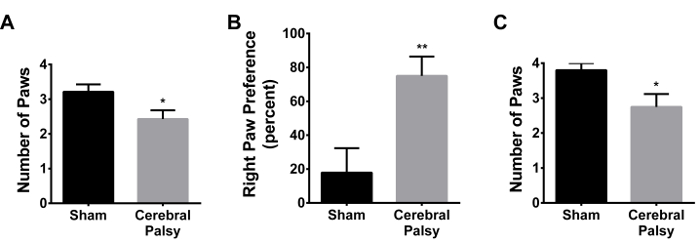
图14. 脑瘫小鼠在对侧脑损伤区域的后爪表现出抓握功能缺陷。(A) 损伤后48小时(PND 8),脑瘫小鼠(灰色柱)平均使用较少的爪数抓握木棒,相较于假手术动物(黑色柱)。(B) 脑瘫小鼠(灰色柱)表现出偏好使用右侧后爪(相对于损伤侧为对侧)进行抓握,而非使用左侧后爪(相对于损伤侧为同侧)。假手术小鼠(黑色柱)未表现出这种右侧爪偏好。右侧爪偏好计算公式为:([右侧爪 - 左侧爪] / [右侧爪 + 左侧爪 + 双侧爪]) × 100。(C) 损伤后一周,脑瘫小鼠(灰色柱)相较于假手术组(黑色柱)仍表现出抓握功能缺陷。数据以均值 ± 标准误表示;* 表示 p < 0.05,** 表示 p < 0.005。请点击此处查看该图的放大版本。
CP 小鼠在悬崖回避中会远离边缘
悬崖回避实验依赖于小鼠天生对陡峭悬崖的恐惧,会主动转向安全方向。尽管一些脑瘫患者存在前庭功能障碍以及运动控制受损,但脑瘫小鼠在该实验中未表现出任何缺陷。
讨论
利用动物模型研究人类疾病的相关性取决于人类与啮齿类动物在细胞和分子反应上是否存在重叠,以及所进行的行为学测试是否与人类症状具有直接相关性。儿科疾病研究中的一个主要问题在于,许多研究人员使用成年啮齿类动物建立疾病模型,并采用成年动物的行为学评估方法,而未考虑发育差异对疾病进程可能产生的影响。鉴于上述问题,儿科疾病研究不仅应采用相应调整后的发育时间点(例如,人类中枢神经系统在28–32周的发育阶段相当于出生后2–7天的啮齿类动物)7,还应使用能够检测适当运动、感觉或反射性发育行为的行为学测试方法。因此,每建立一种新的新生期疾病模型,都必须进行严格验证,以确保其细胞和行为学反应能够在啮齿类动物与人类之间提供最具可转化性的数据。
脑性瘫痪是一种持续至成年的运动障碍。目前许多脑性瘫痪模型存在的一个问题是缺乏可重复、标准化的运动功能检测方法,无法与儿科患者中观察到的功能缺陷相关联。在这一新模型中,通过在新生小鼠中联合诱导缺氧、缺血和炎症,采用一系列专用于新生小鼠的测试方法评估其运动行为。为了降低主观性并提高定量报告的准确性,多个测试已被改进,加入了非常具体但易于评估的指标,可实现标准化。此外,前肢和后肢的评估可分别进行,并能确定左右侧差异。该系列测试专门适用于两周龄以内的新生小鼠。
该脑瘫模型表现出行走困难(行走能力、后肢足部角度),以及肢体特异性肌力减弱(四肢悬吊、后肢悬吊),并存在发育性反射缺陷(抓握反射)。尽管本研究仅观察了一个时间点,但这些缺陷可随时间进行追踪评估。
还有其他可用于新生儿的测试组合,例如 Fox 测试组合或 Heyser 发育里程碑评估 15然而,这些测试将新生儿与成人进行比较,而两者的反应可能并不相同,因为新生儿仍处于发育阶段。Fox 量表和 Heyser 评估测试依赖于观察性的主观信息,采用的是二分法(是或否)评估,而非客观数据(如基于力量的角度、姿势等)。 等等)。由于这些测试具有主观性,许多研究人员对标准进行了调整、增删,导致其结果无法与其他研究进行比较,从而限制了数据在建立特定疾病或障碍基线缺陷方面的实用性。通过建立一套标准化的、定性的、专为新生儿设计的运动测试方案,各研究团队的结果便能够被准确且可靠地报告和比较。
披露
作者声明不存在任何竞争性经济利益。
致谢
我们感谢Shriners儿童医院儿科研究中心的所有人员,特别是Mickey Seltzer博士,若没有他的支持,本研究将无法获得资助。此外,我们感谢Isha Srivastava在早期数据收集中的贡献,以及Amy He在图表制作方面的帮助。本研究由Shriners儿童医院资助。所有资助方均未参与实验设计或决定提交论文发表的过程。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| C57BL/6 小鼠 | Charles River Laboratories | STRAIN CODE: 027 | 我们使用的具体品系为 C57BL/6NCrl |
| 麻醉皿,PYREX™ 结晶皿 | Corning Life Sciences Glass | 3140125 | 容量:25.03 oz. (740ml);直径 × 高:4.92 × 2.55 in. (125 × 65mm)。但任何小型圆形玻璃容器均可使用。容量为 2 杯、底部平坦的 Pyrex 食品储存碗也可替代,且价格便宜得多(Pyrex 型号:6017399)。 |
| 带盖铅环 | Fisher Scientific | S90139C | 用于在水浴中稳定烧瓶的铅环,置于麻醉皿内部使用。 |
| 11 号手术刀片 | World Precision Instruments, Inc. | 500240 | |
| 小型血管电凝器 | Fine Science Tools | 18000-00 | |
| 微型钩针 | Fine Science Tools | 10064-14 | |
| Vetbond 缝合胶 | 3M | 1469SB | n-丁基氰基丙烯酸酯粘合剂 |
| 脂多糖 | Sigma Life Science | L4391 | 来自大肠杆菌 O111:B4 的脂多糖,经γ射线照射灭菌 |
| 12 英寸 × 12 英寸不透明箱体 | Acrylic Display Manufacturing:Piasa Plastics 的一个部门 | C4022 | 彩色亚克力五面立方体,3/16" 厚彩色亚克力,12" 宽 × 12" 深 × 12" 高; http://www.acrylicdisplaymfg.com/html/cubes_19.html |
| 摄像机/摄像机 | JVC | GC-PX100BUS | 任何在低光照条件下表现良好且可导入和编辑的摄像机均可使用。我们使用的是 JVC GC-PX100 全高清 Everio 摄像机。 |
| Covidien Tendersorb™ 吸水垫 | Kendall Healthcare Products Co | 7174 | |
| WypAll L40 | Kimberly-Clark Professional | 5600 | 任何具有适度摩擦力的表面均可使用 |
| 45 度倾斜表面 | 我们使用纸板箱。 | ||
| 管道清洁器中的细金属丝 | Creatology | M10314420 | 任何工艺品商店出售的管道清洁器均可使用。 |
| 50 mL 圆底离心管 | Falcon | 352070 | |
| 玻璃纤维纱窗丝网 | New York Wire www.lowes.com | 14436 | 任何供应商均可使用,只要其纱网规格为 16 × 16 或 18 × 16 |
| 剃须刀片 | Fisherbrand | 12-640 | 木棒涂药器或棉签的木质部分也可替代使用。 |
| OPTIX 24 英寸 × 4 英尺 × 0.22 英寸透明亚克力板,用于制作透明亚克力步道 | PLASKOLITE INC | 1AG2196A | 透明亚克力板(厚度 1/8"),带侧壁和顶盖以限制探索范围。我们从本地五金店购买了一块亚克力板,并请其裁切成所需尺寸:(2) 2" × 2";(3) 2" × 18";(1) 2" × 15.5";(1) 2" × 3"。使用透明胶带将所有部件粘合,其中 15.5" 的部件置于顶部。将 3" 的部件粘贴到 15.5" 部件的一端,形成供小鼠进出的翻盖/入口。或者,也可将步道部分或全部用胶水粘合,仅在顶部部件使用胶带。此设计便于打开步道以便清洁。 |
| 量角器 | Westscott | ACM14371 |
参考文献
- Nakamura, M., Bregman, B. S. Differences in neurotrophic factor gene expression profiles between neonate and adult rat spinal cord after injury. Exp Neurol. 169 (2), 407-415 (2001).
- Widenfalk, J., Lundströmer, K., Jubran, M., Brene, S., Olson, L. Neurotrophic factors and receptors in the immature and adult spinal cord after mechanical injury or kainic acid. J Neurosci. 21 (10), 3457-3475 (2001).
- Fernández-Lòpez, D., Faustino, J., et al. Blood-brain barrier permeability is increased after acute adult stroke but not neonatal stroke in the rat. J Neurosci. 32 (28), 9588-9600 (2012).
- Cusick, C. G. Extensive cortical reorganization following sciatic nerve injury in adult rats versus restricted reorganization after neonatal injury: implications for spatial and temporal limits on somatosensory plasticity. Prog Brain Res. 108, 379-390 (1996).
- Barrett, C. P., Donati, E. J., Guth, L. Differences between adult and neonatal rats in their astroglial response to spinal injury. Exp Neurol. 84 (2), 374-385 (1984).
- Villapol, S., Gelot, A., Renolleau, S., Charriaut-Marlangue, C. Astrocyte Responses after Neonatal Ischemia: The Yin and the Yang. Neuroscientist. 14 (4), 339-344 (2008).
- Craig, A., Ling Luo, N., et al. Quantitative analysis of perinatal rodent oligodendrocyte lineage progression and its correlation with human. Exp Neurol. 181 (2), 231-240 (2003).
- Shen, Y., Liu, X. B., Pleasure, D. E., Deng, W. Axon-glia synapses are highly vulnerable to white matter injury in the developing brain. J Neurosci Res. 90 (1), 105-121 (2012).
- Shen, Y., Plane, J. M., Deng, W. Mouse models of periventricular leukomalacia. J Vis Exp. (39), (2010).
- Fox, W. M. Reflex-ontogeny and behavioural development of the mouse. Anim Behav. 13 (2), 234-241 (1965).
- Tremml, P., Lipp, H. P., Müller, U., Ricceri, L., Wolfer, D. P. Neurobehavioral development, adult openfield exploration and swimming navigation learning in mice with a modified beta-amyloid precursor protein gene. Behav Brain Res. 95 (1), 65-76 (1998).
- Wahlsten, D. A developmental time scale for postnatal changes in brain and behavior of B6D2F2 mice. Brain Res. 72 (2), 251-264 (1974).
- Balasubramaniam, J., Xue, M., Del Bigio, Long-term motor deficit following periventricular hemorrhage in neonatal rats: A potential model for human cerebral palsy. J Cerebr Blood F Met. , (2005).
- Williams, E., Scott, J. P. The Development of Social Behavior Patterns in the Mouse, in Relation to Natural Periods. Behaviour. 6 (1), 35-65 (1954).
- Heyser, C. J. Assessment of developmental milestones in rodents. Current protocols in neuroscience. Crawley, J. Q., et al. Chapter 8, (2004).
- Corti, S. Grip strength TREAT-NMD: Experimental protocols for SMA animal models. , http://www.treat-nmd.eu/research/preclinical/sma-sops/ (2014).
- Corti, S., Nizzardo, M., et al. Neural stem cell transplantation can ameliorate the phenotype of a mouse model of spinal muscular atrophy. J Clin Invest. 118 (10), 3316-3330 (2008).
- Grondard, C., Biondi, O., et al. Regular exercise prolongs survival in a type 2 spinal muscular atrophy model mouse. J Neurosci. 25 (33), 7615-7622 (2005).
- El-Khodor, B. F. Behavioral Phenotyping for Neonates. Experimental Protocols for SMA animal models. , (2011).
- El-Khodor, B. F., Edgar, N., et al. Identification of a battery of tests for drug candidate evaluation in the SMNDelta7 neonate model of spinal muscular atrophy. Exp Neurol. 212 (1), http://www.treat-nmd.eu/research/preclinical/sma-sops/ 29-43 (2008).
- Venerosi, A., Ricceri, L., Scattoni, M. L., Calamandrei, G. Prenatal chlorpyrifos exposure alters motor behavior and ultrasonic vocalization in CD-1 mouse pups. Environ Health. 8 (12), (2009).
- Hill, J. M., Lim, M. A., Stone, M. M. Developmental milestones in the newborn mouse. Neuromethods 39: Neuropeptide Techniques. , Humana Press. New Jersey. (2008).
- Visual dependence influences postural responses to continuous visual perturbation in adults with spastic cerebral palsy. Yu, Y., Keshner, A. E., Tucker, C. A., Thompson, E. D., Lauer, R. T. Combined Sections Meeting of American Physical Therapy Association, Anaheim, CA, USA, , (2016).
- Carlson, G. The use of four limb hanging tests to monitor muscle strength and condition over time. Experimental Protocols for SMA animal models. , http://www.treat-nmd.eu/downloads/file/sops/dmd/MDX/DMD_M.2.1.005.pdf (2011).
- Gordon, A. M., Duff, S. V. Relation between clinical measures and fine manipulative control in children with hemiplegic cerebral palsy. Dev Med Child Neurol. 41 (9), 586-591 (1999).
- Futagi, Y., Toribe, Y., Suzuki, Y. The grasp reflex and moro reflex in infants: hierarchy of primitive reflex responses. Int J Pediat. , (2012).
重印与许可
