本文介绍一种可显著降低牛卵母细胞线粒体DNA拷贝数的实验方案(P < 0.0001)。该方法通过离心与卵母细胞分割技术,大幅减少卵母细胞中的线粒体含量,有望提高重构的异种体细胞核移植胚胎的发育潜力。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
种间体细胞核移植(iSCNT)可用于拯救濒危物种,但在重构胚胎中存在两组不同的线粒体DNA(mtDNA)群体:一组位于受体卵质中,另一组位于供体体细胞内。这种线粒体异质性可能导致胚胎和胎儿发育异常。手工克隆技术包含卵母细胞分割步骤,可用于降低mtDNA拷贝数,从而减少重构胚胎中的线粒体异质性程度。对去核的成熟牛卵母细胞进行离心处理,可在卵母细胞一极形成可见的富含线粒体的区域。通过暴露于蛋白酶溶液中去除卵母细胞的透明带。使用显微刀进行分割,以移除可见的富含线粒体部分。采用qPCR技术对从完整卵母细胞和分割后胞质体中提取的DNA样本中的mtDNA进行定量,从而比较分割前后mtDNA拷贝数的变化。拷贝数的计算基于循环阈值(Ct值)、标准曲线的回归方程以及包含mtDNA PCR产物与基因组DNA PCR产物各自大小的比值。一个牛卵母细胞的平均mtDNA拷贝数(±标准差)为137,904 ± 94,768(n = 38)。一个线粒体耗竭型胞质体的平均mtDNA拷贝数为8,442 ± 13,806(n = 33)。一个富含线粒体的胞质体中平均mtDNA拷贝数为79,390 ± 58,526(n = 28)。这些计算所得平均值之间的差异表明,与原始卵母细胞相比,离心处理及随后的分割操作可显著降低线粒体耗竭型胞质体中的mtDNA拷贝数(P < 0.0001,通过单因素方差分析确定)。mtDNA拷贝数的减少应能降低重构胚胎中线粒体异质性的程度,可能促进正常的胚胎和胎儿发育。此外,补充来自体细胞供体细胞的线粒体提取物也可能对实现成功的胚胎发育至关重要。
引言
体细胞核移植(SCNT)包括将一种动物的去核卵母细胞与同种动物的体细胞进行融合。在大多数情况下,卵母细胞和体细胞来源于同一物种,且活产率低于6%1一些研究涉及使用种间体细胞核移植(iSCNT),即融合来自两个不同物种的体细胞与卵母细胞。在这些研究中,活产率甚至低于体细胞核移植,通常低于1%1然而,体细胞核移植技术(iSCNT)可被用作拯救濒危物种的一种方法,因为这些动物的体细胞比生殖细胞更容易获取1在异种体细胞核移植(iSCNT)中,受体卵母细胞通常来自家畜或常见的实验动物物种,例如牛、猪和小鼠。迄今为止的一些尝试已成功获得存活后代,但所获得的后代均为同属动物(即受体卵母细胞物种与供体细胞物种属于同一属)。2,3,4属间模型(利用不同属动物的卵母细胞和体细胞)尚未获得存活的动物个体,且大部分重构胚胎在8-16细胞阶段发生发育阻滞。 体外 发育5,6,7,8一种可能导致胚胎发育停滞的解释是胚胎中存在线粒体异质性,即单个细胞内含有一种以上的线粒体DNA(mtDNA)类型。异质性可导致胚胎或活体动物出现发育效率低下或发育失败等问题。1动物在其生命后期也可能发生发病机制9尽管该问题在体细胞核移植(SCNT)后代中同样存在,但异种体细胞核移植(iSCNT)胚胎中的异种成分加剧了这一问题。
当胚胎的线粒体DNA来自两个不同物种时,受体卵母细胞的线粒体(占多数)无法与供体细胞的细胞核高效或有效地协同工作1,10. 用于iSCNT的两个物种之间较大的分类学差异可能会加剧这一问题;属内个体间产生的存活后代(Bos gaurus 和 Bos indicus 使用后代 Bos taurus 卵母细胞,以及所产生的后代 通过 传统体细胞核移植(例如 Ovis aries 使用后代 Ovis aries 卵母细胞)被证实为嵌合体(这些动物体内存在来自两个个体的线粒体DNA)11,12,13。然而,它们的发育程度远超过种间体细胞核移植(SCNT)胚胎14,15卵母细胞线粒体与供体细胞核之间的信息交换在种内胚胎中可能比在种间胚胎中更为成功16.
成熟牛卵母细胞中的线粒体DNA(mtDNA)含量大约是单个体细胞中含量的100倍12。降低这一比例可能促使体细胞的线粒体在重构胚胎中增殖,从而增加功能性线粒体的数量16。这反过来可为发育中的胚胎提供更多能量以满足其发育需求15。以往尝试减少卵母细胞或胚胎中mtDNA拷贝数的方法包括化学处理、显微操作以及向卵母细胞或胚胎补充来自供体细胞物种的额外线粒体16,17,18,19,20。然而,化学处理(如使用2',3'-二脱氧胞苷)并不利于胚胎发育,且仅能将卵母细胞mtDNA拷贝数减少约一半18。通过显微操作预先减少卵母细胞mtDNA的方法,平均仅能去除卵母细胞中64%的mtDNA17。尽管补充供体细胞线粒体可能是一种可行方案,但在异种体细胞核移植(iSCNT)研究中,该方法尚未成功产下存活的异属动物个体21。
利用对切法降低卵母细胞线粒体DNA拷贝数的方法尚未见于已发表的研究中。将卵母细胞对切并意图将所得卵质体与体细胞融合,是手工克隆(HMC)技术的基础,该技术通常采用对切法去除减数分裂中期II(MII)卵母细胞的极体和中期板。HMC已在多种动物中成功产生后代,包括山羊、牛、猪、绵羊和马22,23,24,25,26,但通常在对切前不进行离心步骤。在对切前引入高速离心处理,可使卵母细胞内的线粒体(从而线粒体DNA)集中分布于细胞一极,随后可通过微刀对切去除富含线粒体的部分。两个线粒体显著减少的卵质体可如HMC中常规操作那样与体细胞融合,形成重建胚胎,该胚胎所含的卵母细胞来源的线粒体DNA显著降低。
本方案旨在回答的问题是:如何减少牛卵母细胞中的线粒体DNA(mtDNA),以获得含有较少异质性mtDNA的可存活重构胚胎。在本方案中,卵母细胞经过离心和半切处理,分别测定去核卵质(ooplast)和完整卵母细胞的mtDNA拷贝数,以评估该技术在降低牛卵母细胞mtDNA拷贝数方面的有效性。
访问受限。请登录或开始试用以查看此内容。
方案
以下方案遵循犹他州立大学提供的动物护理与伦理指南。
1. 培养基制备
- 在处理卵母细胞之前,按照表1所述配制以下溶液:400 µL 透明质酸酶溶液、500 µL T2培养基、1,020 µL T20培养基和800 µL T10培养基。
- 将T10培养基分装至四孔板的两个孔中,每孔400 µL。将其中一个孔标记为“M”,另一个孔标记为“MR”。置于5% CO2培养箱中,待卵母细胞半切后使用。
- 配制500 µL含HEPES的合成输卵管液(HSOF)与细胞松弛素B(CB)混合液。取50 µL CB/HSOF溶液加入另一支1.5 mL离心管中。
- 准备40 µL蛋白酶溶液。以2,680 x g离心至少30秒。取20 µL上清液与20 µL T2混合至新的离心管中,配制成稀释后的5 mg/mL蛋白酶溶液。
- 配制3 mL HSOF溶液。在搜索板上分别加入四滴400 µL液滴,每滴独立放置;将该板置于体视显微镜下。
- 配制500 µL CB/T20溶液。
2. 体外 牛卵母细胞的体外成熟(IVM)
- 体外成熟(IVM):将吸取的卵丘-卵母细胞复合体(COCs)置于含有10%胎牛血清(FBS)、0.26 IU/mL促卵泡激素(FSH)和100 U/mL青霉素/链霉素的成熟培养基中,在38.5 °C、5% CO2培养箱内于四孔板中培养21小时。
- 执行以下步骤以去除卵母细胞周围的卵丘细胞。
- 使用200 µL移液器收集所需数量的COCs,并将其沉积于1.5 µL离心管底部。
- 向含有卵母细胞的离心管中加入等体积的0.6 mg/mL透明质酸酶(例如,若卵母细胞与IVM培养基总体积为100 µL,则加入100 µL透明质酸酶)。
- 上下吹打溶液,避免产生气泡,直至所有卵丘细胞完全去除。
- 检查卵母细胞的成熟情况。
- 使用移液器从搜索板上的四个HSOF液滴之一中吸取200 µL HSOF,加入到含卵母细胞和透明质酸酶的溶液中。
- 将卵母细胞从透明质酸酶/HSOF液滴中转移至未使用的400 µL HSOF液滴中,并用另外两个HSOF液滴清洗,以帮助彻底去除残留的透明质酸酶和卵丘细胞碎片。
- 使用口控移液器(或10 µL移液器及吸头)并在高倍显微镜放大下,轻轻滚动卵母细胞,根据第一极体的存在与否进行筛选。
- 分选完成后,收集所需数量的处于第二次减数分裂中期(MII)的卵母细胞用于后续半卵切割,并将其置于400 µL HSOF液滴中。
注:若卵母细胞在培养箱外暴露时间超过30分钟,可将其放回成熟培养基孔中,并置于CO2控制的培养箱内静置至少30分钟。为尽量减少离体时间,应控制每次切割的卵母细胞数量,确保可在约30分钟内完成操作。若计划将去核卵母细胞(ooplasts)与体细胞融合、激活并培养为胚胎,则应在该步骤同时进行去核处理。
3. 卵母细胞的离心
注意:如果卵母细胞之前被放置在成熟培养基中孵育,则需将其转移至最近收集时所用的HSOF液滴中。
- 使用口吸管从 HSOF 液滴中收集选定的成熟卵母细胞,并将其放入含有 50 µL HSOF/CB 溶液的 1.5 mL 离心管中。以 15,000 x g 离心 12 分钟。
注意:离心管中存在气泡不会造成不良影响。 - 在卵母细胞离心过程中,准备切半用培养皿。
- 在 60 mm 培养皿盖上按照 图1 所示制作液滴模式(每滴 20 µL),并用矿物油完全覆盖各液滴。
- 使用细头记号笔在培养皿底部标记线条,如 图2 所示。
- 在蛋白酶液滴周围画一个方框,并在 CB/T20 液滴与下方一排 T20 液滴之间画一条线。
- 用不透明盖子盖住培养皿,直至离心完成,以防止微滴渗透压发生变化。
- 离心一结束,立即使用 200 µL 移液器将卵母细胞连同溶液一起吸出,并转移至一个新的搜索培养皿的空白区域,该培养皿中含有四个 400 µL 的 HSOF 液滴。
- 将卵母细胞依次通过四个 HSOF 液滴进行收集和洗涤。
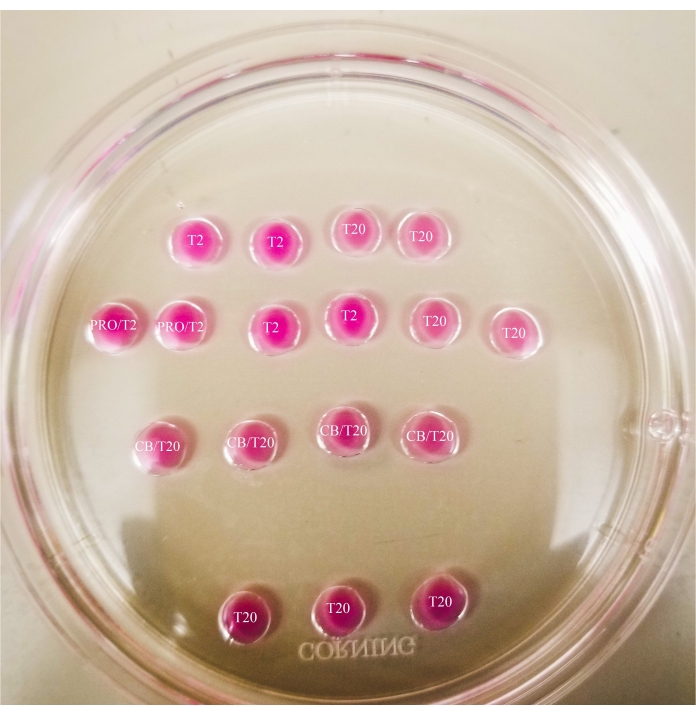
图1:对半分割培养板。图中所有液滴体积均为 20 µL。培养板直径为 60 mm。所有液滴均完全覆盖矿物油。卵母细胞将首先置于最上方且最左侧的 T2 液滴中(图中以星号标示)。PRO/T2:在制备微滴前,将 10 µL 酶解蛋白酶(pronase)与 10 µL T2 混合。CB/T20:在制备微滴前,将 1 µL 细胞松弛素 B(cytochalasin B)加入 1 mL T20 中混合。请点击此处查看该图的放大版本。
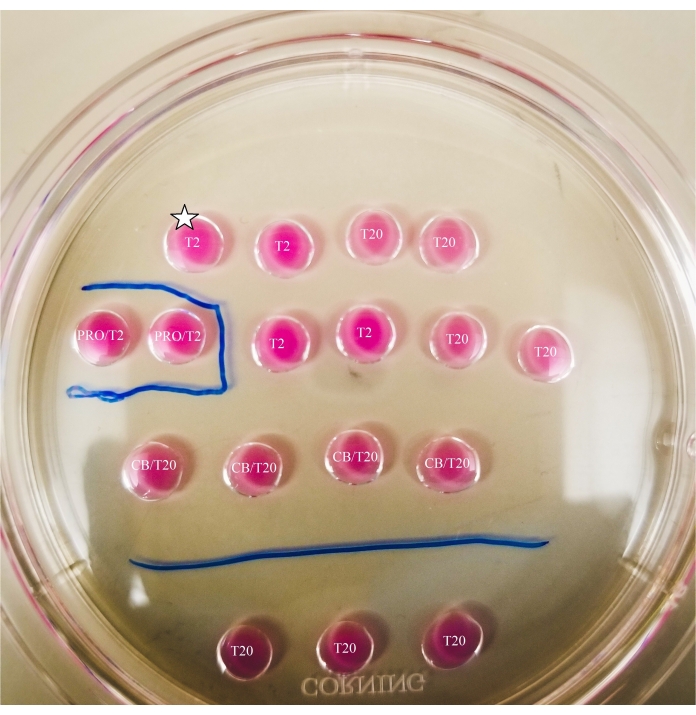
图2:标记的二分平板。 在平板底部使用细头记号笔画线,以提供观察位置参考,并辅助在显微镜下进行卵母细胞和胞质体的转移操作。卵母细胞将首先放置于最上方且最左侧的T2液滴中(图中以星号标示)。请点击此处查看该图的放大版本。
4. 卵母细胞分割前的准备
注意:以下过程涉及卵母细胞的分割前处理。
- 将加热台调至 37 °C。
- 使用口吸管将离心后的卵母细胞从 HSOF 液滴转移至分割板左上角的 T2 液滴,然后依次清洗通过顶行的接下来三个液滴(T2、T20、T20)。
- 将卵母细胞放入其中一个含蛋白酶的液滴中,确保卵母细胞之间几乎没有接触。
注意:透明带的去除所需时间可能有所不同,但通常在使用加热台的情况下需要 30–120 秒。若未使用加热台,所需时间将延长。 - 持续观察卵母细胞,直至透明带出现明显变形(见图3)。
- 一旦单个卵母细胞的透明带发生变形,立即将该卵母细胞转移至相邻的 T2 液滴。随着其他卵母细胞陆续出现变形,重复此操作,直至所有卵母细胞均从蛋白酶液滴中移出并置于 T2 液滴中。
- 继续观察卵母细胞,直至仅剩一层极薄的透明带残留。
- 将卵母细胞依次清洗通过该行接下来的三个液滴(T2、T20、T20),然后将其以垂直排列的方式放置于 CB/T20 液滴中(见图4)。
- 初始时每列垂直液滴中放置较少数量的卵母细胞,随着分割技术熟练程度的提高,逐步增加每个液滴中的卵母细胞数量。
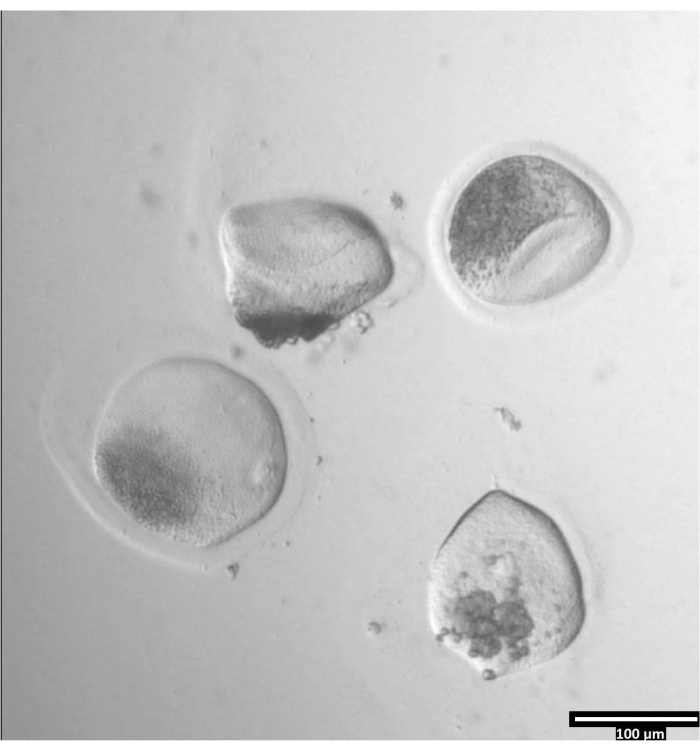
图3:使用蛋白酶去除透明带。 (80倍)当蛋白酶对卵母细胞透明带作用足够,使其可转移至相邻的T2液滴时,透明带将开始出现变形。 请点击此处查看该图的放大版本。
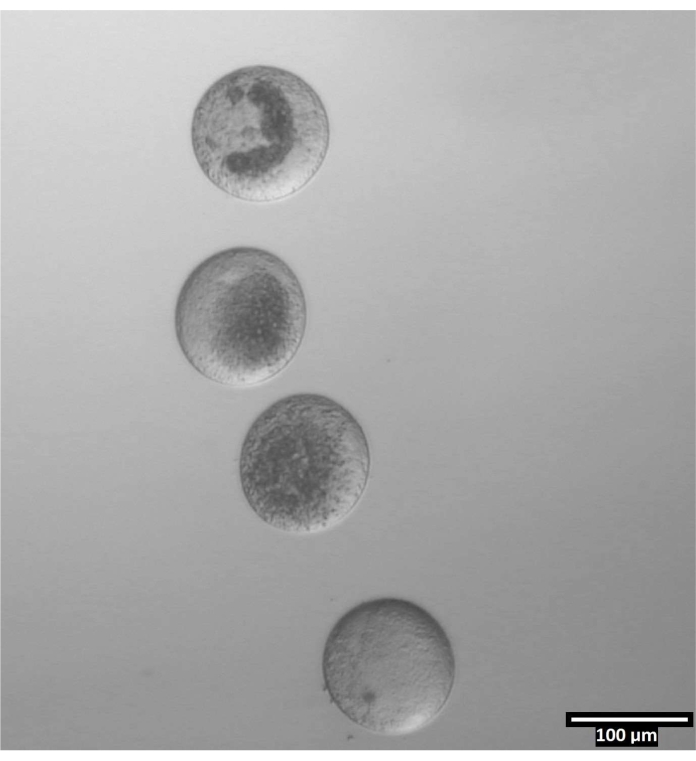
图 4:卵母细胞在分割液滴中的定位。 (80倍)在进行分割前,去透明带卵母细胞被置于每个CB/T20液滴中接近垂直的方向。 请点击此处查看该图的放大版本。
5. 卵母细胞的切开
- 聚焦于最左侧第一个含有卵母细胞的 CB/T20(二分)液滴,使用口控移液管旋转卵母细胞,使每个卵母细胞中线粒体富集区域朝向或背向显微镜臂。
注意:线粒体富集区域不含脂质,脂质在离心后表现为卵母细胞中最暗的部分。 - 将微刀片尖端置于最上方卵母细胞左侧,对准线粒体富集区域正上方的空间。保持刀尖位置不变,小心下压刀片,彻底切割卵母细胞。
- 确保所获得的线粒体富集卵质体与线粒体减少卵质体大小相近;二分切割应将每个卵母细胞均等分为两个卵质体。
注意:根据研究目的,单个卵母细胞产生的卵质体相对大小可能有所不同;若线粒体减少卵质体将与体细胞融合,则其体积应大于线粒体富集卵质体。 - 确保刀片在离心后卵母细胞最清晰的区域进行切割,即位于线粒体富集区域之上、脂质富集区域之下。
- 确保所获得的线粒体富集卵质体与线粒体减少卵质体大小相近;二分切割应将每个卵母细胞均等分为两个卵质体。
- 提起刀片时,保持原有切线轨迹,刀尖位置不变,然后轻轻将刀尖从培养板上提起。
- 对第一个二分液滴中的所有卵母细胞重复上述二分操作。若其他液滴中仍有卵母细胞,依次进行定向与二分处理。
- 使用口控移液管,从第一个二分液滴中收集线粒体减少卵质体,并将其转移至培养板底行左侧的 T20 液滴中。对所有剩余的二分液滴重复此步骤。
注意:线粒体减少卵质体含有脂质,颜色比卵母细胞其余部分更深。 - 使用口控移液管,从第一个二分液滴中收集线粒体富集卵质体,并将其转移至培养板底行右侧的 T20 液滴中。对所有剩余的二分液滴重复此步骤。
注意:线粒体富集区域可见明显的细胞器聚集,呈浅灰色外观。 - 从培养箱中取出 T10 四孔皿。使用口控移液管,将所有线粒体减少卵质体转移至标记为“MR”的孔中,将线粒体富集卵质体转移至标记为“M”的孔中。
- 将四孔板重新放回 CO2 控制培养箱中。在进行 mtDNA 定量前,让卵质体静置至少 30 分钟。
6. 线粒体DNA的定量
- 使用专为小样本设计的DNA提取试剂盒,从单个样本(单个卵母细胞、单个线粒体富集的胞质体、单个线粒体耗竭的胞质体)中提取DNA。
- 采用所选的DNA定量方法,确认每个样本均已成功提取DNA。若当时不进行定量聚合酶链式反应(qPCR),则将提取的DNA置于标记好的离心管中,于-80 °C冰箱中冷冻保存。
- 进行qPCR
- 参考表2确定向每个qPCR管中添加的各试剂体积以及引物序列。这些引物设计用于扩增牛线粒体DNA的12S区域。
- 设定初始变性时间为10分钟,随后进行35个循环:94 °C变性30秒,60 °C退火15秒,72 °C延伸15秒。反应完成后,记录循环阈值(Ct)值。
注意:为了获得相对线粒体DNA拷贝数,必须使用已知线粒体DNA拷贝数且呈指数增长的样本制作标准曲线。然后需使用以下公式对循环阈值进行计算,以确定相对线粒体DNA拷贝数。 - 使用以下公式计算DNA浓度:
DNA浓度 = (10(Ct-截距)/斜率) × 检测体积 - 使用以下公式计算拷贝数:
拷贝数 =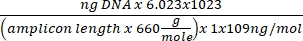
- 使用以下公式计算每细胞拷贝数:
每细胞拷贝数 = 2 ×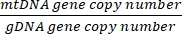
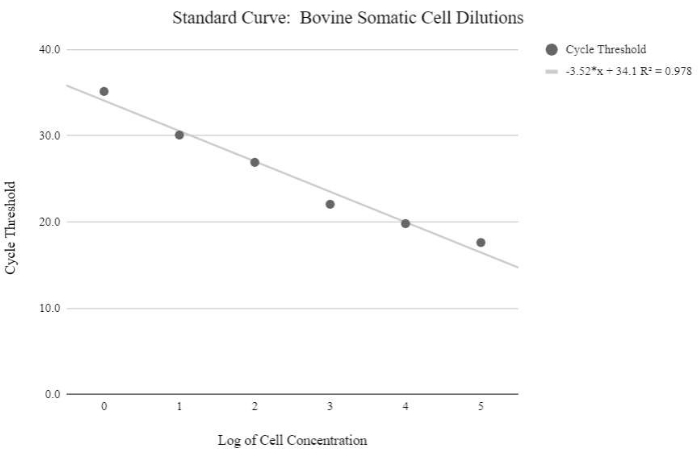
图 5:体细胞线粒体DNA标准曲线。 该标准曲线通过使用qPCR试剂和程序(如方案步骤6.3所述)对牛体细胞的对数浓度进行线粒体DNA定量而建立。请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
结果
定量PCR(qPCR)结果用于确定每个卵质体中线粒体DNA(mtDNA)的相对含量。所述反应旨在扩增牛线粒体DNA的12S区域。
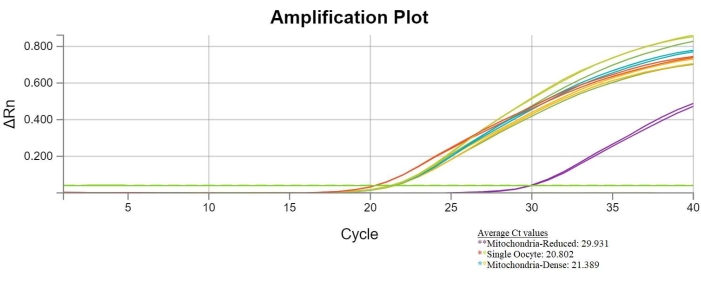
如果切分成功,完整卵母细胞和富含线粒体的卵质体样品的Ct值将相近。而线粒体减少型卵质体样品的Ct值将高于其他两组样品。下图显示了表明切分成功的Ct值结果图。这些结果表明,切分确实有效降低了线粒体减少型卵质体中的线粒体DNA(mtDNA)含量(图6)。
访问受限。请登录或开始试用以查看此内容。
讨论
先前用于减少卵母细胞中线粒体DNA拷贝数的方法均存在各自的缺点。基于显微操作的卵母细胞线粒体移除技术可使线粒体DNA拷贝数平均减少64%27一种独特的方法曾用于去核操作,该方法涉及使用小直径巴斯德吸管,在无透明带卵母细胞所处的培养液微滴与周围矿物油交界处将其分离。结合卵母细胞离心技术,该方法可制备出具有活性的线粒体减少型胞质体28然而,离心法与这种卵母细胞分割方法相结合尚未见成功产生胚胎的报道。化学性线粒体减少方法(例如将卵母细胞暴露于2′,3′-双脱氧胞苷(ddC),一种线粒体DNA合成抑制剂)可使卵母细胞中线粒体DNA拷贝数减少达50%,但需要在卵丘-卵母细胞复合体(COC)发育过程中持续暴露于该化学物质超过40小时 体外 体外成熟(IVM)16,27尽管在添加ddC的培养基中孵育猪卵母细胞40小时对重构胚胎未造成问题16目前尚未见有关牛卵母细胞在20-22...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
作者谨此感谢犹他州立大学的同事、圣地亚哥动物园的生殖科学研究人员,以及 Genus PLC 的 Rebecca Krisher 博士。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 离心管 | Fisher Scientific | 5408129 | |
| 60 mm 培养皿 | Sigma-Aldrich | D8054 | |
| 离心机 | Eppendorf | 5424 | |
| 细胞松弛素 B | Sigma-Aldrich | C6762 | |
| 胎牛血清 | Sigma-Aldrich | F2442 | |
| M199 培养基 | Sigma-Aldrich | M4530 | |
| 矿物油 | Sigma-Aldrich | M8410 | |
| 微型离心机 | SCILOGEX | D1008 | |
| 线粒体 DNA 引物:正向(12S) | GGGCTACATTCTCTACACCAAG | ||
| 线粒体 DNA 引物:反向(12S) | GTGCTTCATGGCCTAATTCAAC | ||
| NanoDrop 分光光度计 | Thermo Scientific | ND2000 | |
| 带铝制手柄的眼科手术刀 | PFM Medical | 207300633 | 用于半切的微型刀片 |
| 蛋白酶/嗜热菌蛋白酶 | Sigma-Aldrich | P5147 | |
| QIAamp DNA Micro 试剂盒 | Qiagen | 56304 | |
| QuantStudio™ 3 - 96 孔 0.2-mL | ThermoFisher | A28567 | |
| 筛选板 | Fisher Scientific | FB0875711A | |
| SYBR Green qPCR 主混合液 | ThermoFisher | K0221 | qPCR 主混合液 |
| 含 HEPES 的合成输卵管液(HSOF) | |||
| ThermoPlate | Tokai Hit | TPi-SMZSSX | 加热载物台 |
参考文献
- Loi, P., Modlinski, J. A., Ptak, G. Interspecies somatic cell nuclear transfer: A salvage tool seeking first aid. Theriogenology. 76 (2), 217-228 (2011).
- Wani, N. A., Vettical, B. S., Hong, S. B. First cloned Bactrian camel (camelus bactrianus) calf produced by interspecies somatic cell nuclear transfer: A step towards preserving the critically endangered wild Bactrian camels. PLOS ONE. 12 (5), 0177800(2017).
- Oh, H. J., et al. Cloning endangered gray wolves (canis lupus) from somatic cells collected postmortem. Theriogenology. 70 (4), 638-647 (2008).
- Srirattana, K., et al. Full-term development of gaur-bovine interspecies somatic cell nuclear transfer embryos: Effect of trichostatin a treatment. Cellular Reprogramming. 14 (3), 248-257 (2012).
- Kwon, D. K., et al. Blastocysts derived from adult fibroblasts of a rhesus monkey (macaca mulatta) using interspecies somatic cell nuclear transfer. Zygote. 19 (3), 199-204 (2011).
- Lee, E., et al. Production of cloned sei whale (Balaenoptera borealis) embryos by interspecies somatic cell nuclear transfer using enucleated pig oocytes. Journal of Veterinary Science. 10 (4), 285(2009).
- Lorthongpanich, C., Laowtammathron, C., Chan, A. W., Kedutat-Cairns, M., Parnpai, R. Development of interspecies cloned monkey embryos reconstructed with bovine enucleated oocytes. Journal of Reproduction and Development. 54 (5), 306-313 (2008).
- Hong, S. G., et al. Production of transgenic canine embryos using interspecies somatic cell nuclear transfer. Zygote. 20 (1), 67-72 (2011).
- Stewart, J. B., Chinnery, P. F. The dynamics of mitochondrial DNA heteroplasmy: Implications for human health and disease. Nature Reviews Genetics. 16 (9), 530-542 (2015).
- Takeda, K. Mitochondrial DNA transmission and confounding mitochondrial influences in cloned cattle and pigs. Reproductive Medicine and Biology. 12 (2), 47-55 (2013).
- Lanza, R. P., et al. Cloning of an endangered species (Bos Gaurus) using interspecies nuclear transfer. Cloning. 2 (2), 79-90 (2000).
- Evans, M. J., et al. Mitochondrial DNA genotypes in nuclear transfer-derived cloned sheep. Nature Genetics. 23 (1), 90-93 (1999).
- Meirelles, F. V., et al. Complete replacement of the mitochondrial genotype in a Bos indicus calf reconstructed by nuclear transfer to a Bos taurus oocyte. Genetics. 158 (1), 351-356 (2001).
- Beyhan, Z., Iager, A. E., Cibelli, J. B. Interspecies nuclear transfer: Implications for embryonic stem cell biology. Cell Stem Cell. 1 (5), 502-512 (2007).
- Lagutina, I., Fulka, H., Lazzari, G., Galli, C. Interspecies somatic cell nuclear transfer: advancements and problems. Cellular Reprogramming. 15 (5), 374-384 (2013).
- Jiang, Y., et al. Interspecies somatic cell nuclear transfer is dependent on compatible mitochondrial DNA and reprogramming factors. PLoS ONE. 6 (4), 14805(2011).
- Chiaratti, M. R., et al. Embryo mitochondrial DNA depletion is reversed during early embryogenesis in cattle. Biology of Reproduction. 82 (1), 76-85 (2010).
- Spikings, E. C., Alderson, J., John, J. C. Regulated mitochondrial DNA replication during oocyte maturation is essential for successful porcine embryonic development. Biology of Reproduction. 76 (2), 327-335 (2007).
- Cagnone, G. L., et al. Restoration of normal embryogenesis by mitochondrial supplementation in pig oocytes exhibiting mitochondrial DNA deficiency. Scientific Reports. 6 (1), 1-15 (2016).
- Spikings, E. C., Alderson, J., John, J. C. Regulated mitochondrial DNA replication during oocyte maturation is essential for successful porcine embryonic development. Biology of Reproduction. 76 (2), 327-335 (2007).
- Ferreira, A. F., et al. Does supplementation with mitochondria improve oocyte competence? A systematic review. Reproduction. 161 (3), 269-287 (2021).
- Bhat, M. H., et al. Live birth of a pashmina goat kid after transfer of handmade cloned embryos. Journal of Reproduction and Development. , (2019).
- Tecirlioglu, R. T., et al. Birth of a cloned calf derived from a vitrified hand-made cloned embryo. Reproduction, Fertility and Development. 15 (7), 361(2003).
- Zhang, P., et al. Handmade cloned transgenic piglets expressing the nematode fat-1 gene. Cellular Reprogramming. 14 (3), 258-266 (2012).
- Zhang, P., et al. Handmade cloned transgenic sheep rich in omega-3 fatty acids. PLOS ONE. 8 (2), 55941(2013).
- Lagutina, I., et al. Somatic cell nuclear transfer in horses: Effect of oocyte morphology, embryo reconstruction method and donor cell type. Reproduction. 130 (4), 559-567 (2005).
- Chiaratti, M. R., et al. Embryo mitochondrial DNA depletion is reversed during early embryogenesis in cattle. Biology of Reproduction. 82 (1), 76-85 (2010).
- Hosseini, S. M., et al. and efficient method of manual oocyte enucleation using a pulled pasteur pipette. In Vitro Cellular and Developmental Biology - Animal. 49 (8), 569-575 (2013).
- Zampolla, T., Spikings, E., Rawson, D., Zhang, T. Cytoskeleton proteins F-actin and tubulin distribution and interaction with mitochondria in the granulosa cells surrounding stage III zebrafish (danio rerio) oocytes. Theriogenology. 76 (6), 1110-1119 (2011).
- International Union for Conservation of Nature. The IUCN Red List of Threatened Species. International Union for Conservation of Nature. , (2021).
- Berg, D. K., Li, C., Asher, G., Wells, D. N., Oback, B. Red deer cloned from antler stem cells and their differentiated progeny. Biology of Reproduction. 77 (3), 384-394 (2007).
- Gómez, M. C., et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning and Stem Cells. 6 (3), 247-258 (2004).
- Lanza, R. P., et al. Cloning of an endangered species (Bos gaurus) using interspecies nuclear transfer. Cloning. 2 (2), 79-90 (2000).
访问受限。请登录或开始试用以查看此内容。
重印与许可
