İnflamatuar hücre sinyal molekülü nitrik oksit (NO) seviyeleri yaygın olarak Griess reaktifi kullanılarak test edilir. Bu protokolde, NO'nun salgılanmasını basit, ölçülebilir ve yüksek oranda tekrarlanabilir bir yöntemle tespit etmek için canlı Drosophila beyin dokusu kullanılarak modifiye edilmiş bir Griess testi oluşturduk.
Yöntem makalesi
Drosophila Nöroinflamatuar Yanıtında Nitrik Oksit Düzeylerinin Yeni Tüm Doku Kantitatif Testi
Bu makalede
Özet
Özet
Nöroinflamasyon, merkezi sinir sisteminin (CNS) sağlıklı işlevi için hayati önem taşıyan karmaşık bir doğuştan gelen bağışıklık tepkisidir. Normal koşullar altında, karmaşık bir indükleyici, dedektör ve aktivatör ağı, nöron hasarına, enfeksiyona veya diğer bağışıklık ihlallerine hızla yanıt verir. Bağışıklık hücrelerinin bu iltihabı, Parkinson hastalığı (PD), Alzheimer hastalığı ve ALS gibi nörodejeneratif bozuklukların patolojisi ile yakından ilişkilidir. Riskli hastalık durumları altında, nöron hasarını en aza indirmeyi amaçlayan kronik inflamasyon, bağışıklık hücrelerinin aşırı uyarılmasına yol açabilir ve sonuçta hastalığın ilerlemesinin alevlenmesine neden olabilir. Örneğin, PH'nin ayırt edici bir özelliği olan orta beyindeki dopaminerjik nöronların kaybı, enflamatuar yanıtın aşırı aktivasyonu ile hızlanır. PH'nin nedeni büyük ölçüde bilinmemekle birlikte, çevresel toksinlere maruz kalma sporadik vakaların başlangıcında rol oynamaktadır. Örneğin herbisit parakuatının, Drosophila melanogaster dahil olmak üzere birçok hayvan modelinde Parkinson benzeri patolojiyi indüklediği gösterilmiştir.Burada, Drosophila'daki korunmuş doğuştan gelen bağışıklık tepkisini, enflamatuar yanıt kaskadının aktivasyonu ve hedeflenen nöron ölümü için kritik olan bir hücre sinyal molekülü olan çeşitli nitrik oksit seviyelerini tespit edebilen bir test geliştirmek için kullandık. Parakuat kaynaklı nöronal hasarı kullanarak, bu bağışıklık hakaretlerinin nöroinflamatuar stimülasyon üzerindeki etkisini yeni, kantitatif bir test kullanarak değerlendiriyoruz. Bütün beyinler, nörotoksinlere maruz kalan sineklerden veya nörodejenerasyona duyarlılığı artıran genotiplerden tamamen çıkarılır ve daha sonra hücre kültürü ortamında inkübe edilir. Daha sonra, Griess reaktif reaksiyonunun ilkelerini kullanarak, nitrik oksidin hücre kültürü ortamına salgılanmasındaki küçük değişiklikleri tespit edebiliyoruz, bu da esasen basit bir prosedürde birincil bir canlı doku modeli oluşturuyor. Bu modelin faydası, Drosophila melanogaster'in sağlam genetik ve moleküler karmaşıklığı ile güçlendirilir ve bu test, diğer Drosophila dokularına ve hatta diğer küçük, tüm organizma inflamasyon modellerine uygulanabilir şekilde değiştirilebilir.
Giriş
Nöroinflamasyon, çoğunluğu nörodejeneratif bozukluklar olan çok çeşitli hastalıkların patolojisi ile yakından ilişkili olduğu gösterilen karmaşık bir bağışıklık tepkisidir. Bazal koşullar altında, bu çok yönlü peripatetik bağışıklık hücreleri ağı, enfeksiyona, plaklara veya yaralanmaya hızlı tepki vererek doku sağlığını korur1,2. Memeli merkezi sinir sistemi tarafından bir nöroinflamatuar yanıt, normal yaşlanma ile ilişkili hücresel oksidatif stres gibi küçük hakaretler veya kimyasal bir toksine akut maruziyetten kaynaklanan nöron hasarı gibi büyük saldırılar nedeniyle tetiklenebilir. Bu indüksiyon gerçekleştiğinde, mikroglia olarak bilinen fagositik gözetim hücreleri aktive edilir ve nöronal hücresel hasar bölgesine göç eder. Periferde bulunan makrofaj hücrelerine benzeyen bu çöpçü benzeri bağışıklık hücreleri, daha sonra hasarlı nöronla ve ayrıca astrositlerle karmaşık bir sinyal kaskadı başlatır ve tipik olarak sağlam mikroglial yanıt3-7 için mikroglia ile birlikte hareket eden glial hücreleri destekler. Aktive edildikten sonra, mikroglia bağışıklık sistemini uyarmak ve doku onarımını desteklemek için bir iltihaplanma sürecine başlar1,8.
Parkinson hastalığı (PH), Alzheimer hastalığı ve amyotrofik lateral skleroz gibi nörodejeneratif hastalıklarda olduğu gibi, sürekli hakaret koşullarında, kronik inflamasyon sağlıklı dokuda da önemli hasara neden olur. Son zamanlarda yapılan çalışmalar, bağışıklık sisteminin bu kalıcı, agresif tepkisinin aslında9-11 durumunu iyileştirmek yerine hastalık durumunu şiddetlendiren aşırı uyarıcı bir reaksiyona yol açabileceğini göstermiştir.
Drosophila melanogaster'de, doğuştan gelen bağışıklık tepkisi genetik olarak iyi korunur. Gerçek bir adaptif bağışıklık ağından yoksun olmasına rağmen, Drosophila, hemositler olarak bilinen bir fagosit sınıfı içeren sofistike bir doğuştan gelen bağışıklık sistemini korur. Bu bağışıklık hücreleri daha önce yaralanmabölgesine 12,13 göç eden ve septik şok14, bir parazitin15 ortaya çıkması veya viral enfeksiyon16 sırasında fagositoza uğrayan makrofaj benzeri hücreler olarak tanımlanmıştır.
Daha da önemlisi, memeli makrofajları gibi, fagositik hemositler de nitrik oksit sentazı (NOS) eksprese eder ve Drosophila bağışıklığının kritik bir sinyal bileşeni olan nitrik oksit (NO) üretir15,16. Bununla birlikte, tüm bu çalışmalar, yalnızca embriyonik gelişim sırasında ve larvalarda hemosit yanıtlarını gösterebilmiştir.
Laboratuvarımız, daha önce bilinmeyen bir fenomen olan Drosophila yetişkin beyinlerinde sağlam, hemosit aracılı bir nöroinflamasyon gözlemledi17. Bu yanıt, toksik parakuata maruz kalma yoluyla indüklendi. Ulusal Sağlık Enstitüleri tarafından yapılan epidemiyolojik çalışmalar, yaygın olarak kullanılan herbisiti insanlarda PH başlangıcında potansiyel bir risk faktörü olarak tanımlamıştır18. Memeli modellerinde parakuat tedavisini araştıran araştırmalar, nörotoksik özelliklerini zaten doğrulamış ve herbisitin motor anormallikler ve seçici nöron kaybı gibi Parkinson semptomlarına yol açtığını göstermiştir19-21. Drosophila'da paraquat tedavisi, PDpatolojisi 22 ile uyumlu dopaminerjik nöron ölümünün yanı sıra çok çeşitli Parkinson davranışsal fenotiplerine yol açar. Drosophila'da bu nöroinflamatuar yanıtla ilişkili mekanizmalar ve genetik faktörler henüz tam olarak aydınlatılamamış olsa da, nörodejenerasyon sırasında NOS'un korunmuş bir indüksiyonunu gözlemledik.
Bu yöntemi kullanarak, bilinen nörotoksik duyarlılığa sahip mutant genotipleri kullanarak daha az dramatik olsa da benzer bir nöroinflamatuar yanıt tespit ettik. Punch geni tarafından kodlanan GTP siklohidrolaz, BH4'ün biyosentezindeki ilk ve hız sınırlayıcı proteindir ve daha sonra NOS23,24 için gerekli bir kofaktör olarak işlev görür. Fonksiyon kaybı mutasyonu PuZ22, enflamatuar yanıtta bir azalmaya ve paraquat25'e karşı artan duyarlılığa neden olur. Bu protokolle, bu genetik varyasyonun neden olduğu nitrik oksit seviyelerinin nispeten ince modifikasyonlarını ölçebildik.
Numunelerimizdeki NO'yu tespit etmek için, NO seviyelerini ölçmek için yaygın olarak kabul edilen bir kolorimetrik yöntem olan Griess reaktifini kullanıyoruz. Bu reaktif, nitrik oksit üretiminin iki son ürününden biri olan nitritlerin varlığını tespit ederek nispi NO bolluğunu dolaylı olarak ölçer. Griess reaktifini kullanan mevcut nitrit tespit protokolleri, öncelikle in vitro analizler için veya NO'nun kültür ortamına yayıldığı hücre kültüründe uygulanmıştır. Başlangıçta, ham Drosophila kafa homojenatlarında25 NOS'u tespit etmek için Griess reaktifi bazlı bir yöntem geliştirdik. Bununla birlikte, bu yöntemin, muhtemelen tüm kafa dokularında kararsızlık, yüksek reaktivite ve düşük nispi NO konsantrasyonu nedeniyle, değişen koşullarla biraz değişken olduğunu bulduk. Bu nedenle, NOS aktivitesini ölçmede daha fazla hassasiyet ve güvenilirlik sağlayacak hücre kültürü protokollerine dayalı bir yöntem geliştirmeye çalıştık. Burada, Drosophila larva Malpighian tübüllerinde NOS'u tespit etmek için daha önce kullanılana kavramsal olarak benzer bir yöntemi açıklıyoruz26. Bu prosedürde, enflamatuar yanıtı indüklemek için bir toksin tedavisinden hemen sonra diseke edilen tüm beyinleri kullanıyoruz. Daha sonra, dokunun bütünlüğünü korumak ve Griess reaktif bazlı bir testin hassasiyetini ve güvenilirliğini artırmak için bu örnekleri böcek kültürü ortamında inkübe ettik.
Mevcut gelişmiş genetik araçların kullanılmasıyla, bu modelin dinamik inflamasyon/nörodejenerasyon ağını araştırmak için umut verici bir yardımcı program olarak hizmet etme kapasitesine sahip olduğunu tahmin ediyoruz. Nöroinflamatuar yanıtın aktivasyonunu ve nispi yoğunluğunu doğru bir şekilde ölçme yeteneği ile bu yeni test, salgılanan nöroinflamatuar belirteçleri tespit edebilen bir birincil doku kültürü oluşturur. Bu yöntem, küçük organizma inflamasyon modellerine, daha önce eksik olan tüm organizma veya canlı doku örneklerini hızlı bir şekilde test etmek için ucuz, oldukça hassas bir teknik sunar.
Protokol
1. Paraquat Pozlaması
- Test sineklerinin kültürlerini, yaklaşık 35 dişi ve 15 erkekten oluşan eşdeğer kültür yoğunlukları altında 25 ° C'de standart Drosophila kültür ortamında koruyun.
- Besleme haznelerini hazırlamak için, filtre kağıdı ile boş bir şişenin dibine doğrudan pamuğun üzerine az miktarda emici pamuk yerleştirin.
- Yetişkin erkek sinekleri, soğuk koma veya CO 2 kullanarak eklosyondan 3-5 gün sonra uyuşturun. Burada açıklanan deneyler için, genotip y w1118 erkeklerini kullanın.
- Soğuk komadan ayrılma için, sinek içeren besleme şişelerine hafifçe vurun ve ardından tıpayı hızlı bir şekilde çıkarın ve sinekleri doğrudan temiz, boş bir şişeye aktarın ve doğru şekilde etiketlediğinizden emin olun.
- Sinekler boş yiyecek şişelerine başarılı bir şekilde aktarıldıktan sonra, şişeleri hafifçe vurun ve hemen 5 dakika veya sinekler bayılana kadar buz kovasına koyun.
not: Şişeyi tamamen buza batırmayın. Bu, şişeye su veya nemin girmesine ve sineklerin boğulmasına neden olabilir. Başka bir önlem olarak, buz kovalarında erimiş buz yerine taze buz kullanın.
not: Her tahlil için gereken sinek sayısına çok dikkat edin ve mümkünse, insan hatası durumunda, örneğin besleme veya aktarma sırasında kaçan sinekler gibi bir önlem olarak her gruba ek sinekler ekleyin. Örneğin, nitrik oksit tespit testi, numune seti başına 20 sinek beyni gerektirir, bu nedenle beslenme sırasında diseksiyon beceri seviyesini ve verimliliğini hesaba katın (yani, acemiler, transfer veya diseksiyon hataları durumunda 20'den fazla sinek kurmalıdır).
- Sinekler uyuşturulduktan sonra, her grubu yukarıda hazırlandığı gibi ilgili besleme şişesine aktarın.
- Sinekler besleme şişelerinde tamamen uyandıktan sonra, onları 1,5 saat aç bırakın ve bu arada aşağıda açıklanan çözeltileri hazırlayın:
- 100 ml çift damıtılmış suya 5 g sükroz ekleyerek% 5 sakarozlu bir stok çözeltisi (kontrol çözeltisi) hazırlayın. Tamamen eriyene kadar karıştırın ve 4 °C.
'de saklayın not: Sonraki tüm besleme çözeltileri için çözücü olarak %5 sükroz stok çözeltisi kullanın. - Seyreltici olarak %5 sükroz kullanarak stok 10 mM paraquat stok çözeltisi hazırlayın ve 4 °C'de saklayın. Gerektiği gibi seri seyreltmeler kullanarak diğer tüm konsantrasyonları hazırlayın.
DIKKAT: PARAQUAT SON DERECE TOKSIKTIR. GÜVENLIK YÖNERGELERI VE UYGUN KULLANIM/IMHA IÇIN MSDS'YE BAKIN. - Seyreltici olarak% 5 sakaroz kullanarak 10 mM N-Nitro-L-arginin metil ester hidroklorür (L-NAME), N-nitro-D-arginin metil ester hidroklorür (D-NAME) stok çözeltileri hazırlayın ve 4 ° C'de saklayın. Paraquat ile L-NAME veya D-NAME madeni parakübasyonları için, her bir bileşiği paraquat konsantrasyonu ile 1: 1 oranında uygulayın. Gerektiği gibi seri seyreltmeler kullanarak diğer tüm konsantrasyonları hazırlayın.
not: Hazırlandıktan hemen sonra tüm çözeltileri filtreleyin. Deneysel tutarlılığı sağlamak için Paraquat, D-NAME ve L-NAME stokları hazırlandıktan sonraki bir hafta içinde kullanılmalıdır. - Besleme solüsyonunu günde 150 μl (veya besleme süresine bağlı olarak daha az) filtre kağıdına pipetleyin, sinekleri boğmamaya veya herhangi bir şeyin kaçmasına izin vermemeye dikkat edin.
- 100 ml çift damıtılmış suya 5 g sükroz ekleyerek% 5 sakarozlu bir stok çözeltisi (kontrol çözeltisi) hazırlayın. Tamamen eriyene kadar karıştırın ve 4 °C.
2. Sağkalım/Mortalite Testi
- Besleme odalarını daha önce açıklandığı gibi ayarlayın.
not: Kurumayı önlemek için flakon başına en az 3 kat filtre kağıdı kullanın. - Her şişeye 10 erkek sineği 3-5 gün sonra yerleştirin ve filtre kağıdının gece boyunca kurumasına izin vermemeye dikkat ederek yukarıda belirtildiği gibi besleyin.
not: Çözeltilerin buharlaşmasını hızlandırmak için şişeleri oda sıcaklığında, doğrudan güneş ışığından uzakta tutun. - Ertesi günden başlayarak ("1. Gün" olarak adlandırılır), art arda 10 gün boyunca günde iki kez flakon başına rekor sayıda sinek ölür.
not: Varyasyonu azaltmak ve daha yüksek tutarlılık sağlamak için hem puanlamayı hem de beslemeyi her gün belirli saatlerde düzenleyin. - Tüm grupların en az üç bağımsız replikasyonunu kullanarak ortalama sağkalımı hesaplayın.
3. Yetişkin Sinek Beyinlerinin Diseksiyonu ve Kuluçka
- Diseksiyonlardan önce, 50 μl Grace's Insect Medium'u 96 oyuklu bir mikrotitre plakasında uygun sayıda oyuğa (her numune seti için bir kuyucuk + "boş"/kontrol için bir tane) pipetleyin ve uygun şekilde etiketleyin. Kullanana kadar plaka kapağı ile örtün.
not: Alternatif olarak, tercih edilirse steril santrifüj tüpleri de kullanılabilir. - Adım 1.3.1-1.3.2'de açıklandığı gibi soğuk koma kullanılarak bir numune setinin sinekleri uyuşturun.
- Sinekler tamamen uyuşturulduktan sonra, birkaç sineği bir mikroskop lamı üzerine yerleştirin
not: Diseksiyonlarda deneyimli değilse, küçük bir sinek alt kümesiyle başlayın. - Forseps ve cerrahi bir bıçak veya iki forseps kullanarak sinek kafalarını diseksiyon mikroskobu altında ayırın, bittiğinde sinek gövdelerini atın.
- Diseksiyon tamponu olarak az miktarda PBS kullanın; kurumadan kaçınılmalıdır.
- Williamson ve Hiesinger (2010)27'nin yöntemini izleyerek, kütikül partiküllerini ve beyin dışı dokuları (örneğin göz pigmenti dokusu) dikkatlice çıkararak tüm beyni çıkarın (Bkz. Şekil 1).
- Diseke edilen beyni uygun şekilde etiketlenmiş kuyuya aktarın ve oyuk başına en az 20 beyin olana kadar tekrarlayın.
- Diseksiyon süresi boyunca plakaları buz üzerinde tutun ve diseksiyonun başlaması ile testin başlatılması arasındaki toplam süreyi 20-30 dakikadan fazla aşmayın.
not: Her grup her kuyuda aynı sayıya sahip olduğu sürece 20'den fazla beyin kullanılabilir. Doğru okumayı elde etmek için minimum beyin sayısı değişebilir (daha fazla ayrıntı için Tartışma bölümüne bakın). - Çalışma seti tamamlandıktan sonra, beyinlerin hafif çalkalama ile 25 ° C'de 6 saat kuluçkaya yatmasına izin verin.
- Kalan tüm gruplar için 1.2-1.6 adımlarını izleyin.
not: Her bir numune setinin tamamlandığı zaman arasındaki farklara bağlı olarak inkübasyonun bitiş zamanını kaydedin ve ayarlayın.
4. Kuluçka Döneminde Hazırlık
- Modifiye Griess reaktifini üretici tarafından belirtildiği şekilde hazırlayın (tabloya bakın) ve kullanana kadar karanlıkta tutun. İhtiyaç duyulan reaktif miktarı, numune miktarına bağlıdır. Örneğin, Griess reaktifi, Grace's Medium'a 1:1 oranında eklenecektir (adım 5.5). Bu nedenle, numune seti başına 50 μl + boş kontrol için 50 μl hazırlanmalıdır.
- Toplam 8 konsantrasyon için 0.78125-100 mM nitrit arasında değişen bir seri seyreltmede sodyum nitrit kullanarak bir nitrit standart eğrisi oluşturun.
not: Bu, numune konsantrasyonunda ve Griess Reaktif aktivitesinde tutarlılık ve doğruluğu sağlamak için her deney için yapılmalıdır. - Ek olarak, her tedavi grubu için iki tüp ve kontrol için iki tüp olmak üzere steril 0.5 ml'lik santrifüj tüpleri hazırlayın ve etiketleyin.
5. Nitrit Seviyelerinin Tespiti
- Kuluçka süresi sona erdiğinde, Grace's Medium'u (en az 45 μl) mikrotitre kuyucuklarından her gruba karşılık gelen ilk santrifüj tüpü setine aktarın.
not: Daha önce belirtildiği gibi, her bir diseksiyon seti arasında geçen süre nedeniyle kuluçka sürelerindeki farklılıkları hesaba kattığınızdan emin olun. - İsteğe Bağlı Adım: Nitratları nitritlere dönüştürmek için bu adımda nitrat redüktaz ve NADPH ekleyin. (Bu adım gösterilen sonuçlar üzerinde gerçekleştirilmemiştir)
not: İstenirse, tahlil kitlerinde tarif edildiği gibi bir numune süpernatanı alikotu ile bir nitrat / nitrit testi yapılabilir. - Kuyucuklardan aspire edilmiş olabilecek herhangi bir beyin veya doku partikülünü peletlemek için 8,175 dakika boyunca hafifçe santrifüjleyin (yaklaşık 2 x g).
- İlk santrifüj tüpü setinden 30 μl'lik süpernatanı ikinci karşılık gelen tüp setine pipetleyin ve numuneleri döndürdükten sonra peleti bozmamaya dikkat edin.
- Griess reaktifini 1: 1 oranında ekleyin, 5-10 dakika inkübe edin ve 30 dakika içinde 548 nm absorbansta NanoDrop spektrofotometre kullanarak test edin
Not: Numuneler, 620 nm referans dalga boyu ile 540 nm absorbans dalga boyunda bir mikroplaka okuyucu kullanılarak da test edilebilir. - Her okumayı en az üç kez tekrarlayın ve okumaların ortalamasını alın.
not: Her 6-10 okuma arasında makineyi "boşalttığınızdan" emin olun ve tamamlamadan önce, standart sapma olarak kullanmak üzere boş kontrolü (Grace's Medium artı beyinsiz Griess reaktifi) çalıştırın. - Her bir numunenin bağıl nitrit seviyelerini hesaplamak için adım 4.2'de oluşturulan nitrit standart eğrisini kullanın.
- Bilinmeyen konsantrasyonları hesaplamak için, önce y ekseninde absorbans (yani optik yoğunluk) ve x ekseninde konsantrasyon kullanarak standart eğriden bilinen konsantrasyonların değerlerini çizin.
- Tüm standart eğri değerlerinin grafiği çizildikten sonra, en uygun çizginin eğimini bulun ve x.
için denklemi çözün not: Seri seyreltmeler düzgün bir şekilde yapılırsa, en uygun hat doğrusal veya ona çok yakın olmalıdır. Durum böyle değilse, standart eğriyi yeniden oluşturun. Sorun devam ederse, tüm çözeltileri, ortamları ve reaktifleri son kullanma tarihi kontrol edin ve ekipmanın düzgün çalıştığından ve algılama aralığı içinde olduğundan emin olun. - Daha sonra, absorbans değerlerini y ile değiştirin ve konsantrasyonu temsil eden x'i çözün.
NanoDrop ekipmanının kullanımıyla ilgili ek bilgi için Desjardins et al. 2009 ve Desjardins & Conklin, 201028,29.
6. Batı Lekesi
- Yukarıda açıklandığı gibi koşul başına 30 sinek besleyin ve tercihen sıvı nitrojen ve girdap kullanarak kafaları ayırın.
- Kullanımdan hemen önce eklenen 2 mM ditiyotreitol (DTT) ve 1x proteaz inhibitör kokteyli ile 60 μl RIPA tamponunda bütün kafaları buz üzerinde homojenize edin.
- Numuneleri 4 °C'de 8.175 x g'da 5 dakika boyunca döndürün.
- Süpernatanı yeni santrifüj tüplerine aktarın.
- Numuneleri nazikçe karıştırın ve 17 μl süpernatantı 6,5 μl 4x LDS numune tamponu ve 2,5 μl 500 mM DTT içeren santrifüj tüplerine pipetleyin.
not: Kalan donmuş numuneyi sıvı nitrojen içinde flaşlayın ve kullanıma kadar -20 °C'de saklayın. - Numuneleri iyice karıştırın ve 70 ° C'de 10 dakika ısıtın, bir kez orta inkübasyonda karıştırın.
- Isıtma sırasında, iç haznede 500 μl antioksidan içeren prekast %4-12 NuPage Bis-Tris minijel, MOPS SDS çalışma tamponu kullanarak poliakrilamid jel elektroforezi (PAGE) çalıştırma aparatını monte edin.
- Numuneleri hızlı döndürün ve soğumaya bırakın.
- Her şeride 25 μl yükleyin.
- Jel elektroforezini buz üzerinde 200 V'ta veya 4 °C'de 45 dakika veya jel tamamlanana kadar çalıştırın.
- Elektroforez tamamlandıktan sonra, ayrılan proteinleri iBlot Transfer Yığınları kullanarak jelden nitroselüloz membranlara aktarın ve Western Blot Tespit Kiti'ni kullanarak sinyali tespit edin.
not: Kullanılan antikorlar aşağıdaki gibidir: birincil antikorlar fare α-nNOS (1:250), fare α-syntaxin (1:200); Western Blot Tespit Kitinde (fare) sağlanan ikincil antikorlar (1:250). - Western blot görüntüleme sistemi veya X-ışını filmi kullanarak kemilüminesan sinyali tespit edin.
Not: Blot analizi için herhangi bir standart immünoblot tespit ve miktar tayini yöntemi kullanılabilir.
Sonuçlar
Paraquat'ın fareler19, sıçanlar20 ve meyve sinekleri22 gibi çok sayıda hayvan modelinde, Parkinson benzeri patoloji ile uyumlu nörolojik dejenerasyonu tetiklediği gösterilmiştir. Daha önce, antiinflamatuar bir antibiyotik olan minosiklinin paraquat ile birlikte verilmesinin, sağkalım süresini uzattığını, reaktif oksijen türlerinin üretimini azalttığını ve dopaminerjik nöron kaybını önlediğini rapor etmiştik25. Minosiklin inflamasyonu baskılayıcı etki gösterdiğinden, inflamatuar yanıtın aktivasyonunda temel bir protein olan NOS'u ve paraquat toksisitesini modüle etmedeki rolünü incelemeye başladık.
Etkili bir öldürücü doz ve toksik işlem aralığı belirlemek amacıyla, 1,25 ile 10 mM arasındaki paraquat konsantrasyonları kullanılarak bir paraquat toksisite eğrisi oluşturulmuştur (Şekil 2A). Ayrıca 20 mM ve 40 mM paraquat konsantrasyonlarının etkilerini de inceledik; ancak bu yüksek konsantrasyonlarda toksisitenin, hücrelerin bu oksidatif stresöre verdiği yanıtları doğru şekilde değerlendirmek için çok şiddetli olduğunu gördük ve bu nedenle bu konsantrasyonlara ait sonuçları bu rapora dahil etmedik. Rekabetçi bir NOS inhibitörü olan L-NAME ve NAME'nin inaktif izomeri olan D-NAME kullanarak, yetişkin erkek sinekleri paraquat ve NAME izomerlerinden biri ile birlikte işleme tabi tuttuk. Sineklerin paraquat ve L-NAME ile birlikte işlenmesi, paraquat alımının neden olduğu yaşam süresi kısalmasında anlamlı bir iyileşme sağlarken, paraquat ve D-NAME ile birlikte işlenen sineklerin sağkalımında herhangi bir iyileşme görülmemiştir (Şekil 2B); bu durum, NOS inhibisyonu yoluyla inflamasyonun baskılanmasının paraquat uygulanmış sineklerin sağkalımını artırdığı hipotezini desteklemektedir.
NOS aracılı paraquat yanıtının daha fazla doğrulanması amacıyla, paraquat maruziyetinin hemen ardından NOS protein seviyelerindeki değişiklikleri tespit ettik. NOS protein seviyeleri, paraquat konsantrasyonuna bağlı olarak artış gösterdi (Şekil 3A). Sineklerin 6-30 sa arasındaki maruziyet süreleri boyunca 10 mM paraquat ile tedavi edilmesi durumunda, maruziyet süresi arttıkça önce bir artış, ardından bir azalma gözlemledik (Şekil 3B); bu durum, Griess deneyi varyantımızda gözlemlenen nitrit seviyesi paternleri ile uyumludur (Şekil 5B). Bu sonuçlar, paraquat tedavisinin NOS indüksiyonuna yol açtığı ve NOS inhibisyonunun veya L-NAME ya da minosiklin ile tedavinin kısmi koruma sağladığı yönündeki raporlarımızla tutarlıdır17,25.
Şekil 4A, paraquat konsantrasyonundaki artış ile NO salınımı ve tespitiyle tanımlanan inflamatuar yanıtın büyüklüğü arasındaki doğrusal ilişkiyi göstermektedir. Bazal seviyelerde, heterozigot Punch mutantları, önceki tespit yöntemleri kullanılarak belirlenemeyecek kadar belirsiz bir varyasyonla biraz daha düşük NO seviyeleri salgılamıştır. Paraquatla beslendiklerinde, Punch mutantında NO seviyelerinde belirgin bir artış gözlemlenmiş, ancak bu artış yabanıl tip işlem görmüş sineklerden önemli ölçüde daha düşük kalmıştır (Şekil 4B). İşlem görmemiş seviyelerdeki varyasyon olağanüstü derecede düşük olmasına rağmen, yabanıl tip ve Punch sineklerinin göreceli değerleri doğru ve tekrarlanabilir şekilde nicelendirilebilir.
Toksinler veya kimyasallarla çalışırken, hem bir maruziyet süresi eğrisinin hem de konsantrasyon tabanlı bir toksisite eğrisinin oluşturulması hayati önem taşır; çünkü bu koşullar analizin duyarlılığını önemli ölçüde değiştirebilir. Örneğin, 5 mM paraquat ile tedavi, 24 saatlik maruziyetten sonra maksimum NO tespitine yol açarken (Şekil 5A), 10 mM paraquat maruziyeti daha hızlı bir indüksiyona (maksimum seviyeler 12. saatte) ancak uzatılmış maruziyetler sırasında aktivitenin daha hızlı azalmasına neden olmuştur (Şekil 5B). Hızlı indüksiyon sağlayan daha yüksek bir konsantrasyon tercih edilebilir görünse de, maksimize edilmiş bir yanıt, hem nöronların hem de muhtemelen hemositlerin ölümünü, tekrarlanabilirliğin zorlaşabileceği bir noktaya kadar hızlandırır.
NO molekülleri kararsızdır ve yüksek derecede reaktiftir. Bu nedenle, başarılı bir analiz, NOS'un sürekli indüksiyonu ile NO'nun hızlı döngüsü arasında optimal bir denge sağlayan inkübasyon koşullarını içermelidir. Optimal inkübasyon koşullarını belirlemek amacıyla, diseke edilen beyinlerin Griess reaktifi eklenmeden önce kültür ortamında inkübe edildiği sürenin etkisini değerlendirdik. Oda sıcaklığında 6 hr inkübasyonun, sonraki Griess reaksiyonunda maksimum nitrit seviyelerini ürettiğini saptadık (Şekil 5C). Çeşitli inflamasyon modelleri için deteksiyonu optimize etmek adına inkübasyon süresinde değişiklikler yapılması gerekebileceğini öngörüyoruz. Süreç oldukça dinamik olduğundan, analiz edilen belirli organizma, genotip ve doku için tüm optimal parametrelerin dikkatle belirlenmesi, güvenilir ve doğru sonuçlar elde etmek için esastır. Özellikle, genetik varyantların ve transgen ekspresyon modellerinin, özellikle gelişim evresi veya yetişkin yaşıyla ilgili olarak önemli ölçüde optimizasyon gerektirmesi beklenmektedir.
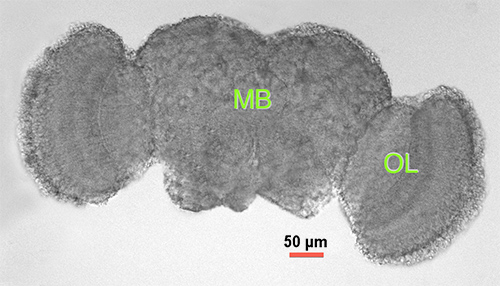
Şekil 1. Drosophila ergin beyni. Çıkıştan 2-3 gün sonraki diseke edilmiş ergin erkek beyninin ışık mikroskopisi görüntüsü. MB = orta beyin (merkezi korteks), OL = optik lob.
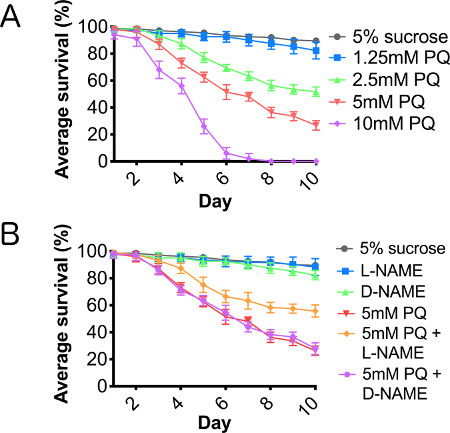
Şekil 2. Paraquat, nitrik oksit sentaz aracılığıyla yaşam süresinde doza bağımlı bir azalmaya neden olur. %5 sükroz (kontrol) ile beslenen (A) ve %5 sükroz içinde 1.25-10 mM konsantrasyon aralığında paraquat seri dilüyonu ile beslenen veya (B) 10 gün boyunca ardışık olarak paraquat ile birlikte L-NAME veya D-NAME ile beslenen yabani tip erkek sinekler. N = 10'arlı 3 grup. Hata çubukları = SEM.
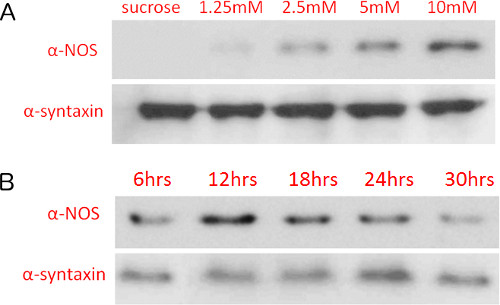
Şekil 3. Nitrik oksit sentaz protein seviyeleri, paraquat konsantrasyonu ve maruz kalma süresi ile birlikte artış göstermektedir. Farklı (A) paraquat konsantrasyonları (12 sa maruz kalma) ve (B) farklı maruz kalma süreleri ile 10 mM paraquat uygulanan sineklerin nitrik oksit sentaz seviyelerinin immünoblot ile tespiti. Protein seviyeleri, nitroselüloz membranlar üzerinde kemilüminesans ve X-ray film pozlama kullanılarak tespit edilmiştir.
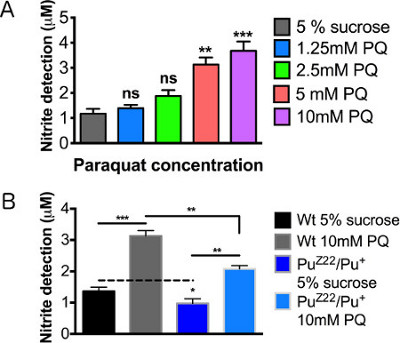
Şekil 4. Paraquat maruziyeti sonrası nitrik oksit tespit seviyeleri. Çıkıştan 2-3 gün sonraki erkek vahşi tip (WT) sinekler, 12 saatlik beslemenin ardından analiz edildi. (A) Paraquat konsantrasyonlarının konsantrasyon eğrisi. (B) Sükroz kontrolü ve 10mM paraquat ile beslenen erkek Punch heterozigot mutantlar. N = grup başına 20 beyin. Sonuçlar grup başına 3 tekrarı temsil etmektedir. Hata çubukları = SEM. İstatistiksel analizler, Dunnett'in Çoklu Karşılaştırma post-testi ile tek yönlü ANOVA kullanılarak gerçekleştirilmiştir (*, p < 0.05, **, p < 0.01, ***, p < 0.001).

Şekil 5. Paraquat maruz kalma süresi ve doku inkübasyon süresi değiştirilerek nitrik oksit üretim tespitinin optimize edilmesi. (A) 5 mM paraquat ve (B) 10 mM paraquat ile 12 saatlik tedavinin ardından, çıkımdan 2-3 gün sonraki erkek beyinlerdeki bağıl nitrik oksit seviyeleri. (C) 12 saatlik, 10 mM paraquat beslemesini takiben farklı doku inkübasyon süreleri kullanılarak elde edilen NO eğrisi. Anlamlılık değerleri şunlara göre hesaplanmıştır: (A, B) her maruz kalma süresi için %5 sükroz kontrolleri (grafikte gösterilmemiştir), (C) her inkübasyon süresi için %5 sükroz kontrolleri (grafikte gösterilmemiştir). N = 20 beyin/grup. Sonuçlar, grup başına 3 replikasyonu temsil etmektedir. Hata çubukları = SEM. İstatistiksel analizler, Dunnett Çoklu Karşılaştırma post-testi ile tek yönlü ANOVA kullanılarak gerçekleştirilmiştir (*, p<0.05, **, p<0.01, ***, p<0.001).
Tartışma
Bu yöntem, yaklaşımı basit olmasına rağmen, NOS aracılı nöroinflamasyon düzeylerini ölçmek için uygun maliyetli, yüksek oranda tekrarlanabilir ve son derece hassas bir yöntem sağlar. Sonuçlar bölümünde gösterildiği gibi, farklı indüksiyon modellerinde veya organizmalarda yanıtı geliştirmek veya optimize etmek için ayarlanabilen birçok değişken vardır. Ancak bu oldukça hassas bir sistem olduğundan, protokolün tüm yönleri dikkatli bir şekilde ele alınmazsa bu değişkenler oldukça değişken sonuçlara da yol açabilir. Herhangi bir model kullanarak ilk test yaparken, kimyasal konsantrasyon (Şekil 4A), maruz kalma süresi (Şekil 5A ve 5B) ve inkübasyon süresi (Şekil 5C) dahil olmak üzere değişkenleri test ederek parametreleri ayarlamanızı öneririz. Bu yöntemi benzer Drosophila modellerine uygularken bile, tespit eşiği ve tutarlılığı elde etmek için gereken beyin/doku örneği sayısı gibi diğer değişkenlere dikkat edin. Ek olarak, yaşa bağlı genetik inflamasyon modellerinde, uzatılmış zaman noktası optimizasyonuna ihtiyaç duyulacaktır.
Yukarıda bahsedildiği gibi, testin hassas doğası nedeniyle, protokoldeki tutarsızlıklar güvenilmez sonuçlar verebilir. Bunu akılda tutarak, tüm ekipman ve malzemeler kullanımdan önce sterilize edildi. Kısa inkübasyon süresi nedeniyle, bu deneylerde kültür ortamına antibiyotik eklenmemiştir. Bununla birlikte, protokol daha uzun inkübasyon süreleri için uyarlanmışsa veya kültürlerde veya besiyerlerinde bakteri üremesi gözlenirse, penisilin-streptomisin gibi tipik kültür antibiyotikleri eklenmeli ve ekipman yeniden sterilize edilmelidir. Herhangi bir kimyasal arıtma deneyinde olduğu gibi, tüm grupların iyi kontrol edilen koşullar altında, cinsiyet ve yaş uyumlu olarak yetiştirildiğinden ve tüm grupların tam olarak aynı beslenme koşullarını aldığından emin olmak için dikkatli olunmalıdır. Dikkate alınması gereken bazı örnek besleme koşulları arasında konsantrasyonlardaki değişiklikler, besleme kaynağına bulunabilirlik ve erişim, besleme süresi ve beslemenin uygulandığı günün saati yer alır. Tüm deneysel koşullar için ayrıntılı kayıtlar ve modelinizin doğal besleme modellerine yakından dikkat edilmesi, değişkenliğin en aza indirilmesine yardımcı olacaktır. Nöral devreleri veya davranış kalıplarını etkileyen mutant veya transgenik suşlar kullanılıyorsa, önemli bir kontrol, beslenme davranışının izlenmesini içerecektir.
Bir kez daha, hücre kültürü ve lizatlarda benzer protokoller mevcut olsa da, bu yöntemin en büyük avantajlarından biri, dokunun bütünlüğünün korunması ve dolayısıyla beyindeki hemen hemen tüm hücresel ilişkilerin bozulmadan kalmasına izin vermesidir. Bu sistem, nöroinflamatuar sinyalleşme ve hücresel sekresyonun nispeten doğal, in vivo durumunu temsil eder. Drosophila'da kurulan bu teknik, diğer küçük model organizmalara kolayca uyarlanabilir ve böbrek fonksiyonu26 için bir Malpighian tübül modelinde NO sinyali için benzer bir uygulama ile gösterildiği gibi, merkezi sinir sistemi ile sınırlı değildir. Bu protokolün açık ara en önemli avantajı, bu tahlili araştırmacının veya model sistemin ihtiyaçlarına ve çıkarlarına uyacak şekilde manipüle etme ve uyarlama yeteneğidir.
Kombinasyon kimyasal-genetik yaklaşımların kullanılmasıyla, bu tahlil, küçük model sistemlerin inflamasyonun mekanizmalarını, genetik bileşenlerini ve kimyasal modülatörlerini araştırma yeteneğini önemli ölçüde artırma potansiyeline sahiptir.
Açıklamalar
Yazarlar herhangi bir rakip mali çıkar beyan etmemektedir.
Teşekkürler
Bu testin geliştirilmesi sırasında NanoDrop spektrofotometrelerini kullandıkları için Dr. Guy ve Dr. Kim Caldwell'e ve eleştirel yorumları ve önerileri için J. Gavin Daigle'a teşekkür ederiz. Bu yöntemin geliştirilmesi, Ulusal Sağlık Enstitüleri'nden (NS-078728) JMO'ya verilen bir hibe ile finanse edildi.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Besleme Odaları | |||
| Boş Drosophila flakon | Genesee Scientific | #32-116 | |
| Emici pamuk | Herhangi bir standart ürün kullanılabilir. | ||
| Filtre kağıdı | Fisher | # 09-802-1B | |
| Sükroz | Sigma-Aldrich | #S0389 | |
| Paraquat (metil violojen diklorür hidrat) | Sigma-Aldrich | # 856177 | Toksik. Dikkatli ve MSDS yönergeleri dahilinde ele alın |
| L-ADI (N-Nitro-L-arginin metil ester hidroklorür) | Sigma-Aldrich | #N5751 | |
| D-NAME (N-Nitro-D-arginin metil ester hidroklorür) | Sigma-Aldrich | #N4770 | |
| Diseksiyon Yetişkin Sinek Beyinleri ve Kuluçka | |||
| Grace'ın Insect Medium'u | Invitrogen | # 11605-094 | Grace's Medium, daha yüksek lottan partiye tutarlılık için Sf-900 II SFM veya Sf-900 III SFM Medium ile de değiştirilebilir. |
| 96 kuyulu plaka | Corning | # 3596 | Herhangi bir standart ürün kullanılabilir. |
| Mikroskop lamı | Herhangi bir standart ürün kullanılabilir. | ||
| Cerrahi bıçak | Tüy | #0197 | Herhangi bir standart ürün kullanılabilir. |
| Tıbbi Cımbız 5 | Dumont | EMS #72877-D | Herhangi bir standart ürün kullanılabilir. |
| 10x PBS tamponu | OmniPur | #6508 | |
| Nitrit Seviyelerinin Tespiti | |||
| Modifiye Griess reaktifi | Sigma-Aldrich | #4410 | |
| Sodyum nitrit | Sigma-Aldrich | #S2252 veya #237213 | |
| Protein Test Kiti | Bio-Rad | 500-0001 | |
| Küvetler | Herhangi bir standart ürün kullanılabilir. | ||
| Nitrat redüktaz | isteğe bağlı | ||
| NADPH | isteğe bağlı | ||
| Western Blot Analysis | |||
| >RIPA lizis tamponu | Amresco | 97063-270 | |
| ditiotreitol (DTT)- İndirgeyici ajan | Novex | B0009 | |
| Proteaz inhibitörü kokteyli | Amresco | 97063-082 | |
| 4x LDS numune tamponu | Novex | B0007 | |
| Prekast %4-12 Bis-Tris minijel | Novex | BG04125BOX | |
| MOPS SDS çalışan tampon | Novex | B0001 | |
| Antioksidan | NuPage | NP0005 | |
| iBlot Transfer Yığınları (Nitroselüloz) | Invitrojen | IB301002 | |
| Western blot algılama kiti | Invitrogen | IB711002 | |
| Fare α-nNOS | BD Biosciences | 611853 | |
| Fare α-syntaxin | DSHB | 8C3 |
Kaynaklar
- Gehrmann, J., Matsumoto, Y., Kreutzberg, G. W. Microglia: Intrinsic immuneffector cell of the brain. Brain Res. Rev. 20, 269-287 (1995).
- Dissing-Olesen, L., et al. Axonal lesion-induced microglial proliferation and microglial cluster formation in the mouse. Neuroscience. 149, 112-122 (2007).
- Aloisi, F., Penna, G., Cerase, J., Menendez Iglesias, B., Adorini, L. IL-12 production by central nervous system microglia is inhibited by astrocytes. J. Immunol. 159, 1604-1612 (1997).
- Vincent, V. A., Tilders, F. J., Van Dam, A. M. Inhibition of endotoxin-induced nitric oxide synthase production in microglial cells by the presence of astroglial cells: a role for transforming growth factor beta. Glia. 19, 190-198 (1997).
- Rohrenbeck, A. M., et al. Upregulation of COX-2 and CGRP expression in resident cells of the Borna disease virus-infected brain is dependent upon inflammation. Neurobiol. Dis. 6, 15-34 (1999).
- Walsh, D. T., Perry, V. H., Minghetti, L. Cyclooxygenase-2 is highly expressed in microglial-like cells in a murine model of prion disease. Glia. 29, 392-396 (2000).
- Aloisi, F., Serafini, B., Adorini, L. Glia-T cell dialogue. J. Neuroimmunol. 107, 111-117 (2000).
- Minghetti, L., Levi, G. Microglia as effector cells in brain damage and repair: focus on prostanoids and nitric oxide. Prog. Neurobiol. 54, 99-125 (1998).
- Mrak, R. E., Griffin, W. S. T. Glia and their cytokines in progression of neurodegeneration. Neurobiol. Aging. 26, 349-354 (2005).
- Zhang, W., et al. Aggregated alpha-synuclein activates microglia: a process leading to disease progression in Parkinson's disease. FASEB J. 19, 533-542 (2005).
- Beers, D. R., et al. Neuroinflammation modulates distinct regional and temporal clinical responses in ALS mice. Brain Behav. Immun. 25, 1025-1035 (2011).
- Wood, W., Faria, C., Jacinto, A. Distinct mechanisms regulate hemocyte chemotaxis during development and wound healing in Drosophila melanogaster. J. Cell Biol. 173, 405-416 (2006).
- Babcock, D. T., et al. Circulating blood cells function as a surveillance system for damaged tissue in Drosophila larvae. Proc. Natl. Acad. Sci. U.S.A. 105, 10017-10022 (2008).
- Vlisidou, I., et al. Drosophila embryos as model systems for monitoring bacterial infection in real time. PLoS Pathog. 5, e1000518(2009).
- Foley, E., O'Farrell, P. H. Nitric oxide contributes to induction of innate immune responses to gram-negative bacteria in Drosophila. Genes Dev. 17, 115-125 (2003).
- Costa, A., Jan, E., Sarnow, P., Schneider, D. The Imd pathway is involved in antiviral immune responses in Drosophila. PloS One. 4, e7436(2009).
- Daigle, J. G. Integrated microglial-like neuroinflammatory and hypoxia responses in a Drosophila model for Parkinson's disease. , in preparation Forthcoming.
- Tanner, C. M., Kamel, F., Ross, G. W., Hoppin, J. A., Goldman, S. M., Korell, M., Marras, C., Bhudhikanok, G. S., Kasten, M., et al. Rotenone, Paraquat and Parkinson's Disease. Environ. Health Perspect. 119 (6), 866-8672 (2011).
- Manning-Bog, A. B., McCormack, A. L., Li, J., Uversky, V. N., Fink, A. L., Di Monte, D. A. The herbicide paraquat causes up-regulation and aggregation of alpha- synuclein in mice: paraquat and alpha-synuclein. J. Biol. Chem. 277, 1641-1644 (2002).
- Ossowska, K., Wardas, J., Smialowska, M., Kuter, K., Lenda, T., Wieronska, J. M., Zieba, B., Nowak, P., Dabrowska, J., Bortel, A., et al. A slowly developing dysfunction of dopaminergic nigrostriatal neurons induced by long-term paraquat administration in rats: An animal model of preclinical stages of Parkinson's disease. Eur. J. Neurosci. 22, 1294-1304 (2005).
- McCormack, A. L., et al. Role of oxidative stress in paraquat-induced dopaminergic cell degeneration. J. Neurochem. 93, 1030-1037 (2005).
- Chaudhuri, A., et al. Interaction of genetic and environmental factors in a Drosophila parkinsonism model. J. Neurosci. 27, 2457-2467 (2007).
- Krishnakumar, S., Burton, D., Rasco, J., Chen, X., O'Donnell, J. Functional interactions between GTP cyclohy- drolase I and tyrosine hydroxylase in Drosophila. J. Neurogenet. 14 (1), 1-23 (2000).
- Foxton, R. H., Land, J. M., Heales, S. J. R. Tetrahydro- biopterin availability in Parkinson's and Alzheimer's disease; potential pathogenic mechanisms. Neurochem. Res. 32 (4-5), 751-756 (2007).
- Inamdar, A. A., Chaudhuri, A., O'Donnell, J. The Protective Effect of Minocycline in a Paraquat-Induced Parkinson's Disease Model in Drosophila is Modified in Altered Genetic Backgrounds. Parkinson's Disease. 2012, 938528(2012).
- Kean, L., Cazenave, W., Costes, L., Broderick, K. E., Graham, S., Pollock, V. P., Davies, S. A., Veenstra, J. A., Dow, J. A. Two nitridergic peptides are encoded by the gene capability in Drosophila melanogaster. Am. J. Phys. Reg. Integr. Comp. Phys. 282, R1297-R1307 (2002).
- Williamson, W. R., Hiesinger, P. R. Preparation of Developing and Adult Drosophila Brains and Retinae for Live Imaging. J. Vis. Exp. (37), (2010).
- Desjardins, P., Hansen, J. B., Allen, M. Microvolume Protein Concentration Determination using the NanoDrop 2000c Spectrophotometer. J. Vis. Exp. (33), (2009).
- Desjardins, P., Conklin, D. NanoDrop Microvolume Quantitation of Nucleic Acids. J. Vis. Exp. (45), (2010).
Yeniden basım ve izinler
