Burada, Escherichia coli'deki replikasyon çatallarını durdurmak ve çökertmek için bölgeye özgü, geri dönüşümlü in vivo protein bloğu kullanan bir sistemi tarif ediyoruz. Replikasyon bloğunun kurulması floresan mikroskobu ile değerlendirilir ve replikasyon ara ürünlerini görselleştirmek için nötr-nötr 2 boyutlu agaroz jel elektroforezi kullanılır.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Yöntem makalesi
Bir Siteye Özel çoğaltma Blokaj içinde uyaran
Bu makalede
Özet
Özet
sıkıca bağlı proteinler çeşitli lezyonlar dahil olmak üzere, DNA üzerindeki engeller, ciddi hücre çoğaltma makine ilerlemesini inhibe edebilir. Bir replizom duraklaması çoğaltma çatal yıkılışına yol açan, kromozomdan, ya kısmen ya da bütünüyle onun ayrışma yol açabilir. Bu çöküşün kurtarma hücresine doğru tam kromozomal çoğaltılması ve daha sonra bölmek için bir zorunluluktur. çoğaltma DNA çatal geri yükleme ve izin gerçekleşecek çöküş meydana geldiğinde, bu nedenle, hücre gelişti çeşitli mekanizmalar yüksek sadakat ile tamamlanacak. Daha önce, bakterilerden bu çoğaltma onarım yolları bilinen siteye lokalize olmama dezavantajına sahiptir, UV hasarı, kullanılarak incelenmiştir. Bu yazıda durdurduklarını ve replikasyon çöküşü fo uyarabilir bir siteye özgü protein bloğu oluşturmak için bir Floresan Baskılayıcı Operatör Sistemi (FROS) kullanan bir sistemi açıklamaktadırEscherichia coli RKS. replikasyon durumu, flüoresans mikroskopisi ve DNA replikasyon ara maddeleri kullanarak tek bir canlı hücrelerde görselleştirilebilir PROTOKOLLERİN detay 2 boyutlu agaroz jel elektroforezi ile analiz edilebilir. Replizom bileşenleri (örneğin DnaBts) sıcaklığa duyarlı mutantlar çoğaltma çatal senkron çöküşü uyarılması için sisteme dahil edilebilir. Bundan başka, bu işlemlerde söz konusu rekombinasyon protein ve helikazlar rolleri bu sistem içinde, genetik Knockouts kullanılarak incelenebilir.
Giriş
DNA replikasyonu sırasında, replizom ilerlemesini bozan DNA engellerle karşılaşır. DNA lezyonları ve boşluklar da dahil olmak üzere hasar yanı sıra anormal yapılar 1 geçmeden gelen replizom önleyebilir. Son zamanlarda, DNA bağlanmış proteinler Çatal ilerlemesini 2 çoğaltma engel en yaygın kaynağı olduğu bulunmuştur. Bir nükleoprotein bloğu ile replizom karşılaşmasını izleyen olayların bilgisi önceden bilinen bir yerde canlı bir hücrenin kromozomu böyle bir blok ikna etmek yetersizlik ile sınırlı kalmıştır. In vitro analizi kinetik davranışları anlayışımızı arttırmıştır bir nükleoprotein tıkanması 3, hem de replizom kendisinin 4,5 mekanistik ayrıntıları karşılayan etkin replizom arasında. Çoğaltma tamir mevcut anlayış genelde in vivo 6-8 plazmid DNA kullanılarak zararlı madde olarak UV ile yürütülen ve incelenmiştir Yukarı. Bu genel olarak bu çalışmalardan anlaşıldığı edilebilir bir in vivo nükleoprotein blok karşılaştıktan sonra çoğaltma blok belirgin bir neden dolayı onarım yolları olan moleküler olaylar değişiklikler yine de orada olup, DNA onarımında yer alan proteinleri olabilir iken belirlenecektir.
Burada, bir nükleoprotein blok Floresan Baskılayıcı Operatör Sistemi (FROS) kullanarak kromozomun belirli bir konuma kurulacak sağlayan bir sistem açıklanmaktadır. Biz E. bir yük kullanmaktadır 9. kromozomun içine dahil 240 TETO siteleri bir dizi olmuştur coli. Dizisi içindeki her bir teto Alanı dizi içindeki RecA-aracılı rekombinasyon önleyerek dizinin kararlılığını arttırmak için çevreleyen bir 10 bp rastgele dizisine sahiptir. Bu dizi, ve bunun varyasyonları, orijinal olarak E. anlamak için kullanıldı E. coli kromozom dinamikleri 10,11 ama sonra Preve adapte edildint in vivo çoğaltma 12. Dizi stabil bir şekilde muhafaza edilmesi ve TetR 10,12 bağlı, çoğaltma çatal% 100'e yakın bloke bulunmuştur. 22 Yer replikasyon% 90 engellemek için yeterli olduğu gibi, bu daha kısa dizi in vivo 13 daha az etkili olmasına rağmen, in vitro içindeki lacO dizinin kullanımı, birkaç şekilde bulmuştur. Bir nükleoprotein tıkanma oluşturmak için diziyi uyarlamak için, bastırıcı protein yüksek o zaman bir barikat oluşturmak için dizinin bağlanır optimize koşullar altında aşırı üretilmektedir gerekir. Tet bastırıcısına bir floresan etiketli varyantı kullanıldığında bloke oluşumu, ve bunu takip eden serbest bırakma, floresan mikroskobu kullanılarak izlenebilir. Her hücrede replikasyon durumu tek bir odak noktası dizinin yalnızca bir kopyası hücre içinde mevcut olan ve birden fazla odak aktif replikasyon göstergesi olduğu anlamına gelir görülen odaklarının sayısı ile gösterilir. Bu aktif yenidennükleoprotein blokaj replizom dizi üzerinden devam etmek için yeterli bir operatörün bir site için TetR bağlanma afinitesini azaltan karşılıksız indükleyici ilave edilerek tersine döndüğünde komplikasyondur etkinleştirilir. represör proteini de dizinin hemen birden çok kopyası görselleştirilebilir yeterince yüksek bir afinite ile DNA'ya bağlanabilen.
Nukleoprotein tıkanma olayların daha karmaşık ayrıntıları nötr nötr iki boyutlu agaroz jel elektroforezi ve Güney melezleme 14-16 kullanılarak tespit edilebilir. Bu teknikler nüfusun genelinde DNA yapılarının analizini sağlar. potansiyel etkinlik sırasında biçimlenmiştir ve çoğaltma ara görüntülenebilir, unrepaired kalır. Restriksiyon enzimi ve sonda kullanılan değiştirilmesiyle, ara dizi bölgede değil çoğalma çatala 17,18 geriler, diziye de yukan sadece görselleştirilebilir.regresyon replizom ayrışma sonra gerçekleşir; lider ve geri kalmış doğmakta olan iplikçikler bir dört yollu DNA yapısına (bir Holliday kavşağı) sonuçlanan şablon ipliklerini aynı anda yeniden tavlama olarak birbirlerine şablon teller ve tavlama ayrı.
Bu blok 18 ile karşılaştığında, çoğalma çatala stabil değildir olduğu gösterilmiştir, bu sistemi kullanarak. Buna ek olarak, replizom bileşenleri ısıya duyarlı türevleri daraltılmış sonra çoğaltma çatalı yeniden önlemek için kullanılabilir. bir blok kurulduğunda, streyn replizom senkron devreden ve yeniden kontrollü bir engellenmesini sağlamak için bir non-permisif sıcaklığına kaydırılabilir. Bu sıcaklık kaynaklı devreden belirli bir zamanda çöktü nüfus içindeki çatallar tüm sağlar ve replizom DNA nasıl işlendiğini, çöker ve ne re gereklidir ne olur değerlendirilmesini sağlarDNA replikasyonu işlemini başlatmak.
Burada açıklanan sistemin bir avantajı, nükleoprotein blok tam olarak geri dönüşümlü olduğunu; Bu nedenle, nükleoprotein bloktan kurtarmak için hücrelerinin yeteneği takip edebilmektedir. hücrelere anhydrotetracycline eklenmesi çoğaltma çatal ile devam sağlayan, sıkı bastırıcı bağlanmasını rahatlatacak ve hücre canlılığı yeniden. tıkanma kabartma 5 dakika sonra nötr nötr iki boyutlu, agaroz jel elektroforezi ile görselleştirilmiştir ve 10 dakika içinde mikroskop ile olabilir. Ayrıca, canlılık analizi çoğaltma tıkanıklık kurtarmak ve çoğalırlar devam etmek zorlanma yeteneğini ortaya çıkarabilir.
Burada tarif edilen deney prosedürü kullanılan suşlar genetik arka planı değiştirerek, blokaj bu tip bakım yolları açıklanacaktır olabilir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Protokol
1. FROS ile çoğaltma Engelleme
- Çoğaltma Blokaj uyaran
- Bir E. taze bir gecede kültür sulandırınız OD 600 Nm = seyreltik kompleks ortam içinde 0.01 bir teto dizi ve pKM1 18 taşıyan E. coli suşu (% 0.1 tripton,% 0.05 maya özü,% 0.1 NaCl, 0.17 M KH 2 PO 4, 0.72 MK 2 HPO 4) antibiyotik gerektiğinde seçimi için.
Not: Bu sistemle uyumlu değil gibi seçim için tetrasiklin katmayın. Gerekli örnek başına 10 ml eşdeğer kültür hacmini olun. Örneğin, Şekil 1 'de deney dizaynı kültür hacmi 60 ml'dir. - OD 600 nm = 0.05-0.1 kadar çalkalanarak 30 ° C'de büyütülmüştür. indüklenmemiş kontrol olarak görev yapar ve pKM1 gelen TetR-YFP üretimini sağlamak için kalan kültür,% 0.1 arabinoz ilave bir 10 ml lik bir numuneyi çıkarın. uyarılmamış ve uyarılmış hem de büyümeye devamkültürler. 1 saat sonra, (bakınız bölüm 2) floresan mikroskopi kullanılarak oluşturulan kültür her hücrede tek bir odak noktası olup olmadığını kontrol edin.
- Kaynaklı hücreler (hücre% 70'den fazla, tek bir odak var) bloke teyit ise, OD 600Nm kaydetmek ve 2-D jelleri (Bölüm 3) ile analiz için bir 7.5 ml örnek almak. uyarılmamış kontrol kültüründen eşdeğer bir örnek almak.
- Bir E. taze bir gecede kültür sulandırınız OD 600 Nm = seyreltik kompleks ortam içinde 0.01 bir teto dizi ve pKM1 18 taşıyan E. coli suşu (% 0.1 tripton,% 0.05 maya özü,% 0.1 NaCl, 0.17 M KH 2 PO 4, 0.72 MK 2 HPO 4) antibiyotik gerektiğinde seçimi için.
- Çoğaltma Blokaj Releasing
- Çoğaltma blok serbest bloke hücrelerinin 10 ml'lik bir numune karşılıksız indükleyici anhydrotetracycline (AT), 100 ng ml -1 ekleyin. 10 dakika boyunca 30 ° C'de büyür ve hücre yoğunluğunda (1 mi), mikroskopi analizi (10 ul) ve nötr, nötr 2 boyutlu agaroz jelleri (7.5 mi) için numune almaya devam edin.
- Replizom Çöküşü uyaran
- Hücreler, dnaB TS veya dnaC ts gibi sıcaklığa duyarlı allel içeriyorsa bu deactiva gerektirirtion, 42 ° C'ye kadar bloke hücreleri içeren piston hareket eder. Gerekli zaman noktalarında analiz için numune alın (ör 1 saat inkübe edildikten sonra). Hücreler, 1 saat boyunca 42 ° C'de inkübe sonra, 10 dakika boyunca (Şekil 1 e bakınız) 30 ° C'de hücreleri kaydırır.
Not: Hücreler yeniden analizi için 30 ° C itilebilir.
- Hücreler, dnaB TS veya dnaC ts gibi sıcaklığa duyarlı allel içeriyorsa bu deactiva gerektirirtion, 42 ° C'ye kadar bloke hücreleri içeren piston hareket eder. Gerekli zaman noktalarında analiz için numune alın (ör 1 saat inkübe edildikten sonra). Hücreler, 1 saat boyunca 42 ° C'de inkübe sonra, 10 dakika boyunca (Şekil 1 e bakınız) 30 ° C'de hücreleri kaydırır.
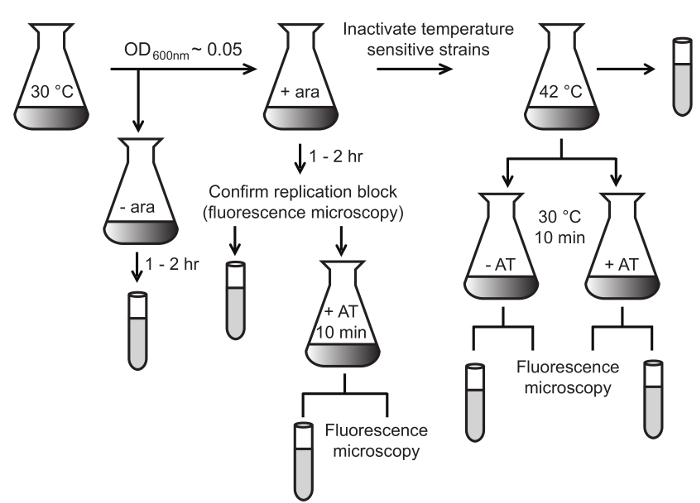
Şekil 1:. FROS Çoğaltma Blok ve Yayın Deneysel Prosedür Bakış E. teto dizilerini taşıyan E. coli suşu 30 ° C'de yetiştirilir. Hücreler 0.05 yukarıda bir OD 600Nm ulaştığınızda, TetR-YFP üretim arabinoz ile indüklenir (ARA,% 0.1). indüklenmemiş hücrelerin bir alt 30 ° C 'de kontrol olarak hareket artmaya devam ediyor. 2 saat (2.1) - ile indüklenen hücre numunesi sonra 1 floresan mikroskobu ile analiz edilir. Çoğaltma iseengellenmesini teyit numuneler test tüpleri (bakınız 3.1) ile gösterilen 2-B jel analizi için ve (isteğe bağlı) canlılık testi için alınır. Çoğaltma blokaj (AT; 0.1 ug / ml) anhydrotetracycline ile temizlenebilir ve hücreler 10 dakika sonra incelendi. Hücreler (örneğin dnaB ts) bir sıcaklığa duyarlı allel taşıyan, bu uygun analiz için 42 ° C'ye kadar bloke hücrelerin kaydırılarak inaktive edilebilir. Bu rakamın büyük halini görmek için lütfen buraya tıklayınız.
2. Floresan Mikroskopi
- bir mikroskop lamı üzerine erimiş agaroz (su içinde% 1), 500 ul pipetleme bir agaroz pedi hazırlanması; Agaroz katılaşır hemen önce lamel kaplaması. kadar gerekli 4 ° C'de ıslak dokularda slayt (ler) saklayın.
- Agaroz katılaşmış sonra, agaroz ped ve pipetle bakteriyel 10 ul lamel kaldırmakpedinin merkezi üzerine kültür gözlem esnasında hücrelerin hareket etmesini önlemek için. örneği (yaklaşık 5 dakika) kuruduktan sonra, lamel değiştirin. kapak kayma üzerine daldırma petrol bir damla koyun ve optik altında slayt yerleştirin.
- 100X büyütmede Faz Mikroskobu kullanılarak Hücreler gözünüzde canlandırın.
- görüntüleme yazılımı içinde Edinme iletişim kutusunda, 100 milisaniye pozlama süresini ayarlayın. Edinme seçerek görüntüyü yakalamak. sahne hareket etmiyor. Edinme iletişim kutusunda, Kamera bağlantılı Dış Shutter için aydınlatma olarak YFP seçin. 1000 msn MARUZ KALMA saatini ayarlayın. sahne ışık kapatın. Edinme seçerek floresan görüntü yakalamak.
Not: Zaman kullanılan ışık kaynağı, mikroskop ve kamera bağlı olarak değişebilir. - faz ve floresan görüntüleri bindirmek için, Renkli Ekran menüsü içinden birleştirin seçin. Renk iletişim kutusunda, birleştirin yeşil bileşen ve bl olarak faz görüntüsü olarak YFP görüntü seçinUE bileşeni. birleştirmek renk üzerine tıklayın. nüfus başarıyla hücrelerin çoğunluğu hücre başına bir odak olup olmadığını kurarak çoğaltma bloke eden olup olmadığını belirlemek.
Not: Görme EYFP üretim farkı tanımlamak için eklenen arabinoz olmadan denetimi bir örnek karşılaştırılması yararlıdır.
- görüntüleme yazılımı içinde Edinme iletişim kutusunda, 100 milisaniye pozlama süresini ayarlayın. Edinme seçerek görüntüyü yakalamak. sahne hareket etmiyor. Edinme iletişim kutusunda, Kamera bağlantılı Dış Shutter için aydınlatma olarak YFP seçin. 1000 msn MARUZ KALMA saatini ayarlayın. sahne ışık kapatın. Edinme seçerek floresan görüntü yakalamak.
3. DNA Ekstraksiyon / Agaroz Fişler
- adım 1.1.3 ve 1.2.1 7.5 ml kültür örnekleri, sodyum azid (% 0.1 son konsantrasyon) eklenir. en az 5 dakika boyunca buz üzerinde inkübe edin.
Not: Sodyum azit son derece zehirlidir. işe başlamadan önce Güvenlik Bilgi Formu'na başvurunuz ve tüm güvenlik önlemlerini okuyup anlayana kadar idare yoktur. - 10 dk pelet hücreleri için hücreler 5000 xg santrifüj. Süpernatant atılır ve Pett IV (PIV), tampon 200 ul pelletini (10 mM Tris: HCl (pH 8.0), 1 M NaCI). Mikrosantrifüj (13, 2 dakika boyunca 000 x g) hücreler pelet. disüpernatant scard. Bu aşamada, -20 ° C 'de peletler ayrıca işlem veya mağazasında.
- 50 ° C'de 50 ul PIV ve yerinde en düşük hücre yoğunluğunda tekrar süspansiyon hücreleri. Nihai hücre yoğunluğu her tüp içinde aynı nedenle diğer tüm numuneler için, PIV hacimleri ayarlayın (50 ul yeniden süspanse örneğin Numune 1 (OD 600Nm = 0.128); Numune 2 54 ul içinde yeniden süspanse (OD 600Nm = 0.138)).
- PIV taze hazırlanmış% 0.8 agaroz çözeltisi eşit hacimde ilave edin (nihai konsantre% 0.4;., Örneğin Örnek 1 ila 50 ul, Örnek 2 54 ul). Numuneler, agaroz ve PIV katılaşmayı önlemek için 50 ° C'nin üzerinde olduğundan emin olun.
- Uygun bir cam su itici veya silikon solüsyonu 40 ul bir mikroskop lamı davranın. kuruyana kadar bir doku ile slayt ovun.
Not: Bu işlem, önceden yapılabilir ve işlenmiş Slaytlar, oda sıcaklığında uzun süreli saklanabilir. - t 20 ul damla yerleştirinO slayt hücre / agaroz süspansiyonu yarım küre olan fişleri üretmek.
Not: (50 ul PIV içinde yeniden süspanse) İlk örnek bir slayt 5 fişleri üretecek. - Fişler katılaşan zaman, bir mikrofüj tüpü içine yavaşça kaydırıp 1 ml hücre lisis tamponu (10 mM Tris-HCI [pH 8], 1 M NaCl, 100 mM etilendiamintetraasetik asit (EDTA),% 0.2 sodyum deoksikolat,% 0.5 ekleme N-loroilsarkosin sodyum tuzu (Sarkosyl), 100 ug ml - 1 lizozim, 50 ug mi 1 - RNaz A). 2 saat boyunca 37 ° C'de inkübe edin.
- Hücre liziz tamponunu çıkarın ve 1 ml EDTA / sarkosil / Proteinaz K (ESP) çözeltisi (0.5 M EDTA,% 1 N-loroilsarkosin sodyum tuzu (Sarkosyl), 1 mg ml - 1 proteinaz K) ilave edilmektedir. bir gecede ya da fişler şeffaf olana kadar 50 ° C'de inkübe edin. ikinci bir gece boyunca inkübasyon gerekli ise, yaklaşık olarak 18 saat sonra, taze tampon ESP çözeltisi değiştirin.
- KaldırESP tampon ve her bir yıkama ile 30 dakika dengeleme sağlayan 12 ml Tris-EDTA (TE) tampon çözeltisi (10 mM Tris-HCI, 1 mM EDTA, pH 8.0) fişler 5 kez yıkayın. 1 ml TE tamponu içinde 4 ° C'de saklayın.
4. Nötr-nötr 2 Boyutlu Jel Elektroforez
- yeni bir mikrofüj tüpüne adım 3.8 arasında bir agaroz fiş aktarın ve sınırlayıcı enzim tamponu (1 x konsantrasyon) 150 ul ilave edin. Kısıtlama enzimi 25-100 birimleri ekleyin (EcoRV örneğin, 60 ünite; () Şekil 3A bakınız). 6-8 saat boyunca 37 ° C 'de özet.
- 4 ° C 'de, yaklaşık 25 x 25 cm'lik bir jel tepsisine 1x Tris / borat / EDTA (TBE) ve% 0.4 agaroz jeli (300 mi) dökün. yaklaşık kuyu tıpanın çapı ile aynı genişlikte yapmak için bir tarak yerleştirin. Jel ayarlandığında, tarak kaldırmak ve oda sıcaklığına jel taşıyın.
- t kuyunun kenarına fiş düz slayt konumlandırma, bir kuyuya sindirilmiş agaroz fişleri birini SlideO DNA jel girecek. her iki yuva içine aynı şekilde tek bir düzensiz yerleştirin.
- pozisyonunda fişleri mühür kuyulara agaroz erimiş% 0.4 Pipet.
- boş oyuk yükleyin 1 kb DNA merdiveni, daha merdiven ve numuneler arasında bir boşluk bırakarak, ve oda sıcaklığında bir gece boyunca 1 x TBE içinde (16 saat, 55 V) jel üzerinde çalıştırıldı.
- 20 dakika için etidyum bromid (0.3 ug ml-1) ihtiva eden bir su banyosu içinde jel leke.
Not: Etidyum bromür güçlü bir mutajen ile bir toksin olarak kabul edilir. işe başlamadan önce Güvenlik Bilgi Formu'na başvurunuz ve tüm güvenlik önlemlerini okuyup anlayana kadar idare yoktur. - Hatta sokağın her iki tarafında aşırı agaroz dahil en aza indirerek, kesme, bir uzun dalga UV transilluminator'de ile DNA görselleştirmek ve düz her kulvar parçasını kesip.
Not: Söz konusu parçacık, 5.5 kb Örneğin, approximat 5 kb DNA fragmanları dahil etmek için bir 7.5 cm fragmanı kesipely 12 kb (Şekil 3A bakınız). - DNA göçünü yönüne 90 ° 'de, bir jel tepsisine eksize jel şeridi yerleştirin.
Not: 3 jel fragmanları İki sıra 25 x 25 cm 2 jel tepsisine sığabilir. Jel hatlarının ilk satırı 12,5 cm tepsi, ikinci sıra üst kısmında. - İkinci boyut jel (0.3 ug ml -1 etidyum bromür ile 1x TBE içinde% 0.9) için agaroz 300 ml hazırlayın. Agaroz, 50 ° C'ye kadar soğutulur, konumlarını katılaşmaya jel dilimlerinin yaklaşık erimiş agaroz pipetle. Jel dilimleri ile en az seviyede derinliğe kadar tepsiye kalan agaroz dökün.
- Jel bir kez katılaştınldıktan sonra DNA, yaklaşık 10 cm göç kadar, 220 V'de 0.3 ug ml -1 etidyum bromür ihtiva eden 1 x TBE içinde 4 ° C'de Electrophorese.
4 saat 5.5 kb fragmanı için yeterli ama daha küçük bir fragman daha az zaman gerekir: unutmayın. - Genomik DNA, mevcut u bloklar tüketim(Şekil 3C) görünmez DNA'yı içerecek şekilde üstünde jel içeren, bir metal cetvel kenarını şarkı.
5. Southern hibridizasyonu
- Çözelti Hazırlama
- Depürinasyon tamponu (0.125 M HCl çözeltisi) hazırlayın.
Not: Bu tampon yeniden kullanılabilir ve en fazla 1 ay boyunca oda sıcaklığında stabil olan edilebilir. - Denatürasyon tamponu (1.5 M NaCl, 0.5 M NaOH) hazırlayın.
Not: Denatürasyon tamponu kez tekrar edildi ve oda sıcaklığında 3 aya kadar stabildir edilebilir. - Nötralizasyon tamponu (1.5 M NaCl, 0.5 M Tris) hazırlayın. HCI ile pH 7.5'e ayarlayın.
Not: Nötralizasyon tamponu kez tekrar edildi ve oda sıcaklığında 3 aya kadar stabildir edilebilir. - adım 5.2.4 ve 5.2.6 kullanılmak için - 10x Tuzlu sodyum sitrat (SSC), tampon (8, 0.15 M tri-sodyum sitrat, 1.5 M NaCl, pH 7) hazırlayın. Bu tampon, (aşama 5.2.9 kullanım için), bir 2X SSC stok yapmak.
Not: 10x SSC ve 2x SSC3 ay boyunca oda sıcaklığında stabil yeniden. - Modifiye Church ve Gilbert, hibridizasyon tamponu 19 hazırlama (0.5 M fosfat tampon maddesi [pH 7.2],% 7 (ağırlık / hacim) sodyum dodesil sülfat (SDS), 10 mM EDTA, W). kullanmak için önce iyice erimesi için 65 ° C'de bırakın.
- Depürinasyon tamponu (0.125 M HCl çözeltisi) hazırlayın.
- transfer
- bir rocker ya da orbital çalkalayıcıda oda sıcaklığında 10 dakika boyunca depürinasyon çözeltisi içinde kesilmiş jel blokları durulayın. agaroz blokları zarar görmesini önlemek için düşük ajitasyon hızı tutun.
- 30 dakika denatürasyon tamponu ile kısaca damıtılmış su ile ve daha sonra jel blokları durulayın. damıtılmış su içinde kısa bir süre tekrar durulama ve daha sonra, oda sıcaklığında yumuşak çalkalama ile 30 dakika süreyle nötralizasyon tampon jel blokları inkübe edin.
- jel (lar) tam boyutuna bir naylon zar kesilir. Gelecekteki adımlarla membran yönlendirmede yardımcı olmak için sağ üst köşede bir nick kesin.
Not: İki jel blokları (6 adet) bir zar üzerinde görülebilir. - Bir tr içine yeterince 10x SSC dökünBugün o gecede kurumasına olmaz ki. yaklaşık 5 cm tampon seviyesinden bir platform oluşturmak. platformda 10x SSC ve yeri ile 3MM kromatografi kağıdı 3 yaprak doyurabilecek. membran jel sığacak kadar yeterince uzun süre her iki uçta da tampon dalmış ve geniş bir şekilde kromatografi kağıdı kesin.
- doyurulmuş kromatografi kağıdı üzerine jel (ler) yerleştirin. by-pass transferi sırasında jel tampon önlemek için plastik örtü ile jel Çerçeve. Dikkatle jel (ler) üstünde kesme zarı yatıyordu. nazikçe zarından bir şişe veya serolojik pipet haddeleme zar ve jel arasındaki hava kabarcıklarını çıkarın.
- membranın aynı boyutta 3MM kromatografi kağıdı üç yaprak kesin. 10x SSC ile kromatografi kağıdı yaprak Doymuş ve membran üstüne yerleştirin. oluşmuş herhangi bir hava kabarcıklarını çıkarın.
- Yığın kağıt katı bir destek tarafından takip kurutma kağıdı üstünde en az 5 cm yüksekliğinde havlular (beğenme23 x 16 cm membran için 1 kg ximate ağırlığı). Transfer gece boyunca ilerlemeye izin verin.
- Zara DNA çapraz bağlanması için UV 1.200 J / m 2 membran (DNA yüzü yukarı) Açığa. Bu adımın öncesinde durulama yapmayın.
- leke görüntülerde yüksek arka plan önlemek için 2x SSC iyice membran durulayın. 4 ° C'de plastik wrap ve mağaza sarın, melezleme için hemen leke kullanın (5.3) veya oda sıcaklığında kurutun.
- melezleme
- Onceden hibridizasyon fırın ve 55 ° C şişeler.
- 100 ug ml ilave -1 sığır serum albümini (BSA) ve 10 ug mi -1 spesifik olmayan DNA (örneğin somon sperm DNA'sı) önceden ısıtılmış melezleme tamponu.
- Hibridizasyon tamponu da kaplaması için zar sarıldığı esnada yukarı bakacak şekilde zarın, DNA'ya bağlı yüzü örgü naylon Benzer boyutta kare üzerine leke yerleştirin. Uzun kenarı boyunca leke yuvarlayın. Kaymakleke / Bir melezleşme şişe içinde örgü. Leke göz önüne sermek için önceden ısıtılmış melezleme tamponu uygun miktarda (örneğin, bir 23 x 16 cm2 zar 30 mi).
- 1 saat süre ile, şişe döndürme önceden ısıtılmış bir fırın içinde inkübe edin.
- 13 ul lik bir hacim oluşturmak için Klenow fragmanı ve H2O için tampon, ilgilenilen bölgeye saflaştınlmış PCR ürünü, homolog 50 ng rastgele heksamer primerlerinin 150 ng karıştırılarak prob hazırlayın. 3 dakika sonra buz üzerine hemen yerleştirin kaynatın. 1 mM dCTP / dGTP / dTTP karışımı 1 ul, alfa fosfat- (α 32P-dATP) hakkında Klenow fragmanı (5U) ve 50 uCi deoksiadenozin 5'-trifosfat radyoetiketlenmiş 1 ul ekle.
- 1 saat süre ile, oda sıcaklığında inkübe edin. mM dNTP karışımı 1 1 ul ve Klenow fragmanının 1 ul ekle. Oda sıcaklığında 20 dakika kuluçkalayın.
- 5 dakika boyunca sonda kaynatın ve melezleme tüpleri hemen ekleyin. döndürme ile, 55 ° C'de gece boyunca hibridize olur.
- pr Durusuzardan obe.
Not: prob kez yeniden yapabiliyor. - Önceden ısıtılmış, düşük sıkılık yıkama tamponu içinde kısa bir süre membran yıkayın (2X SSC,% 0.1 (a / h) SDS). Taze düşük sıkılık yıkama tamponu ilave edin ve rotasyon ile 55 ° C 'de 5 dakika süreyle inkübe edilir. Tekrar et.
- Orta sıkılık yıkama tamponu içinde iki kez yıkayın (1 x SSC,% 0.1 (a / h) SDS) dönüşü ile 55 ° C'de 10 dakika karıştırıldı.
- Yüksek sıkılık yıkama tamponu içinde iki kez yıkayın (0,1 x SSC,% 0.1 (a / h) SDS) dönüşü ile 55 ° C de 5 dakika karıştırıldı.
- fazla sıvıyı çıkarmak için doku ile membran ve dab çıkarın. Önceden boşluklu depolama fosfor ekrana sahip poz kaset plastik wrap ve yerde hiçbir kalan nem yoktur sağlanması plastik wrap sarın. kaseti kapatın ve fosforlu bir görüntü cihazını kullanarak görselleştirme için en az 2 saat boyunca maruz kalmaktadır.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Sonuçlar
FROS canlı hücreler 12,18 görselleştirilebilir çoğaltma ara maddeleri sağlayan uyarılabilir, sahaya özel nükleoprotein bloktur. Hücreler numune için genel bir deney tasarımı, Şekil 1 'de gösterilmiştir. Genetik temelinde numune alma ve varyasyonlar ve zamanlaması, böyle bir bloğun onarım çalışmaları için çok yönlü bir sistem tercih. Şematik bir önceki 18 kullanılan bu tür dnaB TS ve TS dnaC olarak, sıcaklığa duyarlı mutantlar, ...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Kromozom duplikasyonu sırasında, replikasyon mekanizması ilerlemesini engelleyen çeşitli engellerle karşılaşacaktır. Tek orijinli kromozomun tamamının kopyalanmasını sağlamak için, bakteriler DNA'nın onarımı için çok sayıda yola sahiptir ve bu da daha sonra replizomun yeniden yüklenmesini sağlar20,21. Lezyonlar, tek sarmallı kırılmalar, çift sarmallı kırılmalar ve DNA'ya sıkıca bağlı proteinlerin her biri, bu yollarda önemli bir örtüşme olması muhtemel olsa da, özel bir yol kullanılarak ele alınabilir. Canlı h...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Yazarlar, rekabet eden hiçbir finansal çıkarları olmadığını beyan ederler.
Teşekkürler
Bu çalışma Avustralya Araştırma Konseyi [DP11010246] tarafından desteklenmiştir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Tripton | Sigma-Aldrich | 16922 | Büyüme ortamı bileşeni |
| Sodyum Klorür | VWR | 27810.364 | Büyüme ortamı bileşeni |
| Maya özütü | Sigma-Aldrich | 92144 | Büyüme ortamı bileşeni |
| Potasyum fosfat monobazik | Sigma-Aldrich | P9791 | Büyüme ortamı bileşeni; Potasyum tampon bileşeni |
| Potasyum fosfat dibazik | Sigma-Aldrich | P3786 | Büyüme ortamı bileşeni; Potasyum tampon bileşeni |
| L-Arabinoz | Sigma-Aldrich | A3256 | TetR-YFP üretiminin indüksiyonu için |
| Anhidrotetrasiklin hidroklorür | Sigma-Aldrich | 37919 | Replikasyon bloackage'ının serbest bırakılması |
| Axioskop 2 Floresan mikroskobu | Zeiss | 452310 | Hücrelerin görselleştirilmesi |
| eYFP filtre seti | Chroma Technology | 41028 | YFP |
| CCD kamera | Hamamatsu | Orca-AG'nin | MetaMorph hücrelerinin görselleştirilmesi |
| Yazılım (Moleküler Cihazlar) | SDR Scientific | 31282 | Sürüm 7.8.0.0 Bu makalenin hazırlanmasında kullanılan |
| Agarose | Bioline | BIO-41025 | Agaroz tapaları ve jel elektroforezi için |
| Orijinal Cam Su İtici (Rain-X) | Autobarn | DIO1470 | Agaroz tapa üretimi için |
| TRIS | VWR | VWRC103157P | TE, TBE tampon bileşeni |
| Etilen diamintetraasetik asit | Ajax Finechem | AJA180 | 0.5 M EDTA disodyum tuzu çözeltisi, NaOH ile pH 8.0'a ayarlanmıştır. |
| Sodyum azid | Sigma-Aldrich | S2002 | Bakteriyostatik ajan |
| Hidroklorik asit | Sigma-Aldrich | 258148 | TE tampon bileşeni |
| Sodyum deoksikolat | Sigma-Aldrich | D6750 | Hücre lizis tampon bileşeni |
| N-Lauroylsarcosine sodyum tuzu (Sarkosyl) | Sigma-Aldrich | L5125 | Hücre lizisi ve ESP tampon bileşeni |
| Rnase A | Sigma-Aldrich | R6513 | Hücre lizis tampon bileşeni |
| Lizozim | Amresco | 6300 | Hücre lizis tampon bileşeni |
| Proteinaz K | Amresco | AM0706 | ESP tampon bileşeni |
| Alt Hücre Modeli 192 Hücre | BioRad | 1704507 | Elektroforez sistemi |
| UV transilluminator 2000 | BioRad | 1708110 | DNA'nın |
| GörselleştirilmesiEtidyum Bromür | BioRad | 1610433 | DNA'nın Görselleştirilmesi |
| Borik asit | VWR | PROL20185.360 | TBE bileşeni |
| Hybond-XL naylon memrbane | Amersham | RPN203S | Zeta-Probe Memrbane (BioRad 1620159) de kullanılabilir |
| 3MM Whatman kromatografi kağıdı | GE Healthcare Yaşam Bilimleri | 3030690 | Güney lekeleme |
| HL-2000 Hybrilinker | UVP | 95-0031-01/02 | DNA'nın çapraz bağlanması ve hibridizasyon |
| Somon sperminden deoksiribonükleik asit | Sigma-Aldrich | 31149 | Hibridizasyon tampon bileşeni |
| Sodyum hidroksit | Sigma-Aldrich | S5881 | Denatürasyon tamponu bileşeni |
| Trisodyum sitrat dihidrat | VWR | PROL27833.363 | Transfer tamponu |
| Sodyum dodesil sülfat (SDS) | Amresco | 227 | Yıkama tamponu bileşeni |
| Sığır serum albümini | Sigma-Aldrich | A7906 | Hibridizasyon tamponu bileşeni |
| Rastgele Heksamer Primerleri | Bioline | BIO-38028 | |
| Klenow parçası | New England BioLabs | M0212L | |
| dNTP Seti | Bioline | BIO-39025 | |
| Adenozin 5'-trifosfat-< sup>32P-ATP | PerkinElmer | BLU502A | |
| Depolama Fosfor Ekran | GE Sağlık Yaşam Bilimleri | GEHE28-9564-76 | BAS-IP MS 3543 E çok amaçlı standart 35 cm x 43 cm ekran |
| Typhoon FLA 7000 | GE Sağlık Yaşam Bilimleri | 28-9558-09 | şişesinin görselleştirilmesi |
| UVP | 07-0194-02 | 35 mm x 300 mm |
Kaynaklar
- Mirkin, E. V., Mirkin, S. M. Replication fork stalling at natural impediments. Microbiol Mol Biol Rev. 71 (1), 13-35 (2007).
- Gupta, M. K., et al. Protein-DNA complexes are the primary sources of replication fork pausing in Escherichia coli. Proc Natl Acad Sci U S A. 110 (18), 7252-7257 (2013).
- McGlynn, P., Guy, C. P. Replication forks blocked by protein-DNA complexes have limited stability in vitro. J Mol Biol. 381 (2), 249-255 (2008).
- Tanner, N. A., et al. Single-molecule studies of fork dynamics in Escherichia coli DNA replication. Nat Struct Mol Biol. 15 (2), 170-176 (2008).
- Hamdan, S. M., Loparo, J. J., Takahashi, M., Richardson, C. C., van Oijen, A. M. Dynamics of DNA replication loops reveal temporal control of lagging-strand synthesis. Nature. 457 (7227), 336-339 (2009).
- Rudolph, C. J., Upton, A. L., Lloyd, R. G. Replication fork stalling and cell cycle arrest in UV-irradiated Escherichia coli. Genes Dev. 21 (6), 668-681 (2007).
- Jeiranian, H. A., Courcelle, C. T., Courcelle, J. Inefficient replication reduces RecA-mediated repair of UV-damaged plasmids introduced into competent Escherichia coli. Plasmid. 68 (2), 113-124 (2012).
- Le Masson, M., Baharoglu, Z., Michel, B. ruvA and ruvB mutants specifically impaired for replication fork reversal. Mol Microbiol. 70 (2), 537-548 (2008).
- Wang, X., Liu, X., Possoz, C., Sherratt, D. J. The two Escherichia coli chromosome arms locate to separate cell halves. Genes Dev. 20 (13), 1727-1731 (2006).
- Lau, I. F., et al. Spatial and temporal organization of replicating Escherichia coli chromosomes. Mol Microbiol. 49 (3), 731-743 (2003).
- Gordon, G. S., et al. Chromosome and low copy plasmid segregation in E. coli: visual evidence for distinct mechanisms. Cell. 90 (6), 1113-1121 (1997).
- Possoz, C., Filipe, S. R., Grainge, I., Sherratt, D. J. Tracking of controlled Escherichia coli replication fork stalling and restart at repressor-bound DNA in vivo. EMBO J. 25 (11), 2596-2604 (2006).
- Payne, B. T., et al. Replication fork blockage by transcription factor-DNA complexes in Escherichia coli. Nucleic Acids Res. 34 (18), 5194-5202 (2006).
- Brewer, B. J., Fangman, W. L. The localization of replication origins on ARS plasmids in S. cerevisiae. Cell. 51 (3), 463-471 (1987).
- Jeiranian, H. A., Schalow, B. J., Courcelle, J. Visualization of UV-induced replication intermediates in E. coli using two-dimensional agarose-gel analysis. J Vis Exp. (46), (2010).
- Southern, E. M. Detection of specific sequences among DNA fragments separated by gel electrophoresis. J Mol Biol. 98 (3), 503-517 (1975).
- Courcelle, J., Donaldson, J. R., Chow, K. H., Courcelle, C. T. DNA damage-induced replication fork regression and processing in Escherichia coli. Science. 299 (5609), 1064-1067 (2003).
- Mettrick, K. A., Grainge, I. Stability of blocked replication forks in vivo. Nucleic Acids Res. , (2015).
- Church, G. M., Gilbert, W. Genomic sequencing. Proc Natl Acad Sci U S A. 81 (7), 1991-1995 (1984).
- Michel, B., Grompone, G., Flores, M. J., Bidnenko, V. Multiple pathways process stalled replication forks. Proc Natl Acad Sci U S A. 101 (35), 12783-12788 (2004).
- Michel, B., Boubakri, H., Baharoglu, Z., LeMasson, M., Lestini, R. Recombination proteins and rescue of arrested replication forks. DNA Repair (Amst). 6 (7), 967-980 (2007).
- Carl, P. L. Escherichia coli mutants with temperature-sensitive synthesis of DNA. Mol Gen Genet. 109 (2), 107-122 (1970).
- Nawotka, K. A., Huberman, J. A. Two-dimensional gel electrophoretic method for mapping DNA replicons. Mol Cell Biol. 8 (4), 1408-1413 (1988).
- Cole, R. S., Levitan, D., Sinden, R. R. Removal of psoralen interstrand cross-links from DNA of Escherichia coli: mechanism and genetic control. J Mol Biol. 103 (1), 39-59 (1976).
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Yeniden basım ve izinler
