Detaylar, Toxoplasma gondii'de bir ilaca direnç genini tanımlamak için bütün genom dizisi tabanlı bir genetik harita ile QTL haritalamasının nasıl kullanılacağı ve bunun, bir genomik hedefi verimli bir şekilde düzenleyen CRISPR / Cas9 sistemi ile nasıl doğrulanabileceği üzerine sunulmaktadır; bu durumda Ilaç direnci geni.
Yöntem makalesi
QTL Haritalama ve CRISPR / Cas9 Düzenlemesi, bir İlaç Direnç Geninin Belirlenmesi için
Bu makalede
Özet
Özet
Bilimsel bilgi, özünde mevcut teknolojilere ve yöntemlere bağlıdır. Bu makale, Apicomplexan parazit Toxoplasma gondii'de bir ilaç direnci geninin tanımlanması ve doğrulanmasına izin veren iki yöntem, bir Whole Genome Sequence (WGS) tabanlı genetik harita kullanan Nicel Trait Locus (QTL) haritalama yöntemi ve yöntem Kümelenmiş Regularly Arası Kısa Palindromik Tekrarlar (CRISPR) / Cas9 tabanlı gen düzenleme. QTL haritalama yaklaşımı, bir genomik bölge (ler) ve bir fenotip arasında bir korelasyon olup olmadığını test etmeyi sağlar. Bir QTL taramasını çalıştırmak için iki veri seti, bir rekombinant çaprazın soyuna dayalı bir genetik harita ve bu çaprazın her bir nesli içinde değerlendirilen nicelenebilir bir fenotip gerekir. Bu veri kümeleri daha sonra, fenotip ile ilişkili önemli yerleri tanımlamak için bir QTL taraması üreten R / qtl yazılımı ile uyumlu olacak şekilde biçimlendirilir. Bu arama işlemini büyük ölçüde daraltabilirse deOlası adayları indekslemek için QTL'ler nedensel genin tanımlanması gereken bir takım genleri içeren bölgelere yayılır. Soyun WGS'sine sahip olmak, gen düzeyinde nedensel ilaç direnci mutasyonunu tanımlamak için kritik önem taşıyordu. Tanımlandıktan sonra, aday mutasyon uyuşturucuya duyarlı parazitlerin genetik manipülasyonu ile doğrulanabilir. Genetik olarak T. gondii'yi modifiye etmek için en kolay ve etkili yöntem CRISPR / Cas9 sistemidir. Bu sistem, hem tek bir plasmidde hem de genomik hedefi tamamlayıcı 20 bp dizisini içeren tek bir kılavuz RNA (gRNA) ve hedefe bir çift sarmal DNA kopması (DSB) üreten Cas9 endonükleazı kodlayan sadece 2 bileşenden oluşur; Onarımı, kırılma bölgesi çevresindeki dizilerin eklenmesine veya silinmesine izin verir. Bu makale sinefungin direncinden sorumlu geni doğrulamak ve transgenik parazitler oluşturmak için CRISPR / Cas9 tabanlı genom düzenleme araçlarını kullanmak için ayrıntılı protokoller sağlar.
Giriş
Ev sahibi aralığı, bir parazit prevalansının kapsamını belirler. Bazı parazitlerin buluntularını sınırlayan çok spesifik ev sahibi gereksinimleri vardır, diğerleri genelcilerdir. Böyle bir genelci Toxoplasma gondii ( T. gondii) 'dir . Bu parazit, tüm memelilere ve birçok kuşa bulaşabildiği için dünya çapında bulunur. İnsanlar da duyarlıdır ve tahminen küresel nüfusun yaklaşık 1 / 3'ünün enfekte olduğu tahmin edilmektedir. Neyse ki, sağlam bir bağışıklık tepkisi normalde parazitin büyümesini kontrol eder, ancak bağışıklık sisteminin tehlikeye atıldığı durumlarda parazite kontrol edilemeyecek şekilde büyür ve genellikle ensefalik hastalıklara neden olabilir. Ayrıca, bu parazit, önceden enfekte olmamış kadınlara, parazit yayılımını hızla sınırlamak için bağışıklık sisteminden yoksun oldukları için, enfekte olmuşlarsa, doğumsal hastalıklara neden olabilir. Buna ek olarak, görme kaybına neden olabilecek oküler toksoplazmoz yükü vardır 1 . Bu reaso içinNs T. gondii , çalışma odağı haline geldi ve çalışması için geliştirilen birçok moleküler yöntemden dolayı Apicomplexan parazitleri için bir model oluşturdu. Burada tartışılacak iki yöntem Quantitative Trait Locus (QTL) haritalama ve Kümelenmiş Düzenli Aralıklı Kısa Palindromik Tekrarlar (CRISPR) / Cas9 gen editörüdür. QTL haritalama ve CRISPR / Cas9 düzenleme, sırasıyla, T. gondii virulans genlerini belirlemek ve / veya karakterize etmek için önceki çalışmalarda kullanılan ileri ve geri genetik yaklaşımlardır. Burada, bu yöntemler bir sinüs fınnın direnci (SNF r ) geni, TgME49_290860 ve onun ortologları ( SNR1 olarak açıklanmıştır) 2'nin işlevini tanımlamak ve doğrulamak için birleştirilmiştir.
T. gondii çok çeşitli ara konaklara bulaşmasına rağmen, yaşam döngüsünü tamamlamak için zararlıların bağırsak epitel hücrelerini geçmesi ve bulaştırması gerekir. Kediler, parazitin barındırdığı kesin ev sahipliği yaparlar.Ekspresyon aşamaları üretilir ve mayozla genetik rekombinasyon oluşur. Bir QTL çalışması yapmak için bir genetik çapraz oluşturmalı ve Toksoplazma durumunda bu, fenotipik bir özellik olan ebeveyn lekelerinde farklı olan iki farklı parazit türü geçirerek, bir kedi vasıtasıyla rekombinant nesli üretmektir 3 . Kedilere beslenmeden önce, ebeveyn suşları, dölün çift ilaç seçimi ile rekombinantların daha verimli tanımlanabilmesini sağlamak için ayrı ilaçlara dirençlidir. Bu amaçla T. gondii'de üç ilaç kullanılmıştır; Direnç geni 5 olduğu ürasil fosforibosil transferaz ( FUDR ), direnç geni 6 olan Adenosin Kinaz ( AK ) ve sinefungin (SNF) olan adenozin arabinosid (ARA) 7 dir . Birkaç genetik haç varT. gondii için yaratıldı fakat sadece ME49-FUDR r X VAND-SNF r çaprazının 24 nesli, bütün genom sıralama (WGS) 8 kullanılarak genotiplendi. Bu, VAND ebeveyni, ilaca duyarlı VAND (VAND-SNFs) suşunun kimyasal mutajeneziyle sinefungine dirençli hale getirildiğinde, bu çapraz kullanılarak SNF direnç geninin haritalanması ve tanımlanması imkânını açtı ve VAND referans genomu, VAND- SNF s soyundan ötürü, soyu soyunun sinefungini dirençli hale getiren kalıtsal ebeveyn VAND-SNF r mutasyonu da dahil olmak üzere, soy WGS ve VAND-SNF referans genomu arasındaki tüm polimorfizmlerin tanımlanmasına izin verilir.
SNF r soyındaki nedensel tek nükleotid polimorfizmini (SNP) tanımlamak için, verileri analiz etmek için çeşitli hesaplama tabanlı açık kaynak kaynakları kullanılabilir. ME49-genetik harita oluşturmak için,FUDR r X VAND-SNF r Çapraz REDHORSE yazılım paketi 9 , genetik geçişlerin genomik konumlarını doğru bir şekilde saptamak için anne ve babanın WGS hizalamalarını kullanmaktadır. Bu haritalama bilgisi daha sonra, Q istatistik programlama yazılımındaki 'qtl' paketi 10 ile uyumlu bir veri kümesi biçimlendirmek için fenotipik verilerle (yavrudaki SNF r ) birleştirilebilir ve burada QTL taraması ile ilişkili önemli lokusları ortaya çıkarabilir fenotip. QTL lokusunda yer alan nedensel SNP'yi tanımlamak için, neslin WGS okumaları, SNP'lerin VarScan mpileup2snp varyant arayan programı 12 kullanılarak çağrılabilir Bowtie 2 uyum programı 11'i kullanarak sinüs fungus hassas VAND genomuna ayrı ayrı hizalanabilir. Bu SNP'leri kullanarak, QTL lokusundan sonra SNF r'de var olan polimorfizmler taranabilir ancak taranamazSNF'nin soyunda. Bir genin kodlama bölgesinde tanımlanan nedensel SNP ile, SNF s geninin genetik modifikasyonu, ilaç direnci fonksiyonunu doğrulamak için bir SNF s soyunda gerçekleştirilebilir.
CRISPR / Cas9 genom düzenleme sistemi kısa süre önce Toxoplasma 13'te kuruldu ve bu parazitin karmaşık biyolojisinin araştırılması, özellikle laboratuar dışı uyarılmış suşlardaki genetik çalışmalar için önemli araçlar eklendi. WT Toxoplasma hücrelerinde yüksek derecede aktif Homolog Olmayan Sona Katlanma (NHEJ) aktivitesi nedeniyle, hedeflenen genom modifikasyonunun gerçekleştirilmesi zordur çünkü eksojen olarak girilen DNA son derece yüksek frekansta 14 genoma rasgele entegre edilmiştir. Lokusa spesifik modifikasyonun başarı oranını arttırmak için, homolog rekombinasyonun verimliliğini arttırmak ve / veyaE NHEJ etkinliği 15 , 16 . Bu yaklaşımlardan bir tanesi CRISPR / Cas9 sistemi. Diğer yöntemlerle karşılaştırıldığında, CRISPR / Cas9 sistemi, bölgeye özgü değişiklikleri uygulamada etkin ve tasarım için kolay 13 , 17 , 18 . Buna ek olarak, parazite 13 , 19 ekstra bir değişiklik yapmadan herhangi bir Toxoplasma suşunda kullanılabilir.
CRISPR / Cas9 sistemi, 20 , 21 ve 22 fajları gibi mobil genetik elementlerin istilasını savunmak için kullanan Streptococcus pyogenes'in uyarlanabilir bağışıklık sisteminden kaynaklanmaktadır. Bu sistem, RNA-kılavuzlu DNA endonukleaz enzimi Cas9'u, hedefe çift sarmallı DNA kopması (DSB) sokmak için kullanır; bu, daha sonra repa olurHata endeksli NHEJ tarafından kısa indel mutasyonları vasıtasıyla hedef genlerin inaktive edilmesi veya hedef lokusunu tam olarak tasarlanan 23,24 ile değiştirmek için homolog yönlendirmeli rekombinasyon yoluyla tahliye edilir. Hedef spesifıklık, hedef DNA 22'ye % 100 homologluk gösteren ayrı ayrı tasarlanan 20 nt diziyi içeren tek kılavuz RNA (gRNA) adlı küçük bir RNA molekülü tarafından belirlenir. GRNA molekülü ayrıca Cas9 tarafından tanımlanan, nükleazı hedef bölgeye yönlendiren ve Protospacer Bitişik Motifi (PAM, sıra 'NGG') olan 25 , 26 içeren imzalar içerir. Bu nedenle, gRNA molekülü ve PAM dizisi birlikte çalışarak genomda Cas9 bölünme yerini belirler. Biri, bölünme için farklı siteleri hedeflemek için kolayca gRNA dizisini değiştirebilir.
CRISPR / Cas9 sistemi ilk kez Toxop'da geliştirildiğindeLazanya, Cas9 nükleazını ve gRNA molekülünü ifade eden tek bir plasmid, hedefleme bölgesinde 13 , 17 DSB'yi tanıtmak için kullanıldı. CRISPR / Cas9 sistemi, sadece homolog rekombinasyonla değil aynı zamanda ekzojen DNA 13'ün homolog olmayan entegrasyonu ile alana spesifik genom modifikasyonunun verimliliğini büyük ölçüde arttırdığı gösterilmiştir 13 . NHEJ aktivitesi içeren vahşi türlerde bunu yapar. Bu nedenle, bu sistem esasen etkin genom düzenlemesi için herhangi bir Toxoplasma suşunda kullanılabilir. Tipik bir deneyde, hedefe spesifik CRISPR plazmiti ve hedefi değiştirmek için kullanılan DNA parçası, parazitlere birlikte transfekte edilir. Hedefi modifiye etmek için kullanılan DNA parçası, hedef lokus için homolog diziler içeriyorsa, homolog rekombinasyon, hedefin hassas şekilde değiştirilmesine izin vermek için CRISPR / Cas9 tarafından tanıtılan DSB'yi onarmak için kullanılabilir. Öte yandan, eğer intRoduced DNA fragmanı homolog sekans içermez, yine de CRISPR / Cas9 hedefleme sitesinde entegre edilebilir. Sonuncusu genellikle seçilebilir işaretlerin eklenmesi veya negatif seçim 13'e izin veren lokuslarda mutantların tamamlanması ile genlerin bozulması için kullanılır. Burada, SNR1 lokusu, CRISPR / Cas9'un gen parçalanması ve transjenik parazitlerin üretimi için nasıl kullanılabileceğini göstermek için bir örnek oluşturmaktadır.
Protokol
1. ME49-FUDR r x VAND-SNF r'nin dölünde SNF r'yi değerlendirin. Çapraz
NOT: T. gondii zorunlu bir hücreiçi parazittir ve taşiozit safhası doku kültüründe kolayca büyür.
- T. gondii parazitini büyütmek için, bunları 37 ° 'de% 10 Fetal Sığır Serumu (FBS) (D10 ortamı) ile takviye edilmiş Dulbecco Modifiye Kartal Ortamı (DMEM) ortamı olan T25 şişelerine ekilen konfluent İnsana Konuşma Fibroblastı (HFF) tek katmanlı kültürde muhafaza edin C ve% 5 C02.
NOT: Ek Dosya 1'deki Protokol 1.1 Not'a bakınız. - Bağımsız nesiller klonları sinefungin direnci için test etmek için, her bir klonu 2-3 gün süreyle bir T25 HFF kültür şişesinde yüksek parazit yoğunluğa yükseltin, böylece parazitlerin çoğunluğu konukçuları hücrelere bulaştırmaya başlar.
- Tek katmanı bir hücre sıyırıcı ile kazıyın ve parazit çözeltisini 10 mL şırınga / 22 G künt iğne ile 2-3x t geçirebilirsinizO konakçı hücreleri parçalayıp parazitleri serbest bırakın. Solüsyon, çoklu iğne pasajları için şırıngaya geri çekilebilir.
- HFF hücrelerini ve hücresel pislikleri temizlemek için gözenek boyutu 3 μm olan bir zardan yeni bir konik tüpe parazit solüsyonu filtre edin.
- Bir hemositometre üzerindeki parazitleri sayın ve mL başına parazit sayısını belirleyin.
- Bir pipet kullanan 2.5 x 10⁵ parazit, 0.3 uM'lik bir konsantrasyonda sinefungin ilacın D10 ortamı içeren yeni bir T25 HFF kültür şişesine aktarın.
- Parazitleri 7-10 gün boyunca 37 ° C'de ve% 5 CO2'de büyütün.
- Sinefungin ilacındaki büyüme fenotipi için yavruyu puanlayın. Tek fazlı ters fazlı kontrast mikroskop altında gözlemleyin ve hiçbir büyüme için 0 puanlayın (sinefungin duyarlı), büyüme ve tek tabakalı liziz için puan 1 (sinefungine dirençli).
NOT: Bkz. Ek Dosya 1'deki Protokol 1.8 Not.
2.RUna QFT SNF r Taraması R / qtl'deki fenotip
NOT: Ek Dosya 1'deki Protokol 2 Notuna bakınız.
- R programlama dili yazılımını yerel bir bilgisayara yükleyin. Bakın 27 .
- R çalıştırın ve 'qtl' paketini yükleyin. Ya bunu R GUI arayüzü 'Paket-> Paketleri yükleyin' seçeneklerinden yapın veya aşağıdaki komutu R komut satırından çalıştırın (her örnekteki ilk ">" sembolü, bir komutun başlangıcını belirtir; ) kopyalanan:
> Install.packages ( "QTL")
NOT: R ve 'qtl' paketi kurulduktan sonra, R komut satırından R / qtl'yi çalıştırmanın veya J / qtl 28 adlı bir grafik kullanıcı arabirimi (GUI) programını kullanarak iki yolu vardır: J'yi indirmek için 29'a bakın / QTL. Bu protokol, R / qtl komut satırı sözdizimini J / qtl'deki eşdeğer işlevle ara sıra referansla sağlayacaktır. - 'Qtl' paketini yükleyin:
> Kütüphane (qtl)
NOT: Veri Kümesi biçimi ve karşıdan yüklemeleri için Ek Dosya 1'deki Protokol 2.3 Not'a bakınız. - Veri kümesi dosyasını R / qtl'ye yükleyin.
- "Csv" biçimi için (Bkz. Veri Dosyası 1):
> SNFR <- read.cross (format = "csv", dosya = "$ PATH / Rqtl-SNFR.csv", genotipler = c ("0", "1"), na.strings = c ("-") , ConvertXdata = FALSE) - Veya "gary" biçimi için (Bkz: Veri Dosyası 2):
> SNFR <- read.cross (format = "gary", dir = "$ PATH", chridfile = "chrid.txt", mnamesfile = "mname.txt", mapfile = "markerpos.txt", genfile = "genotip. Txt ", phefile =" fenos.txt ", pnamesfile =" fenonames.txt ", convertXdata = FALSE)
$ PATH, qtl veri kümesini içeren dosyaların dizin yoludur. Örneğin: / Kullanıcılar / HotDiggityDog / QTLfiles
NOT: Dosyalar ayrıca yüklenebilir'Yorum veya Komut Ekle' seçeneğini kullanarak önceki komutlarla J / qtl içine girer veya verileri '' Dosya-> Çapraz Veri Yükle '' seçeneği ile yükler.
- "Csv" biçimi için (Bkz. Veri Dosyası 1):
- Harita olasılıklarını hesaplayın:
> SNFR <- calc.genoprob (SNFR, basamak = 2.0, kapanış = 0.0, hata.prob = 1.0E-4, harita.function = "haldane", adım genişliği = "sabit") - Tüm kromozomlardaki sinüs fıngını direnç fenotipinin ikili bir dağılımını kullanarak tek bir tarama yapın:
> SNFR.scan <- scanone (çapraz = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI", "VIIa", "VIIb , "VIII", "IX", "X", "XI", "XII"), pheno.col = c (1), model = "binary", method = "em")
NOT: VIR fenotipini çalıştırıyorsanız, 'model = "normal"' dağıtım seçeneğini kullanın. - Önem derecesi eşiklerini hesaplamak için 1000 permütasyon çalıştırın ve daha sonra attrSNFR.scan değişkeninin permütasyonlarını ibute edin:
> SNFR.scan.permutations <- scanone (çapraz = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI", "VIIa" Model = "ikili", yöntem = "em", n.perm = 1, "VIIb", "VIII", "IX", "X", "XI", "XII"), pheno.col = 1000, perm.Xsp = YANLIŞ, ayrıntılı = YANLIŞ)
> Attr (SNFR.scan, "feno.col") <- c (1)
NOT: 2.5 - 2.7 arasındaki adımlar J / qtl'de 'Analiz -> Ana Tarama -> Bir QTL Genom Taraması Çalıştır' seçeneği ile çalıştırılabilir. - Tarama sonuçlarını çizin:
> Arsa (SNFR.scan, boşluk = 0, bantkol = "gri")
NOT: J / qtl'de üretilen arsa etkileşimli.- Sadece en yüksek zirveye sahip kromozom olan IX kromozomu için tarama sonuçlarını çizin:
> Arsa (SNFR.scan, chr = c ("IX"), gap = 0, bandcol = "gri", show.marker.names = DOĞRU)
- Sadece en yüksek zirveye sahip kromozom olan IX kromozomu için tarama sonuçlarını çizin:
- Tek taramadan tüm işaretçi konumlarını ve LOD puanlarını gösterin:
> SNFR.scan - Permütasyon testinin eşik sonuçlarını göster:
> Özeti (SNFR.scan.permutations) - Yalnızca alfa = .05 eşik değerinden daha büyük olan işaretçileri gösterin (önceki çıktıdan alınır):
> SNFR.scan [SNFR.scan $ lod> 2.68,] - Her kromozom üzerinde en yüksek LOD skoruna sahip işaretleyicileri gösterin:
> Özeti (SNFR.scan) - Maksimum LOD puanı değerine sahip işaretleri gösterin (önceki çıktıdan alınmıştır):
> SNFR.scan [SNFR.scan $ lod> = 6.57,]
NOT: Bkz. Ek Dosya 1'deki Protokol 2.13 Not.
3. WGS'yi kullanarak Nedeni SNF r'yi Mutasyona Dölün Ardından Okur
NOT: Ek Dosya 1'deki Protokol 3 Notuna bakınız.
- WGS'nin bireysel yavruların okumalarını sinefungin hassas VAND'a hizalayın(VAND-SNF s ) ebeveyn genomu.
NOT: NCBI Assembly AEYJ00000000.2'den VAND referans genomunu (SNF s ) indirin ve NCBI SRA PRJNA258152'den 24 yavru için WGS okur (.sra dosyaları). Ayrıca, aşağıdaki programları indirin: Bowtie2 11 , NCBI SRA Araç Seti, SAMtools 30 , VarScan 12 ve MUMmer 31 .- Bowtie2-build programını kullanarak VAND referans genom FASTA dosyasından Bowtie 2 uyumlu bir dizin oluşturun, buradaki "VAND" dizinini adlandırın:
> Bowtie2-build GCA_000224845.2_TGVAND_v2_genomic.fna VAND - Eşleştirilmiş okumalar için --split-files seçeneğiyle fastq-dökümü kullanarak SRA formatlı WGS okuma dosyalarını FASTQ dosyalarına dönüştürün (soyadı P1_14VB için SRR1555372.sra dosyası örnek olarak kullanılacaktır):
> Fastq-dökümü --split-dosyaları SRR1555372.sra
Not: Bu ve aşağıdaki komutların tümü için iletişim kuralı 3.1 çalıştırın 24soyu. - Bowtie2 ile bir SAM (.sam) dosyasına çıktı ve --end-to-end seçeneği ile WGS okumalarını referans genom ile hizalayın:
> Bowtie2 -x VAND -1 SRR155372_1.fastq -2 SRR1555372_2.fastq -S SRR155372.sam - sonuna kadar - .sam dosyasını bir BAM (.bam) dosyasına dönüştürün:
> Samtools görünümü -bS SRR155372.sam> SRR155372.bam - .bam dosyasını sıralayın:
> Samtools sıralaması SRR155372.bam SRR155372.sort - Sıralanmış .bam dosyasını dizinleyin:
> Samtools dizini SRR155372.sort.bam
- Bowtie2-build programını kullanarak VAND referans genom FASTA dosyasından Bowtie 2 uyumlu bir dizin oluşturun, buradaki "VAND" dizinini adlandırın:
- VarScan'ı kullanarak soyu için SNP'leri çağırın
NOT: Ek Dosya 1'deki Protokol 3.2 Not'a bakınız.- Tüm endekslenmiş BAM (.sort.bam) dosyalarını samtools mpileup kullanarak VAND genom başvuru dosyasını, tüm nesne .sort.bam dosyalarını ve AllProgeny-mpileup.txt adlı bir dosyaya çıktı kullanarak bir yığın halinde biçimlendirilmiş dosyaya dönüştürün:
> Samtools mpileup -f GCA_000224845.2_TGVAND_v2_genomic.fna SRR1555599.Sort.bam SRR1555372.sort.bam SRR1555660.sort.bam SRR1555672.sort.bam SRR1556052.sort.bam SRR1556122.sort.bam SRR1556192.sort.bam SRR1556194.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556200. Sort.bam SRR1556203.sort.bam SRR1556276.sort.bam SRR1556276.sort.bam SRR1556278.sort.bam SRR1556395.sort.bam SRR1556396.sort.bam SRR1556397.sort.bam SRR1556398.sort.bam SRR1556399. Sort.bam SRR1556400.sort.bam SRR1556401.sort.bam SRR1556402.sort.bam> AllProgeny-mpileup.txt - Tüm SNP'leri AllProgeny-mpileup.txt dosyasını kullanarak, en az 5 okumak, minimum değişen frekansını .8, p-değeri 0.01, ve AllProgeny-SNPs dosya isimlerine çıktığında VarScan mpileup2snp programını kullanarak arayın. Txt:
> Java -jar VarScan.jar mpileup2snp AllProgeny-mpileup.txt --min kapsama alanı 5 - dakika-var-frek .8 - p-değeri .01> AllProgeny-SNPs.txt
NOT: AllProgeny-SNPs.txt dosyası, Protokol 3.4'te kullanılacak bir sekmeyle ayrılmış metin dosyasıdırNedensel SNP.
- Tüm endekslenmiş BAM (.sort.bam) dosyalarını samtools mpileup kullanarak VAND genom başvuru dosyasını, tüm nesne .sort.bam dosyalarını ve AllProgeny-mpileup.txt adlı bir dosyaya çıktı kullanarak bir yığın halinde biçimlendirilmiş dosyaya dönüştürün:
- ME49 tabanlı QTL yerinin koordinatlarına karşılık gelen VAND genom koordinatlarını bulun
NOT: Bkz. Ek Dosya 1'deki Protokol 3.3 Not.- ME49 genomunu (ToxoDB.org 32'den indirilebilir) ve VAND referans genom dosyasını (çıktı, out.delta dosyasına gider) hizalamak için MUMmer nucmer programını kullanın:
> Nucmer ToxoDB-28_TgondiiME49_Genome.fasta GCA_000224845.2_TGVAND_v2_genomic.fna - ME49vsVAND-coords.txt adlı bir dosyaya çıktı olan iki genom diziliminin koordinatlarını elde etmek için MUMmer show-coords programını kullanın:
> Show-coords out.delta> ME49vsVAND-coords.txt
NOT: ME49vsVAND-koords.txt dosyası, VAND kontiglerini ve QTL lokusuna karşılık gelen konumları bulmak için kullanılabilir; 3,187,537 ila 4,202,258 bp arasında ME49 kromozom IX üzerinde bulunan MV359 ila MV366 markörleri. Korresp boyunca uzanan iki VAND kontigonu varQTL lokusunu; KN044604.1: 657,441-1 bp ve KN042501.1: 430.910-41.870 bp (her iki kontinaj, tersine ME49 kromozomu ile hizalanır).
- ME49 genomunu (ToxoDB.org 32'den indirilebilir) ve VAND referans genom dosyasını (çıktı, out.delta dosyasına gider) hizalamak için MUMmer nucmer programını kullanın:
- Sadece SNF r nesli tarafından kalıtsal SNP'ler için QTL loküsünde bulunan yavru SNP'leri değerlendirin
NOT: Ek Dosya 1'deki Protokol 3.4 Not'a bakınız.- QTL loküsünde bulunan nedensel mutasyonu belirlemek için Veri Dosyası 3'ü inceleyin. SNF r nesli bir SNP'ye sahipken ve SNF ler yoksa (erişilebilir SNP'ler VAND-SNF'nin referans genomuyla karşılaştırıldığında elde edildiği için) bir model için verileri tarayın. Bu sadece VAND kontig KN042501.1 üzerinde 348130 pozisyonunda bu desende bir konumla sonuçlanmalıdır.
- Veri Dosyası 3'teki 6604 satırına bakın ( Şekil 3 ).
NOT: Ek Dosya 1'deki Protokol 3.4.2 Not'a bakınız.
4. Belirlenen Hitler'in CRISPR / Cas9-Aracılığıyla Genin İnaktive Edilmesi.
NOT: QTL haritalama ve WGS SNP analizi ile tanımlanan nedensel SNP'yi teyit etmek için ilgili genetik değişikliklerin bir WT SNF arka planında yapılması ve ortaya çıkan fenotip incelenmelidir. Sinüs fınnın direnci durumunda sorumlu mutasyon SNR1 geninin erken sonlandırılmasıyla inaktivasyona neden olur 2 . Bu nedenle, onay için SNR1'in bozulması kullanılabilir. Burada, sinüs fınnın direncine katılımını göstermek için, SNR1'i bozmak için CRISPR / Cas9 indüklenen indel mutasyonlarının kullanımı için ayrıntılı bir protokol sağlanmıştır ( Şekil 4 ).
- SNR1'e spesifik CRISPR plazmid yapısı
NOT: Plazmidleri ve haritaları elde etmek için Ek Dosya 1'deki Protokol 4.1 Not'a bakınız.- ToxoDB 32'den hedef genin ( SNR1 , TGME49_290860) genomik dizisini elde edin.
- Hedefe spesifik gRNA'lar tasarlamak için E-CRISP 33 gibi çevrimiçi araçları kullanın. PAM dizisini (NGG) gRNA'ya dahil etmeyin.
NOT: Ek Dosya 1'deki Protokol 4.1.2 Not'a bakınız. - Hedefe özgü CRISPR plazmidini oluşturmak için primerleri sentezleyin.
- Adım 4.1.2'deki tasarıma göre , orijinal CRISPR plazmitindeki gRNA'yı hedef alan UPRT'yi , seçilen gRNA sekansına yer yönelimli mutajenez yoluyla değiştirmek için iki primer sentezleyin.
NOT: Bu iki primer sekansı aşağıdaki gibidir: gRNA-Fw: NNNNNNNNNNNNNNNNNNNNGTTTTAGAGCTAGAAATAGC (N20 hedef spesifik gRNA dizilimi) ve gRNA-Rv: AACTTGACATCCCCATTTAC 2 .
- Adım 4.1.2'deki tasarıma göre , orijinal CRISPR plazmitindeki gRNA'yı hedef alan UPRT'yi , seçilen gRNA sekansına yer yönelimli mutajenez yoluyla değiştirmek için iki primer sentezleyin.
- Siteye yönelik mutajenez reaksiyonlarını gerçekleştirin.
- UPRT'yi hedefleyen CRISPR plasmidini (pSAG1 :: CAS9-U6 :: sgUPRT) şablon olarak ve yukarıda listelenen iki primer kullanarak, bölgeye yönelik mutajenez reaksiyonları gerçekleştirinÜreticinin talimatlarına göre.
NOT: PCR için aşağıdaki döngü koşullarını kullanın: 1 dakika boyunca 98 ° C, ardından 10 saniye için 98 ° C, 30 saniye için 55 ° C ve 5 dakika boyunca 72 ° C'lik 25 döngü ardından takiben 2 dakika süreyle son uzatma 72 ° C'de.
- UPRT'yi hedefleyen CRISPR plasmidini (pSAG1 :: CAS9-U6 :: sgUPRT) şablon olarak ve yukarıda listelenen iki primer kullanarak, bölgeye yönelik mutajenez reaksiyonları gerçekleştirinÜreticinin talimatlarına göre.
- GOI'ye özgü CRISPR plazmidlerini içeren mutagenez ürünlerini, E. coli yetkili hücrelerine, tedarikçinin protokolüne göre kimyasal transformasyon ile değiştirin (bkz . Malzemelerin Tabloları ). 37 ° C'de ampisilin (100 μg / mL) içeren lizojen broth (LB) plakaları üzerinde transformantları büyütün. Ardından, 2-4 klon seçin ve 12-16 saat süreyle 100 μg / mL ampisilin ile desteklenmiş 5 mL LB ortamında ayrı ayrı büyütün.
- Bir DNA izolasyon kiti kullanarak kültürlerden plazmid ayıklayın ve plasmidlerin boyutunu kontrol etmek için DNA jel elektroforezi ile analiz edin (beklenen plazmid boyutu 9674 bp'dir, orijinal CRISPR plasmidini c olarak kullanınontrol). Hedefe spesifik gRNA dizisini teyit etmek için plasmidleri dizilemek için M13-Rev primerini (5'-CAGGAAACAGCTATGACC) kullanın.
- Pozitif klonlar tanımlandıktan sonra, gelecekte kullanılmak üzere her iki plazmid DNA'sını -20 ° C'de ve ilgili bakteri kültürü -80 ° C'de saklayın.
NOT: Transfeksiyon için kullanılacak CRISPR plazmiti deiyonize suda çözünmeli ve konsantrasyon spektrofotometri veya alternatif bir yöntemle belirlenmelidir.
- Pozitif klonlar tanımlandıktan sonra, gelecekte kullanılmak üzere her iki plazmid DNA'sını -20 ° C'de ve ilgili bakteri kültürü -80 ° C'de saklayın.
- Bir DNA izolasyon kiti kullanarak kültürlerden plazmid ayıklayın ve plasmidlerin boyutunu kontrol etmek için DNA jel elektroforezi ile analiz edin (beklenen plazmid boyutu 9674 bp'dir, orijinal CRISPR plasmidini c olarak kullanınontrol). Hedefe spesifik gRNA dizisini teyit etmek için plasmidleri dizilemek için M13-Rev primerini (5'-CAGGAAACAGCTATGACC) kullanın.
- Parazit transfeksiyonu.
NOT: D10 ortamında HFF hücrelerinde T. gondii'nin kültürlenmesi için genel yöntemler daha önce tarif edilmiştir 34 .- Transfeksiyondan iki - üç gün önce,% 70 - 80 HFF hücresine ulaşmak için birleşik HFF hücresi tek tabakalı (tip 1 suşlar için 0.5-1 x 10⁶, diğer suşlar için 1-2 x 10⁶) bir T25 şişesine yeterli parazit ekleyin. 2-3 d içerisinde lizis
- TetkikHFF tek tabaka parazitler tarafından% 70-80 oranında parçalandığında, ters bir faz kontrast mikroskop altında kültür. Nazikçe bir pipetle ortamı alın ve 5 mL sitomix tamponu (120 mM KCI, 0.15 mM CaCl2, 10 mM K2 HPO4 / KH2PO4 pH = 7.6, 25 mM HEPES, 2 ile balon yüzeyi dışındaki hücreleri yıkayın. MM EDTA, 5 mM MgCl2, pH = 7.6). Ardından, parazit çözeltisini 15 mL'lik konik bir boruya aktarın.
NOT: Ek Dosya 1'deki Protokol 4.2.2 Not'a bakınız. - Parazit çözeltisini 10 mL şırınga / 22 G künt iğne ile 2-3x geçirin.
- HFF hücrelerini ve hücresel pislikleri temizlemek için gözenek boyutu 3 μm olan bir zardan yeni bir konik tüpe parazit solüsyonu filtre edin.
- Süzülen parazitleri, 400 xg'de 10 dakika süreyle santrifüjleyerek peletleyin.
- Süpernatantı dökün ve topaklanmış parazitleri 10 mL sitomix tamponu ile tekrar süspanse edin, det için 10 uL alikot alınParazit konsantrasyonunu bir hemositometre ve peletle geri kalanını 400 x g'de 10 dakika süreyle santrifüjleyerek eritin.
- Süpernatantı kaldırın ve 4 x 10 7 parazit / mL yoğunluğunu elde etmek için pelet sitomix tamponda tekrar süspansiyon haline getirin.
- 4 mm boşlukta bir küvette 7.5 μg CRISPR plazmid, 6 uL ATP (100 mM) ve 6 μL glutatyon (GSH) (250 mM) ile 250-300 μL parazit çözeltisi (1-1.3 x 10⁷ parazit) karıştırın.
- Parazitleri elektroporasyona tabi tutun 35 . CRISPR plasmidinin CRISP plazmidini hedefleyen UPRT gibi başka yerlerde hedef aldığı negatif bir kontrol olarak ayrı bir elektroporasyon ekleyin.
NOT: Elektroporasyon ayarları cihaza bağlıdır. Malzemelerde listelenen elektroporatör için 4 mm boşluklu küvet kullanın. Aşağıdaki protokol önerilir: 1,700 V, 176 μs darbe uzunluğu, 2 puls, 100 ms aralıklı.
- Sinefungin resistanın frekansını belirlemeCRISPR hedeflemesinden sonra.
- Tohum HFF hücreleri elektroporasyondan 3-4 gün önce 24 delikli plakalara yerleştirilen lamelleri 4.2'de transfeksiyon yapmak için zamanla konfluent olacak şekilde hazırlayın.
- Bir konfluent T25 şişeden HFF hücrelerini deneyin ve sonra 12 mL D10 ortamı ilave edin ve iyice karıştırın.
- Bir kuyucuğa bir lamel ekleyin 24-kuyucuklu bir tabak ve her biri için 500 uL HFF hücre çözeltisi alikotu iyi. Hücrelerin konfluent olana kadar büyümesine izin vermek için plakayı 37 ° C'de 34 saat inkübe edin.
NOT: Bir T25 şişesinden alınan hücreler, bir 24 gözlü levhanın tohumlanması için yeterlidir. - Konfluent HFF hücreleri ile tohumlanmış bir lamelini içeren 24 delikli plakanın bir çukuruna adım 4.2.9'dan 50 μL elektroporasyonlu parazit çözeltisi ekleyin. Geri kalan elektroporasyonlu parazit çözeltisini, konfluent HFF hücreleri ile tohumlanan bir T25 şişesine aktarın.
- Transfeksiyonun etkinliğini değerlendirin.
- 24 delikli plakada 24 saat boyunca hücreleri büyütün(IFA) ile Cas9-GFP'nin ekspresyonunu kontrol etmek için hücreleri (konakçı hücreler ve parazitler) 500 μl% 4 formaldehitle sabitleyin.
- Hücreleri bir anti-GFP antikoru ve bir toksoplasma spesifik antikor (anti-TgALD gibi) ile toplam parazitleri etiketlemek için problayın. Tavsiye edilen seyreltme için antikor ürün belgesine bakınız (IFAslar için genellikle 1: 1000 yeterlidir). Antikorlar konjuge edilmemişse, birincil antikorları etiketlemek için floresan boyalar ile konjuge edilmiş iki farklı ikincil antikor kullanın.
- İkincil flüoresan boyalar için uygun filtreli floresan mikroskopta etiketli hücrelere dikkat edin. GFP pozitif parazitlerin sayısını toplam parazitlerin sayısına bölerek transfeksiyon verimliliğini elde edin.
NOT: IFA için kullanılan iki antikor, örneğin fare anti-GFP ve tavşan anti-TgALD kombinasyonunu kullanarak iki farklı konakçı türe ait olmalıdır.
- F belirlemekTransfekte parazitlerde sinefungin direncinin istenmesi.
- T25 şişelerinde yetiştirilen transfekte parazitler için, doğal yola çıkana kadar 2-3 d büyütün. Daha sonra hücre içi parazitleri serbest bırakmak için parazitleri, künt iğne liz konakçı hücrelerini toplayın ve gözenek boyutu 3 μm olan membranlardan süzerek arındırın. Yoğunluğu hesaplamak için bir hemositometre ile parazitleri sayın.
- Konvansiyonel HFF hücreleri ile tohumlanan 6 yuvalı plakalara saflaştırılmış parazitler ekleyin: ilk sıra (3 oyuk) için 200 parazit / kuyu ekleyin ve bunları normal D10 ortamı (2 mL / çukur) ile büyütün; Ikinci sıra için, 5000 parazit / kuyu ekleyin ve 0.3 uM sinefungin içeren D10 ortamında büyütün.
- Plakları% 5 CO2 inkübatör içine koyun ve 37 ° C 8-10 d parazitleri büyür rahatsızlık vermeden plaklar oluşmasına izin vermek. % 70 etanol (2 mL / çukur) ile örnekleri düzeltin ve% 0.1 kristal menekeyle (2 mL / çukur) tek tabaka leke. Kuyuları görselleştirmek için suyla yıkayınParazit büyümesinin oluşturduğu plaklar (açık bölgeler).
NOT: Negatif kontrol yan yana aynı şekilde işlenmelidir.
- CRISPR ile indüklenen sinefungin direncini hesaplayın.
- İlaç içermeyen kuyulardan plakların ortalama sayısını (X) elde edin ve parazit yaşayabilirliğini X / 200 olarak hesaplayın. Aşağıdaki gibi CRISPR kaynaklı sinefungin direnci oranını hesaplamak için sinefungin içeren kuyulardan plakaların ortalama sayısını (Y) elde edin:
CRISPR kaynaklı direnç oranı = 200 × Y / (5000 × X × transfeksiyon etkinliği)
NOT: Transfeksiyon verimliliği 4.3.2'den elde edilmiştir.
- İlaç içermeyen kuyulardan plakların ortalama sayısını (X) elde edin ve parazit yaşayabilirliğini X / 200 olarak hesaplayın. Aşağıdaki gibi CRISPR kaynaklı sinefungin direnci oranını hesaplamak için sinefungin içeren kuyulardan plakaların ortalama sayısını (Y) elde edin:
- Tohum HFF hücreleri elektroporasyondan 3-4 gün önce 24 delikli plakalara yerleştirilen lamelleri 4.2'de transfeksiyon yapmak için zamanla konfluent olacak şekilde hazırlayın.
- CRISPR / Cas9 tarafından indüklenen indel mutasyonlarını inceleyin
- Elektroporasyona uğramış parazitleri 37 ° C'de 2 gün boyunca HFF hücreleri ile tohumlanan bir T25 şişesi içinde 4.2.9 bölümünden büyütün. Ardından ortamı, 0.3 uM sinefungin (seçme ortamı) içeren 5 mL D10 ortamı ile değiştirin).
- Parazitleri dirençli havuz dengeleninceye kadar (en az 3 pasaj için seçim ortamında tutun (negatif kontrol grubunda parazit büyümesinin olmamasına karşın deney grubundaki güçlü parazit büyümesi ile gösterilir).
- Klonal suşları elde etmek için sinefungine dirençli havuzun alt klonlasın.
- Yeni çıkarılan parazitleri toplayın, 3 μm membran süzme ile arındırın ve 150 uL D10 ortamda konfluent HFF hücreleri ile tohumlanan 96 oyuklu plakalara alt klonlayın. 37 ° C'de CO 2 inkübatöründe alt klonlama kültürleri büyütün. 7 - 10 d plakaları bozmadan uygulayın.
NOT: Bkz. S Ek Dosya 1'deki Protokol 4.4.2.1 Not.
- Yeni çıkarılan parazitleri toplayın, 3 μm membran süzme ile arındırın ve 150 uL D10 ortamda konfluent HFF hücreleri ile tohumlanan 96 oyuklu plakalara alt klonlayın. 37 ° C'de CO 2 inkübatöründe alt klonlama kültürleri büyütün. 7 - 10 d plakaları bozmadan uygulayın.
- Sadece bir plak içeren kuyu aramak için ters çevrilmiş bir faz-kontrast mikroskop altında 96 delikli plakaları kontrol edin. Bu kuyuları işaretleyin ve daha sonra, hücreleri, bir pipet kullanarak HFF hücreleri ile tohumlanan 24 oyuklu plakalara her bir kuyudan nakletin.
- Bir kuyudaki HFF hücrelerinin% 80-90'ı eritildiğinde, parazitleri hasat ederek (yaklaşık 500 μL), suşu korumak için 50 uL'lik parazit çözeltisini yeni bir kuyuya geçirin. Geri kalan kısmını (≈ 450 μL) PCR amplifikasyonu için genomik DNA çıkarmak için kullanın.
- SNF r klonundan genomik DNA izolasyonu için, 10 dakika boyunca 1.000 xg'da parazitleri (küçük miktarlarda HFF hücresi kontaminasyonu tolere edilebilir) topaklar. Peletlenmiş parazitleri bir kere fosfat tamponlu salin (PBS) ile yıkayın ve tekrar peletleyin. Ticari kiti kullanarak veya kaynararak peletlenmiş hücrelerden genomik DNA'yı izole edin. 50-100 μL PBS'de parazitleri tekrar süspanse edin.
NOT: Dizilim için SNR1 geninin bir parçası elde etmek için PCR gerçekleştirin. SNR1 yer 2'sini güçlendirmek için aşağıdaki primerleri kullanın: SNR1-Amp-Fw: 5 'CCGACCACAA CAATTTTC ve SNR1-Amp-Rv: 5'GACGTGATTCACTTTTTTACAGACAGAC. Yüksek kalitede DNA polimerazları kullanın. Kontrol amacıyla WT lokusunu genişletin.
- SNF r klonundan genomik DNA izolasyonu için, 10 dakika boyunca 1.000 xg'da parazitleri (küçük miktarlarda HFF hücresi kontaminasyonu tolere edilebilir) topaklar. Peletlenmiş parazitleri bir kere fosfat tamponlu salin (PBS) ile yıkayın ve tekrar peletleyin. Ticari kiti kullanarak veya kaynararak peletlenmiş hücrelerden genomik DNA'yı izole edin. 50-100 μL PBS'de parazitleri tekrar süspanse edin.
- T gerçekleştirO 20 μL reaksiyon hacmi ile PCR ve aşağıdaki program ile çalıştırın: 1 dakika için 98 ° C, ardından 10 saniye için 98 ° C, 30 saniye için 55 ° C ve 2.5 dakika 72 ° C'de 30 devir, bunu takiben 72 ° C'de 2 dakika son uzatma.
NOT: Aşağıdaki primerler kullanılarak PCR ürünlerinin sıralaması: SNR1-Seq1: 5 'GCC ACA TGC TTT AGC GTG, SNR1-Seq2: 5' TCC TCT CCA TCA CGG GTT GG, SNR1-Seq3: 5 'GCA AGA GCC GCG TGA CG , SNR1-Seq4: 5 'CTC TCC CGC GGT CGA G, SNR1-Seq5: 5' GCA CCG TCC GCA AGC ve SNR1-Seq6: 5 'CCG GAA GGT GAA TCG TTC TTC. - Sinefungin dirençli mutantlardan SNR1 gen dizilerini bir dizi hizalama aracı kullanarak WT suşuna karşılaştırın.
NOT: Genetik tamamlama veya transgenik suş yapımı için SNR1 lokusundaki negatif seleksiyonun kullanımı hakkında ayrıntılar için Ek Dosya 2 Protokol 5'e bakınız.
- Elektroporasyona uğramış parazitleri 37 ° C'de 2 gün boyunca HFF hücreleri ile tohumlanan bir T25 şişesi içinde 4.2.9 bölümünden büyütün. Ardından ortamı, 0.3 uM sinefungin (seçme ortamı) içeren 5 mL D10 ortamı ile değiştirin).
Sonuçlar
Bu makale, ilaç direncinden sorumlu bir genin tanımlanması için art arda kullanılabilen çeşitli yöntemleri ayrıntılı olarak özetlemektedir ( Şekil 1 ). ME49-FUDR r X VAND-SNF r çaprazının 24 nesli, Protokol 1'de tarif edildiği gibi ilaç sinefunjinine direnç açısından değerlendirildi. Genetik haritayı ve soyun SNF r fenotipini kullanarak bir QTL taraması R / Qtl - Protokol 2 ( Şekil 2 ). Bu, yaklaşık 1 Mbp'yi kapsayan IX kromozomunda bir belirgin zirveye neden oldu. Bu bölgede nedensel mutasyon bulunduğu gerçeğidir.
Nedensel mutasyonu belirlemek için, WGS'nin yavrularından gelen okumalar, Bowtie2 - Protokol 3.1 kullanılarak VAND-SNF'nin referans genomu ile uyumlu hale getirildi, SNP'ler VarScan mpileup2snp - Protokol 3.2 kullanılarak çağrıldı ve VAND genomundaki QTL loküsü MUMmer - ProtocOl 3.3. QTL lokusundaki döl SNP'leri çıkarıldı ve SNF r nesli bir SNP'ye sahipken SNF s yok bir desen için çıkarıldı ve tarandı, bu da döl SNP'leri VAND-SNF'nin referans genomuyla karşılaştırıldığında elde edildiği için mümkün oldu ( Şekil 3 ) . Yalnızca bir SNP, SNR1 olarak adlandırılan bir varsayılan amino asit taşıyıcı geninde bir erken durdurma kodonuyla sonuçlanan bu modeli eşleştirdi.
SNR1'in SNF r direnç geni olduğu teyidi, CRISPR / Cas9 sistemi kullanılarak gerçekleştirildi. T. gondii geni düzenlenmesi için tasarlanmış yeni bir CRISPR / Cas9 plazmiti, dölgede tanımlanan SNF r mutasyonunun yakınında SNR1 genini hedefleyen bir gRNA içeren yapılmıştır - Protokol 4 ( Şekil 4A ). CRISPR / Cas9 plazmidini hedefleyen SNR1 , bir SNF s WT parazit suşuna elektroporasyona tabi tutuldu ve kült sırasında dirençli mutantlar elde edildi.0.3 uM sinefungin içerisinde üretildi. CRISPR / Cas9 plasmidini hedefleyen UPRT ile elektroporasyon yapıldığında SNF r parazitleri elde edilememiştir. Birkaç SNF r CRISPR mutantı klonlandı ve SNR1 gRNA hedefinin etrafındaki bölge dizildi. Her mutant, SNR1 geninin kodlama dizisini bozan bir indel içeriyordu ( Şekil 4B ). Bu yöntem, NHEJ ( Şekil 5) veya HR ( Şekil 6 ) - Ek Dosya 2 yoluyla SNR1 lokusuna bir hedefleme yapısı eklemek için de kullanılabilir.
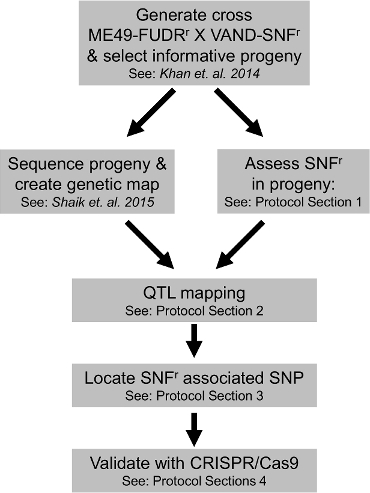
Şekil 1: Protokollerde Açıklanan Denemeler İçin Şematik İş Akışı. ME49-FUDR r X VAND-SNF r çaprazını kullanarak SNF r geninin belirlenmesinde ve teyit edilmesinde ana adımlar, t'de belirtilen uygun Protokollere atıfta bulunularak gösterilmiştir.Onun makalesi. Bu rakamın daha büyük bir versiyonunu görmek için lütfen tıklayınız.
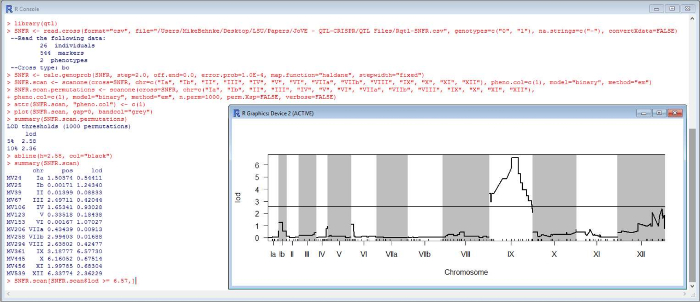
Şekil 2: R / qtl SNF r Fenotipinde QTL Taramasını çalıştırmak için kullanılan komutlar. Protokol 2'de özetlenen komutlar, qtl paketini kullanarak R'de çalıştırılmıştır. Temsilci komutlar ve çizimler gösterilir. Bu rakamın daha büyük bir versiyonunu görmek için lütfen tıklayınız.
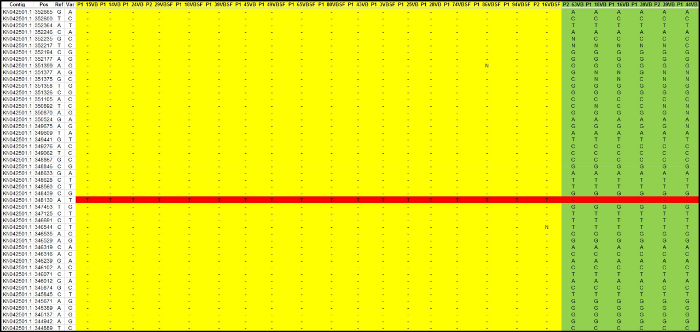
Şekil 3: Nazik SNP'nin Konumu. Döl WGS okumaları, Bowtie 2 ile birlikte VAND-SNF'nin referans genomu ile uyumlu hale getirildi, SNP'ler VarScan ile çağrıldı ve karşılık gelen Ing VAND QTL lokusu MUMmer ile tanımlandı. QTL loküsünde yer alan SNP'ler bir elektronik tabloya alındı ve nedensel SNP tespit edildi. SNF r nesli (sarı), SNF sinsisi (yeşil), SNF r SNP (kırmızı) (bkz. Veri Dosyası 3 ). Bu rakamın daha büyük bir versiyonunu görmek için lütfen tıklayınız.
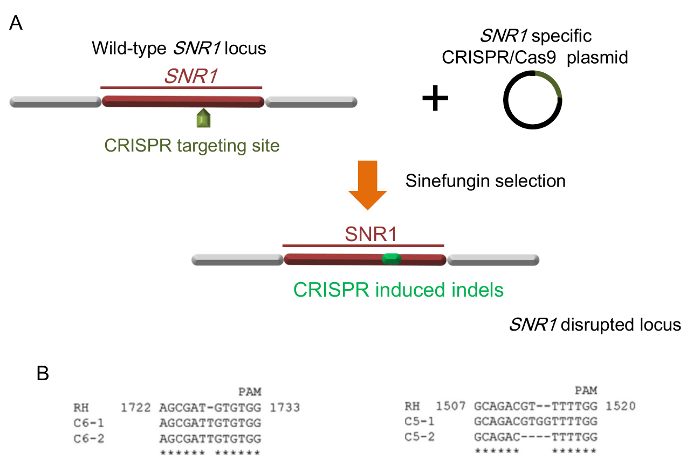
Şekil 4: SNR1'in SNF r Geni olarak CRISPR / Cas9 kullanılarak onaylanması. ( A ) SNR1 lokusunda CRISPR / Cas9 indel mutasyonları (yeşil) indükledi. ( B ) SNR1'deki temsilci, iki farklı SNR1 spesifik CRISPR plasmidinden (sırasıyla C5 ve C6) kaynaklanıyor. RH, WT suşudur ve C5 ve C6, SNF r mutantlarıdır. (B referans olarak alınmıştırS = "xref"> 2). Bu rakamın daha büyük bir versiyonunu görmek için lütfen tıklayınız.
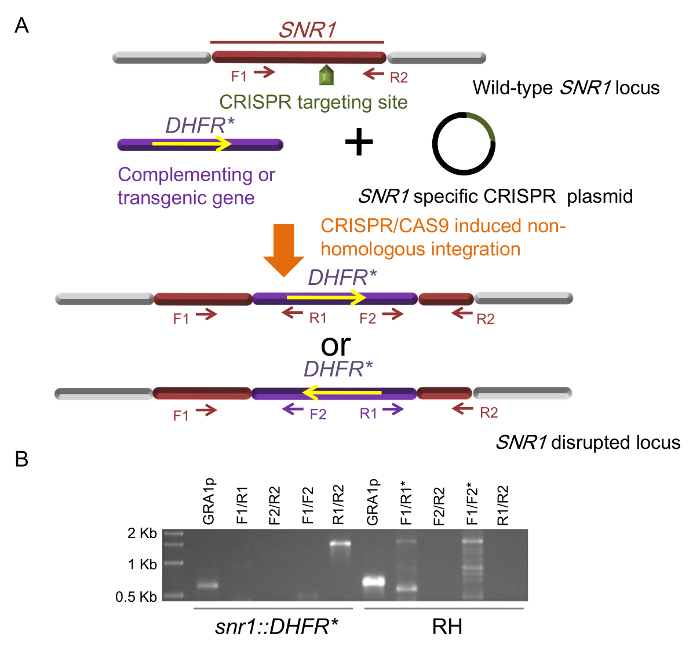
Şekil 5. CRISPR / Cas9 kullanılarak yerleştirme mutajenezi. ( A ) CRISPR / Cas9 aracılı bölgeye özgü entegrasyon ile SNR1 lokusuna tamamlayıcı veya transgenik genlerin eklenmesi. Eklenen DHFR * mini geninin olası iki oryantasyonu ve tanımlama için kullanılan primerler, F1 / 2 ve R1 / 2, tanısal PCR'lerde kullanılan oligoların başlatma yerlerini temsil eder. ( B ) Bir snr1 :: DHFR * klonunun diagnostik PCR'leri , RH bir WT kontrolü olarak kullanılır. GRA1p PCR, genomik DNA'nın kalitesini şablon olarak kontrol eden bir kontrol olarak dahil edilmiştir. Yıldız işaretleri, spesifik olmayan bantlara sahip şeritleri gösterir (Şekil 5B referansen alınmıştırCe 2 ). Bu rakamın daha büyük bir versiyonunu görmek için lütfen tıklayınız.
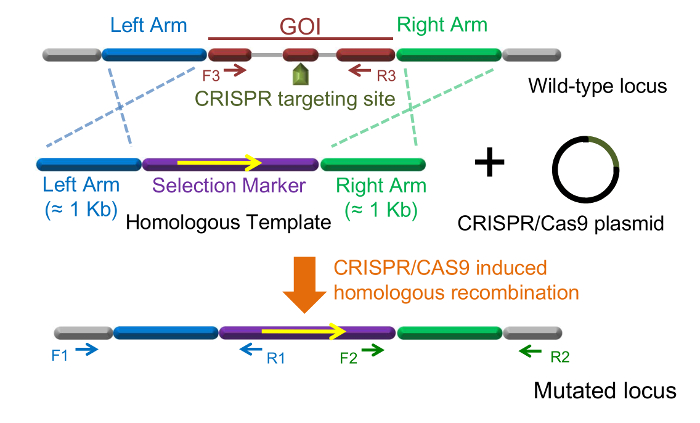
Şekil 6: CRISPR / Cas9 kullanılarak gen nakavt. T. gondii'de CRISPR / Cas9 aracılı homolog gen değişimi için klasik bir tasarım. Bu durumda yerleştirilen transgenin yönü sabittir. F1 / R1, F2 / R2 ve F3 / R3, tanı PCR'lerinde kullanılan oligoların priming alanlarını temsil eder. Bu rakamın daha büyük bir versiyonunu görmek için lütfen tıklayınız.
Veri Dosyası 1: ME49-FUDR r X VAND-SNF r Çapraz Dosya fVeya R / qtl, "csv" Formatında kullanın. R / qtl format = "csv" seçeneğiyle yüklenebilen bir .csv dosyası. Bu dosyayı indirmek için lütfen tıklayınız.
Veri Dosyası 2: (chrid txt, genotype txt, markerpos.txt, mname.txt, fenonames.txt ve fenos.txt). ME49-FUDR r X VAND-SNF r Çapraz Dosyalar R / qtl "gary" Formatında kullanılır. Format = "gary" seçeneği ile R / qtl'ye yüklenebilen altı .txt dosyası. Bu dosyayı indirmek için lütfen tıklayınız.
Veri Dosyası 3. SNF r'de Progeny SNP'li e-tablo r QTL Locus. Soy SNP'leri içeren bir çalışma sayfası ve ebeveynlerin ve çarmıhın soyları ile fenotipik verileri içeren ikinci bir çalışma sayfası içerir. Bu dosyayı indirmek için lütfen tıklayınız.
Ek Dosya 1: Ek Protokol Ayrıntıları. Bu dosyayı indirmek için lütfen tıklayınız.
Ek Dosya 2: Protokol 5 - Negatif Seçimin SNR1 Lokusunda Genetik Tamamlama veya Transgenik Suş Oluşturma Kullanımı. Bu dosyayı indirmek için lütfen tıklayınız.
Tartışma
Bu protokoller, kombine edildiğinde T. gondii'de bir ilaç direnç geninin tanımlanmasına izin veren çeşitli yöntemler sunmaktadır. Özellikle ikisi, projeye ayrılmaz, nispeten tecrübeli QTL haritalama yöntemi ve yakın zamanda geliştirilen CRISPR / Cas9 gen düzenleme yöntemi. Lander ve Botstein 1989'da genetik lokusları fenotiplerle ilişkilendiren QTL haritalamasını gösteren etkili gazetelerini yayınladılar. Daha yakın zamanda 2012'de Dounda ve Charpentier, Streptococcus pyogenes 22'deki CRISPR / Cas9 düzenleme sistemini, T. gondii 13 , 17 dahil olmak üzere birçok farklı modelde hızla genetik bir araç olarak uyarlanmıştı. Burada, QTL haritalamasının sonuçta WGS tabanlı SNP tespiti ile tanımlanan ilaç direnci mutasyonunu içeren lokusunu tanımladığı ve CRISPR / Cas9 düzenleme yoluyla sağlanan iki usul de faydalıydı SNR1'in sinefungin ilaç direnç geni olduğunu onaylamak için.
ME49-FUDR r X VAND-SNF r çapraz 8 orijinal olarak bir virulans fenotipi 19'u sorgulamak için geliştirildi, ancak ebeveyn suşlarının, nedensel genin bilinmediği ek fenotipik bir farka, VAND ebeveynde sininefungine direncine sahip olduğu da oldu. Bu, ebeveynlerde ek fenotipik farklılıklar görüldüğünde, yeniden melezleştirilebilmeleri için haçların bir yararı olduğunu vurgular. Virülansla ilgili birçok genin 37 , 38 , 39 , 40lu çoklu fenotipleri haritalamayla bulunduğu başka Tip Toxoplasma çapraz, tip 2 x tip 3 için durum böyledir. Bugüne kadar, dört farklı T. gondii haçı tanımlanmış ve fenotiplerden sorumlu genleri haritalamak için kullanılmıştırSs = "xref"> 8 , 37 , 41 , 42 , bunların hepsi, genetik temel bilinmeyen yeni fenotipleri haritalamak için tekrar kullanılma potansiyeline sahiptir. Bu çizgiler boyunca, bilinen global genetik çeşitliliği temsil eden 62 T. gondii suşunun genomları sıralanmıştır 43 . İlginç fenotiplerde farklılık gösteren suşlar için bu havuzdan yeni çaprazlar yapılabilir. QTL haritalamanın avantajlarını vurguladıktan sonra, bir haç oluşturulmasının küçük bir taahhüt olmadığı söylenebilir. Nedensel genleri tanımlamak için kullanılabilecek diğer yöntemler de vardır. Güçlü bir teknik, fenotipler için taranabilen mutantlar oluşturmak için kimyasal mutajenez kullanır. Nedensel geni bulmak için, mutantlar ya kosmid kütüphaneleri 44 ile tamamlanabilir ya da nedensel mutasyonu bulmak için genom resequencing yöntemleri kullanılabilir 45 . Ay içinColeman ve arkadaşlarının yaptığı iki JoVE makalesine bakın . Ve Walwyn ve ark. Bu yaklaşımları özetleyen 46 , 47 .
Nedensel SNF r mutasyonunun tanımlanmasına yol açan adımların çoğu (Protokoller 2 ve 3), akademik kullanım için serbestçe temin edilebilen yazılımlarla yapılan hesaplama yöntemlerine güvenir. Her basamak için ayrıntılı komutlar sağlanır ve uygun dosyalarla çalıştırıldığında, kullanıcının nedensel SNF r SNP'yi bulmak için gerekli olan veri kümelerini yeniden oluşturmasına izin verir. Komutlardaki bazı söz dizimlerinin, kullanıcı tercihine göre değiştirilebilen dosya adlarına veya dizin yapısına ($ PATH) işaret ettiğini unutmayın. Burada verilen komutlar kesinlikle ÇTL analiz ve WGS tabanlı SNP tanımlama ile bir haç analiz yollarını tüketmemesine rağmen, bu makalede açıklanan deney tekrarlamak için yeterince kapsamlı ve kullanıcı m Bu yaklaşımların adım adım bir şekilde nasıl kullanıldığını bilen cevher.
QTL haritalama ve WGS dizisi tabanlı SNP bulgusu, bir aday SNF r genini tanımlamak için yeterli olmasına rağmen, ilacın direncindeki rolünü doğrulamak için ek deneylere ihtiyaç vardır. Bu, ikisi de CRISPR / Cas9 gen editörü kullanılarak elde edilebilen, gen parçalanması veya nakavt teknikleri vasıtasıyla ikna edici şekilde gösterilebilir. CRISPR / Cas9'un Indel mutasyonları üretmek veya T. gondii'de bir hedef genin içine transgenik yapılar yerleştirmek için ayrıntılı yöntemleri verilmiştir. CRISPR / Cas9'un sunduğu hedefleme özgüllüğü, geleneksel yöntemlere kıyasla gen düzenleme verimliliğini artırır. Ayrıca, bu, verimli bir şekilde, daha önce değiştirilmesi zor olan genetik çalışmalar için laboratuarda uyarlanmamış suşların kullanılmasını mümkün kılmıştır 13 . Bebeklik döneminde, CRISPR / Cas9 zaten genin kesintiye uğraması için kullanılmıştırLass = "xref"> 2 , 13 , 17 , 18 , 48 , 49 , genleri 17 etiketleyin ve T. gondii'de 16 , 19 , 50 , 51 , 52 , 53 , 54 gen nakavtlerini yapın , Gelecekteki diğer birçok çalışma için.
SNR1'in inaktivasyonunun sinefungin direncine yol açtığının keşfi, SNR1 lokusunu, transgen takılması veya genetik tamamlama için umut verici bir yer haline getirir. Transgenin SNR1 lokusuna entegrasyonunu yönlendirmek için CRISPR / Cas9 aracılı gen hedeflemenin başarısını en üst düzeye çıkarmak için aşağıdaki hususlar dikkate alınmalıdırDeneysel tasarım sırasında kırmızı. İlk olarak, bir seçim markeri, suş yapımının etkinliğini arttırmak için transjenik yapıya dahil edilmesi önerilir. Bir seçim işareti dahil edilirse, hem pozitif hem negatif seçim kullanılabilir, böylece çiftli seçilen parazitlerin neredeyse% 100'ü, SNR1 lokusunda entegre edilmiş GOI ile transgenik olur. Buna karşılık, eğer transjenik yapı ek seçilebilir özellikler içermezse ve SNR1 lokusundaki negatif seçime dayanıyorsa, başarılı transgenesisin etkinliği büyük ölçüde CRISPR plasmidinin ve transgenik yapının kotransfeksiyonunun verimliliğine bağlıdır.
İkincisi, homolog olmayan bir DNA fragmanının CRISPR / Cas9 aracılı bölgeye özgü entegrasyonu sıklıkla tamamlama ve transgenez için kullanılır, ancak, bu tür durumlarda her iki yönde de olabilir, ekleme yöneliminin garanti edilemeyeceği unutulmamalıdır. Bu, probleme neden olabilirMs bazı uygulamalar için. Örneğin, farklı gen alellerine sahip bir mutantı tamamlamak için, tüm alellerin aynı yönde yerleştirildiğinden ve oryantasyonda tutarsızlıkların ekspresyon farklılıklarına neden olabileceğinden emin olmak zordur. Bu tür uygulama için, uygun entegrasyon yönelimini sürdürecek SNR1 lokusuna homolog diziler içeren DNA yapıları önerilir ( Şekil 6 ).
Üçüncü olarak, transfeksiyon sırasında, CRISPR plasmid ile transgenik DNA molekülü arasındaki oran, başarılı bir transgenik suş yapımı için kritik önem taşır. Bu oran seçim stratejilerine göre ayarlanmalıdır. Aşağıdaki yönergeler önerilir: 1) Transgenik yapı bir ilaca dirençli işaretleyici içeriyorsa ve ilgili ilaç transgenik parazitleri üretmek için kullanılan tek seçimse, yani sinefungin kullanılmazsa, transjenik yapı ile CRISPR plazması arasındaki önerilen molar oranKimlik 1: 5. Bu durumda daha fazla CRISPR plazmidinin kullanılması, transgenik yapı kazanan parazitlerin CRISPR plazmidini de alması olasılığını artırır, bu nedenle ilaca dirençli parazitlerin, CRISPR hedefleme alanına eklenen işaretleyiciye sahip olma olasılığı daha yüksektir. Oran ters çevrilirse, transgenik yapı kazanan parazitlerin çoğunda CRISPR plasmid bulunmaz. Sonuç olarak, uyuşturucuya dirençli parazitlerin büyük çoğunluğu, CRISPR / CAS9 aracılı bölgeye özgü eklemeyle ilişkili olmayan rasgele entegrasyon vasıtasıyla transjenik yapı elde eder. 2) Transjenik yapı bir ilaca dirençli işaretleyici içeriyorsa ve karşılık gelen ilaç transjenik parazitleri seçmek için sinefungin ile birlikte kullanılıyorsa, transgenik yapı ile CRISPR plazmid arasındaki önerilen molar oran 1: 1'dir. Bu strateji, transjenik suş yapımının en yüksek etkinliğini sağlar. 3) Transgenik yapı, negatif seçime bağlı olarak seçilebilir bir yapıcı içermiyorsaTransgenik parazitlerin elde edilmesi için sinefungin tarafından tek başına, transjenik yapı ile CRISPR plasmid arasındaki önerilen molar oran 5: 1'dir. Bu tasarımın mantığı yukarıdaki ilk kılavuzdaki ile aynıdır. Protokol 5'teki hem pirimetamin hem de sinefungin seçildiğinden, DHFR * mini geni ve CRISPR plasmidini hedefleyen SNR1 arasındaki oran 1: 1 olarak ayarlandı.
Birlikte ele alındığında, burada özetlenen yöntemler, SNR1 2'yi tanımlayan orijinal yayında anlatılamayacak bir ayrıntı seviyesine sahiptir. Bu protokoller; Özellikle, komut satırı sözdizimi, kullanılan programların ardışık düzenleri ve CRISPR / Cas9'un kullanılması, fenotiplerden sorumlu yeni genleri belirlemek için gelecekteki çalışmalara yardımcı olmalıdır.
Açıklamalar
Yazarlar, rekabet eden hiçbir finansal çıkarları olmadığını beyan ederler.
Teşekkürler
Bu protokollerin dayandığı orijinal yayına yaptıkları katkılarından ötürü L. David Sibley ve Asis Khan'a teşekkür etmek isteriz. Bu çalışma Ulusal Sağlık Enstitüsü AI108721 tarafından finanse edildi.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| T25 şişeleri | Corning | 430639 | |
| İnsan Sünnet Derisi Fibroblastları (HFF) | ATCC | SCRC-1041 | |
| T. gondii ME49 suşu | ATCC | 50840 | |
| T. gondiiVAND suşu | ATCC | PRA-344 | |
| DMEM (Sodyum Bikarbonat İçermez) | Yaşam Bilimleri | 12800017 | |
| Sodyum Bikarbonat | Sigma Aldrich | S5761 | |
| HEPES | Sigma Aldrich | H3375 | |
| Fetal Sığır Serumu (FBS) Premium Sınıf | VWR International | 97068-085 | |
| L-Glutamin 200 mM | Sigma Aldrich | G7513 | |
| Gentamisin (10 mg/mL) | Life Technologies | ||
| Şişeler için 15710064 Hücre Sıyırıcı | VWR International | 10062-904 | |
| Şırınga 10 mL | BD | 309604 | |
| Künt iğneler 22 G x 1 " | BRICO Ürünleri | BN2210 | |
| Çekirdek Gözenek Filtresi 3.0 ve mikro; m, 25 mm | GE Healthcare | 110612 | |
| Swin-Lok Filtre Tutucu 25 mm | GE Healthcare | 420200 | |
| Hematitometre | Propper MFG | 90001 | |
| Sinefungin | Enzo Yaşam Bilimleri | 380-070-M001 | |
| Ar-Ge | R Vakfı | https://www.r-project.org/ | |
| J/qtl | Churchill Grubu | http://churchill.jax.org/software/jqtl.shtml | |
| Papyon2 | John Hopkins Üniversitesi | http://bowtie-bio.sourceforge.net/bowtie2/index.shtml | |
| NCBI SRA Araç Seti | NCBI | http://www.ncbi.nlm.nih.gov/Traces/sra/?view=toolkit_doc | |
| SAMtools | Wellcome Trust Sanger Enstitüsü | http://www.htslib.org/ | |
| VarScan | Washington Üniversitesi, St Louis | http://varscan.sourceforge.net/ | |
| MUMmer | JCVI & Univ Hamburg | http://mummer.sourceforge.net/ | |
| pSAG1::CAS9-U6::sgUPRT | Addgene | Plasmid #54467 | T. gondii UPRT genini kesmek için CRISPR plazmidi |
| pSAG1::CAS9-U6::sg290860-6 | Addgene | Plasmid #59855 | T. gondii TG*_290860 SNR1 genini kesmek için CRISPR plazmidi |
| pUPRT::D HFR-D | Addgene | Plazmid #58528 | DHFR* mini gen |
| Q5 Bölgeye Yönelik Mutajenez Kiti şablonu | New England Biolabs | E0552S | |
| QIAprep Spin Miniprep | Kiti QIAGEN | 27106 | |
| NanoDrop 2000 | Thermo Scientific | ND-2000 | |
| LB Et | Suyu Fisher Scientific | DF0446-07-5 | |
| Potasyum klorür | Sigma Aldrich | P9541 | |
| Kalsiyum klorür | Sigma Aldrich | 746495 | |
| Potasyum fosfat monobazik | Sigma Aldrich | P9791 | |
| Potasyum fosfat dibazik | Sigma Aldrich | P5504 | |
| EDTA | Sigma Aldrich | E5134 | |
| Magnezyum klorür | Sigma Aldrich | M1028 | |
| Adenozin triposhpate (ATP) | Sigma Aldrich | A6419 | |
| L-glutatyon (GSH) | Sigma Aldrich | G4251 | |
| ECM 830 Elektroporasyon Sistemi | BTX | 45-0002 | |
| Elektroporasyon Küveti ve nbsp; 4 mm | Harvard Aparatı | 45-0126 | |
| Crytal Violet | Alfa Aesar | B21932-14 | |
| 6 kuyulu TC plakası | Corning | 353046 | |
| 24 kuyulu TC plakası | Corning | 353935 | |
| Kapak camı 12 mm yuvarlak | VWR International | 89015-724 | |
| 96 kuyulu TC plakası | Corning | 353075 | |
| Gibson Montaj Klonlama Kiti (Çok parçalı) | New England Biolabs | E5510S | |
| Q5 Yüksek Kaliteli Polimeraz | New England Biolabs | M0491S | |
| Pirimetamin | TCI AMERİKA | P2037-1G | Pirimetamine dirençli parazitler kullanırken kürasyon kullanın - Protokole bakın |
Kaynaklar
- Dubey, J. P. The history of Toxoplasma gondii--the first 100 years. J Eukaryot Microbiol. 55 (6), 467-475 (2008).
- Behnke, M. S., Khan, A., Sibley, L. D. Genetic Mapping Reveals that Sinefungin Resistance in Toxoplasma gondii Is Controlled by a Putative Amino Acid Transporter Locus That Can Be Used as a Negative Selectable Marker. Eukaryot Cell. 14 (2), 140-148 (2015).
- Dubey, J. P. History of the discovery of the life cycle of Toxoplasma gondii. Int J Parasitol. 39 (8), 877-882 (2009).
- Pfefferkorn, L. C., Pfefferkorn, E. R. Toxoplasma gondii: genetic recombination between drug resistant mutants. Exp Parasitol. 50 (3), 305-316 (1980).
- Donald, R. G., Roos, D. S. Insertional mutagenesis and marker rescue in a protozoan parasite: cloning of the uracil phosphoribosyltransferase locus from Toxoplasma gondii. Proc Natl Acad Sci U S A. 92 (12), 5749-5753 (1995).
- Sullivan, W. J. Jr Insertional tagging of at least two loci associated with resistance to adenine arabinoside in Toxoplasma gondii, and cloning of the adenosine kinase locus. Mol Biochem Parasitol. 103 (1), 1-14 (1999).
- Khan, A. Composite genome map and recombination parameters derived from three archetypal lineages of Toxoplasma gondii. Nucleic Acids Res. 33 (9), 2980-2992 (2005).
- Khan, A. NextGen sequencing reveals short double crossovers contribute disproportionately to genetic diversity in Toxoplasma gondii. BMC Genomics. 15 (1), 1168(2014).
- Shaik, J. S., Khan, A., Beverley, S. M., Sibley, L. REDHORSE-REcombination and Double crossover detection in Haploid Organisms using next-geneRation SEquencing data. BMC Genomics. 16 (1), 133(2015).
- Arends, D., Prins, P., Jansen, R. C., Broman, K. W. R/qtl: high-throughput multiple QTL mapping. Bioinformatics. 26 (23), 2990-2992 (2010).
- Langmead, B., Salzberg, S. L. Fast gapped-read alignment with Bowtie 2. Nat Methods. 9 (4), 357-359 (2012).
- Koboldt, D. C. VarScan 2: somatic mutation and copy number alteration discovery in cancer by exome sequencing. Genome Res. 22 (3), 568-576 (2012).
- Shen, B., Brown, K. M., Lee, T. D., Sibley, L. D. Efficient gene disruption in diverse strains of Toxoplasma gondii using CRISPR/CAS9. MBio. 5 (3), e01114(2014).
- Fox, B. A., Ristuccia, J. G., Gigley, J. P., Bzik, D. J. Efficient gene replacements in Toxoplasma gondii strains deficient for nonhomologous end joining. Eukaryot Cell. 8 (4), 520-529 (2009).
- Huynh, M. H., Carruthers, V. B. Tagging of endogenous genes in a Toxoplasma gondii strain lacking Ku80. Eukaryot Cell. 8 (4), 530-539 (2009).
- Wang, J. L. The Past, Present, and Future of Genetic Manipulation in Toxoplasma gondii. Trends Parasitol. , (2016).
- Sidik, S. M., Hackett, C. G., Tran, F., Westwood, N. J., Lourido, S. Efficient genome engineering of Toxoplasma gondii using CRISPR/Cas9. PLoS One. 9 (6), e100450(2014).
- Sugi, T., Kato, K., Weiss, L. M. An improved method for introducing site-directed point mutation into the Toxoplasma gondii genome using CRISPR/Cas9. Parasitol Int. , (2016).
- Behnke, M. S. Rhoptry Proteins ROP5 and ROP18 Are Major Murine Virulence Factors in Genetically Divergent South American Strains of Toxoplasma gondii. PLoS Genet. 11 (8), e1005434(2015).
- Barrangou, R. CRISPR provides acquired resistance against viruses in prokaryotes. Science. 315 (5819), 1709-1712 (2007).
- Garneau, J. E. The CRISPR/Cas bacterial immune system cleaves bacteriophage and plasmid DNA. Nature. 468, 67-71 (2010).
- Jinek, M. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Cong, L. Multiplex genome engineering using CRISPR/Cas systems. Science. 339 (6121), 819-823 (2013).
- Mali, P. RNA-guided human genome engineering via Cas9. Science. 339 (6121), 823-826 (2013).
- Jiang, F., Zhou, K., Ma, L., Gressel, S., Doudna, J. A. STRUCTURAL BIOLOGY. A Cas9-guide RNA complex preorganized for target DNA recognition. Science. 348 (6242), 1477-1481 (2015).
- Nishimasu, H. Crystal Structure of Staphylococcus aureus Cas9. Cell. 162 (5), 1113-1126 (2015).
- The R Project for Statistical Computing. , Available from: https://www.r-project.org (2016).
- Smith, R., Sheppard, K., DiPetrillo, K., Churchill, G. Quantitative trait locus analysis using J/qtl. Methods Mol Biol. 573, 175-188 (2009).
- The Churchill Group. , J/qtl. http://churchill.jax.org/software/jqtl.shtml (2013).
- Li, H. The Sequence Alignment/Map format and SAMtools. Bioinformatics. 25 (16), 2078-2079 (2009).
- Kurtz, S. Versatile and open software for comparing large genomes. Genome Biol. 5 (2), (2004).
- Gajria, B. ToxoDB: an integrated Toxoplasma gondii database resource. Nucleic Acids Res. 36 (Database issue), D553-D556 (2008).
- Heigwer, F., Kerr, G., Boutros, M. E-CRISP: fast CRISPR target site identification. Nat Methods. 11 (2), 122-123 (2014).
- Roos, D. S. Molecular genetic tools for the identification and analysis of drug targets in Toxoplasma gondii. Curr Top Microbiol Immunol. 219, 247-259 (1996).
- Soldati, D., Boothroyd, J. C. Transient transfection and expression in the obligate intracellular parasite Toxoplasma gondii. Science. 260 (5106), 349-352 (1993).
- Lander, E. S., Botstein, D. Mapping mendelian factors underlying quantitative traits using RFLP linkage maps. Genetics. 121 (1), 185-199 (1989).
- Saeij, J. P. Polymorphic secreted kinases are key virulence factors in toxoplasmosis. Science. 314 (5806), 1780-1783 (2006).
- Saeij, J. P. Toxoplasma co-opts host gene expression by injection of a polymorphic kinase homologue. Nature. 445 (7125), 324-327 (2007).
- Rosowski, E. E. Strain-specific activation of the NF-kappaB pathway by GRA15, a novel Toxoplasma gondii dense granule protein. J Exp Med. 208 (1), 195-212 (2011).
- Reese, M. L., Zeiner, G. M., Saeij, J. P., Boothroyd, J. C., Boyle, J. P. Polymorphic family of injected pseudokinases is paramount in Toxoplasma virulence. Proc Natl Acad Sci U S A. 108 (23), 9625-9630 (2011).
- Taylor, S. A secreted serine-threonine kinase determines virulence in the eukaryotic pathogen Toxoplasma gondii. Science. 314 (5806), 1776-1780 (2006).
- Behnke, M. S. Virulence differences in Toxoplasma mediated by amplification of a family of polymorphic pseudokinases. Proc Natl Acad Sci U S A. 108 (23), 9631-9636 (2011).
- Lorenzi, H. Local admixture of amplified and diversified secreted pathogenesis determinants shapes mosaic Toxoplasma gondii genomes. Nat Commun. 7, 10147(2016).
- Gubbels, M. J. Forward genetic analysis of the apicomplexan cell division cycle in Toxoplasma gondii. PLoS Pathog. 4 (2), e36(2008).
- Farrell, A. A DOC2 protein identified by mutational profiling is essential for apicomplexan parasite exocytosis. Science. 335 (6065), 218-221 (2012).
- Coleman, B. I., Gubbels, M. J. A genetic screen to isolate Toxoplasma gondii host-cell egress mutants. J Vis Exp. (60), (2012).
- Walwyn, O. Forward genetics screens using macrophages to identify Toxoplasma gondii genes important for resistance to IFN-gamma-dependent cell autonomous immunity. J Vis Exp. (97), (2015).
- Rugarabamu, G., Marq, J. B., Guerin, A., Lebrun, M., Soldati-Favre, D. Distinct contribution of Toxoplasma gondii rhomboid proteases 4 and 5 to micronemal protein protease 1 activity during invasion. Mol Microbiol. 97 (2), 244-262 (2015).
- Varberg, J. M., Padgett, L. R., Arrizabalaga, G., Sullivan, W. J. Jr TgATAT-Mediated alpha-Tubulin Acetylation Is Required for Division of the Protozoan Parasite Toxoplasma gondii. mSphere. 1 (1), (2016).
- Zheng, J., Jia, H., Zheng, Y. Knockout of leucine aminopeptidase in Toxoplasma gondii using CRISPR/Cas9. Int J Parasitol. 45 (2-3), 141-148 (2015).
- Long, S., Wang, Q., Sibley, L. D. Analysis of Noncanonical Calcium-Dependent Protein Kinases in Toxoplasma gondii by Targeted Gene Deletion Using CRISPR/Cas9. Infect Immun. 84 (5), 1262-1273 (2016).
- Wang, K. Identification of Novel O-Linked Glycosylated Toxoplasma Proteins by Vicia villosa Lectin Chromatography. PLoS One. 11 (3), e0150561(2016).
- Yang, M., Zheng, J., Jia, H., Song, M. Functional characterization of X-prolyl aminopeptidase from Toxoplasma gondii. Parasitology. , 1-7 (2016).
- Zhang, W. Analysis of the virulence determination mechanisms in a local Toxoplasma strain (T.gHB1) isolated from central China. Parasitol Res. , (2016).
Yeniden basım ve izinler
