Katı destekli, protein içermeyen, Çift fosfolipid bilayer membranlar (DLBM) karmaşık ve dinamik lipid nanotüp ağlara dönüştürülebilir ve endoplazmik retikulum 2D aşağıdan yukarıya modelleri olarak hizmet verebilir.
Yöntem makalesi
Kendiliğinden oluşumu ve endoplazmik retikulum için aşağıdan yukarıya Model olarak yapay Lipid nanotüp ağların düzenlenmesi
Bu makalede
Özet
Özet
Biz endoplazmik retikulum (ER) için bir tabandan tavana yapısal organel model oluşturmak için uygun bir yöntem mevcut. Model olan lipidik son derece yoğun nanotüpler oluşur, Morfoloji ve dinamikleri, ER anımsatan açısından. Ağlar için şeffaf bir Al2O3 substrat kalarak fosfolipid Çift Kişilik bilayer membran yamalar türetilir. Yapışma tarafından Ca2 + ortam arabellekte aracılık ettiği. Sonraki tükenmesi Ca2 + BAPTA/EDTA ile retraksiyon spontan lipid nanotüp ağ oluşumu sonucu membran, neden olur. Bu yöntem sadece fosfolipitler ve microfabricated yüzeyler için basit bir ER modeli oluşumu oluşur ve proteinler veya kimyasal enerji (Örneğin, GTP veya ATP) eklenmesi gerektirmez. De olsa (nanotüp boyutları, geometri, yapısı ve dinamikleri korunur) hücresel endoplazmik retikulum 3D morfolojisi aksine, iki boyutlu bir modeldir. Bu benzersiz vitro ER model sadece birkaç bileşenden oluşur, kolay oluşturmak ve bir ışık mikroskobunda görülebilir. Elde edilen yapısı daha da ER ilişkili proteinler veya taşıma olayları tüplerin arasında çalışmaya parçacıklar eklenmesi gibi ek işlevsellik için dekore edilebilir. Burada açıklanan yapay uygun yapısal modeller için benzersiz olan karakteristik morfoloji kanıtlanmıştır onun biyolojik işlevi için ilgili olarak ise ER, borulu etki alanı oluşumu ile ilgili detayları hücresel ağlardır ve düzenlemeler içinde hala tamamen anlaşılır. Bu yöntem hangi ticari mevcuttur ancak özel siparişler gerektirir Al2O3 ince film kaplı mikroskopi coverslips, kullandığına dikkat edin. Bu nedenle, bir microfabrication tesis hazırlanması için erişimi önerilir.
Giriş
Acil servis protein katlanması, lipit sentezi ve kalsiyum yönetmelik1,2de dahil olmak üzere biyolojik hücre içinde önemli görevler gerçekleştirir. ER morfoloji gerçekleştirdiği işlevler iç. Düzlemsel yığınları ve dinamik yoğun borulu etki, sürekli sitoiskeleti ile etkileşim ve sürekli hareket ve yeniden birleştirir. Bazı ER yapıları geçmesi remodeling düzlemsel çarşaf ve tüpler, vezikül oluşumu veya ER lümen, önceden varolan Tüp, tüp geri çekilmesi, füzyon ve kırılma3uzama fusion arasında sürekli dönüştürme içerir. Kendine özgü borulu ağların enerjik olumsuz yapısıdır. Henüz tam olarak anlayamadım4,5yolları ve acil servis oluşturur ve bu işlevi için ilgili ne kadar bu kuruluş de değil tutar mekanizmaları.
Bu homeostatik durumunu, kaybettiğinde ER ER stres, protein sentezi, misfolded proteinleri birikimi artış veya Ca2 + ve oksidatif dengesi değişiklikler kaynaklanan bir durum sonuçlanan arıza bilinmektedir. ER stres sırayla deformasyon organel doğal morfolojisi özellikle ağ organizasyon6,7rahatsız edici tarafından neden olur. Cevap olarak, hücre homeostatik bir duruma döndürmek için bir onarım mekanizması etkinleştirir. Hata tamir çeşitli metabolik ve dejeneratif hastalıklar Alzheimer hastalığı, tip 2 diyabet, Parkinson hastalığı, amyotrofik lateral skleroz ve birkaç diğerleri gibi7katkı ER indüklenen hücre apoptosis için yol açabilir, 8. Mevcut araştırma borulu ER ağlar organizasyonu hedefleyen ve çeşitli çalışmalarda ER vitro2başlamaktan üzerinde duruluyor. Birkaç mevcut modelleri2,9,10 proteinler başlatmak ve membran eğriliği3,11 korumak ve organel şeklini ulaşmak yardım gerektirir. Açıkça, bazı acil servisin temel yapısal ve kuruluş özellikleri ayna ve gelişmiş deneysel çalışmalar erişim sağlamak modeli büyük talep sistemlerdir.
Burada ER Morfoloji ve ilişkili işlevler4çalışma için temel bir platform sağlayan yordamlar ER, facile, protein/kimyasal enerji içermeyen, dinamik vitro manken hazırlanması için mevcut. Bu yöntemde, bir ER modeli içinde faiz moleküllerinin karmaşıklığı eklemek için entegre edilebilir yalnızca birkaç öğeler kullanarak bir aşağıdan yukarıya yaklaşımı ile imal edilmiştir. Ağ ER yapısı ve dinamikleri temsil eder. Ayrıca, ters çevrilebilir dönüştürme düzlemsel membran ve tüplerin arasında vezikül oluşumu tüpleri, tüp füzyon, sürgülü ve retraksiyon tüm görülebilir. Eksik olarak anlaşılır hücresel ER için aşağıdan yukarıya manken olarak hizmet ek olarak lipid rota bu protokol için açıklanan nanotüp ağlara kendinden montajlı nanofluidics, tek-molekül ve kolloid eğitim araştırmacılar için geçerli olabilir taşıma olayları, Marangoni akış ve diğer ilgili alanlarda. Bizim yönteminde kullanılan sadece moleküler yapı taşları fosfolipitler vardır. Protokol küçük laboratuvar çalışma ve temel donanım gerektirir ve ek öğeleri birleşme için erişilemez.
Protokol
1. fosfolipid vezikül süspansiyon hazırlanması
Not: tüm malzemeler için "temiz" Bu iletişim kuralı, iyice deiyonize su ile takip isopropanol ile yıka ve azot ile fırçayla anılacaktır. Genellikle hazırlık protokolleri desteklenen lipid filmleri katı yüzeyler üzerinde uygulanan kuvvetle asidik ajanlar (Piranha çözüm), oksitleyici ile cam yüzeylerde tedavisi Al2O3üzerinde gerçekleştirilmesi gerektiğini değil unutmayın-kaplı Uçak gemisi.
- Bir temiz 10 mL yuvarlak alt veya ters armut biçimli cam şişesi yerde: soya L-α phosphatidyl Kolin (PC, % 69 w/w), 1,2-dioleoyl-sn-glycero-3-phosphoethanolamine (uyuşturucu, % 30 w/w) ve lipid Birleşik fluorophore [Örneğin, Texas kırmızı 1,2 - seçim dihexadecanoyl-sn-glycero-3-phosphoethanolamine triethylammonium tuz (TR-DHPE, 1 g/g)] yılında kloroform; 3000 µg kloroform, 10 mg/mL nihai bir konsantrasyon içinde ortaya çıkan 300 µL lipidler, toplam miktarı için.
Not: temiz, cam, kloroform içeren bileşikler işlerken Politetrafloroetilen itici ile gaz geçirmez şırınga kullanın.
Dikkat: Kloroform toksik ve son derece geçici olduğunu ve her zaman ilişkili kişisel koruyucu ekipman ile bir duman başlık altında ele alınmalıdır. - Şişeye rotary evaporatör için bir tilt pozisyonla 45 °, bağlanmak ve 23 ° c 6 h düşük hava basıncı ile bir su banyosu içinde 24 devirde yavaş yavaş döndürmek ve tamamen kloroform kaldırmak. Baskı sağ 20 kPa her 2 dk adımlarla 20 kPa (150 Torr, % 80'i vakum) ulaşıncaya kadar rotasyon başlatma sonra azaltılması başlatın.
Not: Hazırlık gemi içinde tek tip kalınlık homojen lipit filmin oluşumu rotavap yordam için en önemli gerekliliktir. Lipid hazırlıklar rotasyon hızı, hızlı basınç değişiklikleri ve son basınç değeri duyarlı; Bu nedenle, kesinlikle yanı sıra son baskı ve rotasyon hızı yavaş azaltma adımları izleyin. Susuz lipid kek şişeye duvarda bir film olarak eşit olarak biçimlendirilmiş garanti için 45 ° eğim ile balonun getirin. Çok hızlı bir dönüş yol turbulences ve çok yavaş bir dönüş yol açar (yerçekimi nedeniyle) sıvı balonun altındaki kalın bir tabaka birikimi için. İşlem, bir çok inhomogenous lipid şişme sonraki gecede sırasında kitle de son sonication adıma yanıt veren üretilen ve ortaya çıkan kesirler farklı kompozisyonlar bulunmaktadır. Basınç ve saat yönteminde belirtilen Aralık içinde yavaş desolvation sağlar. Çözücü olarak kloroform ile hızlı basıncında düşüş, yüksek viskozite ve toplama ve düzensiz film yapma kabiliyeti ile sonuçlanan karışımı, aşağı çok soğur. 6 h uzun süre çözücü en geniş olabildiğince lipid malzeme üzerine sıvı Organik çözücü bölüme kaldırmak için önerilir. - 6 h sonra rotasyon durdurmak ve hava basıncı tekrar, yavaş yavaş, 20 kPa her 2 dakikada 100 kPa ulaşan kadar adımları artırmak. Şişeye döner buharlaştırıcı kaldırın ve PBS 3 mL ve gliserol 30 µL ekleyin. Yavaşça gliserol çözülmeye şişeye girdap. Bir hava geçirmez cam tıpa lipidler içeren şişeye mühürlemek için kullanın.
Not: Gliserol lipit filmin tam susuzluktan önlemek için kullanılır ve bilayer ayrılık12sağlar. Bu bileşik işlenmesini kolaylaştıran viskozite, azaltmak için kullanmadan önce ısıtılmış. Isıtılan gliserol hala hemen PBS arabellek ile karıştırın. Gliserol tamamen eriyene kadar yumuşak swirling gereklidir. - Şişeye 4 ° C'de rehidrasyon için gece ve lipid filmleri şişme buzdolabında saklayın.
- Ertesi gün, bir ultrasonik su banyosu oda sıcaklığında (RT, ~ 21 ° C) ve 35 kHz Frekans ile lipidler bir Tekdüzen, biraz bulanık lipid süspansiyon ulaşmak kadar solüsyon içeren temizleyicide.
Not: Etrafında Sonication almak 10-30 s. uzun süreli sonication (~ 1 dk) ısı üretir ve vezikül oluşumu için zararlıdır. - 1,1-1,5 verim veziküler yapıları iki tür içeren bir süspansiyon adımlar: multilamellar veziküller (MLV) ve dev unilamellar veziküller (şef) (resim 1A-1F).
- İçin depolama, lipid süspansiyon 30 microcentrifuge tüpler, toplam kullanarak 100 µL aliquots bölmek ve onları bir dondurucu-20 ° C'de depolayın
Not: Flash sıvı azot ile buz gibi gerekli ve kullanılmayan depolama önce değil. Protokol burada duraklatılmış. Lipid süspansiyonlar nedenleri lipid lizis uzun süreli 4 ° C buzdolabında bırakarak, membran kompozisyon miktarını etkiler.
2. yüzeylerde hazırlanması
Not: Aşağıdaki protokol ISO 14644-1 Standart belirtiminde ISO 8 olarak sınıflandırılmış bir temiz oda adlı gerçekleştirdi. Atom katman ifade (ALD) Al2O3 yüzeylerde imal için kullanılır. Belirtilen işlem parametreleri enstrüman bağımlıdır ve ekipman farklı modelleri arasında farklılık gösterebilir. Onlar süreci geliştirmek için ilk parametre olarak kullanılabilir.
- ALD Reaktör sıcaklığı 200 ° C'ye ayarla
- Örnek odası ile birlikte daha sonra referans yüzeyi olarak ifade kalınlığını belirlemek için ellipsometry tarafından kullanılacak bir silikon gofret içine cam yüzeyler (Örneğin, cam coverslips) yükleyin.
Not: Cam yüzeylerde kullanılan out-of--box olduğunu ve daha önce ifade solvent iyice temizlenmiş değildi. Onlar sadece parçacıkları kaldırmak için azot gazı ile sarf. - Yükleme odası 400'e tahliye Pa (3 torr) ve örnekleri ana tepki odanın içine aktarmak ve 200'e tahliye baba.
Not: Reaktör sıcaklığı uygun ifade için 200 ° C'de muhafaza edilmelidir. Örnek yükleme bu nedenle biriktirme işlemini başlatmadan önce equilibrated gerekir sonra sıcaklık derecesi fluctuations. Odası basınç reaktör basınç odası dışında yaymak için herhangi bir öncüleri önlemek için daha yüksek olacak şekilde ayarlanmıştır. - Atomik filmin yatırma başlatın. Ardından 1 s tasfiye ve daha sonra bir H2O pozlama 1 s tasfiye tarafından takip 200 ms süresinin bir 150 ms darbe trimetil alüminyum pozlama, bir döngü oluşur.
Not: tüm ayarları odası ve reaktör basınç da dahil olmak üzere, uzunluğu döngüleri ve temizler otomatik yükünün tanımlanmış bir oranı elde etmek için. Bu parametreler ekipman çeşitli modelleri arasında farklılık gösterebilir. Önceden yapılandırılmış tarifleri kez satıcı veya araç temiz oda sorumlu tarafından hazırlanan ve yatırılan film kalınlığı zaman biriminin başına olarak kullanıcıya iletilecektir. - 10 ulaşmak için nm Al2O3 substrat, 100 devredir işlemi yineleyin. Devir sayısı farklı yemek tarifleri veya ekipman arasında değişebilir ifade oranı bağlıdır.
- İlk delik onun basınç atmosferik basınç, ulaşıncaya kadar odası örnekleri reaktör kaldırmak için o zaman örnekleri kaldırın.
- Örnekleri RT, hava sıkı konteyner içinde kullanmak kadar saklamak.
Not: Daha fazla temizlik kullanmadan önce önerilir. Protokol burada duraklatılmış.
Not: Örnekleri ideal hemen ifade sonra kullanılmalıdır. En iyi depolama yüzeyler Polipropilen gofret taşıyıcılar, taşıyıcıları da azot temizlenen-önce vakum mühürleme için temiz oda uyumlu plastik torbalarda, zarflama tarafından takip içinde konumlandırma gerektirir. Hava kaynaklı kirleticiler yüzeye kullanılmasını önlemek için amaçtır. Gerekirse, yüzeyler maksimumda RT, hava sıkı konteyner içinde 5 gün boyunca saklanır. Daha uzun depolama tavsiye edilmez. İçin kullanıcı kim yakın, temiz oda kolay erişimi olmayan ve satın veya yurt dışından yüzeyler elde etmek, yüzeylerde oksijen plazma veya ozon tedavi yoluyla yeniden oksitleyici bir alternatif çözüm13olabilir.
3. dönüşüm borulu ağlara moleküler fosfolipid filmlerin
- Lipid süspansiyon çözülme ve 4 µL damlacık süspansiyon bir temiz cam mikroskop slayt/coverslip üzerine aktarın.
- 20 dk için damlacık yazılıolduğu. Damlacık lipidler daire dairesel bir film göze görünen kuruma sonra çökecek.
- Lipit filmin HEPES tampon 1 mL ile rehydrate ( Tablo malzemelerigörmek) 3 dk için.
Not: Daha sonra gözlem odasına aktarılır vezikül süspansiyon (veziküller birim hacim başına sayısı), yoğunluğu rehidrasyon arabellek hacmi etkiler. Gözlem odası ve istenen vezikül yoğunluğu hacmine bağlı olarak, rehidrasyon birim 0.5-1'e ayarlanan mL. Temiz borosilikat slaytlar birkaç yüz microliters damlacıkları kadar destek eğilimi sorunsuz 1.5 mL. Bu yana coverslip taşınması gerekli değildir, bu teknik bir sorun yol açmaz. SU-8 slaytlar, polimer kaplı gibi daha hidrofobik yüzeylerde bile 1.5 mL yatırılan12olabilir.
Not: pozlama için daha--dan 20 dk, RT rehydrated lipit filmin buharlaşma arabelleği ve kısmi bir kötü neden kompozisyon tanımlanan önceden rehydrated veziküller susuzluktan yol açar gibi lipidler taze, hazırlanmalıdır. - Gözlem odası hazırlamak: bir gözlem odası açık bir top ile arabellek değişimi için ER dönüşüm başlatmak için gerekli olan, bir otomatik pipet aracılığıyla izin vermek için kullanıldı. Bu odanın bir polydimethylsiloxane (PDMS) çerçeve 1.5 x 1.5 x 0.5 cm, Al2O3 tevdi coverslip yapıştırılır boyutları ile oluşur. Bir düzeni bağlı Gözlem odası Şekil 1' deGtemsil edilir. Aşağıdaki adımları PDMS çerçeve imal ve Gözlem odası bir araya gerçekleştirilmiştir:
- KOH çözüm ile isopropanol bir ölçek bir buz banyosu içinde 100 mL KOH 100 gr karıştırılarak hazır olun. 10 h veya daha uzun KOH bir manyetik karıştırıcı ve manyetik heyecan plaka kullanarak tamamen eriyene kadar karıştırın.
Dikkat: KOH çözüm aşındırıcı ve yanıklar deri, bu yüzden her zaman uygun kişisel koruyucu ekipman ile idare için açabilir.
Not: KOH çözünürlük isopropanol içinde su olduğu gibi yüksek değil. Çözünme ekzotermik. KOH parçaları eriterek ve sürekli karıştırma önce kırma tavsiye edilir. - Bir cam Petri kabına daldırın (d = 6 cm) KOH çözüm RT ve tutmak o gece.
- Ertesi gün, cam tabak çözümden kaldırmak, 5 min için deiyonize su ile bir kap içinde bırakın, su ile birkaç defa durulayın ve kısaca o kısmı sağlamak için azot akışı ile yüzey kurutma fırın içinde 1 h. darbe için 80 ° C'de yerleştirin Icles kaldırılır.
- Yüzey passivate ve bağ için PDMS önlemek, dimethyldichlorosilane 200 µL plastik şırıngayla ağırlık tekne gibi temiz plastik bir kaba aktarın.
- Cam Petri kabına 1 h için silane ile birlikte bir tahliye desiccator (düşük vakum, ~ 20 kPa) depolar.
Dikkat: Dimethyldichlorosilane zehirli ve her zaman ilişkili kişisel koruyucu ekipman ile bir duman başlık altında ele alınmalıdır. - 15 dk kabında dağılımı kalan dimethyldichlorosilane buharı için sipariş toplama önce bekleyin. Petri kabına şimdi silanized ve hidrofobik yüzeydir.
Not: Bu adım başarısını test etmek için hızlı bir şekilde su damlacığı silanized Petri kabına üzerine yerleştirmektir. Damlacık yüzeyi ile temas açısı gözle görülür işlenmemiş cam ile karşılaştırıldığında artırmak gerekir. - Bir 250 mL Plastik Konteyner (şeffaf plastik bardak paketten taze), silikon elastomer temel 10 g silikon elastomer kür Ajan (10:1) 1 g ile karıştırın. 5 min için bir plastik karıştırıcı/plastik spatula kullanarak karıştırın.
Not: Hava kabarcıkları karıştırma üzerine kurulur ve PDMS soluk beyaz bakacağız. - Tüm genişleyen hava kabarcıkları çökmüş kadar < 20 kPa degas karışımı yazılıolduğu (daha yüksek vakum süreci hızlandırır). Degassed karışımı silanized Petri kabına dökün.
- 65 ° c fırında 2 h için tedavi.
Not: > 95 ° c sıcaklık artırarak kür ve hızı iki katına mümkündür Artan kür sıcaklık artışı malzemenin sertlik oluşur. - Petri kabına RT için tedavi PDMS ile dolu sakin ve PDMS levha bir spatula ile kaldırın.
- Neşterle, boyutları ve geometrisi belgili tanımlık çerçevelemek içinde belgili tanımlık mikroskop sahne mevcut açılış için uygun kesti. 1.5 (uzunluk) x 1.5 (genişlik) x 0.5 (yükseklik) cm boyutlarında çoğu kurulumları için uygundur.
- Yumuşak tarafı (Petri dish ile temas oldu alt tarafı) getirmek PDMS çerçeve yüzey etkin yan temas Al2O3 filmin yer aldığı ve hafifçe itmek belgili tanımlık çerçevelemek ve birbirlerine karşı yüzey basınç uygulayın uygun olmaları için.
Not: Yapışma PDMS kare ve Al2O3 yüzey arasına zayıftır. Hava kabarcıkları iletişim arayüzü de-eki ve sonuç olarak, arabellek ve ilgili içeriğin kaçak neden. Hemen sonra ve önce her isopropanol ile durulanır kullanım izlediyseniz DI su ile durulama ve azot ile blow-drying PDMS çerçeve birkaç kez kullanılabilir. Petri kabına silanized da yeniden kullanılabilir.
- KOH çözüm ile isopropanol bir ölçek bir buz banyosu içinde 100 mL KOH 100 gr karıştırılarak hazır olun. 10 h veya daha uzun KOH bir manyetik karıştırıcı ve manyetik heyecan plaka kullanarak tamamen eriyene kadar karıştırın.
- Gözlem odası ile Ca2 +- HEPES tampon doldurun ( Tablo malzemelerigörmek).
Not: Yüzey hemen paket getirdiğin sonra kullanılmalıdır. Hava ile temas kirletici, adsorpsiyon için hangi faaliyetin yüzeyinin yavaş yavaş azalır yol açar. Odası hemen derleme sonra arabellek ile doldurulmuştur. Sonraki adımda rehydrated lipidler eklenmesi için izin vermek için tüm odası birim doldurmayın. - Sahne Alanı'na confocal mikroskop odası yerleştirin. Rehydrated lipid malzeme, şimdi bir plastik Pasteur pipet (Şekil 1A-1 G) odasına dev veziküller, içeren bir süspansiyon aktarın.
- Substrat uygun ve yüzey (Şekil 1H-1J) üzerinde yayılmış veziküller izin için 10-20 dk bekleyin.
Not: Yaymak lipidler yüzeyde birikimi hemen sonra başlar. Yayılma hızı biraz tazelik substrat ve divalent ba * konsantrasyon lipid bileşimi, Al2O3 ifade tekniği (ADL, RF Fışkırtması, kimyasal buhar biriktirme, vb), bağlı olarak farklı olabilir bir arabellek. Emin olun yaymak omuriliği14yamaları önce arabellek değişimi gerçekleştirilir. - Gözlemleyerek sonra birden çok lipid yayılır, yavaş yavaş kaldırmak bir otomatik pipet ile ortam arabellek yalnızca bir ince arabellek film altta kalır.
Not: Hızlı kaldırma-in tampon yüzeyindeki lipit yapılarının perturbs. - Ortam arabellek Exchange'e yavaş yavaş Gözlem odası ile şelatör HEPES tampon doldurarak devam ( Tablo malzemelerigörmek) kullanarak bir otomatik pipet (Şekil 1K).
Not: Arabellek ani ilavesi yüzeyindeki lipit yapılarının perturbs. - Bu son adım şelatör kaynaklı depinning ve DLBM MLV4 (resim 1L-1Y) geri çekilmesi sonucu oluşan dinamik nanotubular ağlar, verir.
4. mikroskobu gözlem
- Texas kırmızı DHPE, 595 heyecanlandırmak için bir beyaz ışık lazer kaynağı ters bir lazer confocal mikroskop 40 yağ (1.3 NA) daldırma amaç X 400 Hz. istihdam bir tarama sıklığı ile kullanarak tarama görüntüleri elde nm. Emisyon 605 toplamak için 700 nm bir melez foton dedektörü kullanarak.
Not: Alternatif olarak, bir epi-floresans mikroskobu görüntüleme için kullanılabilir. Işık kaynakları kullanılabilir bağlı olarak, uygun lipid-boya eşlenik seçin.
Sonuçlar
Protokolü'nün 1 adımda elde ve deneyler kullanılan lipid süspansiyon veziküller iki ana türü içerir: MLVs ve GUVs. Resim 1 A-1F lazer 3D inşa ilk örnekteki veziküller confocal filmler tarama gösterir. Resim 1 A-1_C bir MLV (lipid depozito) xyz, xz ve yz uçaklar, sırasıyla gösterir. Resim 1 D-1F benzer bir dev unilamellar vezikül (şef) görünümlerini gösterir. Multilamellarity eksikliği, GUVs iç kısmı boştur; Bu nedenle, yaymak için lipid malzeme belirgin bir biçimde sınırlıdır. Bu nedenle, bu yöntem yalnızca yararlı lipid rezervuar MLVs vardır.
Lipid süspansiyon Ca2 +- HEPES tampon (Şekil 1G) içeren gözlem odasına transfer edildiğinde, Al2O3 yüzeyinde yerleşmek MLVs (Şekil 1A-1_C) başlatın. Temas, üzerine veziküller yüzeye uygun ve dairesel bir düz çift lipid bilayer membran (DLBM) her MLV sağlam destek (Şekil 1H-1J) üzerine gelen yayılmaya başlar. MLV lipidler sürekli genişleyen DLBM için sağlar bir depo görevi görür. Distal (üst) bilayer membran göre sağlam destek haddeleme hareket (Şekil 1ben) gerçekleştirme dairesel kenar çevresi boyunca proksimal (alt) bilayer membran bağlıdır. Sadece ince bir sıvı film aralarında saklanmış olan iki bilayers duygusuzca birbirinin üstüne yerleştirilir. Distal membran yanal genişleyen proksimal membran Edge kenarlarında çekti iken yayma sırasında proksimal membran sürekli destek yüzey altında bağlı kalır. DLBM yayılan tarafından proksimal membran lipid baş gruplarından ve katı substrat4arasında bir fusogenic ajan olarak hareket eden Ca2 +, aracılık ettiği.
Yaymak için uzun süre devam ederse, membran yırtığı (Şekil 2A ve 2B) önde gelen artar, gerilim. Bu noktadan sonra ER borulu morfoloji oluşturmak gerekli olan membran retraksiyon artık bağlı. Bu nedenle, rüptüre membran tanımak önemlidir. Bizim deneylerde lipidler fluorescently etiketli beri rüptür doğrudan görülebilir. Rüptür bir anahtar düşüş rüptüre bölge (Şekil 2A ve 2B)14floresan yoğunluğu içinde göstergesidir. Rüptür artan gerginlik ve sonraki gözenek oluşumu distal zarda bir sonucudur. Floresan mikroskop altında rüptüre bölgeleri bu nedenle yarım emisyon yoğunluğu (tek proksimal bilayer) unruptured bölgeler (Çift Kişilik bilayer)14 (Şekil 2B) sergileyecek. Gözenek oluşumu sırasında başlangıçta rüptüre bölgeleri yerleştirildi, membran malzeme Yayilim yama kenarlarını geçirir. Bu sırayla genel yama çevrenin bir büyüme neden olur. Bu nedenle, dairesel yama kontur hızlı bir genişleme da parçalanma sırasında görülebilir.
Hemen dairesel düzeltme eki alan 100-200 µm ulaştıktan sonra yamalar, kopmalara önde gelen geniş büyüme önlemek için Ca2 +- HEPES tampon yavaşça bir otomatik pipet ile sıvı kalır yüzeyinde ince bir film kadar kaldırılır. Şelatör HEPES tampon sonra yavaşça geri çekilmesi (Şekil 1K) başlatmak için odasına eklenir. Örnek (Şekil 2C) tam bir susuzluktan veya arabellek (Şekil 2D ve 2E) hızlı alışverişi rahatsızlık, rüptür veya deformasyon düzeltme ekleri neden olur. Şelatörlerin ilavesi yavaş yavaş Ca2 + yüzey ve membran arasındaki boşluğu kaldırır. Şelatör HEPES tampon yavaş yavaş lipid membran yama çevre--dan başlayan arası bilayer yüzey alanı erişir. Bu nedenle, sabitleme siteleri kaldırılması dairesel yama kenarlarından başlar ve içe doğru yayar (Şekil 1K-1Ç). Depinning sonucu olarak, lipid membran bağlantısını kesin ve merkezi MLV doğru ilerliyor kenarları içe doğru gelen geri çekmek başlar. Geri çekme işleminin dinamik olarak lipidik borulu ağlar4 (resim 1L-1Y) geliştirme için yeni bir arabirimi açar. Önde gelen yüzey ve nucleate çizelgeleme membran tamamen ayırmak izin vermez, sabitleme, kalıcı bölgeler kalır uzun dallı nanotüpler ağının. (Şekil 1L-1Y). Sürekli de-sabitleme ve daha fazla lipid nanotüpler retraksiyon zamanla yavaş yavaş şelasyon işleminin sonucu olarak gözlenir. Bu coarsening ve yeniden ağ şube pürüzsüz ER benzer borulu ağlar dinamik davranışını önemli bir rol oynar.
Resim 1 L-1Y filmler iletişim kuralında elde nanotüp ağların gösterir. Resim 1 L beyaz çerçeve içinde resim 1M bölgede bir close-up işaretlenmiş olması. Sürekli parlak kırmızı bölgeler Şekil 1L ve 1 M ( Şekil 1Mmavi kesikli çizgi ile işaretlenmiş) DLBM geri kısmını vardır. Şekil 1N ve 1O borulu ağlarda test kontrastı arttırmak için ters. Resim 1 P ve 1Ç 3 saat 20 dk boyunca bir membran bölgesine borulu yoğunluk azalması gösteriyor. Borulu yoğunluk azalması kademeli DLBM retraksiyon tarafından yüzeyden deneysel süre boyunca takip depinning nedeniyle oluşur. Zaman içinde artar, düzenlemeler ve tüpler (Şekil 1P ve 1Q) tarafından bölgeyi bir azalma sabitleme serbest puan sayısı. Borulu düzenlemeler iki sabit nokta arasında askıya lipid Nanotüpün indirilmesi yüzey serbest enerji tarafından motive edilir. Nanotüpün yüzey enerji minimize en etkili yolu, uzunluğu15azaltmaktır köklü. Bu nedenle, başlangıçta nanotüpler yüzeyde tutun, fusogenic bölgeleri de-sabitlenmiş olduğunuzda nanotüpler slayt ve kendilerini kendiliğinden, minimum bir uzunluk benimseyerek düzenlemek. Bu düzenlemeler yüzey nanotüpler (Şekil 1P ve 1Q) tarafından yavaş yavaş azaltılmış bir kapsama neden.
Biz Ca2 +görselleştirmek olamaz-sabitleme noktalarını aracılı ama biz tüpler terminal veya keskin döner olduğu noktaları olarak konumlarını kurmak. Keskin turnike için V-kavşak15 veya dönüm noktaları tüp 's hizalama ( Şekil 1R ve 1 Xyeşil oklar) yönünü sudden shift nedeniyle denir. Son nokta ( Şekil 1Xturuncu oklar) geri çeker tüp engeller tüp terminus temsil eder. Yeniden yapılanma, "Y-kavşak" veya "3-yönlü kavşak" tanımlanan tüplerinin enerjik olumlu bırakma sırasında görünür. Y-kavşak üç tüpler yaklaşık 120 °'lik açılarla arasında nerede en kısa toplam üretim boyu güvenlik altına alınması her tüp ile bağlanır. Y-kavşak olan bir son nokta sahip olmayan ve bunun yerine birden çok nanotüpler arasında konumlandırılmış, sabitlenmiş değil. (Mavi oklar, Şekil 1R) sürgülü gerçekleştirebilirsiniz tek Y-birleşim türü budur. Şekil 1R ve 1Siçinde gösterildiği gibi Y kavşak boyunca iki bireysel Y-kavşak ( Şekil 1Smavi oklar) oluşumu son derece kararsız kavşak sonuçlarında, kayar. Şekil 1S üst üste kesikli beyaz çizgi resim 1Rborulu ağ parçasındaki kontur temsil eder. Y-kavşak bir kısmını olan, zaman içinde sonunda (Şekil 1U) geri sonunda terminalleri ( Şekil 1Tsarı ok) sahiptir. V-kavşak tek bir dönüşüm, Şekil 1V ve 1W ve düz tüp iki çizgi parçaları kesişim noktasını depinning ve retraksiyon birinin V şekli oluşturan tüpler tarafından görülebilir Şekil 1X ve 1Y, anılan sıraya göre.
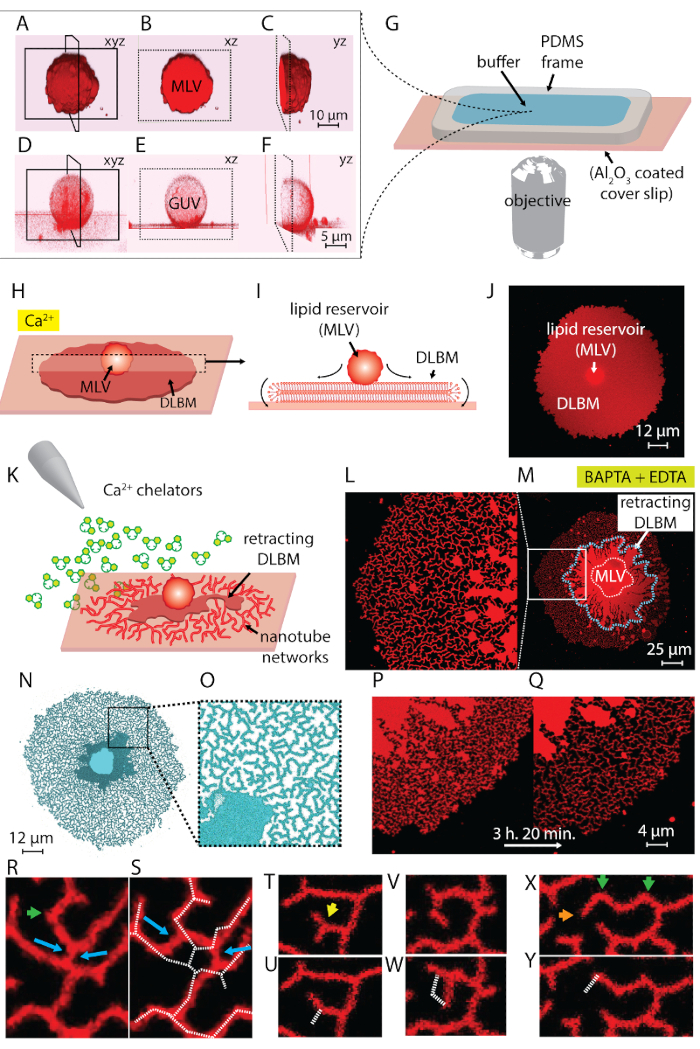
Resim 1 : Lipid dönüşümün mevduat ER benzeri borulu ağlara. (A-F) 3D inşa ilk örnekteki veziküller confocal filmler tarama lazer. (A-C) Multilamellar lipid vezikül (MLV, lipid depozito) xyz, xz ve yz uçak, anılan sıraya göre. (D-F) Bir dev unilamellar vezikül (şef) benzer görüşlerini. GUVs iç kısmı içi boş, hangi önemli ölçüde sınırlı yaymak için lipid malzeme yapan şeydir. Bu yöntemin yararlı lipid rezervuarlar bu nedenle üzerine tampon ve lipidler yatırılan bir ters mikroskobunun monte Gözlem odası çizimi MLVs. (G) vardır. Odası bir PDMS oluşan çerçeve bir açık cilt üst sağlayan bir Al2O3 kaplı coverslip, yapıştırılır. (H-J) Huzurunda Ca2 +MLV Yayilim olayların Illustration. (H) Al2O3kişiyle üzerine MLV kendiliğinden bir dairesel, Çift lipid bilayer membran (DLBM) şeklinde yayılır. (I) DLBM nerede haddeleme hareket çevrelerine gerçekleştirmek xz düzlemde şematik yan görünüm. MLV (d = 5-15 µm) ve DLBM (kalınlık = 10 nm) değil çizilir ölçek. (J) üst görünümden yayılan bir DLBM confocal bir test. (K) nerede arabellek Şelat Ajanlar, inhibe yaymak, DLBM retraksiyon MLV için neden ve lipid nanotüpler oluşumu için önde gelen bir içeren Ca2 + değiştirilir bu protokol ana adımı açıklamaktadır. (L-Y) Filmler açıklanan yöntemi ile elde edilen nanotüp ağlar. (L) (M) bölgede close-up bir çerçevede işaretlenmiş. Sürekli parlak kırmızı bölgeler (L ve M) temsil eden (Ayrıca M mavi tirelerden oluşan bir çizgiyle işaretli) DLBM. Borulu ağ (N ve O) test kontrastı arttırmak için ters. (P ve Q) Bir membran bölgesine 3 saat ve 20 dk. (R-Y) temsilcisi borulu yeniden düzenlenmelerini boyunca borulu yoğunluk azalması tasviri. (R ve S) Kayar, (T ve U) Y kavşak V-birleşim için bir son nokta ve (V ve W) de-sabitleme retraksiyon tarafından bir dönüm noktası geçiş, bir V-Kavşağı ortadan kaldırılması sonucu. (X ve Y) Bir son nokta retraksiyon. Bu rakam daha büyük bir versiyonunu görüntülemek için buraya tıklayınız.
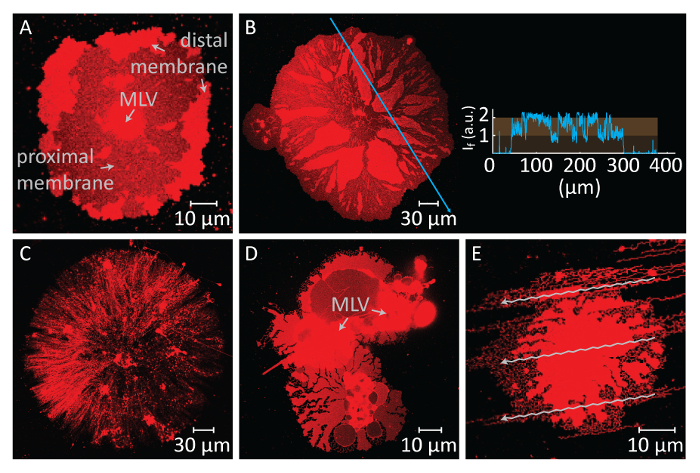
Resim 2 : Potansiyel negatif sonuç. (A ve B) Uzun nedeniyle distal membran rüptür arabellekleri değişimi önce bekleme süresi. Karanlık bölgeleri ile karşılaştırıldığında unruptured distal membran bölgeler olarak nerede proksimal membran görünür hale gelir, parçalanmış alanları görünür. İç metin paneline B üzerinde test boyunca mavi ok ışık yoğunluğunu gösterir. Rüptüre membran bölgelerinde yoğunluğu (proksimal/tek bilayer olur görünür) unruptured membran (distal kişilik bilayer) yarım yoğunluğunu karşılık gelir. (C) bir kuru lipid yama görünümünü tüm sıvı kaldırılması Gözlem odası üzerinden bir sonucu olarak kurdu. (D ve E) Membran arabellekleri üzerinden otomatik pipet hızlı alışverişi tarafından bozulma. (D), 2 MLVs, bir sigara-daire, deforme lipid yama için önde gelen MLV ayrılmıştır. (E), şelatör HEPES tampon güçlü enjeksiyon tarafından oluşturulan desen akış (oklar), tubulated membran yapısına yansımaktadır. Bu rakam daha büyük bir versiyonunu görüntülemek için buraya tıklayınız.
Tartışma
Aşağıdaki tartışmada, kritik adımlar, olası değişiklikler ve protokol sınırlamaları anlatılmaktadır. Verilen bu PDMS çerçeve Al2O3 yüzeyine yapışma özünde zayıf ilk kritik adım Gözlem odası uygun montaj olduğunu. Durumda, nereye belgili tanımlık çerçevelemek için belgili tanımlık substrate düzgün bağlı olmayan içerik gözlem odasından sızıntısı olacak ve denemeyi durdurmak için gelecek. Uygun engel ana faktörler sızdırmazlık yüzeyi ve çerçeve 1) bir eksikliği (yeniden kullanılan) PDMS çerçevesinde temizlik ve 2) zaman zaman çerçevesi ve substrat arasında entrapped kabarcıklar. Yeni hazırlanmış veya iyice temizlenmiş PDMS çerçeve kullanılmalıdır. Çerçeve önce ve ardından DI su ile durulama ve azot ile blow-drying isopropanol ile her kullanımdan sonra durulanır. Beri bir temiz oda ortamında fabrikasyon ve kadar kullanmak kapalı kaplarda muhafaza Al2O3 yüzeyler herhangi bir önceki temizlik gerektirmez. Al2O3amphoteric doğası gereği, bu şiddetle asidik veya temel çözümler maruz değil. Gözlem odası için diğer tasarımlar, bireysel Kur Erişilebilirlik bağlı olarak istihdam edilebilir. Önemli bu odası ücretsiz erişim için sıvı örnek üstünün açık ve çerçeve malzeme kullanılan çözümler ve örnekleri ile ilgili hareketsizlik bulunuyor. Bir birimden 0,5 1 ml karşılamak gibi odası boyutları da önemli bir faktördür. Kullanılan yüzeyler genellikle standart boyutlu coverslips (24 x 60 mm) olduğundan, Odası hacmi çoğunlukla çerçevenin kalınlığı tarafından belirlenir. Bilgimizi, çubukları örnek hacmi genellikle bu protokol için ele kalabileceği derinliği ve boyutu ile ticari olarak mevcut değildir. Bu nedenle fabrikasyon ayrıntılarını ve örnek odası çerçeveyi montajı için protokol bölümünde adadık.
Bu iletişim kuralı diğer kritik bir adımda arabellek alışverişidir. Bu değişimi gerçekleştirmek için gereken zamanlama Bu adımda bir mücadeledir. MLV Al2O3 yüzey ile temas üzerine yayılıyor anlık ve DLBM sürekli genişleme-onun parçalanma için deneme (Şekil 2A, B) sonlandırma yol açar. Bu nedenle yaymak sürekli izlenmeli ve arabellek Satım zamanında yapılması gerekiyor. Değişimi çok hızlı başlatma, membran yamalar bir en uygun boyutu (çapı 100-200 µm) ulaşmak için izin vermek için yayılma sonra gerçekleştirilmesi gereken değil. Öte yandan, sürekli yapışma yüzeyi parçalanma için yol yüksek membran gerginlik neden olur. Böylece, yaymak değil kesilirse tüm membran rüptürü sonunda yamalı. Bu boyut ve MLV iç yapısını ve lipidler erişilebilirliğini orada bağlıdır beri rüptür zamanlama her yama için farklıdır. Dolayısıyla, Döviz an en uygun boyutları ile un rüptüre yamalar tüm nüfusun çoğunluğu temsil bir timepoint organize edilmelidir. Kaldırma hızı ve ek arabellek arabellek Satım adımda başka bir mücadeledir. Bu ikame çok hızlı gerçekleştirme son membran yapılar (Şekil 2C-E) zararlı bir etkisi vardır. Yüzey üzerinde ince bir sıvı film çıkmadan Ca2 +- HEPES tampon aşırı çıkarma kurutulmuş ve geri dönüşümsüz deforme membran düzeltme ekleri (Şekil 2C) ile sonuçlanır. Bile uygun bir miktar sıvı yüzeyde korunur, ani şelatör HEPES tampon eklenmesiyle pertürbasyon membran yapıları da neden olur. Resim 2 D,E hydrodynamically kesintiye membran yamalar tipik görünümünü gösterir. Genel morfolojik bozulma (kalan alanlarda borulu düzenlemeler hala ortaya çıkaryani ) son yapıların dinamik özellikler mutlaka etkilemez. Bununla birlikte, deforme yapıları üzerinde malzeme dönüştürme gözlemlemek zor olur. Örneğin, Şekil 2' deD, hangi doğru MLV DLBM geri çeker yönünü belirlemek zor olurdu.
Bir olası değişiklik protokolü kullanılan lipid kompozisyon olduğunu. Ana odak noktası memeliler ER bileşiminde hakim ve16 Maya fosfolipitler olmuştur (e. g., phosphatidylcholine (PC), phosphatidylethanolamine (PE) ve phosphatidylinositol (PI). PC ve PI karışımları4kullanarak özgün deneyler yapıldı. Ve sonuçları sunulan, PC ve uyuşturucu karışımı ve PE bir türevi kullanıldı. Ancak, tüm rasgele lipit kompozisyonları bu protokolü ile elde edilen yapılar oluşturmak için bulundu. Deneysel olarak incelenen lipid karışımları birkaç dahil toplam kalp özü, soya fasulye özü kutup, E. coli özü kutup, stearoyl-2-hydroxy-sn-glycero-3-phosphoinositol (Lyso-PI) değişen oranları ile PC karışımları ve karışımları PC-PE-PI-Posphatidyl serin (PS) değişen oranlarda içinde. Borulu membran yapılar yüksek eğrilikleri sahip ve bireysel lipid molekülleri özel düzenleme gerektirir beri gözlemlenen fenomen lipid kompozisyon özgü olduğunu bekleniyor.
Bu protokol için uygulanan bir başka değişiklik yüzey imalat için yöntemidir. Burada, ALD Al2O3 kaplı coverslips imal etmek kullanıldı. Bu başlangıçta bildirilen ifade yönteminden4SAÇTIRMA reaktif farklıdır. Bu bir alternatif yüzey imalat yöntemi hala ER benzeri tubulation için yol açabilir gösterirken, bir önemli sınırlama yüzey malzemesi özgüllük gibi görünüyor. Yayılma modu ve yapışma gücü yüksek yüzey malzemesi elektrostatik etkileşimler, wettability, hydrophobicity ve yüzey pürüzlülüğü faktörlere etkileyen özellikleri bağlıdır. Al2O3 yüzeyler en iyi yapışma gücü sağlamak ve lipid filmleri her ikisi de yeterince güçlü bir kişilik lipid bilayer membran yaymak ve form borulu ağlara kaldırmadan Ca2 + iyonlarının ayırmak için ekleyebilirsiniz. Daha önce aynı deneyi bir çift lipid bilayer membran multilamellar veziküller yayıldı ama hiçbir borulu ağ oluşumu şelatörlerin17eklenmesi gözlendi SiO2, test ettik. De-eki ve tüp oluşumu sadece Al2O3 üzerinde gözlenen veya plazma Al18kazınmış. Araştırmalarımız ortaya böyle bir olay için önde gelen katkıda bulunan parametre zeta vardı hangi Al ve Al2O3 idi yakın sıfır (mV) yüzeyler, potansiyel ve SiO2 önemli ölçüde olumsuz. Borosilikat zeta potansiyel SiO219' a benzer; Bu nedenle, yapışma borosilikat lipid filmleri aynı derecede güçlü ve tedavi edilemez olduğunu. Aslında, borosilikat yüzeyler ile multilamellar lipid depo temas genellikle hemen rüptürü ve tek lipid bilayers20oluşumuna yol açar. Bu iletişim kuralı için gerekli Al2O3 yüzeyleri kolayca veya ticari olarak mevcut değildir. Onlar ancak, özel cam ve substrat üreticilerin özel sipariş olabilir. İnce film İmalat Ekipmanları ile temiz oda tesislerine erişim şiddetle tavsiye edilir.
Varolan aşağıdan yukarıya yöntemleri ER benzeri borulu ağları2,10 imal etmek giriş kimyasal enerjinin yanı sıra protein içerir (Örn., GTP ve ATP). Rapoport ve meslektaşları2 ER-ağlar oluşumu membran bükme proteinler acil serviste, mevcut fosfolipitler ve GTP ile karıştırılarak cam coverslips vitro bildirdi. Çalışması ile Bachand vd. 10 moleküler motorlar ve ATP enerji kaynağı olarak kullanarak dinamik böyle borulu ağlar nasıl oluşturulması göstermektedir. Sunulan bu protokolü membran proteinlerinin veya organik bileşikleri hidroliz için enerji gerektirmez. Katı substrat ve fosfolipitler yalnızca temel bileşenleridir. Arıtma ve proteinler çıkarımı gerekli değildir. Bu iletişim kuralı, bünye molekülleri kolaylığı açısından en temel ER modeli sağlar.
Soruşturma sistemi bireysel etkileri sağlar beri kurulan bu temel, lipid tabanlı ER, binayı havaya karmaşıklık ER ilişkili bileşenleri ekleyerek ilgi, modelidir. Gerçek ER ağlar, model tüplerde dinamik benzer. Konjugasyon için ve etiketli membran proteinlerinin veya borulu ağ genelinde floresan parçacıklar geçiş membran hareket yönü hakkında bilgi verebilir. Saklama ve floresan sıvı DLBM ve tüpler içinde dönüşümü ve olası bir eşleme intratubular içerik taşıma sırasında izleme başka bir odak noktası olarak hizmet verebilir. Son olarak, bu iletişim kuralı bir 3D pürüzsüz ER modeli doğru kaynaklanan 2D ER modeli arasında bir geçiş hidrojel mimarileri ağlarda encapsulation yoluyla kabul edilebilir.
Açıklamalar
Yazarlar ifşa gerek yok.
Teşekkürler
Biz Prof. Aldo Jesorka Chalmers Teknik Üniversitesi İsveç'dan el yazması onun çok değerli yorumlar için teşekkür ederim. Bu eser ile finansal destek Norveç Araştırma Konseyi (Forskningsrådet) proje desteği 274433, UIO elde mümkün yapıldı: Yaşam Bilimleri yakınsama çevre, İsveçli Araştırma Konseyi (Vetenskapsrådet) projesi hibe 2015-04561, Moleküler tıp Norveç & öğretim matematik ve Doğa Bilimleri, Oslo Üniversitesi Merkezi start-up finansman sağladığı gibi.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Armut biçimli şişe 10 mL | Lenz Laborglasinstrumente | 3.0314.13 | Lipit karışımının hazırlandığı |
| Hamilton 5 mL cam şırınga (P/N) | Hamilton | P/N81520 | Kloroformun behere aktarılması için |
| Özel büyük göbek iğnesi Ölçer 22 S | Hamilton | 7748-18 | Satır 3'te belirtilen şırınga için çıkarılabilir iğne |
| Hamilton 250 &mikro; L cam şırınga | Hamilton | 7639-01 | Kloroformdaki lipitlerin şişeye aktarılması için kullanılır |
| Büyük göbek Ölçer 22 S | Hamilton | 7780-03 | Şırınga için çıkarılabilir iğne belirtildi 5. sırada |
| Hamilton 50 &mikro; L cam şırınga | Hamilton | 7637-01 | Florofor konjuge lipidlerin şişeye aktarılması için kullanılır |
| Küçük göbek Ölçer 22 S | Hamilton | 7770-01 | Satır 7'de belirtilen şırınga için çıkarılabilir iğne |
| Kloroform susuz (≥ % 99) | Sigma-Aldrich | 288306 | Lipid karışımını toplam 300 & mikroya tamamlamak için kullanılır; L |
| Soya L-&alfa; Fosfatidil kolin lipid (Soya, PC) | Avanti Polar Lipids Inc | toplam bileşimin/karışımın %69'una katkıda bulunan 441601 fosfolipid türü | |
| 1,2-dioleoil-sn-glisero-3-fosfoetanolamin (DOPE) | Avanti Polar Lipids Inc, lipid | bileşiminin/karışımının %30'una katkıda bulunan 850725 fosfolipid türü | |
| L-&alfa; Fosfatidil inositol lipid (Soy PI) | Avanti Polar Lipids Inc | , | bileşiminin/karışımının %30'una katkıda bulunan alternatif fosfolipid türleri 840044 (orijinal makaleden Bilal ve Gö zen, Biyomalzeme Bilimi, 2017) |
| Teksas Kırmızısı 1,2-dihekzadekanoyl-sn-glisero-3-fosfoetanolamin, trietilamonyum tuzu (Texas Red DHPE) | Invitrogen (Thermo Fisher Scientific) | T1395MP | Floresan-lipid konjugat, lipit bileşiminin/karışımının %1'i |
| Dijital Kuru Banyolar/Blok Isıtıcılar | Thermo Fischer | 88870006 | Viskozitesini azaltmak için gliserolü ısıtmak |
| için Moleküler biyoloji için gliserol ( ≥ %99) | Sigma Life Science | G5516 | Lipid hazırlama için |
| PBS tamponu (pH = 7.8); Aşağıdaki malzemeler 17-21. sıralarda | Lipid süspansiyonunu hazırlamak için kullanılır | ||
| TRIZMA tabanı, birincil standart ve tampon (≥ %99) | Sigma Life Science | T1503 | PBS tamponu hazırlamak için kullanılır |
| Potasyum fosfat tribazik, reaktif sınıfı (≥ 98%) (K3< / sub>PO4< / sub>) | Sigma-Aldrich | P5629 | PBS tampon bileşeni |
| Magnezyum sülfat heptahidrat, BioUltra (≥ %99,5) KT (MgSO47H2O) | Sigma Life Science | 63138 | PBS tampon bileşeni |
| Potasyum fosfat monobazik, susuz, serbest akışlı, Redi-Dri, ACS (KH2PO4) | Sigma-Aldrich | 795488 | PBS tampon bileşeni |
| Etilendiamintetraasetik asit disodyum tuzu dihidrat ACS reaktifi, % 99.0-101.0 (Na2< / alt >EDTA) | Sigma-Aldrich | E4884 | PBS ve Şelator-HEPES tampon bileşeni |
| Ultrasonik temizleyici USC-TH | VWR | 142-0084 | Rehidratlı lipitlerin ultrasonikasyonu |
| Döner buharlaştırıcı ve nbsp; - Bü chi döner evaporatör Model R-200 | Sigma | Z626797 | Kloroformun buharlaştırılması için |
| Basınç ölçer - Vakum regülatörü IRV-100 | SMC | IRV10/20 | Lipid dehidrasyonu sırasında basınç değerini kontrol etmek için |
| HEPES tamponu (pH = 7.8); aşağıdaki bileşenler 26-27. sıralarda< / güçlü > | Lipitlerin rehidrasyonu için kullanılır. İçerik: Ultra saf deiyonize su içinde seyreltilmiş 100 m NaCl ile 10 mM HEPES | ||
| HEPES & ge; %99,5 (titrasyon) | Sigma Life Science | H3375 | HEPES tampon bileşeni |
| Moleküler biyoloji, DNaz, RNaz ve proteaz için sodyum klorür, hiçbiri tespit edilmedi, > %98 (titrasyon) (NaCl) | Sigma Life Science | S3014 | HEPES-tampon bileşeni |
| Kalsiyum-HEPES tamponu (pH = 7.8); aşağıdaki satır 29'da etkili bileşen | Lipitlerin yayılması için kullanılır. İçerik: 10 mM HEPES, 100 mM NaCl, 4 mM CaCl2 ultra saf deiyonize suda seyreltilmiş | ||
| Kalsiyum klorür susuz, BioReagent, böcek hücre kültürü için uygun, bitki hücre kültürü için uygun, & %96,0 (CaCl2) | Sigma Life Science | C5670 | Kalsiyum-HEPES tamponu |
| Şelator-HEPES tamponu (pH = 7.8) hazırlamak için; aşağıdaki 31. satırda etkili bileşen | Boru şeklindeki ağların oluşumunu teşvik etmek için kullanılır. İçerik: 10 mM HEPES, 100 mM NaCl, 10 mM EDTA ve 7 mM BAPTA ultra saf deiyonize su içinde seyreltilmiş | ||
| 1,2-Bis (2-aminofenoksi) etan-N, N, N ve asal;, N ve asal;-tetraasetik asit tetrasodyum tuzu ve ge; %95 (HPLC) (BAPTA-Na4) | Sigma Life Science | 14513 | Şelator-HEPES tampon bileşeni |
| Sodyum Hidroksit | Sigma | 30620 | Tamponların pH değerini ayarlamak için kullanılan temel çözelti |
| pH metre accumet & trade; AE150 pH | Fisher Scientific | 1544693 | Tüm tamponların pH değerini ölçmek için kullanılır |
| Cam petri kabı | VWR | HECH41042012 | 6 cm, PDMS levhasını yapmak için kullanılır |
| Potasyum hidroksit ACS reaktifi, & ge; %85, peletler (KOH) | Sigma-Aldrich | 221473 | PDMS tabakasının imalatı için cam petri kabını temizlemek için KOH solüsyonunu yapmak için |
| İzopropanol prima ren %99,5 | Antibac AS | 600079 | KOH solüsyonu bileşeni |
| Isıtma ve kurutma fırını - venticell | MMM Medcenter Einrichtungen GmbH | MC000714 | Silanizasyondan sonra cam petri kabının kurutulması ve PDMS |
| Diklorodimetilsilan & ge'nin kürlenmesi için; %99,5 | Sigma-Aldrich | 440272 | PDMS levhasının hazırlandığı cam petri kabının silanizasyonu için kullanılır |
| Vakum pompası | Cole-Parmer | EW-79202-05 | Kurutucuya bağlı |
| Sylgard 184 silikon elastomer kürleme maddesi | Dow corning | 24236-10 | PDMS çözeltisi yapmak için kit |
| Sylgard 184 Silikon elastomer taban | |||
| Tek kullanımlık neşter | Swann-Morton | 11798343 | PDMS |
| Kapak fişlerini | Menzel -Glä ser | MEZ102460 | 24x60 mm. Al2< / sub>O3< / sub> ince film biriktirmek için kullanılır |
| Atomik katman biriktirme sistemi | Beneq | TFS200 (model numarası) | Mikroskop kapak camında Al2< / sub<>Osub>3< / sub> ince film biriktirmek için kullanılır |
| Elipsometre ve nbsp; | J.A. Woollan A.Ş. | Alpha-SE (model adı) | Cam yüzeyde biriken filmin kalınlığını ölçmek için kullanılan sistem |
| Lazer taramalı konfokal mikroskop | Deneyin görselleştirilmesi için kullanılan | Leica Microsystems | Leica TCS SP8 X |
| Objektif 40x, 1.3 NA | Leica Microsystems | 1550635 | Deneyin görselleştirilmesi için kullanılır |
| Beyaz ışık lazer kaynağı | Leica Microsystems Leica | TCS SP8 X | Membran floroforunun uyarılması için |
Kaynaklar
- Chen, S., Novick, P., Ferro-Novick, S. ER structure and function. Current Opinion in Cell Biology. 25 (4), 428-433 (2013).
- Powers, R. E., Wang, S., Liu, T. Y., Rapoport, T. A. Reconstitution of the tubular endoplasmic reticulum network with purified components. Nature. 543 (7644), 257-260 (2017).
- Pendin, D., McNew, J. A., Daga, A. Balancing ER dynamics: Shaping, bending, severing, and mending membranes. Current Opinion in Cell Biology. 23 (4), 435-442 (2011).
- Bilal, T., Gözen, I. Formation and dynamics of endoplasmic reticulum-like lipid nanotube networks. Biomaterials Science. 5 (7), 1256-1264 (2017).
- Shibata, Y., et al. Mechanisms determining the morphology of the peripheral ER. Cell. 143 (5), 774-788 (2010).
- Ozcan, L., Tabas, I. Role of endoplasmic reticulum stress in metabolic disease and other disorders. Annual Review of Medicine. 63, 317-328 (2012).
- Yamanaka, T., Nukina, N. ER dynamics and derangement in neurological diseases. Frontiers in Neuroscience. 12, (2018).
- Taalab, Y. M., et al. Mechanisms of disordered neurodegenerative function: Concepts and facts about the different roles of the protein kinase RNA-like endoplasmic reticulum kinase (PERK). Reviews in the Neurosciences. , (2018).
- Shemesh, T., et al. A model for the generation and interconversion of ER morphologies. Proceedings of the National Academy of Sciences of the United States of America. 111 (49), 5243-5251 (2014).
- Bouxsein, N. F., Carroll-Portillo, A., Bachand, M., Sasaki, D. Y., Bachand, G. D. A continuous network of lipid nanotubes fabricated from the gliding motility of kinesin powered microtubule filaments. Langmuir. 29 (9), 2992-2999 (2013).
- Sackmann, E. Endoplasmatic reticulum shaping by generic mechanisms and protein-induced spontaneous curvature. Advances in Colloid and Interface Science. 208, 153-160 (2014).
- Jesorka, A., et al. Generation of phospholipid vesicle-nanotube networks and transport of molecules therein. Nature Protocols. 6, 791(2011).
- Hook, D. A., Olhausen, J. A., Krim, J., Dugger, M. T. Evaluation of Oxygen Plasma and UV Ozone Methods for Cleaning of Occluded Areas in MEMS Devices. Journal of Microelectromechanical Systems. 19 (6), 1292-1298 (2010).
- Gözen, I., et al. Fractal avalanche ruptures in biological membranes. Nature Materials. 9 (11), 908-912 (2010).
- Lobovkina, T., Dommersnes, P., Joanny, J. -F., Hurtig, J., Orwar, O. Zipper Dynamics of Surfactant Nanotube Y Junctions. Phys Rev Lett. 97, (2006).
- van Meer, G., Voelker, D. R., Feigenson, G. W. Membrane lipids: where they are and how they behave. Nature Reviews Molecular Cell Biology. 9 (2), 112-124 (2008).
- Gözen, I., et al. Repair of large area pores in supported double bilayers. Soft Matter. 9 (10), 2787-2792 (2013).
- Gözen, I., et al. Thermal migration of molecular lipid films as a contactless fabrication strategy for lipid nanotube networks. Lab on a Chip. 13 (19), 3822-3826 (2013).
- Sides, P. J., Hoggard, J. D. Measurement of the Zeta Potential of Planar Solid Surfaces by Means of a Rotating Disk. Langmuir. 20 (26), 11493-11498 (2004).
- Nissen, J., Jacobs, K., Rädler, J. O. Interface Dynamics of Lipid Membrane Spreading on Solid Surfaces. Physical Review Letters. 86 (9), 1904-1907 (2001).
Yeniden basım ve izinler
