Burada açıklanan hepatit E virüsü (HEV) yüksek viral titresi üretmek için nasıl etkili bir yöntemdir verimli hepatoma hücreleri enfekte etmektir. Sunulan yöntemle, hem zarfsız, hem de zarflı viral parçacıklar hasat edilebilir ve çeşitli hücre hatları aşılamak için kullanılabilir.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Yöntem makalesi
Yüksek Titer Hepatit E Virüs Stokları Üretmek için Bir Hücre Kültürü Modeli
* These authors contributed equally
Bu makalede
Özet
Özet
Hepatit E virüsü karaciğer sirozu ve karaciğer yetmezliğinin önde gelen nedenidir ve dünya çapında yaygınlığı artmaktadır. Tek iplikçikli RNA virüsü ağırlıklı olarak kan transfüzyonu, yetersiz sıhhi koşullar ve kontamine gıda ürünleri ile bulaşır. Bugüne kadar off-label ilaç ribavirin (RBV) birçok hasta için tercih edilen tedavi yöntemidir. Bununla birlikte, belirli bir HEV tedavisi tespit edilmeyi sürdürebilir. Şimdiye kadar, HEV yaşam döngüsü ve patogenez hakkında bilgi ciddi verimli bir HEV hücre kültür sisteminin eksikliği nedeniyle engel olmuştur. Güçlü bir hücre kültür sistemi de viral patogenez içeren viral yaşam döngüsünün çalışma için gereklidir. Burada açıklanan yöntemle 3 x 10⁶ odak şekillendirme ünitesi/mL(FFU/mL) zarfsız HEV ve 5 x 10⁴ FFU/mL'ye kadar zarflı HEV viral titreler üretilebilir. Bu parçacıkları kullanarak, birincil hücreler ve insan da dahil olmak üzere çeşitli kökenlerden gelen hücrelerin çeşitli enfekte etmek mümkündür, yanı sıra hayvan hücre hatları. Plazmidlerden enfeksiyöz HEV partiküllerinin üretimi sonsuz bir kaynak oluşturur ve bu da protokolü son derece verimli hale getirir.
Giriş
Hepatit E, dünya çapında yaygınlığı artan oldukça hafife alınmış bir hastalıktır. Yaklaşık 20 milyon enfeksiyon yılda 70.000'den fazla ölümle sonuçlanır1. Altta yatan ajan, Hepatit E virüsü (HEV), yakın zamanda yeniden atandı ve şimdi cins Orthohepevirus ve Piscihepevirus dahil olmak üzere aile Hepeviridae içinde sınıflandırılır. Çeşitli kökenlerden HEV insanlar, domuz, tavşan, sıçan, kuş ve diğer memeliler 2 izole de dahil olmak üzere orthohepevirus A-D türleri içindesınıflanır. Şu anda, sekiz farklı genotip (GT) pozitif odaklı, tek iplikçikli RNA virüsü tespit edilmiştir2. Dizikimlikleri, iletim yolları ve coğrafi dağılımları farklılık belirtse ler de genomik yapıları son derece korunmuştur. Daha spesifik olan 7.2 kbp HEV genomu 3 ana açık okuma çerçevesine (ORF1-3) ayrılmıştır. ORF1 konak hücre içinde başarılı bir çoğaltma için gerekli tüm enzimleri kodlarken, ORF2 capsid proteinini kodlar ve ORF3 proteini enfeksiyöz partiküllerin toplanması ve serbest bırakılması için gerekli olan işlevsel bir iyon kanalı olarak çalışır3. Bir kez bazal veya apikal lümen HEV içine yayımlanan her iki, yarı ve zarflı olmayan / çıplak türler virüs kan veya dışkı, sırasıyla4,5kaynaklı olup olmadığına bağlı olarak var .
GT1 ve GT2 daha çok gelişmekte olan ülkelerde bulunurken, sadece dışkı-oral yol ileinsanlara 6 bulaştıran, GT3, GT4 ve GT7 ağırlıklı olarak gelişmiş ülkelerde meydana1,7 rezervuarlar olarak hizmet veren türlerin çeşitliile,örneğin, domuz8, sıçan9, tavuk10,11, geyik12, firavun faresi13, yarasa14, tavşan15,16, yaban domuzu17 ve daha birçok7,18,19, zoonoz kanıt sağlayan7,20,21,22. Yetersiz sıhhi koşullara ek olarak23 ve kontamine gıda ürünleri12,24,25,26, kan transfüzyonu ve organ nakli ile iletim demümkündür 27,28. HEV karaciğer sirozu ve karaciğer yetmezliği nin sık görülen bir nedenidir29 özellikle önceden var olan karaciğer hastalığı olan hastalarda, bağışıklık sistemi zayıf bireylerde (genotip 3, 4 ve 7) ve gebe kadınlarda (genotip 1). Not, hematopoetik hastalık30gibi ekstrahepatik belirtileri de vardır30 ,31,32, nörolojik bozukluklar33 ve böbrek hasarı34.
Bugüne kadar, off-label ilaç ribavirin (RBV) birçok enfekte hastalar için tercih edilen tedavi35,36. Ancak, tedavi başarısızlığı ve kötü klinik uzun vadeli sonuçlar vakaları bildirilmiştir. Tedavi yetmezliği viral mutagenez ve kronik enfekte hastalarda artmış viral heterojenite ile bağlantılı olmuştur37,38,39. Aksine, yakın zamanda yapılan bir Avrupa retrospektif çok merkezli çalışma da polimeraz mutasyonlarını RBV tedavi yetmezliği40ile ilişkilendiremedi. Klinik gözlemler ve in vitro deneylerde, interferon41,42,43, sofosbuvir44,45, çinko tuzları 46 ve silvestrol47 47,48 de antiviral etkileri göstermiştir. Bununla birlikte, hev yaşam döngüsü ve patogenezi hakkında bilgi eksikliği engel, belirli bir HEV tedavisi bulunabilir kalır. Bu nedenle, virolojik çalışmalar ve yeni antiviral ilaçların geliştirilmesi için sağlam bir hücre kültür sistemi acilen ihtiyaç vardır49.
Ne yazık ki, diğer hepatit virüsleri gibi, HEV konvansiyonel hücre hatlarında yaymak zordur ve genellikle çok yavaş düşük viral yüklere yol ileir. Yine de, bazı gruplar hücre hattı subklonlar üretimi tarafından viral yükleri artırmak başardık50 veya medya takviyeleri ayarı51. Son zamanlarda cDNA klonlar üretimi52 ve primer hastanın adaptasyon geçerek izole53,54 hücre kültüründe daha iyi HEV yayılımı55. Bu protokolde, kernow-C1 suş adapte bir hücre kültürünün genomu kullanılan (p6_WT olarak anılacaktır)54 ve bir mutant suş bir çoğaltma arttırıcı mutasyon barındıran (p6_G1634R olarak anılacaktır)37. Kernow-C1 HEV hücre kültüründe en sık kullanılan suşudur ve yüksek viral yükler üretebilme yeteneğine sahiptir. Viral RNA kopya sayıları değerlendirilerek, HEV replikasyonu in vitro olarak izlenebilir. Bununla birlikte, bu teknikler üretilen enfeksiyöz partikül sayısının değerlendirilmesini izin vermez. Bu nedenle Odak Şekillendirme Birimlerini (FFU/mL) belirlemek için immünoresans boyama sistemi kurduk.
Burada açıklanan yöntem56 birincil hücreler ve memeli hücre hatları da dahil olmak üzere çeşitli kökenlerden hücre türleri çeşitli enfekte yeteneğine sahip tam uzunlukta bulaşıcı viral parçacıklar üretmek için kullanılabilir. Bu HEV enfeksiyonu ve tropizm önemli yönlerini deşifre etmek için temel bir ön koşuldur. Genellikle sınırlı hasta izole ile aşılama için gerek yoktur. Plazmidlerden enfeksiyöz HEV partiküllerinin üretimi sonsuz bir kaynak oluşturur ve bu da protokolü nispeten verimli kılar. Buna ek olarak, bu sistem in vivo tanımlanan genom değişimi ve HEV replikasyon ve fitness üzerindeki etkileri çalışma sağlayan ters genetik için kullanılabilir. Bu teknik birçok sınırlamanın üstesinden gelmekte ve ilaç gelişimi, mutagenez çalışmaları ve kısıtlama veya giriş faktörleri gibi virüs-konak etkileşimlerinin değerlendirilmesi için yol olabilir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Protokol
NOT: Tüm deneyler BSL-2 koşulu altında gerçekleştirilir. Hepatit E virüsü RNA veya enfeksiyöz virüs ile temas eden tüm malzemeler, imha edilmeden önce kaputun içindeki bir atık kabından %4 Kohrsolin FF ile düzgün bir şekilde durulanmalıdır.
1. Plazmid hazırlığı
- Dönüştürülmüş Escherichia coli JM109 ile 100 μg/mL ampisilin içeren 200 mL LB orta tam uzunlukta HEV gt3 Kernow-C1p6 dizisi için plazmid kodlama içeren (pBluescript_SK_HEVp6 [JQ679013]54 veya pBluescript_SK_HEVp6-G1634R37). 37 °C'de 16 saat boyunca kalıcı ajitasyon altında (170 rpm) kuluçka.
NOT: Plazmid izolasyonu plazmid ekstraksiyon kiti kullanılarak gerçekleştirilmiştir (bkz. Malzeme Tablosu). - Üretim protokolünü takiben, 10 dk için 6.000 x g ve 4 °C'de 200 mL gece kültürü aşağı çevirin ve supernatant atın. Bakteriyel pelet dondurulabilir ve -20 °C'de saklanabilir.
- 10 mL serolojik pipet ve bir pipet adam ile yukarı ve aşağı pipetleme tarafından Resuspension tampon 4 mL bakteriyel pelet resuspend. Ayrıca, girdap titizlikle.
- Önceden ısıtılmış Lysis tampon (30-40 °C) 4 mL ekleyin. Birkaç kez hafifçe ters çevirin ve oda sıcaklığında kuluçka (RT) için 5 dakika.
- Nötralizasyon arabelleği 4,8 mL ekleyin, nazikçe ters çevirin ve lysate'nin niceliksel olarak nötralize olduğundan emin olun (üreticinin açıklamasına bakın). Sonra 11.000 x g ve 4 °C'de 20 dk santrifüj.
- 1 mL filtre olmayan ucuiçine 2 cm x 2 cm mull parça yerleştirin, yük yeniden askıya alınmış, lysed ve nötralize supernatant içinde 10 mL serolojik pipet, serolojik pipet ucuna mull ile 1 mL ucu ekleyin ve yeni bir 50 mL tüp içinde supernatant filtre.
NOT: Supernatant gerekirse 4 °C'de 30 dk'ya kadar saklanabilir. - Birkaç adımda filtrelenmiş süpernatantın 750 μL'sini toplam 4 filtre sütununa (kitte sağlanan) ve 30 s için 11.000 x g'de santrifüj uygulayın.
- Her filtre sütununa 500 μL önceden ısıtılmış (50 °C) ile iki kez yıkayın tampon AW'yi 11.000 x g'de 30 s'de yıkayın ve daha sonra akıştan geçen leri atın.
- Her filtre sütununu 600 μL yıkama tamponu A4 ile 30 s için 11.000 x g'de santrifüj ederek yıkayın. x g
- Her filtre sütunundaki plazmid DNA'sını, filtre sütunlarının ortasına 60 μL'lik elüsyon tamponu aktararak eute. 1 dk RT ve santrifüj 1 dk için 1 11.000 x g inkübat.
- Eluatları birleştirin ve spektrofotometre kullanarak çıkarılan plazmid DNA konsantrasyonu ölçün.
2. Doğrusallaştırma ve DNA arınması

Şekil 1: Plazmid lineerizasyonu ve DNA arınması için şematik deneysel kurulum. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
NOT: Doğrusallaştırma in vitro transkripsiyon sırasında RNA verimini artırır (adım 3)
- Plazmid DNA'sını doğrusallaştırmak için(Şekil 1) şablon DNA'sının 10 μg'ını (adım 1'de çıkarılan), tamponun 10 μL'sini, 2 μL'lik MluI'yi karıştırın ve H2O ile 100°L'lik bir hacme ayarlayın.
- 37 °C'de 1 saat kuluçka ve plazmidin agarose jel elektroforezi ile doğrusallaştırılmasını onaylayın (örneğin, sindirilmemiş ve sindirilmiş plazmid DNA'sını [her biri 1 μL] %1 agarose jel üzerinde ve 120 V sabit akımda elektroforez çalıştırın).
- Üreticilerin DNA çıkarma protokolüne (bkz. Malzeme Tablosu, Şekil 1), kitte sağlanan 500 μL Bağlayıcı tamponu 100 μL doğrusaldna ile karıştırın. Örneği bir filtre sütununa uygulayın ve 30 s için 17.800 x g'de santrifüj uygulayın.
- Filtre sütununu 17.800 x g'de 650 μL Yıkama tamponu ve santrifüj ekleyerek yıkayın. Artık Yıkama tamponu kaldırmak için, 60 s için 17.800 x g kuru santrifüj ve temiz bir 1.5 mL mikrosantrifüj tüp daha sonra her filtre sütunu yerleştirin.
- Önceden ısıtılmış 60 μL H2O (PCR sınıfı, 70 °C) filtrenin merkezine aktarılarak DNA'yı eleyin. 70 °C'de 1 dk, 1 dk.18.000 x g'da santrifüj için kuluçka.
NOT: DNA'yı in vitro transkripsiyona kadar -20 °C'de saklayın.
3. Tam uzunlukta HEV genotip 3 p6 DNA ve RNA saflaştırmainin in-vitro transkripsiyonu
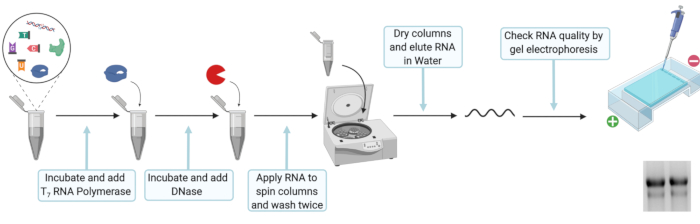
Şekil 2: In vitro transkripsiyon ve RNA arınması için şematik deneysel kurulum. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
NOT: Plazmid DNA'sından viral genomik RNA üretmek için in vitro transkripsiyon gereklidir.
- In vitro transkripsiyon karışımı için 20 μL 5x T7 transkripsiyon tampon, 10 mM DTT, 100 U ribonükleaz inhibitörü, 25 mM ATP, CTP ve UTP, 12.5 mM GTP, 5 mM Ribo m7G Cap Analog, 2 μg doğrusaldna şablonu ve 80 U T7 RNA polimeraz. 100 μL'ye kadar nükleaz içermeyen H2O ile doldurun, iyice karıştırın ve 37 °C'de 2 saat kuluçkaya yatırın.
NOT: -20 °C'de kısa süreli depolama 3.1 ila 3.1.2 adımdan sonra mümkündür.- 2 μL T7 RNA polimeraz ekleyin, iyice karıştırın ve 37 °C'de 2 saat daha kuluçkaya yatırın.
- İlk DNA şablonu sindirmek için 7,5 μL DNase (RNase ücretsiz, 1 U/μL) ekleyin, iyi karıştırın ve 30 dakika 37 °C'de kuluçkaya yatırın.
NOT: Bozulmayı önlemek için RNA ile çalışırken tüm yüzeyleri ve pipetleri RNa için yüzey dekontaminantı ile temizleyin. Ayrıca, tüm reaksiyon tüpleri RNase içermeyen ve steril olduğundan emin olun. Sadece filtrelerle ipuçları kullanın ve sadece RNase içermeyen ve steril su ile seyreltin.
- RNA ekstraksiyonu için üretim protokolüne (Bkz. Malzeme Tablosu, Şekil 2), her in-vitro transkripsiyon reaksiyonu için 330 μL Lysis tamponu ve 330 μL'lik 100 etanol karıştırılarak Lysis tamponunun ve 0 etanolün premiksini hazırlayın. 110 μL RNA ve girdap için 660 μL Lysis tampon-etanol premixini ekleyin. Numuneyi bir filtre sütununa yükleyin ve 30 s için 8000 x g'de santrifüj yükleyin.
- 30 s için 8000 x g'de 600 μL Yıkama tamponu ve santrifüj ekleyin. Kalan yıkama tamponu kaldırmak için 2 dakika için 8000 x g de Yıkama tampon ve santrifüj 350 μL ekleyin. Her filtre sütununu temiz bir 1,5 mL mikrosantrifüj tüpe yerleştirin. Filtre sütununun kapağını açın ve sütunun 3 dakika kurumasına izin verin.
- Filtre sütununun ortasına 50 μL RNase serbest H2O yerleştirerek Elute RNA. 1 dakika RT'de 1 dakika kuluçka ve ardından 1 dk. 8.000 x g'da inkübatör 1 000 x g. Bir agarose jelin üzerine 1 μL RNA yükleyerek RNA bütünlüğünü kontrol edin ve bir spektrofotometre kullanarak çıkarılan RNA konsantrasyonu ölçün.
NOT: RNA'yı -80 °C'de elektroporasyona kadar saklayın ve bozulmayı önlemek için rna'yı buz üzerinde özel olarak eritin.
4. HeV (HEVcc) üretimi elde edilen hücre kültürü için HepG2 hücrelerinin hazırlanması
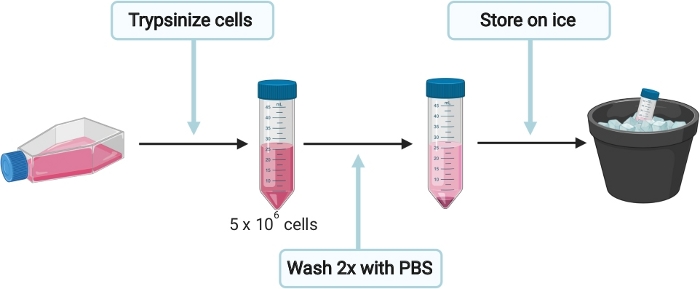
Şekil 3: HeV (HEVcc) üretimi elde edilen hücre kültürü için HepG2 hücrelerinin hazırlanması için şematik deneysel kurulum. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
NOT: Kontaminasyonu önlemek için, hücre hazırlanması, elektroporasyon, enfeksiyon, hasat ve hücre fiksasyonu steril koşullarda biyogüvenlik seviyesi 2 tesisinde gerçekleştirilmiştir. Hücreleri içeren 37 °C'de %5 CO2 kuluçka makinesinde kuluçka basamakları gerçekleştirildi.
- HeVcc üretimi için HepG2 hücreleri hazırlamak için(Şekil 3),tam Dulbecco's Modifiye Kartal Orta (DMEM) tohum hücreleri (Tablo 1
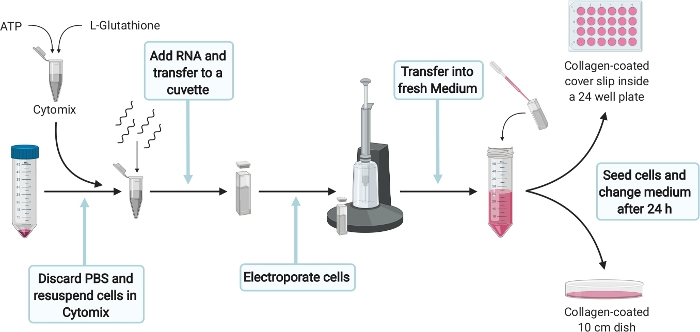
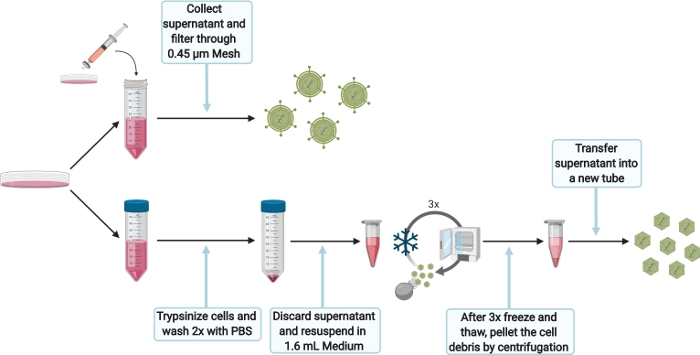

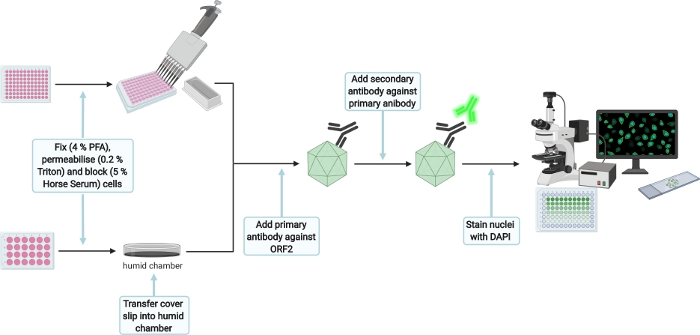
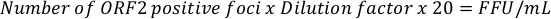
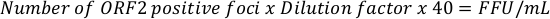
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Sonuçlar
Bu protokolde, yüksek titreen enfeksiyöz HEVcc üretimini açıklıyoruz. İlk adım plazmid DNA izole etmektir (pBluescript_SK_HEVp654 ve pBluescript_SK_HEVp6-G1634R37, Şekil 8a), daha sonra kısıtlama sindirim tarafından doğrusallaştırılmış ve in vitro transkripsiyon için saflaştırılmış (Şekil 1). Başarılı bir doğrusallaştırma jel elektroforez kullanılarak sindirilmiş olmayan plazmid-DNA ile sindirilmiş plazmid-DNA karş...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Plazmid hazırlığından başlayarak, aynı plazmid stoğundan birden fazla doğrusallaştırma yapabilmek için DNA verimleri 150 ng/μL'yi aşmalıdır, bu da önemli genom dizilerinin bakteri kaynaklı mutagenezi riskini en aza indirir. Ayrıca jel elektroforezi ile komple plazmid linelizasyonu için restriksiyon sindiriminin kontrol etmek önemlidir (Şekil 8b). Lineerleştirilmiş plazmid DNA eksikliği in vitro transkripsiyon daha az verimli neden haddeleme daire amplifikasyon neden olur. Buna ek olarak, RNA...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Yazarların açıklayacak bir şeyi yok.
Teşekkürler
Biz hepatit E virüs p6 klon için Suzanne Emerson için müteşekkiriz. HEV'ye özgü tavşan hiperimmün serumu Almanya Friedrich Loeffler Enstitüsü'nde Rainer Ulrich tarafından sağlandı. Ayrıca Ruhr Üniversitesi Bochum Moleküler ve Tıbbi Viroloji Bölümü'nün tüm üyelerine destek ve tartışmaları için teşekkür ederiz. Şekil 1-7 BioRender.com ile oluşturuldu.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 0.45 ve mikro; m mesh | Sarstedt | 83.1826 | Hücre dışı Virüs hasadı |
| %4 Histofix | CarlRoth | P087.4 | İmmünofloresan |
| Asetik asit | CarlRoth | 6755.1 | Kollajen çalışma solüsyonu |
| Amicon Ultra-15 | Merck Millipore UFC910024 | Virüs toplama | |
| Ampisilin | Sigma-Aldrich | A1593 | Dönüştürülmüş seçimi bakteri |
| ATP | Roche | 11140965001 | in vitro< / em> transkripsiyon ve elektroporasyon |
| BioRender | BioRender | Şekil Üretimi | |
| CaCl2 | Roth | 5239.2 | Cytomix |
| Kollajen R çözeltisi %0,4 steril | Serva | 47256.01 | Kollajen çalışma solüsyonu |
| CTP | Roche | 11140922001 | in vitro< / em> transkripsiyon |
| Cuvette | Biorad | 165-2088 | Elektroporasyon |
| DAPI | Invitrogen | D21490 | İmmünofloresan |
| DMEM | gibco | 41965-039 | Hücre kültürü |
| DNAse | Promega | M6101 | in vitro< / em> transkripsiyon |
| DTT | Promega | P2077 | in vitro< / em> transkripsiyonuna |
| edilmiştir EGTA | Roth | 3054.3 | Cytomix |
| Escherichia coli< / em> JM109 | Promega | L2005 | Dönüşüm |
| Fetal sığır serumu | gibco | 10270106 | Hücre kültürü |
| Fluoromount | SouthernBiotech | 0100-01 | İmmünofloresan |
| GenePulser Xcell Elektroporasyon Sistemi | BioRad | 1652660 | Elektroporasyon |
| Gentamisin | gibco | 15710049 | Hücre kültürü |
| GTP | Roche | 11140957001 | in vitro< / em> transkripsiyon |
| H2< / sub>O | Braun | 184238001 | İmmünofloresan |
| Hepes | Invitrogen | 15630-03 | |
| 16050122 | İmmünofloresan | ||
| K2HPO<>sub4 | Roth | P749.1 | Cytomix |
| KCL | Roth | 6781.3 | Cytomix |
| KH2PO4 | Roth | 3904.2 | Cytomix |
| L-Glutamin | gibco | 25030081 | Hücre kültürü |
| L-Glutatyon indirgenmiş | Sigma-Aldrich | G4251-5G | Cytomix |
| MEM | gibco | 31095-029 | Hücre kültürü |
| MEM NEAA (100 kez;) | gibco | 11140-035 | Hücre kültürü |
| MgCl2 | Roth | 2189.2 | |
| Cytomix Mikrovolume UV-Vis spektrofotometresi NanoDrop One | Thermo Fisher | ND-ONE-W | DNA/RNA konsantrasyonu |
| MluI enzimi | NEB | R0198L | Doğrusallaştırma |
| NEB tamponu | NEB | , R0198L | Doğrusallaştırmaya |
| NucleoSpin Plazmid kiti | Macherey & Nagel | 740588.250 | Plazmid hazırlama |
| NucleoSpin RNA Temizleme Kiti | Macherey & Nagel | 740948.250 | RNA saflaştırma |
| PBS | gibco | 70011051 | Hücre kültürü |
| Kalem/Strep | Thermo Fisher | 15140122 | Hücre kültürü |
| Tam uzunlukta HEV genomunu kodlayan plazmid (p6_G1634R) | Todt et.al | Virüs üretimi | |
| Tam uzunlukta HEV genomunu kodlayan plazmit (p6_WT) | Shukla et al. | GenBank katılım no. JQ679013 | Virüs üretimi |
| Birincil antikor 1E6 | LS-Bio | C67675 | İmmünofloresan |
| Birincil antikor 8282 | Rainer Ulrich, Friedrich Loeffler Enstitüsü, Almanya | ||
| QIAprep Spin Miniprep Kiti | Qiagen | 27106 | DNA ekstraksiyonu |
| Ribo m7G Kapağı Analog | Promega | P1711 | in vitro transkripsiyon |
| RNase uzakta | CarlRoth | A998.3 | RNA saflaştırma |
| RNasin (RNaz inhibitörü) | Promega | N2515 | in vitro < / em> transkripsiyon |
| İkincil antikor eşek anti-fare 488 | Thermo Fisher | A-21202 | İmmünofloresan |
| İkincil antikor keçi anti-tavşan 488 | Thermo Fisher | A-11008 | İmmünofloresan |
| Sodyum Pirüvat | gibco | 11360070 | Hücre kültürü |
| T7< / sub> RNA polimeraz | Promega | P2077 | in vitro< / em> transkripsiyon |
| Transkripsiyon Tamponu | Promega | P2077 | in vitro< / em> transkripsiyon |
| Triton X-100 | CarlRoth | 3051.3'e | dahildirİmmünofloresan |
| Tripsin-EDTA (% 0.5) | gibco | 15400054 | Hücre kültürü |
| ultra düşük IgG | gibco | 1921005PJ | Hücre kültürü |
| UTP Roche | 11140949001 | in vitro < / em> transkripsiyon |
Kaynaklar
- Wedemeyer, H., Pischke, S., Manns, M. P. Pathogenesis and treatment of hepatitis e virus infection. Gastroenterology. 142 (6), 1388-1397 (2012).
- Smith, D. B., et al. Proposed reference sequences for hepatitis E virus subtypes. The Journal of General Virology. 97 (3), 537-542 (2016).
- Ding, Q., et al. Hepatitis E virus ORF3 is a functional ion channel required for release of infectious particles. Proceedings of the National Academy of Sciences of the United States of America. 114 (5), 1147-1152 (2017).
- Chapuy-Regaud, S., et al. Characterization of the lipid envelope of exosome encapsulated HEV particles protected from the immune response. Biochimie. 141, 70-79 (2017).
- Yin, X., Ambardekar, C., Lu, Y., Feng, Z. Distinct Entry Mechanisms for Nonenveloped and Quasi-Enveloped Hepatitis E Viruses. Journal of Virology. 90 (8), 4232-4242 (2016).
- Khuroo, M. S., Khuroo, M. S., Khuroo, N. S. Hepatitis E: Discovery, global impact, control and cure. World Journal of Gastroenterology. 22 (31), 7030-7045 (2016).
- Rasche, A., et al. Hepatitis E Virus Infection in Dromedaries, North and East Africa, United Arab Emirates, and Pakistan, 1983-2015. Emerging Infectious Diseases. 22 (7), 1249-1252 (2016).
- Hsieh, S. Y., et al. Identity of a novel swine hepatitis E virus in Taiwan forming a monophyletic group with Taiwan isolates of human hepatitis E virus. Journal of Clinical Microbiology. 37 (12), 3828-3834 (1999).
- Johne, R., et al. Detection of a novel hepatitis E-like virus in faeces of wild rats using a nested broad-spectrum RT-PCR. The Journal of General Virology. 91, Pt 3 750-758 (2010).
- Payne, C. J., Ellis, T. M., Plant, S. L., Gregory, A. R., Wilcox, G. E. Sequence data suggests big liver and spleen disease virus (BLSV) is genetically related to hepatitis E virus. Veterinary Microbiology. 68 (1-2), 119-125 (1999).
- Haqshenas, G., Shivaprasad, H. L., Woolcock, P. R., Read, D. H., Meng, X. -J. Genetic identification and characterization of a novel virus related to human hepatitis E virus from chickens with hepatitis–splenomegaly syndrome in the United States. Journal of General Virology. 82, 2449-2462 (2001).
- Tei, S., Kitajima, N., Takahashi, K., Mishiro, S. Zoonotic transmission of hepatitis E virus from deer to human beings. The Lancet. 362 (9381), 371-373 (2003).
- Nakamura, M., et al. Hepatitis E virus infection in wild mongooses of Okinawa, Japan: Demonstration of anti-HEV antibodies and a full-genome nucleotide sequence. Hepatology Research: the Official Journal of the Japan Society of Hepatology. 34 (3), 137-140 (2006).
- Drexler, J. F., et al. Bats worldwide carry hepatitis E virus-related viruses that form a putative novel genus within the family Hepeviridae. Journal of Virology. 86 (17), 9134-9147 (2012).
- Zhao, C., et al. A novel genotype of hepatitis E virus prevalent among farmed rabbits in China. Journal of Medical Virology. 81 (8), 1371-1379 (2009).
- Lhomme, S., et al. Risk of zoonotic transmission of HEV from rabbits. Journal of Clinical Virology: the Official Publication of the Pan American Society for Clinical Virology. 58 (2), 357-362 (2013).
- Kaci, S., Nöckler, K., Johne, R. Detection of hepatitis E virus in archived German wild boar serum samples. Veterinary Microbiology. 128 (3-4), 380-385 (2008).
- Liu, B., et al. Avian hepatitis E virus infection of duck, goose, and rabbit in northwest China. Emerging Microbes & Infections. 7 (1), 76(2018).
- Raj, V. S., et al. Novel hepatitis E virus in ferrets, the Netherlands. Emerging Infectious Diseases. 18 (8), 1369-1370 (2012).
- Dong, C., et al. Restricted enzooticity of hepatitis E virus genotypes 1 to 4 in the United States. Journal of Clinical Microbiology. 49 (12), 4164-4172 (2011).
- Goens, S. D., Perdue, M. L. Hepatitis E viruses in humans and animals. Animal Health Research Reviews. 5 (2), 145-156 (2004).
- Geng, Y., Wang, Y. Transmission of Hepatitis E Virus. Advances in Experimental Medicine and Biology. 948, 89-112 (2016).
- Naik, S. R., Aggarwal, R., Salunke, P. N., Mehrotra, N. N. A large waterborne viral hepatitis E epidemic in Kanpur, India. Bulletin of the World Health Organization. 70 (5), 597-604 (1992).
- Feagins, A. R., Opriessnig, T., Guenette, D. K., Halbur, P. G., Meng, X. -J. Detection and characterization of infectious Hepatitis E virus from commercial pig livers sold in local grocery stores in the USA. The Journal of General Virology. 88, Pt 3 912-917 (2007).
- Colson, P., et al. Pig liver sausage as a source of hepatitis E virus transmission to humans. The Journal of Infectious Diseases. 202 (6), 825-834 (2010).
- Wenzel, J. J., et al. Detection of hepatitis E virus (HEV) from porcine livers in Southeastern Germany and high sequence homology to human HEV isolates. Journal of Clinical Virology: the Official Publication of the Pan American Society for Clinical Virology. 52 (1), 50-54 (2011).
- Colson, P., et al. Transfusion-associated Hepatitis E, France. Emerging Infectious Diseases. 13 (4), 648-649 (2007).
- Kamp, C., et al. Impact of hepatitis E virus testing on the safety of blood components in Germany - results of a simulation study. Vox Sanguinis. , (2018).
- Kamar, N., Dalton, H. R., Abravanel, F., Izopet, J. Hepatitis E virus infection. Clinical Microbiology Reviews. 27 (1), 116-138 (2014).
- Pischke, S., Behrendt, P., Manns, M. P., Wedemeyer, H. HEV-associated cryoglobulinaemia and extrahepatic manifestations of hepatitis E. The Lancet Infectious Diseases. 14 (8), 678-679 (2014).
- Colson, P., et al. Severe thrombocytopenia associated with acute hepatitis E virus infection. Journal of Clinical Microbiology. 46 (7), 2450-2452 (2008).
- Mishra, P., Mahapatra, M., Kumar, R., Pati, H. P. Autoimmune hemolytic anemia and erythroid hypoplasia associated with hepatitis E. Indian Journal of Gastroenterology: Official Journal of the Indian Society of Gastroenterology. 26 (4), 195-196 (2007).
- Sood, A., Midha, V., Sood, N. Guillain-Barré syndrome with acute hepatitis E. The American Journal of Gastroenterology. 95 (12), 3667-3668 (2000).
- Fousekis, F. S., Mitselos, I. V., Christodoulou, D. K. Extrahepatic manifestations of hepatitis E virus: An overview. Clinical and Molecular Hepatology. 26 (1), 16-23 (2020).
- Pischke, S., et al. Ribavirin treatment of acute and chronic hepatitis E: A single-centre experience. Liver International: Official Journal of the International Association for the Study of the Liver. 33 (5), 722(2013).
- Kamar, N., et al. Ribavirin for Chronic Hepatitis E Virus Infection in Transplant Recipients. The New England Journal of Medicine. 370, 1111-1120 (2014).
- Todt, D., et al. In vivo evidence for ribavirin-induced mutagenesis of the hepatitis E virus genome. Gut. 65, 1733-1743 (2016).
- Todt, D., Walter, S., Brown, R. J. P., Steinmann, E. Mutagenic Effects of Ribavirin on Hepatitis E Virus-Viral Extinction versus Selection of Fitness-Enhancing Mutations. Viruses. 8 (10), 8100283(2016).
- Todt, D., Meister, T. L., Steinmann, E. Hepatitis E virus treatment and ribavirin therapy: Viral mechanisms of nonresponse. Current Opinion in Virology. 32, 80-87 (2018).
- Kamar, N., et al. Ribavirin for Hepatitis E Virus Infection After Organ Transplantation: A Large European Retrospective Multicenter Study. Clinical Infectious Diseases: An Official Publication of the Infectious Diseases Society of America. , (2019).
- Kamar, N., et al. Influence of immunosuppressive therapy on the natural history of genotype 3 hepatitis-E virus infection after organ transplantation. Transplantation. 89 (3), 353-360 (2010).
- Kamar, N., et al. Pegylated interferon-alpha for treating chronic hepatitis E virus infection after liver transplantation. Clinical Infectious Diseases: An Official Publication of the Infectious Diseases Society of America. 50 (5), 30-33 (2010).
- Todt, D., et al. Antiviral Activities of Different Interferon Types and Subtypes against Hepatitis E Virus Replication. Antimicrobial Agents and Chemotherapy. 60 (4), 2132-2139 (2016).
- Dao Thi, V. L., et al. Sofosbuvir Inhibits Hepatitis E Virus Replication In Vitro and Results in an Additive Effect When Combined with Ribavirin. Gastroenterology. 150 (1), 82-85 (2016).
- van der Valk, M., Zaaijer, H. L., Kater, A. P., Schinkel, J. Sofosbuvir shows antiviral activity in a patient with chronic hepatitis E virus infection. Journal of Hepatology. 66 (1), 242-243 (2017).
- Kaushik, N., et al. Zinc Salts Block Hepatitis E Virus Replication by Inhibiting the Activity of Viral RNA-Dependent RNA Polymerase. Journal of Virology. 91 (21), (2017).
- Todt, D., et al. The natural compound silvestrol inhibits hepatitis E virus (HEV) replication in vitro and in vivo. Antiviral Research. 157, 151-158 (2018).
- Glitscher, M., et al. Inhibition of Hepatitis E Virus Spread by the Natural Compound Silvestrol. Viruses. 10 (6), 301(2018).
- Kinast, V., Burkard, T. L., Todt, D., Steinmann, E. Hepatitis E Virus Drug Development. Viruses. 11 (6), 485(2019).
- Schemmerer, M., et al. Enhanced Replication of Hepatitis E Virus Strain 47832c in an A549-Derived Subclonal Cell Line. Viruses. 8 (10), 267(2016).
- Huang, R., et al. Cell Culture of Sporadic Hepatitis E Virus in China. Clinical and Vaccine Immunology. 6 (5), 729-733 (1999).
- Emerson, S. U., et al. Recombinant hepatitis E virus genomes infectious for primates: Importance of capping and discovery of a cis-reactive element. PNAS. 98 (26), 15270-15275 (2001).
- Shukla, P., et al. Cross-species infections of cultured cells by hepatitis E virus and discovery of an infectious virus-host recombinant. Proceedings of the National Academy of Sciences of the United States of America. 108 (6), 2438-2443 (2011).
- Shukla, P., et al. Adaptation of a genotype 3 hepatitis E virus to efficient growth in cell culture depends on an inserted human gene segment acquired by recombination. Journal of Virology. 86 (10), 5697-5707 (2012).
- Meister, T. L., Bruening, J., Todt, D., Steinmann, E. Cell culture systems for the study of hepatitis E virus. Antiviral Research. 163, 34-49 (2019).
- Todt, D., et al. Robust hepatitis E virus infection and transcriptional response in human hepatocytes. Proceedings of the National Academy of Sciences of the United States of America. , (2020).
- Ankavay, M., et al. New insights into the ORF2 capsid protein, a key player of the hepatitis E virus lifecycle. Scientific Reports. 9 (1), 6243(2019).
- Schemmerer, M., Johne, R., Erl, M., Jilg, W., Wenzel, J. J. Isolation of Subtype 3c, 3e and 3f-Like Hepatitis E Virus Strains Stably Replicating to High Viral Loads in an Optimized Cell Culture System. Viruses. 11 (6), 483(2019).
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Yeniden basım ve izinler
