Doğası gereği düzensiz proteinlerde zayıf ve geçici moleküller arası ve moleküller arası etkileşimleri tespit etmek için paramanyetik gevşeme geliştirme NMR spektroskopisinin uygulanması için bir protokol sunulmaktadır.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Yöntem makalesi
İçsel Olarak Düzensiz Proteinlerin Kendi Kendine İlişkilerini Tespit Etmek ve Karakterize Etmek için Paramanyetik Gevşeme Geliştirmesi
Bu makalede
Özet
Özet
Proteinler içindeki doğal olarak düzensiz proteinler ve içsel olarak düzensiz bölgeler, insan proteomunun büyük ve işlevsel olarak önemli bir bölümünü oluşturur. Bu dizilerin oldukça esnek doğası, çeşitli biyomoleküler ortaklarla zayıf, uzun menzilli ve geçici etkileşimler oluşturmalarına izin verir. Spesifik ancak düşük afiniteli etkileşimler, rastgele bağlanmayı teşvik eder ve özünde düzensiz tek bir segmentin çok sayıda hedef bölgeyle etkileşime girmesini sağlar. Bu etkileşimlerin geçici doğası nedeniyle, tek ve baskın bir konformasyon oluşturmak için proteinlere dayanan yapısal biyoloji yöntemleriyle karakterize edilmeleri zor olabilir. Paramanyetik gevşeme geliştirme NMR, zayıf ve geçici etkileşimlerin yapısal temelini tanımlamak ve tanımlamak için yararlı bir araçtır. Doğası gereği düzensiz proteinler ile bunların proteini, nükleik asidi veya diğer biyomoleküler ortakları arasında oluşan düşük nüfuslu karşılaşma komplekslerini karakterize etmek için paramanyetik gevşeme geliştirmesini kullanmak için ayrıntılı bir protokol açıklanmaktadır.
Giriş
İçsel bozukluk (ID), kendiliğinden stabil ikincil veya üçüncül yapılara katlanmayan, ancak biyolojik olarak aktif olan proteinleri (IDP'ler) veya proteinler (IDR'ler) içindeki bölgeleri tanımlar. Genel olarak, IDP/IDR'lerin işlevi, fizyolojik koşullarda biyomoleküllerle spesifik ancak geri dönüşümlü etkileşimleri kolaylaştırmaktır1. Bu nedenle, IDP'ler ve IDR'ler, çoklu protein komplekslerinin işe alınması, organizasyonu ve stabilizasyonu dahil olmak üzere bir dizi hücresel fonksiyonda yer alır, örneğin, splisozom2'nin montajı ve aktivitesi, DNA hasarı3 bölgelerinde bileşenlerin işe alınması ve organizasyonu, transkripsiyon komplekslerinin4 veya kromatin yeniden şekillendirici BAF5'in işe alınmasının organizasyonu ve stabilizasyonu. Ek olarak, IDP'ler, farklı bağlanma ortakları için rastgele cinsel ilişkilerinin hücresel protein ağları aracılığıyla bilgi aktarımına aracılık etmelerini sağladığı sinyal bağlantı noktalarında bulunur6. Son zamanlarda yapılan çalışmalar, IDR bölgelerinin sıvı-sıvı faz ayırma işlemi yoluyla biyomoleküler kondensatlar oluşturarak kendi kendine birleşme eğilimini de ortaya koymuştur7. ID'yi içeren yukarıda bahsedilen işlevlerin birçoğunun artık kondens oluşumunun bir yönünü de içerdiği düşünülmektedir8. ID'nin biyomoleküler kompleks montajı, stabilizasyonu, iskelesi ve sinyal iletimi için önemine rağmen, IDP'ler ve IDR'ler tipik olarak x-ışını kristalografisi veya kriyojenik elektron mikroskobu kullanılarak yapısal araştırmalara uygun olmadığından, spesifik etkileşimlerinin atomik ayrıntılarının tanımlanması zordur.
Nükleer manyetik rezonans (NMR), sert veya homojen yapısal toplulukların varlığına bağlı olmadığı, ancak tek tek çekirdeklerin yakın yerel ortamı hakkında rapor verdiği için ID'yi araştırmak için ideal bir tekniktir. Belirli bir moleküldeki bir çekirdeğin rezonans frekansı veya kimyasal kayması, yerel elektronik dağılımın neden olduğu zayıf manyetik alanlardan etkilenir ve bu da bağ uzunluklarına, açılarına, diğer çekirdeklerin yakınlığına, bağlanma ortaklarıyla etkileşimlere ve diğer faktörlerebağlıdır 9. Böylece, her çekirdek, yerel kimyasal ortamındaki değişikliklere duyarlı, benzersiz, bölgeye özgü bir yapısal prob görevi görür. Bu avantajlara rağmen, NMR bir yığın tekniğidir ve gözlemlenen kimyasal kayma, belirli bir çekirdek tarafından örneklenen tüm ortamların ortalamasıdır. Birçoğu bu sayıda açıklanan bir dizi NMR tekniği, ortalama kimyasal kaymada10,11 bulunan yüksek enerjili, düşük nüfuslu biyomoleküler konformasyonlar hakkında yapısal, dinamik ve kinetik bilgileri geri kazanmak için geliştirilmiştir. Geçici olarak doldurulmuş olmasına rağmen, bu durumların tanımlanması ve ölçülmesi, işlevsel mekanizmaların ayrıntılarını belirlemek için önemlidir12. Örneğin, IDP'ler ve IDR'ler söz konusu olduğunda, konformasyonel topluluk, fizyolojik bağlanma ortaklarıyla karşılaşma komplekslerinin oluşumu için üretken olan konformasyonları tercihen örneklemek için önyargılı olabilir. Bu durumların tespiti ve kalıntıya özgü moleküller arası ve moleküller arası etkileşimlerin ve dinamiklerin tanımlanması, protein fonksiyonunun ve kompleks oluşumunun altında yatan yapısal mekanizmaları belirlemek için önemlidir.
IDP/IDR aracılı biyomoleküler komplekslerin oluşumu için önemli olan geçici, düşük nüfuslu durumları araştırmak için paramanyetik gevşeme geliştirme (PRE) NMR'yi kullanmak için bir protokol açıklanmaktadır13. Bu yaklaşım, α-sinüklein 14,15'ten amiloid fibrillerin montajını veya FUS16'nın kendi kendine birleşmesini destekleyenler gibi geçici protein-protein etkileşimlerini incelemek ve ayrıca sinyal proteinleri 17 arasındaki gibi spesifik protein-protein etkileşimlerini karakterize etmek için kullanışlıdır. Spesifik moleküller arası ve moleküller arası etkileşimlerin tercihli olarak sıkıştırılmış durumların yanı sıra kendi kendine birleşmeyi yönlendiren bölgeye özgü etkileşimlerle sonuçlandığı, kendi kendini ilişkilendiren bir IDP örneği sunulmaktadır.
PRE, bir çekirdeğin, genellikle bir nitroksit grubu üzerinde eşleşmemiş bir elektron şeklinde veya bir paramanyetik metal atomu18 olarak sağlanan izotropik bir g-tensörü ile bir paramanyetik merkeze manyetik dipolar etkileşiminden kaynaklanır (Şekil 1). Anizotropik g-tensörlü atomlar da bir PRE etkisi üretirken, bu sistemlerin analizi, yalancı temas kaymaları (PCS) veya artık dipolar eşleşmenin (RDC) katkıda bulunduğu karıştırıcı etkiler nedeniyle daha zordur13,19. Bir çekirdek ile paramanyetik merkez arasındaki etkileşimin gücü, ikisi arasındaki <r-6> mesafesine bağlıdır. Bu etkileşim, nükleer gevşeme oranlarında bir artışa neden olur, bu da uzun menzilli etkileşimler (~ 10-35 Å) için bile tespit edilebilir çizgi genişlemesine neden olur, çünkü eşleşmemiş elektronun manyetik momenti çok güçlüdür20,21. PRE ile geçici durumların tespiti, aşağıdaki iki koşulun karşılanması durumunda mümkündür; (1) geçici etkileşim, NMR zaman ölçeğinde hızlı bir değişim içindedir (gözlemlenen kimyasal kayma, değiş tokuş durumlarının nüfus ağırlıklı ortalamasıdır); ve (2) çekirdeklerin paramanyetik merkez mesafesi, geçici nüfuslu durumda ana durum11'den daha kısadır. Enine PRE, Γ2 ile gösterilir ve pratik amaçlar için, bir paramanyetik merkez içeren bir numune ile bir diyamanyetik kontrol arasındaki 1H enine gevşeme oranlarındaki farktan hesaplanır. Hızlı ve yavaş değişim rejimlerinde PRE teorisinin ve ilgili sözde temas kaymalarının derinlemesine bir tedavisi için, okuyucu Clore ve çalışma arkadaşları13,22 tarafından yapılan kapsamlı incelemelere yönlendirilir. Burada sadece 1H N-Γ2'nin hızlı değişim rejiminde olduğu durum dikkate alınır, burada PRE'nin r-6 bağımlılığı nedeniyle, gözlenen gevşeme oranı hem paramanyetik merkezin çekirdeğe yaklaştığı mesafe hem de bu konformasyonda geçirdiği süre ile ilgilidir. Bu nedenle, yakın bir yaklaşım içermeyen geçici konformasyonlar küçük bir PRE üretirken, daha yakın etkileşimler, kısa ömürlü olsa bile, daha büyük bir PRE üretecektir.
IDP'ler için PRE, tek bir molekül içinde (molekül içi) ve ayrı moleküller (termoleküler) arasında meydana gelen etkileşimleri ölçmek ve ayırt etmek için kullanılır. Bir NMR görünür (örneğin, 15N-etiketli) veya NMR görünmez (örneğin, doğal bolluk 14N) proteinine bir paramanyetik merkez ekleyerek, PRE'nin kaynağı (moleküller arası veya moleküller arası) belirlenebilir (Şekil 2). Bir sistein kalıntısı ekleyen bölgeye yönelik mutajenez, bir proteine bir paramanyetik merkez (spin-label) eklemek için uygun bir yaklaşımdır23. Metal şelatlama (EDTA bazlı) ve serbest radikal (nitroksit bazlı) dahil olmak üzere spin etiketleri olarak kullanılmak üzere çeşitli molekül türleri önerilmiştir24. Çeşitli nitroksit spin etiketleri tanımlanmıştır ve methanetiosülfonat, maleimid ve iyodoasetamid25,26 gibi farklı sistein reaktif kimyaları ile mevcuttur (Şekil 1). Etiketin veya bağlayıcının doğal esnekliği belirli analizler için sorunlu olabilir ve bu durumlarda, etiketin hareketini sınırlamak için hacimli kimyasal gruplar eklemek veya etiketi proteine sabitlemek için ikinci bir bağlayıcının kullanılması gibi farklı stratejiler önerilmiştir (iki bölge eki)27, 28. Ek olarak, ticari olarak temin edilebilen etiketler diastereomerik proteinler içerebilir, ancak genellikle bu, gözlemlenen PRE29'a katkıda bulunmayacaktır. Maleimid kimyası yoluyla serbest bir sisteine bağlanan 3-Maleimido-PROXYL'in kullanımı, kolayca temin edilebildiği, uygun maliyetli, geri dönüşümsüz olduğu ve indirgeyici ajan tris (2-karboksietil) fosfin (TCEP) etiketleme reaksiyonu boyunca çözelti içinde tutulabildiği için açıklanmaktadır. 3-Maleimido-PROXYL izotropik bir g-tensöre sahip olduğundan, hiçbir PCS veya RDC indüklenmez ve aynı kimyasal kayma atamaları hem paramanyetik hem de diyamanyetik numuneleriçin kullanılabilir 13.
1H N-T2, daha önce 8 ila 12 zaman noktasından oluşan tam bir evrim serisini toplamak kadar doğru olduğu gösterilen iki zaman noktası stratejisi (T a, Tb) kullanılarak ölçülür30. İlk zaman noktası (T a) pratik olarak sıfıra yakın olarak ayarlanır ve ikinci zaman noktasının optimum uzunluğu, belirli bir numune için beklenen en büyük PRE'nin büyüklüğüne bağlıdır ve şu şekilde tahmin edilebilir: Tb ~ 1.15/(R 2,dia + Γ 2) burada R2,dia, diyamanyetik numunenin R2'sini temsil eder13. En büyük PRE'lerin büyüklüğü bilinmiyorsa, Tb'yi proteinin 1 H T2'sinin ~bir katına ayarlamak iyi bir başlangıç tahminidir ve sinyali gürültüye iyileştirmek için T2'yi ayarlayarak daha da optimize edilir. Bu iki noktalı ölçüm stratejisi, PRE'leri ölçmek için gereken deneysel süreyi önemli ölçüde azaltır ve özellikle moleküller arasındaki spesifik olmayan temasların etkilerini en aza indirmek için nispeten seyreltik numuneler kullanıldığından, daha fazla sinyal ortalaması için zaman sağlar. 1H N-T2'yi ölçmek için HSQC tabanlı bir darbe dizisi kullanılır ve başka bir yerdeayrıntılı olarak açıklanmıştır 30. Daha iyi hassasiyet için, ileri ve geri BECERIKLİ transferlerin sert darbeleri şekilli darbelerle değiştirilebilir; alternatif olarak, dizi kolayca TROSY tabanlı bir okuma31'e dönüştürülür. IDP'ler tipik olarak, benzer büyüklükteki küresel proteinlerden daha dar çizgi genişliklerine (doğal bozukluk nedeniyle) neden olan çok daha uzun enine gevşeme oranlarına sahip olduklarından, spektral çözünürlüğü iyileştirmek ve IDP'lerin doğasında bulunan kimyasal kayma dağılım sınırlamasını hafifletmek için dolaylı boyutta uzun alım süreleri kullanılabilir.
PRE, protein-protein ve protein-nükleik asit etkileşimlerini, özellikle geçici veya düşük nüfuslu etkileşimleri incelemek için yararlı bir araçtır. Protein saflaştırma, sahaya yönelik spin etiketleme, nabız programının ayarlanması ve kalibre edilmesi, NMR verilerinin işlenmesi ve yorumlanması dahil olmak üzere PRE'leri ölçmek için uygun bir NMR numunesinin hazırlanması için ayrıntılı bir protokol sağlanır. Numune konsantrasyonu, spin etiketinin seçimi ve paramanyetik bileşenlerin çıkarılması dahil olmak üzere veri kalitesini ve deneysel sonucu etkileyebilecek önemli deneysel hususlar not edilmiştir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Protokol
Protokol için genel gereksinimler: protein saflaştırma tesisleri, UV-Vis spektrometresi, yüksek alanlı NMR spektrometresi ve işletim yazılımı, işlem sonrası analiz yazılımı; NMRPipe32, Sparky 33 (veya CCPN Analizi 34 veya NMRViewJ35).
1. PRE ölçümleri için bir proteinin rekombinant ekspresyonu ve saflaştırılması
- İlgilenilen protein için tek bir sistein kalıntısı olacak şekilde bir ekspresyon yapısı tasarlayın. İlgilenilen proteinde farklı pozisyonlarda serbest bir sistein eklemek için çoklu mutasyonlar gerekecektir36.
- Yerleşik bir protokol37 kullanarak ilgilenilen proteinin doğal bolluğu (14N) veya 15N etiketli bir örneğini ifade edin ve saflaştırın.
NOT: E. coli ekspresyon sistemleri, 15 N'lik izotopik zenginleştirme, biyomoleküler heteronükleer NMR spektroskopisi için minimum bir gereklilik olduğundan, rekombinant protein ekspresyonu için uygun maliyetli ve sağlam bir yöntem sağlar. Tipik adımlar, minimal ortamda ekspresyon, kromatografik saflaştırma ve afinite saflaştırma etiketinin çıkarılmasıdır. Bu protokol, NMR araştırmaları için uygun kalitede yeterli protein üretebilen sağlam bir ekspresyon ve saflaştırma protokolünün oluşturulduğunu varsayar.- Serbest sisteinin reaksiyonunu ve IDP'ler için moleküller arası disülfür bağlarının oluşumunu önlemek için tüm saflaştırma adımlarında tamponlarda 1 mM indirgeyici ajan (DTT veya TCEP) bulundurun.
NOT: Bazı sistemler, proteinin spesifik özelliklerinin yanı sıra saflaştırma için seçilen sıcaklık, pH ve tampon sistemine bağlı olarak indirgeyici olmayan koşullara daha toleranslı ve daha az agregasyona eğilimli olabilir38. - Devam etmeden önce saflaştırma için kullanılan afinite etiketlerini çıkarın, çünkü bunlar proteinle öngörülemeyen şekillerde spesifik olmayan bir şekilde etkileşime girebilir veya muhtemelen yanlışlıkla istenmeyen bir bağlanma bölgesi olarak hizmet edebilecek reaktif sistein kalıntıları içerebilir.
- Çözücü PRE'lerin katkısını değerlendirmek için spin etiketinin çözünür bir versiyonu ile karıştırılmış sistein mutasyon(lar)ı olmadan 15N etiketli bir referans numunesi hazırlayın.
- Serbest sisteinin reaksiyonunu ve IDP'ler için moleküller arası disülfür bağlarının oluşumunu önlemek için tüm saflaştırma adımlarında tamponlarda 1 mM indirgeyici ajan (DTT veya TCEP) bulundurun.
2. 3-Maleimido-PROXYL nitroksit spin etiketinin konjuge edilmesi
- Saflaştırılmış proteini 50 mM Tris pH 7 ve 1 mM TCEP içeren gazı alınmış bir tamponda saklayın veya değiştirin; tampon ayrıca protein çözünürlüğüne yardımcı olmak için gerekirse 8 M'ye kadar üre içerebilir.
Alternatif olarak, bir protein stok çözeltisini, gazı alınmış 50 mM Tris pH 7 ve 1 mM TCEP tamponunun en az 10 hacim eşdeğerine hızla seyreltin. Spin etiketi eklemeden önce protein konsantrasyonunun en az 100 μM olduğundan emin olun. - İlgilenilen proteinin 20x molar fazlasına bir stok çözeltisinden 3-Maleimido proxyl ekleyin. Numuneyi ışıktan ve oksijenden koruyun ve gece boyunca oda sıcaklığında veya 4 °C'de inkübe edin; Nazik sallama veya nutasyon, etiketleme verimliliğini artırabilir.
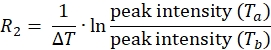
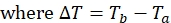
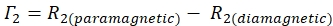
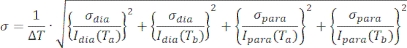
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Sonuçlar
Molekül içi 1HN-Γ 2 PRE'ler, RNA bağlayıcı protein EWSR142'nin düşük karmaşıklık alanından türetilen, kendi kendine birleşen, içsel olarak düzensiz bir fragman (kalıntılar 171-264) üzerine kaydedildi (Şekil 3). Spin-etiket bağlantı noktasına yakın sıralı kalıntıların (örneğin, Şekil 3'teki kalıntı 178 veya 260) önemli ölçüde genişlemesi beklenir ve spektrumda tespit edilemez. Bağlantı noktasından ...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Kendinden düzensiz proteinler ve PRE kullanan çeşitli bağlanma ortakları arasında düşük popülasyonlarda var olan geçici etkileşimleri karakterize etmek için bir yöntem sunulmuştur. Gösterilen örnekte, protein kendi kendine ilişkilidir ve bu nedenle PRE, moleküller arası ve moleküller arası etkileşimlerin bir kombinasyonundan kaynaklanabilir. Bu yöntem, iki farklı protein arasındaki etkileşimlerin karakterize edilebildiği heterojen numunelere kolayca genişletilebilir. Proteinin farklı bölgelerinin nasıl etkileşime girdiği...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Tüm yazarlar makaleyi okumuş ve onaylamıştır. Herhangi bir çıkar çatışması beyan edilmez.
Teşekkürler
Yararlı tartışmalar ve teknik yardım için Dr. Jinfa Ying ve Kristin Cano'ya teşekkür ederiz. DSL bir St. Baldrick's Scholar'dır ve St. Baldrick's Foundation'ın (634706) desteğini kabul eder. Bu çalışma kısmen DSL'ye Welch Vakfı (AQ-2001-20190330), Max ve Minnie Tomerlin Voelcker Fonu (DSL'ye Voelcker Vakfı Genç Araştırmacı Hibesi), DSL'ye UTHSA Başlangıç Fonları ve CNJ'ye Çocuk Sağlığı alanında Greehey Yüksek Lisans Bursu tarafından desteklenmiştir. Bu çalışma, San Antonio'daki Texas Üniversitesi Sağlık Bilimleri Merkezi'ndeki Kurumsal Araştırma Çekirdeklerinin bir parçası olan Yapısal Biyoloji Çekirdek Tesislerinde yürütülen ve Araştırma Başkan Yardımcılığı Ofisi ve Mays Kanser Merkezi İlaç Keşfi ve Yapısal Biyoloji Ortak Kaynağı (NIH P30 CA054174) tarafından desteklenen araştırmalara dayanmaktadır.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 0.45 ve mikro; m ve 0.22 &mikro; m şırınga filtreleri | Millipore Sigma | SLHVM33RS SLGVR33RS | İlk saflaştırma adımından önce ve boyut dışlama kromatografisinden önce lizatı filtreleyin. |
| 100 mm Petri Kabı | Fisher | FB0875713 | bakteri dönüşümü için Agar plakaları. |
| 14< / sup>N Amonyum klorür | Sigma Aldrich | 576794 | M9 ortamında 15< / sup>N kullanımı bir NMR görünür proteini üretecektir, 14< / sup>N bir NMR görünmez proteini üretecektir |
| 15< / sup>N Amonyum klorür | Sigma Aldrich | 299251 | M9 ortamında 15N kullanımı NMR görünür bir protein üretecektir, 14N bir NMR görünmez protein üretecektir |
| 3 L Fernbach şaşkın şişe | Corning | 431523 | Bakteriyel ekspresyon kültürü |
| 3-Maleimido-Proxyl | Sigma Aldrich | 253375 | Nitroksit spin etiketi |
| 50 mL konik santrifüj tüpleri | Thermo Fisher | 14-432-22 | Çözelti/protein depolama |
| Amicon santrifüj filtre | Millipore Sigma | UFC900308 | Protein konsantrasyonu |
| Ampicillan | Sigma Aldrich | A5354 | Seçici bir belirteç için antibiyotik, kesin seçim ifade yapısına bağlıdır plazmit |
| Analitik terazi | Oahus | 30061978 | Explorer Pro, reaktifleri tartmak için |
| Askorbik asit | Sigma Aldrich | AX1775 | Nitroksit spin etiketini azaltır |
| Otoklav | Cam eşyaları ve kültür ortamını sterilize edin | ||
| Kalsiyum klorür | Sigma Aldrich | C4901 | M9 ortam bileşeni |
| Santrifüj şişeleri | Thermo Fisher | 010-1459 | Rekombinant protein ekspresyonundan sonra E. coli hücrelerini hasat |
| Santrifüj, el krank | Thomas Scientific | 0241C68 | NMR tüplerini barındırabilen 15 mL'lik kovalara sahip Boekel el tahrikli, düşük hızlı santrifüj |
| Chelex 100 | Sigma Aldrich | C7901 | Kirletici paramanyetik bileşikleri tampon çözeltilerinden çıkarın |
| NMR | veri işleme ve analiz yazılımı paketleri ile uyumlu bilgisayar | ||
| Deuterium oksit | Sigma Aldrich | 151882 | NMR kilit sinyali için gereklidir |
| Dekstroz | Sigma Aldrich | D9434 | M9 medya bileşeni |
| Dibazik Sodyum Fosfat | Sigma Aldrich | S5136 | M9 medya bileşeni |
| Ellman reaktifi (5,5-dithio-bis-(2-nitrobenzoik asit) | Thermo Fisher | 22582 | Serbest sistyen kalıntılarının miktar tayini |
| Yüksek hızlı santrifüj tüpleri | Thermo Fisher | 3114-0050 | Bakteri lizatını temizlemek için kullanılır. |
| Yüksek alanlı NMR cihazı (600 - 800 MHz) | Bruker | Çok kanallı kriyojenik prob ve sıcaklık kontrolü | |
| IMAC sütunu ile donatılmış HisTrap FF | Cytvia | 17528601 | Ham bakteriyel lizat |
| İzopropil BD-tiyogalaktozitin (IPTG) | Sigma Aldrich | I6758 | Thermo'nun kontrolü altındaki genler için protein ekspresyonunu indükler |
| Fisher | 22700025 | Maddeleri, E. coli'yi ilgilenilen proteini ifade edecek şekilde dönüştürmek için kullanılır, bu öğelerden herhangi biri için benzer ürünlerle ikame edilebilir. | |
| LB suyu | Thermo Fisher | 12780052 | |
| Düşük basınçlı kromatografi sistemi | Bio-Rad | 7318300 | BioRad BioLogic, IMAC sütunlarını çalıştırmak gibi düşük basınçlı chomatograph için kullanılır |
| Magnezyum sülfat | Sigma Aldrich | M7506 | M9 medya bileşeni |
| Orta basınçlı kromatografi sistemi | Bio-Rad | 7880007 | Çok dalga boylu bir dedektör, pH ve iletkenlik monitörleri ve otomatik fraksiyon toplayıcı ile donatılmış BioRad NGC |
| MEM vitamin çözeltisi | Sigma Aldrich | M6895 | M9 medya bileşeni |
| Mikroakışkanlaştırıcı | Avestin | EmulsiFlex-C3 | Hızlı ve verimli bakteri hücresi lizisi sağlar |
| Mikropipetler | Termo Balıkçı | Uygun şekilde oturan tek kullanımlık uçlara sahip kalibre edilmiş mikropippetter seti (örneğin Eppendorf gibi birden fazla üreticiden temin edilebilir) | |
| Monobazik potasyum fosfat | Sigma Aldrich | 1551139 | M9 ortam bileşeni |
| NMR pipetleri | Sigma Aldrich | 255688 | Numuneyi NMR tüpünden çıkarmak için |
| NMR numune tüpü | NewEra | NE-SL5 | Yüksek alanlı NMR spektrometreleri |
| için uygundurHazırlayıcı Santrifüj | Beckman Coulter | Avanti J-HC | Rekombinant protein ekspresyonundan sonra E. coli hücrelerini hasat |
| Yuvarlak tabanlı polistiren santrifüj tüpleri | Corning | 352057 | Berrak bakteri lizatı |
| Çalkalama inkübatörü | Eppendorf | S44I200005 | E. coli starter ve ekspresyon kültürlerinin sıcaklık kontrollü büyümesi |
| Sodyum klorür | Sigma Aldrich | S5886 | M9 medya bileşeni |
| Sonikasyon su banyosu ve vakum kaynağı | Thomas Scientific | Tampon çözeltilerinin gazını gidermek için kullanılır | |
| Sonicator | Thermo Fisher | FB505110 | Bakteriyel hücre lizisi veya bakteriyel DNA'nın kesilmesi için kullanılır |
| Spektrofotometre | Implen | OD600 Dilufotometre | E.coli protein ekspresyon kültürlerinin büyümesini izleyin |
| Superdex 200 16/600 boyut eksizyonu sütun | Cytvia | 28989333 | Son protein saflaştırma adımı |
| Topspin yazılımı, sürüm 3.2 veya üstü | Bruker | NMR cihazı için işletim yazılımı | |
| Dönüşüm yetkin E. coli hücreleri | Thermo Fisher | C600003 | Tek Atış BL21 Yıldız (DE3) kimyasal olarak yetkin E. coli, diğer suşlar uyumlu olabilir |
| Tris (2-karboksietil) fosfin (TCEP) | ThermoFisher | 20490 | Bazı sülfhidril-reaktif konjugasyonlarla uyumlu indirgeyici ajan |
| UV-Vis spektrofotometresi | Implen | NP80 | Protein konsantrasyonunu ölçün. |
| Su banyosu, sıcaklık kontrollü | ThermoFisher | FSGPD25 | Bakteri dönüşümünün ısı şoku basamağı için |
| Maya özü | Sigma Aldrich | Y1625 | Gerekirse M9 ortamını desteklemek için |
Kaynaklar
- Dyson, H. J., Wright, P. E. Intrinsically unstructured proteins and their functions. Nature Reviews: Molecular Cell Biology. 6 (3), 197-208 (2005).
- Korneta, I., Bujnicki, J. M. Intrinsic disorder in the human spliceosomal proteome. PLoS Computational Biology. 8 (8), 1002641(2012).
- Frege, T., Uversky, V. N. Intrinsically disordered proteins in the nucleus of human cells. Biochemistry and Biophysics Reports. 1, 33-51 (2015).
- Liu, J., et al. Intrinsic disorder in transcription factors. Biochemistry. 45 (22), 6873-6888 (2006).
- El Hadidy, N., Uversky, V. N. Intrinsic disorder of the BAF complex: Roles in chromatin remodeling and disease development. International Journal of Molecular Sciences. 20 (21), (2019).
- Wright, P. E., Dyson, H. J. Intrinsically disordered proteins in cellular signalling and regulation. Nature Reviews: Molecular Cell Biology. 16 (1), 18-29 (2015).
- Brangwynne, C. P. Phase transitions and size scaling of membrane-less organelles. Journal of Cell Biology. 203 (6), 875-881 (2013).
- Shin, Y., Brangwynne, C. P. Liquid phase condensation in cell physiology and disease. Science. 357 (6357), (2017).
- Cavanagh, J. Protein NMR spectroscopy : principles and practice. 1st edition. , Elsevier. (2018).
- Sekhar, A., Kay, L. E. NMR paves the way for atomic level descriptions of sparsely populated, transiently formed biomolecular conformers. Proceedings of the National Academy of Sciences of the United States of America. 110 (32), 12867-12874 (2013).
- Anthis, N. J., Clore, G. M. Visualizing transient dark states by NMR spectroscopy. Quarterly Reviews of Biophysics. 48 (1), 35-116 (2015).
- Alderson, T. R., Kay, L. E. NMR spectroscopy captures the essential role of dynamics in regulating biomolecular function. Cell. 184 (3), 577-595 (2021).
- Clore, G. M., Iwahara, J. Theory, practice, and applications of paramagnetic relaxation enhancement for the characterization of transient low-population states of biological macromolecules and their complexes. Chemical Reviews. 109 (9), 4108-4139 (2009).
- Wu, K. P., Baum, J. Detection of transient interchain interactions in the intrinsically disordered protein alpha-synuclein by NMR paramagnetic relaxation enhancement. Journal of the American Chemical Society. 132 (16), 5546-5547 (2010).
- Janowska, M. K., Wu, K. P., Baum, J. Unveiling transient protein-protein interactions that modulate inhibition of alpha-synuclein aggregation by beta-synuclein, a pre-synaptic protein that co-localizes with alpha-synuclein. Scientific Reports. 5, 15164(2015).
- Murthy, A. C., et al. Molecular interactions underlying liquid-liquid phase separation of the FUS low-complexity domain. Nature Structural & Molecular Biology. 26 (7), 637-648 (2019).
- Fawzi, N. L., Doucleff, M., Suh, J. Y., Clore, G. M. Mechanistic details of a protein-protein association pathway revealed by paramagnetic relaxation enhancement titration measurements. Proceedings of the National Academy of Sciences of the United States of America. 107 (4), 1379-1384 (2010).
- Griffith, O. H., Waggoner, A. S. Nitroxide free radicals: spin labels for probing biomolecular structure. Accounts of Chemical Research. 2 (2), 17-24 (1969).
- Bertini, I., Luchinat, C., Parigi, G., Ravera, E. NMR of Paramagnetic Macromolecules, Applications to Metallobiomolecules and Models. 2 edn. , Elsevier Science. (2016).
- Bloembergen, N., Purcell, E. M., Pound, R. V. Relaxation effects in nuclear magnetic resonance absorption. Physical Review. 73 (7), 679-712 (1948).
- Solomon, I. Relaxation processes in a system of two spins. Physical Review. 99 (2), 559(1955).
- Clore, G. M. Practical aspects of paramagnetic relaxation enhancement in biological macromolecules. Methods in Enzymology. 564, 485-497 (2015).
- Klare, J. P. Site-directed spin labeling EPR spectroscopy in protein research. Biological Chemistry. 394 (10), 1281-1300 (2013).
- Clore, G. M., Tang, C., Iwahara, J. Elucidating transient macromolecular interactions using paramagnetic relaxation enhancement. Current Opinion in Structural Biology. 17 (5), 603-616 (2007).
- Melanson, M., Sood, A., Torok, F., Torok, M. Introduction to spin label electron paramagnetic resonance spectroscopy of proteins. Biochemistry and Molecular Biology Education. 41 (3), 156-162 (2013).
- Czogalla, A., Pieciul, A., Jezierski, A., Sikorski, A. F. Attaching a spin to a protein -- site-directed spin labeling in structural biology. Acta Biochimica Polonica. 54 (2), 235-244 (2007).
- Lindfors, H. E., de Koning, P. E., Drijfhout, J. W., Venezia, B., Ubbink, M. Mobility of TOAC spin-labelled peptides binding to the Src SH3 domain studied by paramagnetic NMR. Journal of Biomolecular NMR. 41 (3), 157-167 (2008).
- Fawzi, N. L., et al. A rigid disulfide-linked nitroxide side chain simplifies the quantitative analysis of PRE data. Journal of Biomolecular NMR. 51 (1-2), 105-114 (2011).
- Bleicken, S., et al. gem-Diethyl pyrroline nitroxide spin labels: Synthesis, EPR characterization, rotamer libraries and biocompatibility. ChemistryOpen. 8 (8), 1035(2019).
- Iwahara, J., Tang, C., Clore, G. M. Practical aspects of 1H transverse paramagnetic relaxation enhancement measurements on macromolecules. Journal of Magnetic Resonance. 184, 185-195 (2007).
- Venditti, V., Fawzi, N. L. Probing the atomic structure of transient protein contacts by paramagnetic relaxation enhancement solution NMR. Methods in Molecular Biology. 1688, 243-255 (2018).
- Delaglio, F., et al. NMRPipe: a multidimensional spectral processing system based on UNIX pipes. Journal of Biomolecular NMR. 6 (3), 277-293 (1995).
- Lee, W., Tonelli, M., Markley, J. L. NMRFAM-SPARKY: enhanced software for biomolecular NMR spectroscopy. Bioinformatics. 31 (8), 1325-1327 (2015).
- Vranken, W. F., et al. The CCPN data model for NMR spectroscopy: development of a software pipeline. Proteins. 59 (4), 687-696 (2005).
- Johnson, B. A. Using NMRView to visualize and analyze the NMR spectra of macromolecules. Methods in Molecular Biology. 278, 313-352 (2004).
- Sjodt, M., Clubb, R. T. Nitroxide labeling of proteins and the determination of paramagnetic relaxation derived distance restraints for NMR studies. Bio-Protocol. 7 (7), (2017).
- Zhang, H., van Ingen, H. Isotope-labeling strategies for solution NMR studies of macromolecular assemblies. Current Opinion in Structural Biology. 38, 75-82 (2016).
- Rabdano, S. O., et al. Onset of disorder and protein aggregation due to oxidation-induced intermolecular disulfide bonds: case study of RRM2 domain from TDP-43. Scientific Reports. 7 (1), 11161(2017).
- Burns, J. A., Butler, J. C., Moran, J., Whitesides, G. M. Selective reduction of disulfides by tris(2-carboxyethyl)phosphine. Journal of Organic Chemistry. 56 (8), 2648-2650 (1991).
- Ellman, G. L. Tissue sulfhydryl groups. Archives of Biochemistry and Biophysics. 82 (1), 70-77 (1959).
- Binbuga, B., Boroujerdi, A. F., Young, J. K. Structure in an extreme environment: NMR at high salt. Protein Science. 16 (8), 1783-1787 (2007).
- Schwartz, J. C., Cech, T. R., Parker, R. R. Biochemical properties and biological functions of FET proteins. Annual Review of Biochemistry. 84, 355-379 (2015).
- Nabuurs, S. M., de Kort, B. J., Westphal, A. H., van Mierlo, C. P. Non-native hydrophobic interactions detected in unfolded apoflavodoxin by paramagnetic relaxation enhancement. European Biophysics Journal. 39 (4), 689-698 (2010).
- Wiedemann, C., Kumar, A., Lang, A., Ohlenschlager, O. Cysteines and disulfide bonds as structure-forming units: Insights from different domains of life and the potential for characterization by NMR. Frontiers in Chemistry. 8, 280(2020).
- Wommack, A. J., et al. NMR solution structure and condition-dependent oligomerization of the antimicrobial peptide human defensin 5. Biochemistry. 51 (48), 9624-9637 (2012).
- Taylor, A. M., et al. Detailed characterization of cysteine-less P-glycoprotein reveals subtle pharmacological differences in function from wild-type protein. British Journal of Pharmacology. 134 (8), 1609-1618 (2001).
- Hu, K., Doucleff, M., Clore, G. M. Using multiple quantum coherence to increase the 15N resolution in a three-dimensional TROSY HNCO experiment for accurate PRE and RDC measurements. Journal of Magnetic Resonance. 200 (2), 173-177 (2009).
- Anthis, N. J., Doucleff, M., Clore, G. M. Transient, sparsely populated compact states of apo and calcium-loaded calmodulin probed by paramagnetic relaxation enhancement: interplay of conformational selection and induced fit. Journal of the American Chemical Society. 133 (46), 18966-18974 (2011).
- Battiste, J. L., Wagner, G. Utilization of site-directed spin labeling and high-resolution heteronuclear nuclear magnetic resonance for global fold determination of large proteins with limited nuclear overhauser effect data. Biochemistry. 39 (18), 5355-5365 (2000).
- Donaldson, L. W., et al. Structural characterization of proteins with an attached ATCUN motif by paramagnetic relaxation enhancement NMR spectroscopy. Journal of the American Chemical Society. 123 (40), 9843-9847 (2001).
- Gaponenko, V., et al. Protein global fold determination using site-directed spin and isotope labeling. Protein Science. 9 (2), 302-309 (2000).
- Trindade, I. B., Invernici, M., Cantini, F., Louro, R. O., Piccioli, M. PRE-driven protein NMR structures: an alternative approach in highly paramagnetic systems. FEBS Journal. 288 (9), 3010-3023 (2021).
- Nitsche, C., Otting, G. Pseudocontact shifts in biomolecular NMR using paramagnetic metal tags. Progress in Nuclear Magnetic Resonance Spectroscopy. 98-99, 20-49 (2017).
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Yeniden basım ve izinler
