Burada, fotoreseptör membran proteinlerinin lokalizasyonu ve eGFP floresan kullanılarak Drosophila bileşik gözünde retinal dejenerasyonun değerlendirilmesi için non-invaziv yöntemler tanımlanmıştır.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Yöntem makalesi
eGFP Etiketli Proteinler Kullanarak Drosophila Fotoreseptör Hücrelerinde Membran Protein Kaçakçılığının İncelenmesi
Bu makalede
Özet
Özet
Membran proteini kaçakçılığı, reseptörlerin ve iyon kanallarının plazma zarına dahil edilmesini ve uzaklaştırılmasını düzenler. Bu süreç, nöronların hücre fonksiyonu ve hücre bütünlüğü için temel olarak önemlidir. Drosophila fotoreseptör hücreleri, membran protein kaçakçılığını incelemek için bir model haline gelmiştir. Aydınlatma üzerine fotoreseptör zarından içselleştirilen ve parçalanan rodopsinin yanı sıra, Drosophila'daki geçici reseptör potansiyeli benzeri (TRPL) iyon kanalı, rabdomeral fotoreseptör membranı (karanlıkta bulunduğu yer) ile fotoreseptör hücre gövdesi (aydınlatma üzerine taşındığı) arasında ışığa bağımlı bir translokasyon sergiler. TRPL'nin bu hücre içi transportu, fotoreseptör hücrelerinde eGFP etiketli TRPL'yi eksprese ederek basit ve invaziv olmayan bir şekilde incelenebilir. eGFP floresansı daha sonra derin psödopupilde veya suya daldırma mikroskobu ile gözlemlenebilir. Bu yöntemler, sağlam gözde floresan tespitine izin verir ve bu nedenle TRPL translokasyonunda kusurlu Drosophila mutantları için yüksek verimli testler ve genetik ekranlar için yararlıdır. Burada, sineklerin hazırlanması, mikroskobik teknikler ve TRPL'nin bu ışıkla tetiklenen translokasyonunu incelemek için kullanılan niceleme yöntemleri ayrıntılı olarak açıklanmaktadır. Bu yöntemler, rodopsin gibi diğer Drosophila fotoreseptör proteinleri üzerindeki kaçakçılık çalışmaları için de uygulanabilir. Ek olarak, eGFP etiketli rabdomeral proteinler kullanılarak, bu yöntemler fotoreseptör hücrelerinin dejenerasyonunu değerlendirmek için kullanılabilir.
Giriş
Proteinleri plazma zarına ve plazma zarından uzaklaştırarak, nöronlardaki membran proteini kaçakçılığı, plazma zarı ekipmanını reseptörlerin yanı sıra iyon kanallarıyla kontrol eder ve sonuç olarak nöronal fonksiyonu düzenler. Protein kaçakçılığındaki yanlış düzenleme veya kusurlar tipik olarak hücreler üzerinde zararlı etkilere sahiptir ve nöronal dejenerasyona neden olur. İnsanlarda bu, Alzheimer ve Parkinson hastalığı veya Retinitis pigmentosa1 gibi nörodejeneratif hastalıklara neden olabilir. Drosophila melanogaster'in bileşik gözündeki fotoreseptörler, membran proteini kaçakçılığını incelemek için in vivo bir model sistemi haline gelmiştir2. Bu sadece etkili genetik taramalara izin veren Drosophila'nın genetik çok yönlülüğünden değil, aynı zamanda ışık emici fotoreseptör membranın tüm temel bileşenlerinin çok ayrıntılı bir şekilde karakterize edilmesinden ve sinek gözüne uygulanabilecek verimli mikroskobik tekniklerin mevcut olmasından kaynaklanmaktadır. Bu teknikler bu makalenin odak noktasıdır.
Drosophila fotoreseptör hücrelerinde, apikal plazma zarı, hücrenin bir tarafı boyunca rabdomere adı verilen yoğun bir şekilde paketlenmiş bir mikrovillus yığını oluşturur. Fotoreseptör hücreler R1-6'nın rabdomerleri karakteristik bir yamuk paterninde düzenlenirken, fotoreseptör hücreleri R7 ve R8 bu yamuk3'ün merkezinde tek bir rabdomere oluşturur. Membran proteini kaçakçılığı, rabdopsin ve ışıkla aktive edilen TRP (geçici reseptör potansiyeli) ve TRPL (TRP benzeri) iyon kanalları gibi rabdomeral membran proteinlerinin düzenlenmiş bir devri için, rabdomaverdeki bu fototransdüksiyon proteinlerinin uygun miktarını sağlamak için gereklidir. Fotoreseptör membran proteinleri endoplazmik retikulumda sentezlenir ve Golgi aparatı aracılığıyla rabdomere taşınır. Rodopsinin ışıkla aktivasyonunu takiben, bir rodopsin molekülü ya ikinci bir fotonun emilimi ile inaktive olabilir ya da klatrin aracılı endositoz ile rabdomere'den çıkarılabilir. Endositozlu rodopsin lizozomda bozulur veya rabdomere 4,5'e geri dönüştürülür. İyon kanalı TRPL, fototransdüksiyon kaskadının aktivasyonunu takiben de içselleştirilir ve rabdomere (sinekler karanlıkta tutulduğunda bulunduğu yer) ile hücre gövdesindeki ER ile zenginleştirilmiş bir saklama bölmesi (aydınlatmadan sonra birkaç saat içinde taşındığı) arasında ışığa bağımlı bir translokasyona uğrar6,7,8,9,10 . Endositozlu rodopsinin aksine, endolizozomal yol yoluyla sadece az miktarda TRPL parçalanır ve çoğunluğu hücre içi olarak depolanır ve karanlık adaptasyon6 üzerine rabdomere geri dönüştürülür. TRPL böylece plazma membran proteinlerinin ışıkla tetiklenen trafiğini analiz etmek için kullanılabilir. Drosophila fotoreseptör hücreleri ayrıca nöronal dejenerasyonu incelemek için de kullanılır. Fotoreseptör hücre dejenerasyonu sıklıkla dejeneratif süreçlerin bir sonucu olarak parçalanan rabdomerlerin yapısının değerlendirilmesiyle belirlenir5.
Fotoreseptör hücrelerde TRPL ve rodopsinin hücre altı lokalizasyonunu veya fotoreseptör hücre dejenerasyonunu incelemek için, analiz hızı ve çözünürlüğü açısından farklılık gösteren iki floresan mikroskopi yöntemi burada uygulanmıştır. Genetik ekranlar için kullanılabilecek, ancak sınırlı bir uzamsal çözünürlüğe sahip çok hızlı, invaziv olmayan bir yöntem, derin psödopupilla (DPP) floresan tespitidir. DPP, geometrik kökeni Franceschini ve Kirschfeld tarafından 1971'de ayrıntılı olarak açıklanan eklembacaklı bileşik gözlerin optik bir fenomenidir11. Kısacası, retina kaplamasının altındaki birkaç optik düzlemde, bitişik ommatidiadan rabdomerlerin görüntüleri gözlenebilir. Gözün eğriliğinin merkezinden geçen bir odak düzleminde, üst üste binen bu projeksiyonlar, tek bir ommatidiyumda rabdomerlerin yamuk düzenine benzeyen bir görüntü oluşturur. Bu fenomen, floresan proteinlerinin (örneğin TRPL::eGFP8) eksojen ekspresyonundan bağımsız olarak da gözlemlenebilir, bu da DPP'nin tespit edilmesini kolaylaştırır (Şekil 1A-A'')12. İkinci bir non-invaziv yöntem, gözlerin diyoptrik aparatını suyla optik olarak nötralize ettikten sonra floresan olarak etiketlenmiş proteinlerin görüntülenmesine dayanan su daldırma mikroskopisidir (Şekil 1B-C '')12. Suya daldırma yöntemi kullanılarak, rabdomerlerdeki veya hücre gövdesindeki göreceli TRPL::eGFP miktarı, bireysel fotoreseptör hücreler için kantitatif olarak değerlendirilebilir. Ayrıca, yer değiştirmeyen floresan etiketli proteinler, rabdomeral bütünlüğü değerlendirmek ve burada açıklandığı gibi potansiyel bir dejenerasyonun zaman seyrini nicel bir şekilde belirlemek için kullanılabilir.
DPP'nin kayıtları, bu yöntemlerin gerçekleştirilmesi en kolay ve en hızlısı olsa da, ürettikleri verilerin uzamsal çözünürlüğü sınırlıdır. Ek olarak, bir DPP'nin bulunmamasının birçok nedeni vardır, bunlar DPP görüntülemenin kendisi tarafından mutlaka fark edilemez. DPP birkaç ommatidinin toplamını temsil ettiğinden, bireysel hücreler hakkındaki bilgiler kaybolur. Bu nedenle, düşük çözünürlüklü DPP görüntüleme, çok sayıda sineğin taranmasında önemli bir işlev görür, ancak genellikle suya daldırma mikroskobu yoluyla daha yüksek çözünürlüklü kayıtlar tarafından takip edilmelidir. Suya daldırma mikrografları, bireysel hücreler, gelişimsel kusurlar, göz morfolojisi, protein yanlış lokalizasyonu veya retina dejenerasyonu hakkında yorumlara ve bu etkilerin nicelleştirilmesine izin verir. Bu Protokol bu iki tekniği ayrıntılı olarak açıklamaktadır.
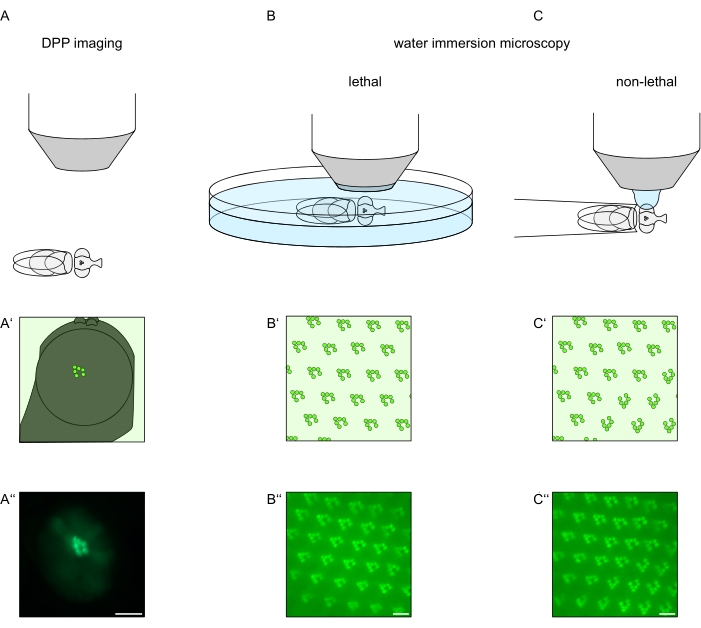
Şekil 1: Bu Protokolde sunulan Drosophila gözü için mikroskopi varyasyonlarına genel bakış. (A-A'') floresan derin psödopupil (DPP) görüntüleme, (B-B'') floresan rabdomerlerin ölümcül suya daldırma mikroskobu ve (C-C'') floresan rabdomerlerin ölümcül olmayan su damlası mikroskopisinin şematik gösterimleri ve örnek mikrografları. Ölçek çubuğu (A''): 100 μm. Ölçek çubukları (B''-C''): 10 μm. Şekil referans13'ten değiştirilmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Protokol
1. Genel hususlar
- Morfolojik analiz için kalıcı rabdomeral olarak yerleştirilmiş bir floresan proteinini ifade eden Drosophila stoklarını kullanın (örneğin, TRP::eGFP, eGFP::NINAC) ve protein kaçakçılığı ile ilgili analizler için proteinleri yer değiştiren (örneğin, TRPL::eGFP, Arr2::eGFP).
- Deneysel yaklaşım için seçilen sineklerin ışığa maruz kalma koşullarını önceden belirleyin.
- Karanlık adaptasyon için, sinekleri 25 ° C'de istenen süre boyunca karanlık kutularda saklayın. Translokasyon deneylerinde 16 saate kadar aydınlatma için (örneğin, TRPL::eGFP sinekleri ifade eden), sinekleri oda sıcaklığında bir floresan tüpün altında tutun.
- Fotoreseptör dejenerasyonunu değerlendiren deneylerde (örneğin, TRP::eGFP sinekleri ifade eder), beyaz ışıkla 28 güne kadar uzun süreli aydınlatma için sinekleri 12 saatlik bir ışık / 12 saatlik karanlık döngüde 25 ° C'de bir floresan tüpün altında tutun.
- Sinekleri renkli ışıkla aydınlatmak için, floresan tüp ile birlikte farklı renkli şeffaf plastik kutular kullanın.
- Pigmentli gözlü sinek stokları kullanılırsa, göz pigmentasyonu yaşla birlikte önemli ölçüde artabileceğinden, karşılaştırmalı analiz için hayvanları tam olarak yaşlandırın.
NOT: Veri yorumlama için, rabdomeral yapının optik dalga yönlendirme etkisinden dolayı bir sinyal yanlılığı olduğuna dikkat etmek önemlidir. Buna göre, rabdomere'den gelen floresan sinyali, DPP görüntüleme ve su daldırma mikroskobunda hücre gövdesinden elde edilen sinyallere göre her zaman belirli bir dereceye kadar yükseltilecektir. Bu, en belirgin şekilde, rabdomerlerin dışından floresanın bu pigmentler tarafından emildiği pigmentli gözlerde görülür ve hücre içi olarak yer değiştiren füzyon proteinleri tespit edildiğinde özellikle önemlidir. Bu nedenle, kritik adımlarla ilgili olarak, bu çalışma beyaz ve kırmızı gözlü sinekleri ayrı ayrı ele almaktadır. - Suya daldırma mikroskobu ile ilgili olarak, iki varyasyon tanımlanmıştır. Daha hızlı bir ölümcül varyasyonun yanı sıra sonraki çalışmalar için iyileşmeye izin veren ölümcül olmayan bir varyasyon.
2. DPP görüntüleme
- Çalışma alanını Şekil 2'de gösterildiği gibi gerekli ekipman ve reaktiflerle hazırlayın. Bir flypad üzerinde CO2 ile fotoreseptör hücrelerde bir floresan proteini eksprese eden bir genotipin sineklerini (1-3 günlük) anestezi altına alın. Geleneksel bir ışık kaynağına ve düşük büyütmeye (örneğin, 10x) sahip bir stereo mikroskop altında görüntüleme için hayvanları seçin.
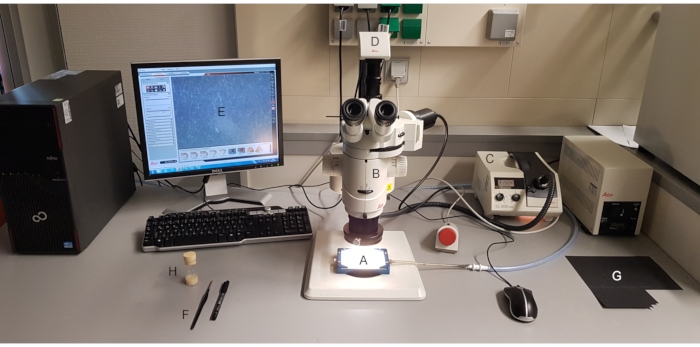
Şekil 2: DPP görüntüleme çalışma alanı. İhtiyaç duyulan malzemeler (A) CO2 anestezi aparatı, (B) UV lambalı ve floresan filtre setli stereo mikroskop, (C) ışık kaynağı, (D) (E) yazılımlı mikroskopa monte kamera, (F) boya fırçası, (G) siyah karton ve (H) sinek şişesidir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
- DPP görüntüleme için, seçilen sinekleri anestezi altında tutun ve bunlardan birini mikroskop hedefinin merkezine yan tarafına yerleştirin, böylece sol veya sağ göz hedefe tam olarak radyal olarak bakar (Şekil 3A).
NOT: Fotoreseptör hücrelerin ommatidiyal düzeni, dorsoventral orta hatta ayna simetrisi gösterdiğinden, DPP en iyi gözün ekvatorunun biraz üstünde veya altında gözlenir (Şekil 3B).
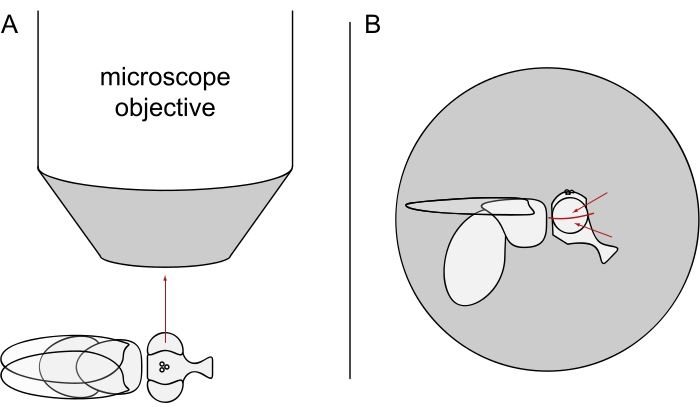
Şekil 3: DPP görüntüleme için sineğin stereomikroskop altında konumlandırılması . (A) Sineğin yan tarafında, bir gözü mikroskop hedefine radyal olarak bakacak şekilde gösterilmesi. (B) Sinek başının hafifçe yukarı veya aşağı çevrilmesi gerekir, böylece hedef, kırmızı oklarla gösterildiği gibi gözün ekvatorunun biraz üstünde veya altında bir noktaya odaklanır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
- Büyütmeyi tüm göze uyacak şekilde artırın (örneğin, 100x) ve gözün merkezi ommatidisini ortalayın. Mikroskopun alan derinliğini azaltın, örneğin çift iris diyaframını sığ bir ayara ayarlayarak (Şekil 4A-B').
- Geleneksel ışık kaynağını kapatın ve mikroskop UV lambasını maksimum yoğunlukta açın ve mikroskopun floresan filtre setini gözlerde ifade edilen floresan proteinine göre seçin (Şekil 4C-E). Işık yolunu mikroskopa monte edilmiş kameraya doğru ayarlayın.
- Pozlama süresini ayarlayarak ve değer kazanarak (örneğin, sırasıyla 80 ms ve 12x) görüntüdeki parlaklığı yalnızca belirli sinyalleri algılayan bir ayara ayarlamak için yazılımdaki canlı görüntüleme özelliğini kullanın. DPP'nin üst üste binmiş görüntüsünü oluşturmak için mikroskop odağını gözün içine (korneanın altından) "re" ayarlayın (Şekil 4C-E').
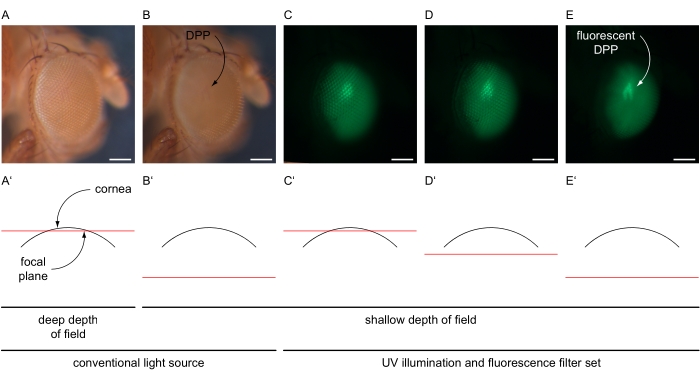
Şekil 4: DPP ve floresan DPP görüntüleme çizimi. GFP filtre seti ile geleneksel ve UV aydınlatması altında Drosophila gözlerinin örnek görüntüleri, göz yoluyla şematik kesitlerde gösterilen değişen odak düzlemleriyle çekilmiştir. (A) Geleneksel bir ışık kaynağının parlak ayarları, 30 ms pozlama süresi, 1x kazanç, derin alan derinliği ve (A') da gösterildiği gibi kornea yüzeyine yakın odak düzlemi ile kaydedilen mikrograf. (B) Geleneksel bir ışık kaynağının parlak ayarları, 30 ms pozlama süresi, 1x kazanç, sığ alan derinliği ve odak düzlemi ile kaydedilen mikrograf, (B') de gösterildiği gibi kornea yüzeyinin yaklaşık 180 μm altında. DPP belirtti. (C-E) UV ışık kaynağı ve GFP filtre setinin yüksek yoğunluklu ayarları, 80 ms maruz kalma süresi, 12x kazanç, sığ alan derinliği ve kornea yüzeyinin yaklaşık 180 μm altında (D') yakın, (D') veya (E') odak düzlemi (C') ile kaydedilen mikrograf. Floresan DPP kavisli bir okla gösterilir. Ölçek çubuğu 100 μm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
- Floresan DPP'nin anlık görüntüsünü alın. Mikroskopu tekrar görünür ışığa ve ışık yolunu okülerlere doğru geri çevirin. DPP fenotipine (örneğin, haçlar) göre daha fazla işlem için görüntülenen hayvanı bir sinek şişesinde kurtarın. Adım 2.2'deki bir sonraki hayvanla devam edin.
3. Su daldırma mikroskobu
- Sinek hazırlığı
- Çalışma alanını Şekil 5'te gösterildiği gibi gerekli ekipman ve reaktiflerle hazırlayın. Önceden belirlenmiş yaş ve aydınlatma koşullarına sahip sinekleri önceden soğutulmuş 15 mL'lik bir santrifüj tüpüne aktarın ve 15 ila 30 dakika boyunca buz üzerinde inkübe ederek anestezi yapın.
NOT: 1 günlük, karanlığa adapte olmuş sinekleri referans olarak yanınızda taşıyın. Genel olarak, karanlığa adapte olmuş sinekler, karanlıkta kapaklı bir buz kutusuna aktarılmalıdır. Işığa adapte olmuş sinekler oda ışığında buza aktarılabilir.
- Çalışma alanını Şekil 5'te gösterildiği gibi gerekli ekipman ve reaktiflerle hazırlayın. Önceden belirlenmiş yaş ve aydınlatma koşullarına sahip sinekleri önceden soğutulmuş 15 mL'lik bir santrifüj tüpüne aktarın ve 15 ila 30 dakika boyunca buz üzerinde inkübe ederek anestezi yapın.
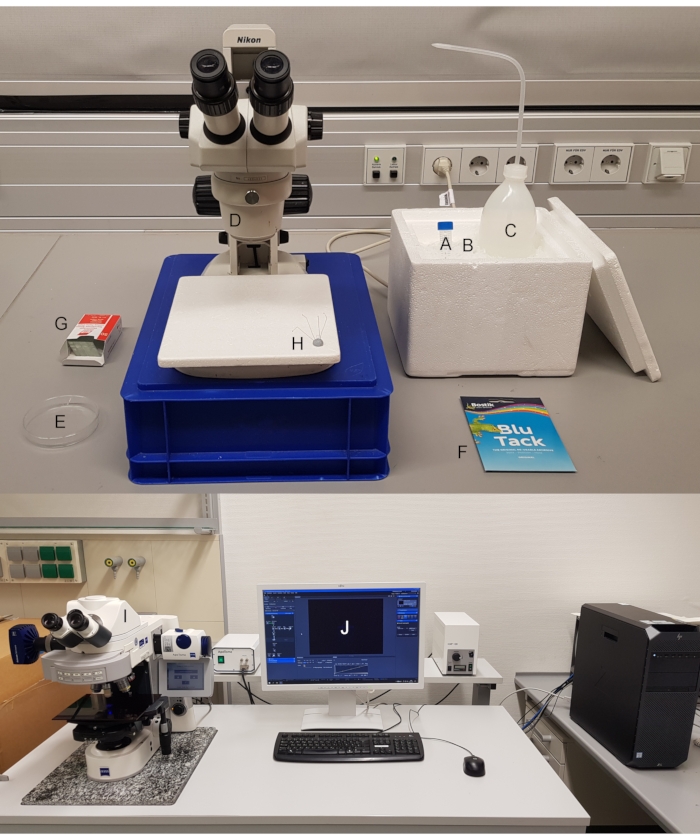
Şekil 5: Suya daldırma mikroskobu çalışma alanı. İhtiyaç duyulan malzemeler şunlardır: (A) 15 mL santrifüj tüpü, (B) buz gevreği, (C) soğutulmuş damıtılmış su, (D) stereomikroskop, (E) Petri kabı, (F) hamuru, (G) nesne slaytı, (H) böcek pimleri veya pipet uçları ve neşter, (I) (J) yazılımlı floresan mikroskop. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
- Aşağıda açıklanan ikisinden uygun preparatı seçin (3.1.3 ölümcül varyasyon veya 3.1.7 ölümcül olmayan varyasyon) ve pigmentli ve pigmentsiz gözler arasında ayrım yapıldığında, ilgili adımları izleyin.
- Sinekleri ölümcül varyasyon için aşağıdaki gibi hazırlayın.
- Bir parça hamuru bir nesne kaydırağına ve başka bir parçayı Petri kabının ortasına (örneğin, 94 mm Ø) yapıştırın ve şimdilik ayrı tutun. Petri kabını buzla soğutulmuş damıtılmış su ve biraz buz gevreği ile doldurun (Şekil 6A).
- Hamuru kaplı nesne slaytının üzerine bir stereomikroskop altına buz anestezili bir sinek koyun. Sineği sırtına çevirin ve göğüs kafesinin ortasından bir böcek iğnesini delin (Şekil 6B). Pimi hamuru kaplı nesne sürgüsüne yatay olarak sabitleyin ve sineğin sol veya sağ gözünü yukarı doğru yönlendirin (Şekil 6C).
- Hamuru içermeyen tarafı aşağı bakacak şekilde nesne kızağını Petri kabına dikkatlice sabitleyin ve sineğin dönmesini önleyin. Sinek gözünün suyla kaplı olduğundan emin olun (Şekil 6D). Göz çevresinde oluşmuş olabilecek hava kabarcıklarını dikkatlice çıkarmak için bir hazırlama iğnesi kullanın ve en iyi sonuçlar için hemen görüntü almaya devam edin.
NOT: Görüntü yakalamadaki önemli gecikme, sineğin yeniden uyanmasına ve hareketlerine neden olur ve bu da bulanık görüntülere neden olabilir.
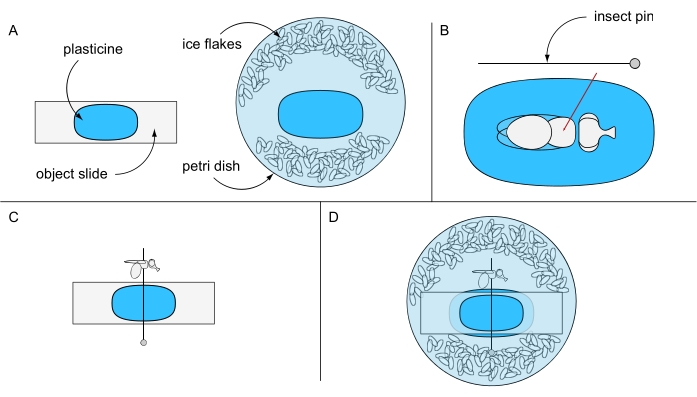
Şekil 6: Ölümcül suya daldırma mikroskobu için hazırlık. (A) hamuru kaplı nesne slaytının ve Petri kabının çizimi, (B) bir sineğin toraks boyunca hamuru zemine sabitlenmesi, (C) hamuru kaplı nesne slaytı üzerinde sinek oryantasyonu ve (D) son deney düzeneği. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
- Sinekleri ölümcül olmayan varyasyon için aşağıdaki gibi hazırlayın.
- Buzla uyuşturulmuş bir sineği kafa kafaya 200 μL'lik bir pipet ucuna aktarın ve sineği basınçlı hava ile dikkatlice uca doğru itin.
- Pipet ucunu başın hemen önünde bir neşter kullanarak kesin. Cımbız kullanarak, sineği uçtan birkaç milimetre uzağa dikkatlice itin. Pipet ucunu tekrar kesin ve sineği basınçlı hava ile uca doğru geri itin, böylece sineğin başı pipet ucundan sadece çıkıntı yapar.
- Bir parça hamuru bir nesne sürgüsüne yapıştırın ve pipet ucunu sineğin sol veya sağ gözü yukarı bakacak şekilde içine bastırın (Şekil 7A). Görüntü elde etmeden hemen önce, suya daldırma hedefinin alt tarafına büyük bir damla soğutulmuş su yapıştırmak için bir laboratuvar pipeti kullanın (Şekil 7B). En iyi sonuçlar için hemen görüntü alımına geçin.
NOT: Görüntü yakalamadaki önemli gecikme, sineğin yeniden uyanmasına ve hareketlerine neden olur ve bu da bulanık görüntülere neden olabilir.
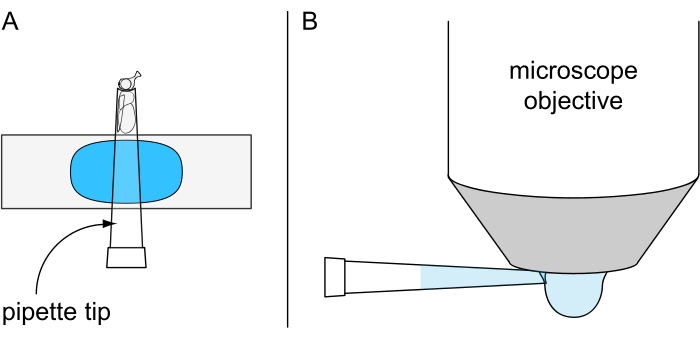
Şekil 7: Ölümcül olmayan su damlası mikroskobu için hazırlık. (A) hamuru kaplı nesne sürgüsü üzerine monte edilmiş 200 μL'lik bir pipet ucunun içine sabitlenmiş soğuk anestezili bir sineğin ve (B) suya daldırma hedefinin alt tarafına soğutulmuş su damlası uygulamasının gösterimi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
- Görüntü alma
- Petri kabını (adım 3.1.3) veya nesne kaydırağını (adım 3.1.7) hazırlanan sinekle mikroskop aşamasına dikkatlice yerleştirin ve bir suya daldırma hedefi seçin.
- Su daldırma hedefini, su yüzeyine temas edene kadar (adım 3.1.3) veya sineğin gözü damlaya dokunana kadar (adım 3.1.7) manuel olarak alçaltın (Şekil 8A, B).
- Mikroskop UV lambasını açın ve uygun filtre setini seçin. Sineği hedefin altına konumlandırmak için göz merceklerini kullanın ve mikroskopu gözün yüzeyine odaklayın.
- Işık yolunu mikroskop kamerasına doğru değiştirin ve ilgili yazılımda canlı bir görüntü oluşturun. Kamera için odağı yeniden ayarlayın ve gözün yönünü değerlendirin, gözün Şekil 8C-E'de daha ayrıntılı olarak gösterildiği gibi mikroskop hedefine radyal olarak bakması gerektiğini göz önünde bulundurun.
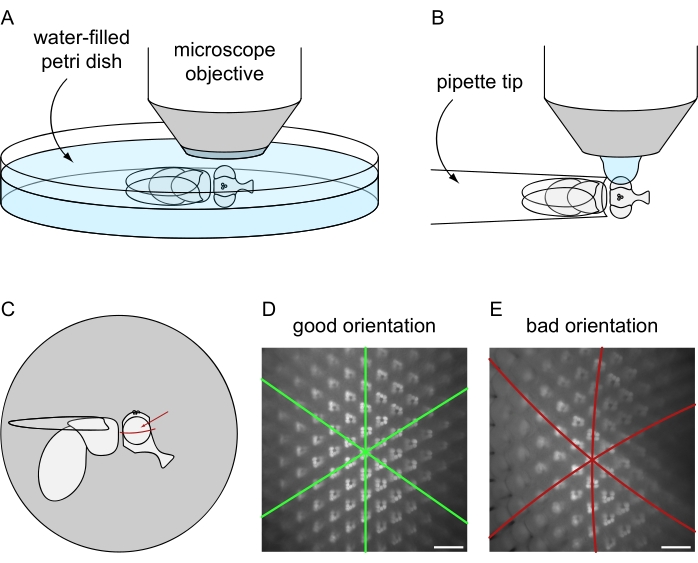
Şekil 8: Suya daldırma görüntüleme için sineğin floresan mikroskobu altında konumlandırılması. (A) ölümcül veya (B) ölümcül olmayan sinek hazırlama protokollerini kullanarak görüntü yakalama için kurulum ve son oryantasyon. (C) Suya daldırma mikroskobu görüntülerinin en iyi sonuçlarını elde etmek için sinek oryantasyonunun gösterilmesi. Göze odaklanmak için ideal nokta, anterior / posterior ve dorsal / ventral eksenlere göre tam merkez değil, kırmızı okla gösterildiği gibi gözün ekvatorunun biraz üzerindedir. (D) Mükemmel konumlandırılmış bir göz için suya daldırma görüntüsü örneği. Altıgen ommatidial döşemenin üç simetri ekseni de düz çizgiler olarak görünür ve maksimum ommatidia miktarı aynı anda odakta olabilir. (E) Yanlış konumlandırılmış bir gözün suya daldırma görüntüsü örneği. Görüntü kavisli eksenler ve sığ bir alan derinliği içerir. Ölçek çubuğu: 20 μm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
- Aşırı doygunluğu (kırmızı pikseller olarak belirtilir) algılamak için görüntüleme yazılımında uygun LUT'u (arama tablosu) kullanın.
- Pigmentli olmayan sinekler söz konusu olduğunda, pozlama süresini, en parlak pikseller her görüntü için doygunluk sınırının hemen altında olacak şekilde ayarlayın.
- Pigmentli sinekler ve ölümcül varyasyon durumunda, maruz kalma süresini, en parlak piksellerin tümü, en az beş bireysel 1 günlük, karanlığa adapte olmuş sineklerde doygunluk sınırının hemen altında olacak şekilde ayarlayın. Hesaplanan ortalama maruz kalma süresini diğer tüm deneysel koşullara (genotipler, aydınlatma koşulları, zaman noktaları vb.) uygulayın.
- Pigmentli sinekler (örneğin, kırmızı gözlü) ve ölümcül olmayan varyasyon durumunda, pozlama süresini, en parlak piksellerin her 1 günlük, koyu renkli uyarlanmış sinek için doygunluk sınırının hemen altında olacak şekilde ayarlayın. Bu maruz kalma süresini, bu sineğin diğer tüm deneysel koşullarına (aydınlatma koşulları, zaman noktaları vb.) uygulayın.
- Bir görüntü kaydedin ve kaydın ilgili tüm meta verilerini arşivlemek için ham dosya olarak kaydedin. Aşağıdaki nicelik için görüntüyü .tif bir biçimde dışa aktarın.
NOT: Ölümcül olmayan varyasyon durumunda, daha fazla deney için kullanılmak isteniyorsa, görüntü elde edildikten hemen sonra sinekleri 5 dakika boyunca kırmızı ışıkla (örneğin, 630 nm) aydınlatın. Kırmızı ışık, görüntü yakalama sırasında yoğun kısa dalgalı ışık tarafından aşırı derecede etkinleştirilen fototransdüksiyon kaskadını devre dışı bırakır.
- Su daldırma mikrograflarının rabdomerlerinde bağıl eGFP floresansının veri analizi ve nicelleştirilmesi
- ImageJ/Fiji yazılımını indirin, kurun ve çalıştırın.
- ImageJ ayarlarını Analiz Et > Ölçümleri Ayarla... tıklayın ve yalnızca Ortalama Gri Değer kutusunu işaretleyin. Dosya .tif Aç'a tıklayarak > bir resmi içe aktarın... veya sürükleyip bırakarak. Görüntünün odakta olan temsili bir bölgesini seçin ve Ctrl ve + tuşlarına art arda basarak 0-00 oranında büyütün.
- Oval aracı seçin ve Shift tuşuna basarken görüntüde bir floresan rabdomere'den önemli ölçüde daha küçük olan dairesel bir seçim oluşturun. Fare düğmesini bırakmadan önce, ImageJ ana penceresindeki araç çubuğunun altında görüntülenen tam boyutu arayın. Tüm analizler için aynı boyutta dairesel seçim kullanın.
NOT: Dairesel seçimin piksel veya mikron cinsinden tam boyutu, belirli kuruluma bağlıdır. 1 günlük, karanlığa adapte olmuş kontrol sineklerinin rabdomeral çapının yaklaşık 1/3 veya 1/4'ü kadar bir daire kullanın. - Dairesel seçimi, fareyle tıklatıp sürükleyerek veya klavyedeki Ok Tuşlarına basarak hareket ettirin.
- Dairesel seçim içindeki floresan yoğunluklarını ölçmek için, daireyi ilk rabdomere (r1) taşıyın ve Analiz Et > Ölç'e tıklayın veya Ctrl + M kısayolunu kullanın. Ölçülen gri değeri listeleyen bir Sonuç penceresi açılır.
- Tekrarlanan ölçümler olarak r2-r6 ölçümleri ve arka plan sinyalinin (b) ölçümü ile devam edin. Pigmentli olmayan sinekler söz konusu olduğunda, karşılık gelen hücre vücut alanlarının (c1-c6) ek ölçümlerini yapın (Şekil 9).
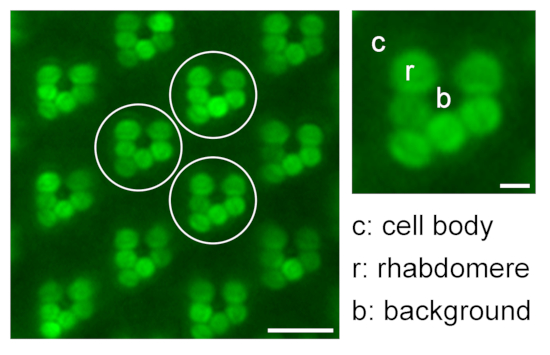
Şekil 9: Translokasyon çalışmaları için bağıl rabdomeral floresanın miktarı. Bir su daldırma mikroskobu görüntüsünde üç farklı temsili ommatidianın (beyaz daireler) rabdomerin (r), hücre gövdesinin (c) ve arka planının (b) floresan yoğunluğunu ölçerek rabdomerlerdeki nispi eGFP floresansının nicelleştirilmesine ilişkin bir örnek; ölçek çubuğu: 10 μm. Sağda büyütülmüş bir ommatidyum gösterilir; ölçek çubuğu: 2 μm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
- İki ommatidia daha için 3.3.5 ve 3.3.6 adımlarını yineleyin ve üç teknik çoğaltma elde edin. Kurşun Kalem aracını kullanarak analiz edilen ommatidiayı işaretleyin ve bu görüntüyü dokümantasyon için kaydedin.
- Sonuç penceresinden ölçülen gri değerleri seçip kopyalayın ve daha fazla hesaplama için bunları elektronik tablo yazılımına yapıştırın. Floresan yoğunluğunun değerlerini kökenlerine göre rabdomere (r), hücre gövdesi (c) ve arka plan (b) kategorilerine göre sıralayın. Her kategoriden ortalama yoğunluğu hesaplayın (I r, Ic, Ib).
- Pigmentli olmayanlar için aşağıdaki formülü (1) ve pigmentli gözler için formülü (2) kullanarak rabdomerde ( R ) bulunan göreceli eGFP miktarını hesaplayın:
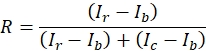 (1)
 (2)
- 3.3.3 adımındaki bir sonraki görüntüyle devam edin. Güvenilir bir ölçüm elde etmek için her deney grubunun en az beş bireyinden gelen görüntülerin biyolojik kopyalar olarak kullanılması önerilir.
- Suya daldırma mikrograflarında eGFP floresan ile göz morfolojisinin veri analizi ve nicelleştirilmesi
- ImageJ/Fiji yazılımını indirin, kurun ve çalıştırın. Dosya .tif Aç'a tıklayarak veya sürükleyip bırakarak > bir resmi içe aktarın. Odakta olan görüntünün temsili bir bölgesinde üç bitişik ommatidia seçin.
- Bir dejenerasyon indeksi oluşturmak için seçimin 18 rabdomerini eGFP yoğunluğuna, kenar keskinliğine ve çevredeki arka plan sinyaline göre kontrastına göre ayrı ayrı değerlendirin. 2 değeri ile açıkça görülebilen rabdomeleri, 1 değeri ile zayıf görünür rabdomereleri ve 0 değeri ile eksik rabdomereleri puanlayın (Şekil 10).
NOT: Bu niceleme yöntemi, tamamen bozulmamış gözler için 36 puan ve tamamen dejenere gözler için 0 puan ile sonuçlanır. Dejenerasyon indeksinde puanın% 36 ila% 100 olarak ayarlanması önerilir.
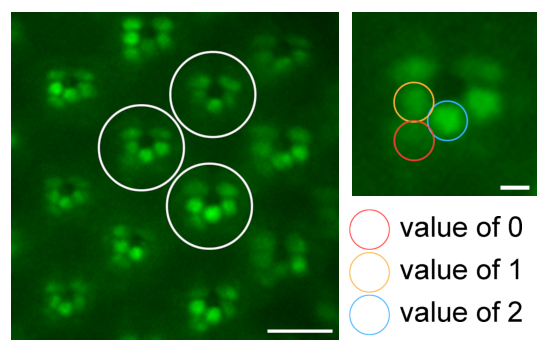
Şekil 10: Dejenerasyon çalışmaları için rabdomere değerlendirmesi yoluyla niceleme. Bir suya daldırma mikroskobu görüntüsünde üç farklı temsili ommatidianın (beyaz daireler) rabdomerlerinin 2 (açıkça görülebilir; mavi daire), 1 (zayıf görünür; turuncu daire) veya 0 (yok; kırmızı daire) değerleriyle puanlanarak göz morfolojisinin nicelleştirilmesi ile ilgili bir örnek. Ölçek çubuğu: 10 μm. Sağda büyütülmüş bir ommatidyum gösterilir; ölçek çubuğu: 2 μm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
- Sonraki görüntüyü açın ve adım 3.4.2 ile devam edin. Güvenilir bir ölçüm elde etmek için her deney grubunun en az sekiz bireyinden gelen görüntülerin biyolojik kopyalar olarak kullanılması önerilir.
NOT: Bu niceleme yöntemi, floresan yoğunluğu ile translokasyonu ölçme yönteminden daha az objektif olduğundan, önerilen replika sayısı daha yüksektir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Sonuçlar
Transgenik Drosophila sinekleri bir TRPL::eGFP füzyon proteinini eksprese ederek rodopsin 1 promotörünün kontrolü altında üretilmiştir. Bu sineklerde, TRPL::eGFP, bileşik gözün fotoreseptör hücreleri R1-6'da eksprese edilir ve ışığa bağımlı bir lokalizasyon gösterir. Sinekler karanlıkta tutulduğunda, TRPL::eGFP dış rabdomerlere dahil edilir. Birkaç saat aydınlatıldıktan sonra, TRPL, ER ile zenginleştirilmiş bir bölmede saklandığı hücre gövdesine taşınır. 8,10<...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Floresan proteinlerinin uygulanabilirliği, DPP görüntüleme ve retinal su daldırma mikroskobu ile taramanın basitliği birçok grup tarafından başarılı olduğu kanıtlanmıştır12. Burada sunulanlara benzer stratejiler, Rh1::eGFP 17,18,19,20,21 yardımıyla rodopsin ekspresyon seviyeleri, homeostaz, retinal organizasyon veya hücresel bütünlükteki kusurlar...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Yazarların açıklayacak hiçbir şeyleri yoktur.
Teşekkürler
Yıllar boyunca öğrenci araştırmacılarımıza teşekkür ederiz. Özellikle, verileri bu protokolde temsili sonuçlar olarak kullanılan Nina Meyer, Sibylle Mayer, Juliane Kaim ve Laura Jaggy. Burada sunulan grubumuzun araştırması, Deutsche Forschungsgemeinschaft'tan (Hu 839/2-4, Hu 839/7-1) Armin Huber'e yapılan hibelerle finanse edildi.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 15 mL santrifüj tüpü | Greiner Bio-One | 188271 | |
| CO2 anestezi sineklik | Flystuff | 59-172 | |
| Soğuk ışık lambası (KL 1500 LCD) | Zeiss | ||
| Fiji/ImageJ | NIH | ||
| UV lambalı floresan mikroskobu, kamera, filtre seti ve yazılım (AxioImager.Z1m, Axiocam 530 mono, 38 HE, ZEN2 mavisi baskı) | Zeiss Floresan | ||
| tüp (Lumilux T8, L 30W/840, 4000 K, G13) [1750 Lux, Ee470nm = 298 &mikro; W cm-2, Ee590nm = 215 &mikro; W cm-2] ve [760 Lux, Ee470nm = 173 &mikro; G cm-2, Ee590nm = 147 &mikro; W cm-2] | Osram | 4050300518039 | |
| Laboratuvar pipeti (20-200 & mikro; L) | Eppendorf | ||
| Nesne kızağı | Roth | 0656.1 | |
| Petri kabı (94 mm) | Greiner Bio-One | 633102 | |
| Pipet uçları (200 ve mikro; L)Labsolute | 7695844 | ||
| Hamuru (Blu-Tack) | Bostik | 30811745 | |
| Stereo mikroskop (SMZ445) | UV | ||
| Stereo mikroskop (MZ16F, MC170 HD, GFP3, LAS 4.12) | Leica |
Kaynaklar
- Wang, X., Huang, T., Bu, G., Xu, H. Dysregulation of protein trafficking in neurodegeneration. Molecular Neurodegeneration. 9. 9, 31(2014).
- Schopf, K., Huber, A. Membrane protein trafficking in Drosophila photoreceptor cells. European Journal of Cell Biology. 96 (5), 391-401 (2017).
- Hardie, R. C. The photoreceptor array of the dipteran retina. Trends in Neurosciences. 9, 419-423 (1986).
- Wang, T., Montell, C. Phototransduction and retinal degeneration in Drosophila. Pflügers Archiv - European Journal of Physiology. 454 (5), 821-847 (2007).
- Xiong, B., Bellen, H. J. Rhodopsin homeostasis and retinal degeneration: lessons from the fly. Trends in Neurosciences. 36 (11), 652-660 (2013).
- Bähner, M., et al. Light-regulated subcellular translocation of Drosophila TRPL channels induces long-term adaptation and modifies the light-induced current. Neuron. 34 (1), 83-93 (2002).
- Cronin, M. A., Lieu, M. -H., Tsunoda, S. Two stages of light-dependent TRPL-channel translocation in Drosophila photoreceptors. Journal of Cell Science. 119, 2935-2944 (2006).
- Meyer, N., Joel-Almagor, T., Frechter, S., Minke, B., Huber, A. Subcellular translocation of the eGFP-tagged TRPL channel in Drosophila photoreceptors requires activation of the phototransduction cascade. Journal of Cell Science. 119, Pt 12 2592-2603 (2006).
- Oberegelsbacher, C., Schneidler, C., Voolstra, O., Cerny, A., Huber, A. The Drosophila TRPL ion channel shares a Rab-dependent translocation pathway with rhodopsin. European Journal of Cell Biology. 90 (8), 620-630 (2011).
- Wagner, K., Smylla, T. K., Lampe, M., Krieg, J., Huber, A. Phospholipase D and retromer promote recycling of TRPL ion channel via the endoplasmic reticulum. Traffic. , (2021).
- Franceschini, N., Kirschfeld, K. Les phénoménes de pseudopupille dans l'oeil compose de Drosophila. Kybernetik. 9 (5), 159-182 (1971).
- Pichaud, F., Desplan, C. A new visualization approach for identifying mutations that affect differentiation and organization of the Drosophila ommatidia. Development. 128 (6), 815-826 (2001).
- Smylla, T. K., Wagner, K., Huber, A. Application of fluorescent proteins for functional dissection of the Drosophila visual system. International Journal of Molecular Sciences. 22 (16), (2021).
- Meyer, N. Mechanisms of the light-dependent translocation of the ion channel TRPL in the photoreceptors of Drosophila melanogaster: Dissertation for obtaining the academic degree Dr. rer. nat. University of Karlsruhe (TH). , Karlsruhe. (2005).
- Meyer, N., Oberegelsbacher, C., Dürr, T. D., Schäfer, A., Huber, A. An eGFP-based genetic screen for defects in light-triggered subcelluar translocation of the Drosophila photoreceptor channel TRPL. Fly. 2 (1), 36-46 (2008).
- Zheng, L., Carthew, R. W. Lola regulates cell fate by antagonizing Notch induction in the Drosophila eye. Mechanisms of Development. 125 (1-2), 18-29 (2008).
- Hibbard, K. L., O'Tousa, J. E. A role for the cytoplasmic DEAD box helicase Dbp21E2 in rhodopsin maturation and photoreceptor viability. Journal of Neurogenetics. 26 (2), 177-188 (2012).
- Huang, Y., Xie, J., Wang, T. A Fluorescence-based genetic screen to study retinal degeneration in Drosophila. PloS One. 10 (12), 0144925(2015).
- Zhao, H., Wang, J., Wang, T. The V-ATPase V1 subunit A1 is required for rhodopsin anterograde trafficking in Drosophila. Molecular Biology of the Cell. 29 (13), 1640-1651 (2018).
- Xiong, L., et al. ER complex proteins are required for rhodopsin biosynthesis and photoreceptor survival in Drosophila and mice. Cell Death and Differentiation. 27 (2), 646-661 (2020).
- Zhao, H., Wang, T. PE homeostasis rebalanced through mitochondria-ER lipid exchange prevents retinal degeneration in Drosophila. PLoS Genetics. 16 (10), 1009070(2020).
- Cerny, A. C., et al. The GTP- and phospholipid-binding protein TTD14 regulates trafficking of the TRPL ion channel in Drosophila photoreceptor cells. PLoS Genetics. 11 (10), 1005578(2015).
- Richter, D. Structural and functional analyses of TRP ion channels in the photoreceptor cells of Drosophila melanogaster: Dissertation for obtaining the academic degree Dr. rer, nat. University of Karlsruhe (TH). , Karlsruhe. (2007).
- Gambis, A., Dourlen, P., Steller, H., Mollereau, B. Two-color in vivo imaging of photoreceptor apoptosis and development in Drosophila. Developmental Biology. 351 (1), 128-134 (2011).
- Hardie, R. C., Liu, C. -H., Randall, A. S., Sengupta, S. In vivo tracking of phosphoinositides in Drosophila photoreceptors. Journal of Cell Science. 128 (23), 4328-4340 (2015).
- Chakrabarti, P., et al. A dPIP5K dependent pool of phosphatidylinositol 4,5 bisphosphate (PIP2) is required for G-protein coupled signal transduction in Drosophila photoreceptors. PLoS Genetics. 11 (1), 1004948(2015).
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Yeniden basım ve izinler
