Mevcut protokol, doğal parazit Heligmosomoides polygyrus ile enfekte olmuş eksplante edilmiş bir murin bağırsağının NAD(P)H floresan ömür boyu görüntülemesini tanımlar ve bu da hem konakçı hem de parazit dokularındaki metabolik süreçlerin mekansal olarak çözülmüş bir şekilde araştırılmasına olanak tanır.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Yöntem makalesi
Nematod Enfeksiyonu Sırasında Murin Bağırsağı ve Parazitlerin Metabolik Analizi için NAD(P)H Floresan Ömür Boyu Görüntüleme
Bu makalede
Özet
Özet
Parazitler genellikle konakçılarının sağlığı üzerinde olumsuz bir etkiye sahiptir. İstila edilmiş insan veya hayvanın sağlığını uzun vadede küresel olarak etkiledikleri ve dolayısıyla tarımsal ve sosyo-ekonomik sonuçları etkiledikleri için büyük bir sağlık yükünü temsil ederler. Bununla birlikte, otoimmün hastalıklar için potansiyel terapötik önemi olan parazit kaynaklı bağışıklık düzenleyici etkiler tanımlanmıştır. Hem konakçı hem de parazitlerdeki metabolizma, savunmalarına katkıda bulunur ve bağırsakta nematod sağkalımının temeli olsa da, yeterli teknolojilerin eksikliği nedeniyle büyük ölçüde az çalışılmıştır. Hem konakçı hem de parazitlerdeki metabolik süreçleri mekansal olarak çözülmüş bir şekilde incelemek için doğal nematod Heligmosomoides polygyrus ile enfeksiyon sırasında ekilen murin bağırsak dokusuna NAD (P) H floresan ömür boyu görüntüleme geliştirdik ve uyguladık. Nikotinamid adenin dinükleotid (NADH) ve nikotinamid adenin dinükleotid fosfat (NADPH) koenzimlerinin floresan ömrünün sömürülmesi, bundan sonra türler arasında korunan NAD(P)H olarak anılacaktır, bağlanma durumlarına ve metabolik süreçleri katalize eden enzimler üzerindeki bağlanma bölgesine bağlıdır. En bol eksprese edilen NAD (P) H'ye bağımlı enzimlere odaklanarak, ana savunma mekanizması olarak anaerobik glikoliz, oksidatif fosforilasyon / aerobik glikoliz ve NOX bazlı oksidatif patlama ile ilişkili metabolik yollar ayırt edildi ve enfeksiyon sırasında konakçı ve parazit arasındaki metabolik karışma karakterize edildi.
Giriş
Paraziter enfeksiyonlar insan sağlığı üzerinde büyük bir yük oluşturmaktadır 1,2. Sanayi ülkelerinde otoimmün hastalıklardaki artış ile paraziter enfeksiyonlardaki azalma arasında bir korelasyon gözlenmiştir. Parazitlerin aşırı konak bağışıklık tepkilerini azaltarak faydalı etkileri olabileceği bilinmektedir. H. polygyrus, kemirgenlerde bağırsakta bulunan doğal bir parazittir ve bu parazitin, diğer mekanizmaların yanı sıra, enfekte konakçıda düzenleyici T hücrelerinin (Treg) indüksiyonu yoluyla konakçının anti-parazitik bağışıklık tepkisini azaltan immün düzenleyici mekanizmaları indüklediği bilinmektedir 3,4,5,6,7,8,9,10,11 . Bu düzenleyici mekanizmalar özellikle dejeneratif otoimmün hastalıklarda ilgi çekicidir.
Konakçı ve bağırsak nematodları arasındaki metabolik karışmanın analizi yaygın olarak ihmal edilmektedir, ancak metabolizma hem konakçıda hem de parazitlerde savunma, hayatta kalma ve işlev için önemli bir rol oynar. Canlı dokularda konak ve nematod metabolizmasını korelasyonlu olarak araştırmak için memeli hücreleri ve dokularında farklı fizyolojik ve patofizyolojik durumlarda halihazırda yaygın olarak kullanılan bir teknoloji olan iki foton uyarımı üzerine NADH ve NADPH floresan ömür boyu görüntülemeyi uyarlamayı ve uygulamayı öneriyoruz12.
NADH (P) h olarak adlandırılan NADH ve NADPH, tüm hücre bazlı yaşam formlarında korunan ve çeşitli metabolik yollarda koenzimlerin rolünü oynayan her yerde bulunan moleküllerdir. Örneğin, esas olarak hücre savunması ve hücre iletişimi ile bağlantılı olan enerji üretimi, indirgeyici biyosentez ve NADPH oksidaz aracılı reaktif oksijen türleri (ROS) üretiminde yer alırlar 13,14,15,16,17,20. Her iki koenzim de 750 nm'de iki foton uyarımı üzerine ~ 450 nm'de floresan yayar, böylece hücrelerde ve dokularda belirteçsiz metabolik görüntülemeye izin verir19,21. Hem NADH hem de NADPH'yi sadece bir dalga boyu ile heyecanlandırmak, benzer ve oldukça geniş iki foton uyarma spektrumları21 nedeniyle mümkündür.
NAD(P)H koenziminin floresan ömrü doğrudan bağlandığı enzime bağlıdır 18,21,22,23. Molekül içi enerji transferine izin veren kimyasal yapısı nedeniyle, uyarılmış NADH veya NADPH molekülü, gevşemeden ve bir floresan fotonu yaymadan önce, bağlanma özelliklerine bağlı olarak bir oranda enzimlere (katalizör) iç dönüşüm süreçleri yoluyla enerji kaybeder. Bu ömür, enzim üzerindeki NAD(P)H bağlanma bölgesi ve dolayısıyla 19,21,22,23,24,25 gerçekleşen tercihli biyokimyasal reaksiyon hakkında fikir verir. Serbest NADH ve NADPH moleküllerinin floresan ömrü ~ 450 ps'dir, oysa bir enzime bağlandığında floresan ömürleri çok daha uzundur (~ 2.000 ps) ve ilgili enzim21 üzerindeki bağlanma yerlerine bağlıdır.
NAD (P) H ile bağlantılı süreçlerde yer alan 370'den fazla enzim vardır; bununla birlikte, yalnızca en bol olanı, mikroskobun uyarma aralığı içinde ortaya çıkan NAD (P) H floresan ömrüne katkıda bulunabilecektir. Memeli hücrelerinden elde edilen RNASeq verilerini kullanarak, en bol bulunan NAD (P) H'ye bağımlı enzimleri belirledik ve doku ve hücre örneklerinde üretilen verileri yorumlamak için bir floresan ömrü referansı oluşturduk18. Bu nedenle, bu çalışma, örneğin, anaerobik glikolitik metabolik yollarla ilişkili laktat dehidrojenazın (LDH) tercihli aktivitesi ile esas olarak aerobik glikoliz/oksidatif fosforilasyon metabolik yollarında yer alan izositrat dehidrojenaz (IDH) ve piruvat dehidrojenaz (PDH) aktivitesi arasında ayrım yapmıştır16,20. Ek olarak, oksidatif patlamadan esas olarak sorumlu olan enzimler olan NADPH oksidazlara NADPH bağlanması, bu enzimlerin hücre içindeki karakteristik konumu (zara bağlı) ve özellikle uzun NADPH floresan ömrü (3,650 ps) nedeniyle kolayca çözülebilir18,24,29,30,32. H. polygyrus'tan elde edilen RNASeq verileri, memeli hücreleri için üretilen referansın bu nematod27'ye uyarlanmış formda da geçerli olduğunu göstermektedir.
Bu nedenle, bu çalışmada, H. polygyrus ile enfekte olmuş farelerin taze ekilmiş duodenum örneklerinde NAD (P) H floresan ömür boyu görüntüleme (FLIM) gerçekleştirilerek, tüm dokulardaki genel metabolik aktiviteyi ve görüntünün her pikselindeki baskın olarak aktif enzimi gösteren serbest ve enzime bağlı NAD (P) H arasındaki oran hakkında bilgi elde edildi (örn. NAD(P)H'nin tercihen o spesifik konumda bağlandığı enzim). Bu deneylerin başarısı, ekilen bağırsağın doğru numune hazırlanmasına, hücre altı çözünürlükte NAD(P)H floresan ömrünün güvenilir canlı görüntülenmesine ve bu protokolde tartışıldığı gibi standartlaştırılmış veri değerlendirmesine dayanır.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Protokol
Tüm deneyler Ulusal Hayvan Koruma Yönergelerine uygun olarak gerçekleştirilmiş ve hayvanların korunması için Alman Hayvan Etik Komitesi tarafından onaylanmıştır (G0176/16 ve G0207/19). Protokol, doğal murin bağırsak nematodu H . polygyrus ile enfeksiyon üzerine hem konakçı bağırsağında hem de parazitlerde genel metabolik aktiviteyi ve spesifik metabolik yolları değerlendirmeye izin veren NAD (P) H floresan ömür boyu görüntüleme veri toplama ve veri değerlendirmesini tanımlar. Bu amaçla, 10-12 haftalık dişi C57BL/6 farelere 200 evre 3 larva (L3) uygulandı. Enfeksiyonun farklı zaman noktalarında, enfekte fareler sakfiye edildi ve duodenumlar eksize edildi ve daha önce tarif edildiği gibi görüntüleme için hazırlandı33. Enfekte olmamış, yaş ve cinsiyet uyumlu farelerin duodenumları benzer şekilde hazırlandı ve kontrol amacıyla görüntülendi. Daha fazla görüntüleme ve analiz için gerekli doku özelliklerini korumak için, numuneler ekstraplantasyondan hemen sonra işlenmeli ve sonraki adımlar (adım 1.1-1.7) hızlı bir şekilde gerçekleştirilmelidir (Şekil 1B).
1. Numune hazırlama
- Başlangıçta eksize edilen duodenumdan ~ 1 cm uzunluğunda parçalar kesin.
- Düzleştirilmiş doku tüpünü küçük bir Petri kabının ortasına hızlı kürlenen doku yapıştırıcısı ile yapıştırın (47 mm çap, 10 mm kenar yüksekliği, bkz . Malzeme Tablosu) (Şekil 1A2).
- Petri kabının dibine mikro bir fırça ile doku etrafındaki geniş bir alana ince bir tabaka halinde ek yapıştırıcı uygulayın (Şekil 1A2).
- Petri kabının tabanının yakınında fiziksel olarak sabitlenmiş bağırsağın tüm uzunluğu boyunca bir kesi yapmak için künt makas kullanın (Şekil 1A3).
- Bağırsağı künt cımbızla açın, böylece abluminal taraf yapıştırıcı ile tam olarak temas eder. Böylece bağırsak, lümen tarafı yukarı bakacak şekilde yapıştırıcı ile sabitlenir (Şekil 1A4).
- Enfekte bir fare durumunda, enfeksiyonun başarılı olduğundan emin olmak için solucanları stereomikroskop altında (büyütme 10x) sayın (Şekil 1A5).
- Kurumasını önlemek için bağırsağı agarozla kapatın. Burada, yaklaşık 38 °C'lik düşük sıcaklıkta erime noktası nedeniyle hassas bağırsak dokusunu yanmadan korumak için% 0.5 -% 0.9 agaroz kullanıldı. Bir pipete 1 mL agaroz çekin ve pipet ucu ile doku arasında hassas temas ile bağırsağın üzerine dikkatlice gezdirin, böylece yaklaşık 0,5 mm kalınlığında ince bir tabaka dokuyu tamamen kaplar (Şekil 1A6).
- Petri kaplarını, oda sıcaklığında PBS (% 10) ile agaroz içinde kapatılmış örneklerle doldurun ve ardından kapakla kapatın. Numuneleri doğrudan görüntüleyin veya ölçüm için sıraya almak üzere ısı yalıtımlı bir kutuda buzun üzerine yerleştirin. Hazırlanan ilk numuneyi mikroskop objektifi altında 37 °C'ye ayarlanmış bir ısıtma plakasına yerleştirin (Şekil 1A8).
2. Görüntüleme
NOT: Enfekte ve sağlıklı duodenum doku örneklerinde NAD(P)H-FLIM yapmak için kullanılan mikroskop sistemi, Şekil 2'de listelenen ve açıklanan cihazlardan ve Malzeme Tablosundan oluşur. Kullanılan tüm modüller için kontrol yazılımı olarak ImSpector 208'i kullanın.
- Başlangıçta ilgilenilen bölgeyi (ROI) bulmak için, numuneyi objektifin altındaki Petri kabına yerleştirin ve geniş alan floresan mikroskobu modunu kullanarak görsel inceleme ile uygun bir ROI bulmak için x ve y düzlemi boyunca elle hareket edin.
- Yazılımdaki modları değiştirerek PMT algılamayı veya zamanla ilişkili tek foton sayma (TCSPC) algılamasını kullanarak görüntüleme sistemini iki foton uyarımına geçirin. Ortamın karanlık ve titreşimsiz olduğundan emin olmak, mikroskobu ışık geçirmez perdelerle kapatmak ve mümkünse pnömatik askıya alınmış bir optik masa kullanmak için özel dikkat gösterin.
- Objektif lensi, lens sistemi simgesine tıklayarak ve z konumunu değiştirmek için fare tekerleğini çevirerek kontrol yazılımı ile s'yi içeren Petri kabına daldırın.
- Lazeri 765 nm'ye ayarlayın ve yazılımın dalga boyu paneline istenen dalga boyunu yazarak maksimum lazer gücünü, objektif altında 10 mW'a karşılık gelen 0'a ayarlayın. Gerekirse lazer gücünü ayarlayın. Doku fotohasarını ve istenmeyen metabolik değişimleri önlemek için @'lık bir kazancın (~ 30 mW ila 100 mW) altında ölçün.
- Yazılımda, z aşamasının adım boyutunu 2 μm'ye ayarlayın, bu da dokuda 765 nm'de mikroskobun eksenel çözünürlüğüne karşılık gelir.
- Galvo ayna panelinde çizgi tarama frekansını 400 Hz'e ayarlayarak 4,95 μs'lik bir piksel bekleme süresi elde edin.
- Yazılımdaki açılır menüden ortalama sayıyı seçerek görüntü ortalamasını iki ila dört görüntü üzerinden ayarlayın (yani, daha pürüzsüz görüntüler elde etmek için yatırım getirisini iki ila dört kez tarayın). Bu şekilde, analiz sürecinde daha yüksek bir sinyal-gürültü oranı (SNR) avantajı için toplam piksel bekleme süresi 9,9-19,8 μs'ye çıkarılır.
- Yazılımdaki FOV panelindeki parametreleri seçerek görüntü görüş alanını (FOV) 505 piksel x 505 piksel (500 x 500 μm²) olarak ayarlayın.
- Her ölçüm için, TCSPC elektroniğinin optimum çalışmasını sağlamak için TCSPC donanım menüsündeki kalibrasyon penceresinde başlat düğmesine tıklayarak modül süresini önceden kalibre edin.
- Hızlı bir osiloskop kullanarak Ti: Sa lazer darbe trenini algılamak için hızlı fotodiyotu harici olarak ayarlayın.
NOT: Fotodiyotun sinyali, uyarma darbesine göre TCSPC tarafından hPMT algılamasını ve foton sayımını tetiklemek için kullanılır. Algılama, Ti:Sa lazerin tekrarlama oranına (80 MHz) karşılık gelen her 12,5 ns'de bir (yani iki ardışık lazer darbesi arasındaki süre) tekrarlanır. - Önce ortalamayı 1'e ve lazer gücünün kazancını ~'a ayarlayarak, ardından video modunu başlatarak ( video düğmesine tıklayın), lens sistemi simgesine tekrar tıklayarak sinyalin hala alınabileceği derinliği arayarak ve kazancı kademeli olarak artırırken numuneye ilerlemek için fare tekerleğini kullanarak ölçüm derinliği aralığını tanımlayın.
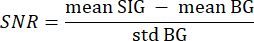
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Sonuçlar
Tarif edilen fazör analiz yöntemi ile birlikte mevcut NAD (P) H-FLIM prosedürü 28,29,33 kullanılarak, sağlıklı ve enfekte duodenumlardaki metabolik aktivite ve metabolik yollar, murin bağırsak nematodu H. polygyrus ile enfeksiyondan sonraki 6. gün, 10. gün, 12. gün ve 14. günde ölçüldü.
NAD (P) H-FLIM ile ortaya çıkan eksize edilen duodenumda korunmuş bağırsak dokusu canlılığı
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Protokol içindeki kritik adımlar, hazırlık sırasında ve yatırım getirisini bulurken gerçekleşir. Kısmen sindirilmiş gıdaların lifleri, esas olarak NAD (P) H floresansı ile örtüşen liflerin endojen lüminesansı nedeniyle ve aynı zamanda harmonik üretim sinyalleri nedeniyle görüntüleme için bir zorluk teşkil eder. Dışkı içermeyen yatırım getirilerini bulmak büyük önem taşır. Dışkı içeren alanları ölçmekten kaçınmayı amaçladık. Yıkamadan kaçınılmıştır çünkü bu, kırılgan villusun bütünlüğünü ...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Yazarlar rekabet eden hiçbir mali çıkar beyan etmemektedir.
Teşekkürler
Robert Günther'e mükemmel teknik desteği için teşekkür ederiz. HA2542/12-1 (S.H.), NI1167/7-1 (R.A.N.), HA5354/11-1 (A.E.H.) ve RA2544/1-1 (S.R.) Hibe SPP2332 kapsamında Alman Araştırma Konseyi'nden (DFG), Grant SFB1444, P14 (R.A.N., A.E.H.), Hibe HA5354/8-2 (A.E.H.) kapsamında ve Hibe GRK2046 B4 ve B5 (S.H., S.R.) ve HA2542 / 8-1 (SH) büyük ölçüde kabul görmektedir. W.L., Berliner Hochschule für Technik, Berlin Uygulamalı Bilimler Okulu'ndan Medikal Fizik/Fizik Mühendisliği alanında doktora bursu aldı.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Agarose | Thermo fisher | J32802.22 | ultra saf |
| Kör makas | FST ince bilim araçları | 14108-09 | küt blund 14 cm |
| Bodipy c12 | thermo fisher | D3822 | 1 mg katı |
| Kontrol üniteleri, diyot, TCSPC | LaVision Biontech | özel | TrimScope II |
| DMSO | Thermo fisher | D12345 | 3 mL |
| Filtreler | Chroma | 755 | 466 ± 20, 525 ± 25, 593 ± 20, 655 ± 20 nm |
| Foliodrape levha | Hartmann | 277500 | |
| Eldiven | Sigma-Aldrich | Z423262 | nitril |
| Halojen meşale | Leica | Bu öğe aşamalı olarak kullanımdan kaldırıldı ve artık kullanılamıyor | KL 1500 LCD |
| hPMT | Hamamatsu, Almanya | H7422 | GaAsP |
| Ilastik | Netlify | özgür Yazılım | Java Arka Uç |
| ImageJ | Ulusal Sağlık Enstitüleri | özgür Yazılım | FIJI - standart eklentiler |
| Imspector | LaVision Biontech-Vers | . 208 | |
| İntravital aşama | LaVision Biontech | özel | TrimScope II |
| Lens sistemi 20x | Zeiss | özel | W-plan-apochom 20x Suya daldırma NA 1.05 |
| Cıva buharlı meşale | LaVision Biontech | özel | |
| mikro fırça | Fisher scientific | 22-020-002 | 85 mm |
| Mikroskop | LaVision Biontech | özel | TrimScope II |
| Osiloskop | Rhode & Schwarz | 1326.2000.22 | |
| PBS | Sigma-Aldrich | AM9624 | 0.5 L |
| Petri kabı | Sigma aldrich | P5606 | 40 x 15 mm |
| Pipet | termo fisher | 4651280N | Einkanalpipette |
| Pipet uçları | termo fisher | 94056980 | Spitzen mit Filtre |
| PMT | Hamamatsu, Japonya | H7422 | GaAsP |
| Python | Python Yazılım temeli | ücretsiz Yazılım | Anaconda 3.7 Spyder IDE, KYTE |
| Sterio mikroskobu ile standart kütüphaneler | Leica | Bu öğe aşamalı olarak kaldırıldı ve artık kullanılamıyor | M26, 6.3x zoom |
| Ti:Sa LASER CHAMELION ULTRA II | Uyumlu, APE-690-1080 | nm ayarlanabilir, 80MHz | |
| Tissueglue | 3M | 51115053603 | 3 mL |
| Cımbız | FST güzel bilim araçları | 11049-10 | küt, graefe, melek |
| Cımbız | FST güzel bilim araçları | 91197-00 | Dumont, kıvrımlı |
Kaynaklar
- Hotez, P. J., Fenwick, A., Savioli, L., Molyneux, D. H. Rescuing the bottom billion through control of neglected tropical diseases. Lancet. 373 (9674), 1570-1575 (2009).
- Sartorius, B., et al. Prevalence and intensity of soil-transmitted helminth infections of children in sub-Saharan Africa, 2000-18: A geospatial analysis. The Lancet Global Health. 9 (1), e52-e60 (2021).
- Affinass, N., et al. Manipulation of the balance between Th2 and Th2/1 hybrid cells affects parasite nematode fitness in mice. European Journal of Immunology. 48 (12), 1958-1964 (2018).
- Hartmann, S., et al. Gastrointestinal nematode infection interferes with experimental allergic airway inflammation but not atopic dermatitis. Clinical & Experimental Allergy. 39 (10), 1585-1596 (2009).
- Hepworth, M. R., et al. Mast cells orchestrate type 2 immunity to helminths through regulation of tissue-derived cytokines. Proceedings of the National Academy of Sciences of the United States of America. 109 (17), 6644-6649 (2012).
- Rausch, S., et al. Establishment of nematode infection despite increased Th2 responses and immunopathology after selective depletion of Foxp3+ cells. European Journal of Immunology. 39 (11), 3066-3077 (2009).
- Rausch, S., et al. Parasitic nematodes exert antimicrobial activity and benefit from microbiota-driven support for host immune regulation. Frontiers in Immunology. 9, 2282(2018).
- Steinfelder, S., Rausch, S., Michael, D., Kuhl, A. A., Hartmann, S. Intestinal helminth infection induces highly functional resident memory CD4(+) T cells in mice. European Journal of Immunology. 47 (2), 353-363 (2017).
- Whelan, R. A., et al. A transgenic probiotic secreting a parasite immunomodulator for site-directed treatment of gut inflammation. Molecular Therapy. 22 (10), 1730-1740 (2014).
- Ziegler, T., et al. A novel regulatory macrophage induced by a helminth molecule instructs IL-10 in CD4+ T cells and protects against mucosal inflammation. The Journal of Immunology. 194 (4), 1555-1564 (2015).
- Grantham, B. D., Barrett, J. Amino acid catabolism in the nematodes Heligmosomoides polygyrus and Panagrellus redivivus. 2. Metabolism of the carbon skeleton. Parasitology. 93 (Pt 3), 495-504 (1986).
- Dmitriev, R. I., Intes, X., Barroso, M. M. Luminescence lifetime imaging of three-dimensional biological objects. Journal of Cell Science. 134 (9), 1-17 (2021).
- Mossakowski, A., et al. Tracking CNS and systemic sources of oxidative stress during the course of chronic neuroinflammation. Acta Neuropathologica. 130 (6), 799-814 (2015).
- Qian, T., et al. Label-free imaging for quality control of cardiomyocyte differentiation. Nature Communications. 12, 4580(2021).
- Bayerl, S., et al. Time lapse in vivo microscopy reveals distinct dynamics of microglia-tumor environment interactions-a new role for the tumor perivascular space as highway for trafficking microglia. Glia. 64 (7), 1210-1226 (2016).
- Skala, M. C., et al. In vivo multiphoton microscopy of NADH and FAD redox states, fluorescence lifetimes, and cellular morphology in precancerous epithelia. Proceedings of the National Academy of Sciences of the United States of America. 104 (49), 19494-19499 (2007).
- Skala, M. C., et al. Multiphoton microscopy of endogenous fluorescence differentiates normal, precancerous, and cancerous squamous epithelial tissues. Cancer Research. 65 (4), 1180-1186 (2005).
- Leben, R., Kohler, M., Radbruch, H., Hauser, A. E., Niesner, R. A. Systematic enzyme mapping of cellular metabolism by phasor-analyzed label-free NAD(P)H fluorescence lifetime imaging. International Journal of Molecular Sciences. 20 (22), 5565(2019).
- Chacko, J. V., Eliceiri, K. W. Autofluorescence lifetime imaging of cellular metabolism: Sensitivity toward cell density, pH, intracellular, and intercellular heterogeneity. Cytometry. 95 (1), 56-69 (2019).
- Stringari, C., et al. Phasor approach to fluorescence lifetime microscopy distinguishes different metabolic states of germ cells in a live tissue. Proceedings of the National Academy of Sciences of the United States of America. 108 (33), 13582-13587 (2011).
- Lakowicz, J. R., Szmacinski, H., Nowaczyk, K., Johnson, M. L. Fluorescence lifetime imaging of free and protein-bound NADH. Proceedings of the National Academy of Sciences of the United States of America. 89 (4), 1271-1275 (1992).
- Blacker, T. S., et al. Separating NADH and NADPH fluorescence in live cells and tissues using FLIM. Nature Communications. 5 (1), 3936(2014).
- Blacker, T. S., Duchen, M. R. NAD(P)H binding configurations revealed by time-resolved fluorescence and two-photon absorption. Biophys. J. 122 (7), 1240-1253 (2023).
- Niesner, R., et al. Selective detection of NADPH oxidase in polymorphonuclear cells by means of NAD(P)H-based fluorescence lifetime imaging. Journal of Biophysics. 2008, 602639(2008).
- Vishwasrao, H. D., Heikal, A. A., Kasischke, K. A., Webb, W. W. Conformational dependence of intracellular NADH on metabolic state revealed by associated fluorescence anisotropy. Journal of Biology and Chemistry. 280 (26), 25119-25126 (2005).
- Babior, B. M. NADPH oxidase: An update. Blood. 93 (5), 1464-1476 (1999).
- Hewitson, J. P., et al. Proteomic analysis of secretory products from the model gastrointestinal nematode Heligmosomoides polygyrus reveals dominance of venom allergen-like (VAL) proteins. Journal of Proteomics. 74 (9), 1573-1594 (2011).
- Rakhymzhan, A., et al. Synergistic strategy for multicolor two-photon microscopy: Application to the analysis of germinal center reactions in vivo. Scientific Reports. 7, 7101(2017).
- Bremer, D., et al. Method to detect the cellular source of over-activated NADPH oxidases using NAD(P)H fluorescence lifetime imaging. Current Protocols in Cytometry. 80, 9.52.1-9.52.14 (2017).
- Leben, R., et al. Phasor-based endogenous NAD(P)H fluorescence lifetime imaging unravels specific enzymatic activity of neutrophil granulocytes preceding NETosis. International Journal of Molecular Sciences. 19 (4), 1018(2018).
- Digman, M. A., Caiolfa, V. R., Zamai, M., Gratton, E. The phasor approach to fluorescence lifetime imaging analysis. Biophysics Journal. 94 (2), L14-L16 (2008).
- Lindquist, R. L., Bayat-Sarmadi, J., Leben, R., Niesner, R., Hauser, A. E. NAD(P)H oxidase activity in the small intestine is predominantly found in enterocytes, not professional phagocytes. International Journal of Molecular Sciences. 19 (5), 1365(2018).
- Liublin, W., et al. NAD(P)H fluorescence lifetime imaging of live intestinal nematodes reveals metabolic crosstalk between parasite and host. Scientific Reports. 12, 7264(2022).
- Nhu, N. T. Q., et al. Alkaline pH increases swimming speed and facilitates mucus penetration for Vibrio cholerae. Journal of Bacteriology. 203 (7), e00607(2021).
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında