Termoplazmonik delme yöntemi, hücrelerde ve dev unilameller veziküllerde plazma membran onarımı sırasında protein tepkilerini incelemek için konfokal mikroskopi, optik cımbız ve altın nanopartikülleri entegre eder. Teknik, hızlı ve lokalize membran delinmesini mümkün kılarak, anahtar proteinlerin ve bunların karmaşık plazma membran onarım mekanizmasındaki fonksiyonel rollerinin tanımlanmasına izin verir.
Yöntem makalesi
Canlı Hücrelerde ve Model Membranlarda Plazma Membran Onarımını Araştırmak İçin Termoplazmonik Bir Yaklaşım
Bu makalede
Özet
Özet
Hücre zarı, hücrenin hayatta kalması için çok önemlidir ve hücre tüm yaşam döngüsü boyunca yaralanmalar yaşadığından bütünlüğünün sağlanması çok önemlidir. Zarın zarar görmesini önlemek için, hücreler verimli plazma zarı onarım mekanizmaları geliştirmiştir. Bu onarım mekanizmaları, canlı hücrelerde ve membran model sistemlerinde yüzey onarımında yer alan annexinler gibi anahtar proteinlerin rolünü belirlemek ve araştırmak için konfokal mikroskopi ve nano ölçekli termoplazmoniklerin birleştirilmesiyle incelenebilir.
Delme yöntemi, nanopartikül ışınlaması üzerine yüksek oranda lokalize ısıtmayı indüklemek için bir lazer kullanır. Yakın kızılötesi ışığın kullanılması, biyolojik numunedeki fototoksisiteyi en aza indirirken, absorpsiyonun çoğunluğu yakın kızılötesi rezonans plazmonik nanopartikülde gerçekleşir. Bu termoplazmonik yöntem, vezikül ve hücre füzyon çalışmaları yoluyla hücre içi mekanizmaların ve hücresel yanıtların anlaşılmasını geliştirmek için potansiyel fototermal ve biyofiziksel araştırmalar için kullanılmıştır. Yaklaşımın, mekanik, kimyasal veya optik olarak indüklenen yaralanmalar gibi membran bozulması için mevcut yöntemlerin tamamlayıcısı olduğu ve son derece lokalize yaralanmalara neden olarak yüksek düzeyde kontrol sağladığı gösterilmiştir. Yaralanmanın kapsamı, küresel nanopartikülün çevresi ile sınırlıdır ve farklı dalga boyları kullanan darbeli lazerlerin aksine, ışın yolu boyunca zararlı bir hasar meydana gelmez. Nanokabarcıkların oluşumu gibi belirli sınırlamalara rağmen, termoplazmonik yöntem, hücre canlılığından ödün vermeden neredeyse doğal bir ortamda plazma membran onarımındaki hücresel yanıtları araştırmak için benzersiz bir araç sunar.
Konfokal mikroskopi ile entegre edildiğinde, delme yöntemi, model membran sistemlerindeki membran dinamiğinin mekanik bir anlayışının yanı sıra, protein alımı ve biyofiziksel işlevleri de dahil olmak üzere membran hasarına protein tepkileri hakkında nicel bilgiler sağlayabilir. Genel olarak, bu yöntemin indirgenmiş model sistemlere uygulanması, canlı hücrelerdeki karmaşık plazma zarı onarım mekanizmaları hakkındaki anlayışımızı geliştirebilir.
Giriş
Hem fiziksel bir bariyer hem de bir sinyal platformu görevi gören hücre zarı, hücrenin hayatta kalması için hayati önem taşır1. Tüm hücre döngüsü boyunca, plazma zarı (PM) mekanik 2,3,4,5 ve kimyasal6 stres kaynaklı yaralanmalar gibi hasara maruz kalır. Membran bütünlüğünü korumak ve hücrenin hayatta kalmasını sağlamak için hücre, sağlam plazma membran onarımı (PMR) mekanizmaları geliştirmiştir. Bu mekanizmalar, hücre iskeletinin yeniden düzenlenmesi, membran füzyonu ve membran değiştirme stratejileri7,8,9,10,11 gibi çeşitli stratejilere bağlıdır ve bunların tümü spesifik proteinlerin işe alınmasına dayanır. Özellikle, annexin protein ailesinin üyeleri, PMR 1,9,12,13,14,15,16 süreçleriyle ilişkili anahtar proteinler olarak tanımlanmıştır. PM hasarını takiben, hücre, hücrenin hayatta kalması için acil bir tehdit oluşturan bir kalsiyum iyonu akışı (Ca2 +) yaşar17. Ca2+ akışına yanıt olarak, ağırlıklı olarak sitozolde bulunan annexin proteinleri, PMR stratejilerinin bir parçası olarak hasarlı plazma zarının iç broşürünebağlanır 18. Annexin A2 (ANXA2), disferlin eksikliği olan kas distrofisinde PMR ile ilişkilendirilen annexin ailesinin ilk üyelerinden biriydi ve hücre içi vezikülleri yaralanma bölgesi 5,19,20,21 yakınındaki PM'ye kaynaştırarak onarıma aracılık etmesi önerildi. Daha sonra, ek22'ye çeşitli işlevler atfedildi ve PMR'deki rolleri son 20 yılda artan bir ilgi gördü. Bununla birlikte, PMR'deki eklerin kesin rolü tam olarak anlaşılmamıştır 15,18,21,22.
Bu makale, konfokal mikroskopi, optik cımbız ve altın nanopartiküllerin (AuNP'ler) bir kombinasyonunu kullanarak protein-membran etkileşimini ve membran dinamiklerini kontrollü ve oldukça lokalize bir şekilde araştırmak için bir yöntem önermektedir. Bu yöntem, membran hasarına veCa2+ akışına yanıt olarak protein, lipid ve küçük molekül etkileşimlerinin kantitatif çalışmasını sağlar. Membran onarımı sürecinde yer alan bileşenlerin karmaşıklığına ve çokluğuna rağmen, membran dinamiği ve annexin proteinlerinin membran bozulmasına tepkisi hakkında daha derin bir mekanik anlayış kazanmak için plazma membranını taklit eden basitleştirilmiş membran sistemleri kullanılmıştır16. Dev unilamellar lipid vezikülleri (GUV'ler), belirli bir lipid bileşimine sahip model membran sistemi olarak seçildi. GUV'ler, Weinberger ve ark.23 tarafından tarif edildiği gibi, jel destekli hidrasyon yöntemi, özellikle polivinil alkol jel hidrasyonu kullanılarak üretildi ve bu, annexinlerin GUV'lere verimli bir şekilde kapsüllenmesine izin verdi.
Metalik nanopartiküller (NP'ler) üzerinde yakın kızılötesi (NIR) lazer ışınlamasının kullanılması, NP'nin önemli ölçüde ısınmasına neden olur ve bu da onu biyomedikal uygulamalarda kullanılan yerel bir ısı kaynağı oluşturmak için etkili bir yöntem haline getirir24. Yöntem başlangıçta hem 2D hem de 3D biyomimetik tahlillerde tek bir AuNP'yi çevreleyen sıcaklığı doğrudan ölçmek için kullanıldı. Bu tahlillerde25,26, plazmonik nanopartiküller, desteklenen bir lipid çift tabakası üzerinde ışınlandı veya yerel ısıtma üzerine yerel bir termal faz geçişine uğrayan GUV'lerin yakınında optik olarak hapsedildi, bu da partikül etrafındaki tam sıcaklık profilinin ölçülmesini ve kontrolünü sağladı. Bu referans sıcaklık profili, biyolojik numuneler araştırılırken veya manipüle edilirken kullanılmıştır. Yöntemdeki daha ileri ilerlemeler, membranlarda(27) nanoskopik gözeneklerin indüksiyonunu kolaylaştırarak vezikül ve hücre füzyonunaizin vermiştir 28,29. Diğer çalışmalar, yeni hibrit veziküller oluşturarak GUV'lerde29 ve transmembran proteinlerde30 periferik membran proteinlerinin davranışını araştırırken, hücresel yanıtları veya gen ekspresyonunu kontrol etmek ve incelemek için hücreye özgü ilaç dağıtımı da araştırılmıştır 28,29,31,32,33. Son zamanlarda, yöntem membran hasarına protein yanıtlarını araştırmak için kullanılmıştır 32,34,35.
Hücresel yanıtları ve membran onarımını araştırmak için plazma membranını bozmak için çeşitli yöntemler mevcuttur. Bunlar, tümü hücre zarını mekanik olarak bozabilen mikroiğne deliklerini, mikroboncuk sallamayı ve hücre kazımayı içerir 14,36,37. Kimyasal olarak indüklenen hasar, lipid çift tabakasını kararsızlaştıran ve plazma zarı boyunca membran gözenekleri oluşturan deterjanlar5,38 veya bakteriyel toksinler39,40 eklenerek elde edilebilir. Ayrıca, plazmonik nanopartiküller 42,43,44,45 ile kombinasyon halinde annexin proteinleri 5,14,21,41 gibi PMR bileşenlerini incelemek için sürekli dalga ve darbeli lazerler tarafından optik olarak indüklenen yaralanmalar kullanılmıştır.. Yüksek güçlü darbeli lazerlerin verimliliğine rağmen, ışın yolu boyunca hücrenin iç kısmında önemli yaralanmalara ve hasara neden olabilirler. Ayrıca, darbeli lazer ışınlaması üzerine biyolojik maddede meydana gelen ayrıntılı değişiklikler ve iyi tanımlanmış bir gözenek oluşturup oluşturmadığı daha fazla araştırılmayı beklemektedir. Bu makalede, iç yapılara önemli bir zarar vermeden PM'de nanoskopik delikleri kontrollü bir şekilde34,35 indüklemek için termoplazmonik kullanan alternatif bir yöntem sunulmaktadır. Bu, plazmonik NP'lerin yüksek oranda odaklanmış bir NIR lazere maruz bırakılmasıyla gerçekleştirilir, bu da 200 °C'yi aşan sıcaklıklara kolayca ulaşabilen ve küçük nanoskopik patlamalara yol açabilen son derece lokalize bir sıcaklık artışına neden olur 25,46,47. Bu işlem, lazer yoğunluğunun yanı sıra NPs48'in boyutu, şekli ve bileşimi ayarlanarak kontrol edilebilir. Araştırmacılar, bu tekniği kullanarak, proteinlerin canlı hücrelerde PM onarımındaki rolünü keşfedebilirler, bu da hücre canlılığından ödün vermeden ektrin proteinlerinin membran onarımına katılımı ile ilgili cevaplanmamış bazı soruların ele alınmasına yardımcı olabilir.
Plazmonik nanopartiküllerin optik tuzağı, önceki çalışmalarla iyi bir şekilde belirlenmiştir 25,49,50,51,52; bununla birlikte, nanopartiküllerin 53,54,55 termoplazmonik özelliklerine ilişkin ek bilgiler ek materyallerde elde edilebilir (Ek Dosya 1). Termoplazmonik yöntem, hücresel yanıt ve onarım mekanizmalarını incelemek amacıyla PM'de nanoskopik delikler oluşturmak için kullanılabilir. Daha doğrusu, delinme, Şekil 1A ve B'de gösterildiği gibi, membrana yakın olan AuNP'lerin optik ısıtması yoluyla elde edilebilir. Bu lokalize delinme, bir kalsiyum sensörü tarafından doğrulanan ve böylece PMR makinesini harekete geçiren Ca2+ akışına izin verir. Canlı hücre deneyleri için, ANXA2'nin PMR'deki rolünü konfokal mikroskopi ile izlemek için 200 nm çapındaki AuNP'ler hücrenin altındaki yüzeyde hareketsiz hale getirildi. 1064 nm dalga boyuna sahip NIR lazeri (Şekil 1A,B), AuNP'yi ışınlar, plazmonik özelliklerinden yararlanır (Şekil 1C), biyolojik saydamlık penceresinde önemli ölçüde yerel ısınmaya (Şekil 1D) neden olurkenhücrenin kendisine minimum zarar verir. AuNP'yi çevreleyen yüksek sıcaklık bölgesi, Şekil 1E'de gösterildiği gibi, NP'nin yarıçapına karşılık gelen bir mesafede hızla 0-40 oranında azalır ve her üç boyutta da son derece sınırlı bir yaralanmaya izin verir.
Ek Dosya 1. Bu Dosyayı indirmek için lütfen buraya tıklayın.
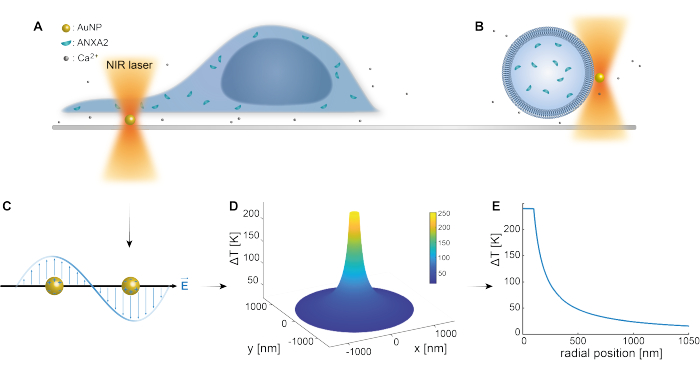
Şekil 1: Deneysel yöntemin şematik taslağı. (A) ANXA ile transfekte edilmiş hücreler, yüzeydeki hareketsizleştirilmiş altın nanopartiküllerin (AuNP'ler) üzerine yerleştirilir veya (B) kapsüllenmiş ANXA'ya sahip dev unilameller veziküller (GUV'ler), AuNP'ler içeren bir ortamda süspanse edilir. (C) Tek bir AuNP, gelen elektromanyetik alan ile iletim elektronları arasındaki etkileşimin NP içindeki elektronların toplu salınımına yol açtığı NIR optik tuzağı tarafından ışınlanır. (D) Bu işlem, sıcaklıkta oldukça sınırlı ancak önemli bir artışa neden olur. NP yüzeyindeki sıcaklığı tahmin etmek için Mie teorisi kullanılır ve 200 nm çapında ve lazer yoğunluğu I = 6.36 x 10⁸ W/cm2 olan bir AuNP için bir (E) sıcaklık profili hesaplanır. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
Hücre zarı üzerindeki termal etkiyi en aza indirmek için, AuNP'ler yalnızca ~1 saniye boyunca ışınlanır. Bu, tipik olarak ortaya çıkması için daha fazla zaman gerektiren proteinlere verilen zararı azaltan geçici ve yerel bir ısınma patlamasına neden olur. Membran delinmesi üzerine, eklavin proteinleri saniyenin çok küçük bir bölümünde toplanır ve birkaç saniye içinde, yaralanma bölgesi çevresinde eklavin halkası benzeri bir iskele oluşur (Şekil 2). Bu yaklaşım aynı zamanda, onarım süreçlerinin tam şemasına ışık tutmak amacıyla ANXA5'in hem canlı hücrelere hem de model membranlara16 katılımını araştırmak için de uygulanmıştır. Birincil odak noktası, çeşitli annexin proteinlerinin ilişkili alımı üzerinde olsa da, onarım mekanizmasının biyofiziksel yönleri henüz aydınlatılamamıştır.
Önerilen yöntemi tam olarak uygulamak için üç temel bileşen gereklidir: konfokal mikroskopi, optik cımbız ve metal nanopartiküller. Optik cımbız, AuNP'leri yakalamak için kullanılır ve bunların yapımı, Neuman ve ark.49 tarafından özetlenen prosedür izlenerek gerçekleştirilebilir. Bununla birlikte, bir optik cımbız oluşturmanın çok zor olduğu kanıtlanırsa, hücrelerin altında hareketsiz hale getirilen AuNP'leri ışınlamak için sıkıca odaklanmış bir NIR lazeri kullanılabilir. Bu protokol için küresel AuNP'ler seçilirken, NIR bölgesi48 içinde oldukça lokalize bir sıcaklık gradyanı elde etmek için ayarlanabilir absorpsiyon spektrumlarına sahip çeşitli plazmonik parçacıklar da kullanılabilir.
Floresan görüntüleme, floresan etiketli proteinlerin rolünü gözlemlemek için gereklidir ve bu nedenle, toplam iç yansıma mikroskobu (TIRF)56 , konfokal görüntülemeye bir alternatif olarak düşünülebilir. Bununla birlikte, bu teknik sadece yüzey görüntülemeye izin verir ve model membran vezikül deneyleriyle uyumlu olmaz. Sonuç olarak, hem optik cımbız hem de konfokal mikroskop, nanopartikülün kesin lokalizasyonu ve hücre hasarını çevreleyen lokal alanın ayrıntılı olarak araştırılması için gereklidir. Nanoparçacığı kırınım sınırlı bir lazer odağı ile etkili bir şekilde ışınlamak için nanoparçacığı görselleştirmek gerekir. Bu, Leica konfokal mikroskopların standart bir görüntüleme özelliği olan yansıma mikroskobu ile en iyi şekilde elde edilebilir. Bununla birlikte, yansıma veya saçılma görüntüleme mevcut değilse, daha az verimli floresan AuNP etiketlemesi gibi alternatif yöntemler düşünülebilir.
Özetle, bu çalışmada sunulan yüksek oranda kontrol edilebilir ve lokalize termoplazmonik yöntem, canlı hücrelerde hücresel yanıtlarda ve PM onarım mekanizmalarında yer alan moleküler bileşenleri araştırmak için mükemmel bir platform olarak hizmet etme potansiyeline sahiptir. PM hasarı üzerine protein yanıtını incelemeye ek olarak, bu yaklaşım vezikülleri lokal olarak delmek için de kullanılabilir, böylece hem protein-protein hem de protein-membran dinamiklerinde protein yanıtının araştırılmasını sağlar. Ayrıca bu yöntem, zarlar bozulduğunda proteinler, lipitler ve küçük moleküller arasındaki etkileşimlerin kantitatif bir analizine izin verir. Toplu olarak, bu ilerlemeler, karmaşık ve karmaşık plazma membran onarım makineleriyle ilgili çözülmemiş bazı sorulara ışık tutma potansiyeline sahiptir.
Protokol
1. Hücre zarı delinme hazırlığı
- Hücre tohumlama (1. Gün)
- İnsan embriyonik böbrek (HEK293T) hücrelerini, p birleşmeye ulaşana kadar% 5 CO2 nemlendirici inkübatöründe 37 ° C'de kültür ortamında kültürleyin.
- 500 μL tripsin kullanarak hücreleri yüzeyden ayırın, 200.000 HEK293T hücresi sayın ve toplam hacmi 3 mL kültür ortamı olan bir kültür kabına tohumlayın. Hücreleri 37 °C'de %5CO2 nemlendirici inkübatörde 24 saat inkübe edin.
NOT: Yemeğin ortasında hücre kümelenmesini önlemek için, hücreleri eşit şekilde yayın ve bulaşma verimliliğini azaltabileceğinden tabağı döndürmekten kaçının.
- Hücre transfeksiyonu (2. Gün)
NOT: Transfekte edilen hücreler, transfeksiyondan sonra 48 saate kadar kullanılabilir.- İlgilenilen plazmidi ve transfeksiyon reaktifini kullanmadan önce 5 saniye pipetleyin.
- Steril 2 mL'lik bir tüpte, aşağıdakileri belirli sırayla karıştırın: 500 μL indirgenmiş serum ortamı, 5 μL transfeksiyon reaktifi (plazmidden 4 kat daha fazla) ve 1.25 μL plazmit (1 μg / μL).
NOT: Membran yırtılması üzerine kalsiyum akışını araştırmak için aynı prosedürü izleyin, ancak membrana bağlı kalsiyum sensörü probu GCaMP6-CAAX (1 μg/μL) kullanın. - Transfeksiyon karışımını nazikçe ama iyice pipetleyin ve hücrelere damla damla eklemeden önce oda sıcaklığında (RT) 30 dakika inkübe edin.
- Transfeksiyon karışımını eklemeden önce, ortamı kültür kabından çıkarın, hücreleri 2 mL fosfat tamponlu salin ile nazikçe yıkayın ve tabağa 2000 μL azaltılmış serum ortamı ekleyin.
- Hücreleri, ortamı 3 mL kültür ortamına değiştirmeden önce% 5 CO2 nemlendirici inkübatöründe 37 ° C'de 2 saat 45 dakika boyunca transfeksiyon karışımı ile birlikte inkübe edin.
- Altın nanopartikül (AuNP) çözeltisinin hazırlanması (2. Gün)
- 200 nm AuNP stok çözeltisini 10 saniye boyunca 10. seviyede vorteksleyin (aparatın daha fazla spesifikasyonu için Malzeme Tablosuna bakın), 5 dakika (maksimum genlik) sonikat ve 10 saniye boyunca tekrar girdap yapın.
- 150 μL AuNP'yi 850 μL damıtılmış su ile toplam 1 mL hacme karıştırın.
NOT: Seyreltilmiş AuNP çözeltisi buzdolabında saklanabilir ve 1 aya kadar tekrar kullanılabilir.
- Deney yemeğinin hazırlanması (2. Gün)
- Mikrokuyu kabını 150 μL% 0.01 -% 0.1 hücre bağlantı çözeltisi ile kaplayın ve RT'de 15 dakika inkübe edin.
- Cam yüzeyi 500 μL damıtılmış su ile iki kez yıkayın ve ~10 dakika kurumaya bırakın.
- Kuru yüzeye damla damla 80 μL AuNP çözeltisi ekleyin.
NOT: AuNP agregalarını en aza indirmek için kaplanmış cam yüzeye eklemeden önce seyreltilmiş AuNP çözeltisini vorteks (10 s), sonikat (5 dakika) ve vorteks (10 s). - 1.5 mL kültür ortamı vermeden önce ~ 10 dakika bekleyin. Çanağı gece boyunca 37 °C'de inkübe edin.
- Deney odasının hazırlanması (3. Gün)
NOT: Deney odası 3. veya 4. günde hazırlanabilir; Ancak, aşağıdaki hazırlıkların deneyle aynı gün yapıldığından emin olun.- Ortamı kültür kabındaki hücrelerden çıkarın ve hücreleri 2 mL fosfat tamponlu salin ile yıkayın.
NOT: Bu adım, sonraki adımlara müdahale edebilecek herhangi bir kalıntı ortamı ve kalıntıları gidermek için gereklidir. - Kuyucuğa 500 μL enzim bazlı hücre ayırma çözeltisi ekleyin ve hücreler kültür kabından ayrılana kadar 1-3 dakika inkübe edin.
- 1,5 mL taze kültür ortamı ekleyin ve hücre kümeleri olasılığını en aza indirmek için homojen bir hücre çözeltisi elde etmek için hücre çözeltisini pipetleyin.
- Ortamı deneysel mikro kuyudaki AuNP'lerden dikkatlice çıkarın.
- Hücre çözeltisini (2 mL) mikrokuyuya ekleyin ve deneyi gerçekleştirmeden önce en az 5 saat inkübe etmesine izin verin.
NOT: Optimum deney koşulları için, hücrelerin odanın ortasında kümelenmesine neden olabileceğinden, odayı döndürmekten kaçının.
- Ortamı kültür kabındaki hücrelerden çıkarın ve hücreleri 2 mL fosfat tamponlu salin ile yıkayın.
2. Hücre zarı delinme deneyi
- Deneyin optik ayarları
- Deneyleri, 1064 nm yakalama lazeri57 ile birleştirilmiş bir konfokal tarama mikroskobu kullanarak gerçekleştirin.
- Optik yakalamayı, 63 sayısal açıklığa (NA) sahip 1.2x suya daldırma objektifi kullanarak odak düzleminde gerçekleştirin.
- Odağın bir Airy diskinin boyutu olduğunu ve ışınlama lazerinin odak ışını genişliğinin yarıçap olarak ~540 nm olduğunu varsayalım.
- Alan başına lazer gücünü (W/cm2) hesaplayarak lazer gücünü (P) karşılık gelen lazer yoğunluğuna (I) dönüştürün.
- Fotoçoğaltıcı tüpler kullanılarak algılanan çoklu floresan sinyallerini ve saçılma sinyalleri aracılığıyla metalik NP'lerin aynı anda algılanmasını görselleştirmek için bir akusto optik ışın ayırıcı (AOBS) kullanın.
NOT: Tüm konfokal sistemler, metalik NP'lerin yansıma görüntülemesine izin veren AOBS ile donatılmamıştır. Burada, diğer tespit biçimleri uygulanmalı veya hücrenin altındaki alanda NIR lazerin sıralı bir taraması denenebilir. - Deney oturumları sırasında, mikroskop üzerine hücreler, moleküler floresan problar ve altın nanopartiküller içeren cam tabanlı açık bir oda monte edin.
- Piezoelektrik bir aşamaya monte edilmiş numuneyi çevirerek kapanı hücrelere göre hareket ettirin ve nanometre hassasiyetinde yanal hareketlersağlayın 16.
NOT: Optik kapan sabit tutulur.
- Hücre zarı delinmesi için deneysel ayarlar
- Bir floresan proteini ile birleştirilmiş annexin plazmitleri ile transfekte edilmiş HEK293T hücreleri, cam yüzey üzerinde hareketsiz hale getirilen izole edilmiş AuNP'lerin üzerine yerleştirin (Şekil 1A).
- GFP floresan sinyalini görselleştirmek için bir Argon 488 nm lazer ve taramalı konfokal mikroskopta AuNP yansımasını gözlemlemek için bir HeNe 633 nm lazer kullanın.
- Tek bir AuNP'yi ~1 saniye boyunca ışınlamak için 1064 nm NIR lazerle çalışan optik cımbızı kullanın ve plazma zarını bozan sıcaklıkta önemli bir yerel artışa neden olun.
- Odaklanmış parçacığa 200-295 mW arasında ışınlama uygulayın, bu da önemli bir sıcaklık artışına neden olur.
NOT: Belirli kuruluma bağlı olarak, odak noktasındaki lazer gücü belirtilen miliwatt'ın yaklaşık 'sine ulaştığı için optiklerde önemli bir güç kaybı vardır. Özgül yoğunluk (W/cm2 cinsinden ölçülür) sistemin tam hizalamasına, özellikle odak boyutuna bağlıdır. Ek olarak, camın ısı iletimi hücre ve suyunkinden daha yüksektir ve sonuç olarak plazma zarına salınan ısı miktarı biraz azalır48,58. - NIR lazer odak noktasının lokalizasyonunu uygun şekilde kalibre ederek etkili ve lokalize PM hasarı ve müteakip protein onarım yanıtı elde edin. Bu, aynı görüntüleme ortamında asılı duran tek bir AuNP'nin yakalanması ve seçilen AuNP'nin ışınlamadan önce odakta olmasını sağlayarak elde edilir.
NOT: Nanopartikül, saçılma sinyali en keskin göründüğünde, yani konfokal mikroskopide gözlemlenirken net kenarlar sergilediğinde ve parçacığın etrafında bir hale olmadığında odakta olduğu kabul edilir (Şekil 2C (ii)).
- Hücre ve AuNP yoğunluk koşulları
- Plazma zarlarının üst üste binmesini önlemek için hücre kümeleri yerine tek hücreleri seçin.
NOT: Hücreler, düzleştirilmiş bir morfoloji sergileyerek yüzeye yapıştırılmalıdır (Ek Şekil 1), bu da hücre çevresinin delinmesine izin verirken nükleer zarın zarar görmesini önler (Ek Şekil 2). - Hücreleri protokole göre veya AuNP hücresel alımını önlemek için yerleşene ve düzleşene kadar inkübe edin. Aşırı inkübasyon süresinden kaçının ve PEGile AuNP'leri kullanarak AuNP endositozu olasılığını azaltın.
- Hareketsizleştirilmiş AuNP'lerin, agregaları önlemek için birbirinden yeterince aralıklı tek parçacıklar halinde bulunduğundan emin olun. Agregalar, termal gradyanda önemli bir artışa yol açabilir ve bu da hücrenin önemli bir bölümünü bozabilecek yüksek sıcaklıklara neden olabilir.
- Hücre sağlığını korumak için numuneyi her 1-2 saatte bir değiştirin.
NOT: Uzun süreli maruz kalma, hücre sağlığında bozulmaya yol açabilir ve membran onarımı açısından yaralanmaya doğru yanıt verme yeteneklerini tehlikeye atabilir. Hücre sağlığındaki bu düşüş, hücreler daha küresel ve daha sert göründüğü ve sonunda hücre ölümüyle sonuçlandığı için tipik olarak hücre şeklindeki bir değişiklikle gözlenir.
- Plazma zarlarının üst üste binmesini önlemek için hücre kümeleri yerine tek hücreleri seçin.
Ek Bilgiler. Bu Dosyayı indirmek için lütfen buraya tıklayın.
3. Dev unilamellar vezikül (GUV) preparatı
- Lipid karışımının hazırlanması
- 1,2-dioleoil-sn-glisero-3-fosfokolin (DOPC) ve 1,2-dioleoil-sn-glisero-3-fosfo-L-serin (DOPS) lipitlerini 4:1'lik bir molar oranda birleştirerek GUV lipid bileşimini yapın (bkz. Tablo 1). Lipid stoğunu deneysel ihtiyaçlara göre 1,5 mL'lik cam şişelere ayırın ve -20 °C'de saklayın.
NOT: Uzun süreli lipit koruması ve doymamış lipitlerin oksidasyonunu önlemek için, aliquoted şişelerdeki havayı argon ile değiştirin. - Lipitleri karıştırmadan önce, kloroformla çözünmüş lipitler için kirletici madde içermediklerinden emin olmak için 50 μL ve 500 μL'lik bir cam veya metal şırıngayı beş kez kloroform ile iyice temizleyin.
DİKKAT: Toksisitesi nedeniyle kloroformu çeker ocakta kullanın.- Hesaplanan kloroform hacmini temiz bir amber cam şişeye aktarın, ardından her bir lipitin belirtilen miktarını aktarın (bakınız Tablo 1).
NOT: Lipid stokları arasında çapraz kontaminasyonu önlemek için şırıngaların kloroform ile temizlendiğinden emin olun. - Son olarak, membran boyasını ekleyin ve lipitleri pipetleyerek iyice karıştırın. Hazırlanan lipit karışımını daha sonra kullanmak üzere -20 °C'de saklayın; Karışım, önemli bir lipit hasarı olmadan 2-3 hafta boyunca canlı kalır.
NOT: Karıştırma metalik veya cam bir şırınga ile yapılmalıdır. Lipitleri dondurucudan çıktıklarında daima buz üzerinde tutun.
- Hesaplanan kloroform hacmini temiz bir amber cam şişeye aktarın, ardından her bir lipitin belirtilen miktarını aktarın (bakınız Tablo 1).
- 1,2-dioleoil-sn-glisero-3-fosfokolin (DOPC) ve 1,2-dioleoil-sn-glisero-3-fosfo-L-serin (DOPS) lipitlerini 4:1'lik bir molar oranda birleştirerek GUV lipid bileşimini yapın (bkz. Tablo 1). Lipid stoğunu deneysel ihtiyaçlara göre 1,5 mL'lik cam şişelere ayırın ve -20 °C'de saklayın.
- Polivinil alkol (PVA) jelinin hazırlanması
- Weinberger ve ark.23tarafından açıklanan jel destekli hidrasyon yöntemini kullanarak GUV'leri küçük değişikliklerle hazırlayın.
- 5 g PVA'yı 100 mL 50 mM sükroz, 25 mM NaCl ve 25 mM Tris (pH 7.4) içeren bir tamponda çözerek PVA jelini hazırlayın.
- PVA çözeltisini 85 °C'ye ısıtın ve şeffaf hale gelene kadar karıştırın. RT'ye soğumasını bekleyin ve daha sonra kullanmak üzere buzdolabında saklayın.
NOT: PVA tamponda düzgün şekilde çözülmez ve bu nedenle 85 °C'ye kadar ısıtma gereklidir.
- Weinberger ve ark.23tarafından açıklanan jel destekli hidrasyon yöntemini kullanarak GUV'leri küçük değişikliklerle hazırlayın.
- Cam slaytların hazırlanması
- Cam slaytları etanol ile temizleyin ve kurumaya bırakın. Ardından, cam yüzeyde kalan kontaminasyonu gidermek için slaytlara bir hava plazma temizleyici uygulayın.
- PVA kaplı cam slaytların hazırlanması
- Akışkanlığını artırmak için PVA jelini (%5) 30 dakika boyunca 60 °C'ye kadar ısıtın. Cam slaytın üzerine 90 μL ılık PVA uygulayın, eşit şekilde yayın ve 50 °C'de 50 dakika boyunca bir ısıtma kabininde kurumaya bırakın.
- PVA cam lam hazır olduğunda, bir cam veya metal şırınga kullanarak hazırlanan lipit karışımından 30 μL ekleyin ve iğnenin kenarını kullanarak ince bir film halinde yayın.
- Kloroform içeriğini hafif nitrojen basıncı altında buharlaştırarak lipit karışımını kurutun. Ayrıca, cam slaytları 1.5-2 saat vakum altında kurutun.
- Bir odada büyüyen GUV'ler
- Hazırlanan cam slaytı kullanarak, tasarım olarak daha önce yayınlanmış bir rapora59 benzer şekilde kurum içi odayı monte edin.
- Ayrı bir 2 mL'lik tüpte, ilgilenilen rekombinant proteini (bu durumda, ANXA5 veya ANXA4), 80 mM sükroz, 70 mM NaCl ve 25 mM Tris-HCl'den (pH 7.4) oluşan bir büyüme tamponu (GB) ile 500 nM'lik bir nihai konsantrasyona seyreltin.
- Hazneye 400 μL seyreltilmiş rekombinant protein çözeltisi ekleyin. GUV'lerin biriken lipit kaplamadan büyümesine izin vermek için odayı RT'de 1 saat inkübe edin. Negatif kontrol olarak protein hariç aynı tamponu kullanın.
NOT: Tampon buharlaşmasını önlemek için hazneyi poliolefin filme sarın. - Hazne içeriğinin 400 μL'sini 2 mL'lik bir tüpe aktararak GUV'leri toplayın.
- Toplanan çözeltiye 55 mM glikoz, 70 mM NaCl ve 50 mM Tris-HCl (pH 7.4) içeren 1 mL gözlem tamponu (OB) ekleyerek kapsüllenmemiş proteinleri GUV'lerin dışına çıkarın. Ardından, çözeltiyi 13 ° C'de 10 dakika boyunca 600 x g'da santrifüjleyin.
- Santrifüjlemeden sonra, 1 mL süpernatantı eşit hacimde gözlem tamponu ile değiştirin. GUV'leri nazik pipetleme yoluyla dağıtın ve GUV deneylerinde kullanılana kadar buzdolabında saklayın.
4. GUV delinme deneyi
- Oda hazırlığı
- Deney için 35 mm'lik cam tabanlı bir tabak kullanın. GUV'lerin yüzeye yapışmasını ve patlamasını önlemek için, yüzeyi 15-30 dakika boyunca β-kazein (5 mg / mL) ile kaplayın.
- β-kazein çözeltisi için, 0.1 g proteini 20 mM Tris (PH 7.5) ve 100 mM NaCl'lik 20 mL'lik bir tamponda çözün. Protein çözeltisini süzün, küçük şişelere ayırın ve daha sonra kullanmak üzere dondurun.
- Yüzeydeki fazla serbest β-kazeinleri çıkarmak için hazneyi gözlem tamponu ile iki kez yıkayın ve RT'de kurumaya bırakın.
- Ayrı bir 2 mL'lik tüpte, toplanan GUV'leri OB ile karıştırın. İstenen nihai konsantrasyon için karışımaCaCl2 ekleyin (bu durumda 200 μM).
- Karışıma 150:100 oranında 150 nm altın nanokabuklar (AuNS'ler) ekleyin. Nihai karışım 250 μL GUV, 225 μL OB, 20 μL CaCl2 (5 mM) ve 5 μL belirtilen AuNS'lerden oluşur.
- Deney için 35 mm'lik cam tabanlı bir tabak kullanın. GUV'lerin yüzeye yapışmasını ve patlamasını önlemek için, yüzeyi 15-30 dakika boyunca β-kazein (5 mg / mL) ile kaplayın.
- Deney düzeneği
- Karışımı hazneye aktarın ve mikroskop tablasına monte edin. Haznenin boyutuna bağlı olarak, karışımın tamamını veya karışımın bir kısmını ekleyin.
NOT: Kalsiyum iyonları zardan geçebildiğinden ve eklerin zarın iç broşürüne bağlanmasına aracılık edebildiğinden zamanlama çok önemlidir. - Hücre delme deneyleri için kullanılan aynı optik kurulumu kullanın.
- ~ 125 mW'lık bir lazer gücü uygulayarak tek bir AuNS'yi bir GUV'nin yakınında veya yüzeyinde yakalamak için optik cımbızı kullanın.
- Ardından, lazer gücünü ~ 300 mW'a yükseltin. Bu, hedef bölgedeki zarı bozan ve delinen oldukça lokalize bir sıcaklık artışı üretir.
NOT: AuNS'ler, katı AuNP'lere kıyasla daha küçük bir boyutu korurken daha yüksek bir geçici sıcaklık artışı üretme yetenekleri nedeniyle GUV deneyleri için tercih edilir.
- Karışımı hazneye aktarın ve mikroskop tablasına monte edin. Haznenin boyutuna bağlı olarak, karışımın tamamını veya karışımın bir kısmını ekleyin.
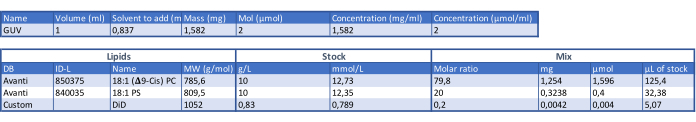
Tablo 1: GUV bileşimini belirleme tablosu. Bu Tabloyu indirmek için lütfen buraya tıklayın.
5. Hücre ponksiyon deneylerinde ANXA yanıtının ölçümleri ve veri analizi
- Görüntüleri analiz etmek ve Mie'nindenklemleri 60,61'e dayalı olarak AuNP sıcaklık profilini (Şekil 1D, E) hesaplamak ve çizmek için MATLAB'ı kullanın.
- Ek olarak, FIJI ImageJ dağılımını62,63 kullanarak tüm konfokal görüntüleri işleyin.
- ANXA halka yarıçapının hesaplanması
- Membran yaralanma analizinden önce ham verilerden delinmiş alanı içeren ilgili bölgeyi kırpın.
- ANXA halkasının merkezini ve dış çevresini manuel olarak işaretleyerek her görüntüyü işlemek için şirket içi MATLAB iş akışını kullanın.
- İlgilenilen bölge için işleme sınırlarını belirlemek için bu işaretleri kullanın.
NOT: Alan daha sonra ayarlanan sınırlar dahilinde radyal olarak işlenir ve merkeze belirli bir mesafedeki floresan yoğunluğu, aynı merkez mesafesine sahip tam daire üzerindeki ortalamadır. Bu numara her yarıçap adımı için saklanır. - Şekil 3A'da gösterildiği gibi, sırasıyla Rext ve R int'e karşılık gelen yarı maksimumda (FWHM) maksimumu (Rp) ve tam genişliği belirlemek için tüm tarama aralığı boyunca ortalama yoğunlukları tek boyutlu bir Gausseğrisine sığdırmak için iş akışını kullanın.
- İlgilenilen bölge için işleme sınırlarını belirlemek için bu işaretleri kullanın.
- Son olarak, ANXA halkasının yarıçapını, MATLAB iş akışı tarafından oluşturulan çizim tarafından verilen halkanın merkezinden Rext'e olan mesafeye göre belirleyin.
- Üç boyutlu ANXA halka yarıçapı hesaplaması
- Adım 5.1'deki ile aynı MATLAB analiz iş akışını kullanarak ANXA halka yarıçapındaki değişikliği z yönünde izleyin. İş akışını, Şekil 3C, E'de gösterildiği gibi, membran sargısı boyunca birkaç konfokal z kesitine uygulayın.
- Şekil 3F'de gösterildiği gibi, z kesitleri üzerindeki yarıçaplardaki değişime bağlı olarak her yara için eğimi hesaplayın.
- ANXA halka yarıçapının zaman evrimi
- Benzer şekilde, adım 5.1'deki MATLAB analiz iş akışını kullanarak termoplazmonik membran delinmesinden sonra ANXA halkasının ANXA halkasının gelişimini izleyin. Şekil 3D, G, H'de gösterildiği gibi, zaman içindeki değişiklikleri izlemek için ardışık zaman noktalarını analiz edin.
Sonuçlar
Bu çalışmada, plazma membranının bozulmasına annexin protein yanıtını araştırmak için termoplazmonik yöntem kullanılmıştır; Bununla birlikte, membran hasarı üzerine alınabilecek herhangi bir protein, ilgili proteinin floresan olarak etiketlendiği göz önüne alındığında, bu test kullanılarak araştırılabilir. Protein alımı ve işlevi, hem insan embriyonik böbrek (HEK293T) hücrelerinde hem de dev unilameller veziküllerde (GUV'ler) konfokal görüntüleme ile izlenir. Detaylandırmak gerekirse, Şekil 2 , tek bir AuNP'yi ışınlamak için 1064 nm'de odaklanmış bir NIR lazer ışınının kullanıldığı deneysel koşulları göstermektedir (Şekil 2A), bu da membran yaralanmasına ve hücreye Ca2+ akışına neden olarak PMR makinesini aktive eder. Daha sonra, eklavinler hızla yaralanma bölgesine alınır ve burada yara çevresindeki negatif yüklü fosfolipidlere bağlanırlar ve saniyeler içinde halka benzeri bir yapı oluştururlar (Şekil 2B, i-iv). GUV'leri kullanan model membran deneyleri, Şekil 2C'de gösterildiği gibi, membran deliklerinin ANXA'nın yokluğunda hızla yeniden kapatıldığını gösterdi. Bununla birlikte, ANXA varlığında, membran ponksiyonunu takiben yaralanma bölgesinde hızlı bir ANXA birikimi gözlenmiştir (Şekil 2D). Özellikle, ANXA açıkta kalan kenarları yuvarlamaya devam etti ve sonuçta GUV'nin patlamasına yol açtı. Bu yuvarlanma mekanizmasının, ANXA'nın eğriliği indükleme ve lipit zarları bükme yeteneğinden kaynaklandığına inanılmaktadır20.
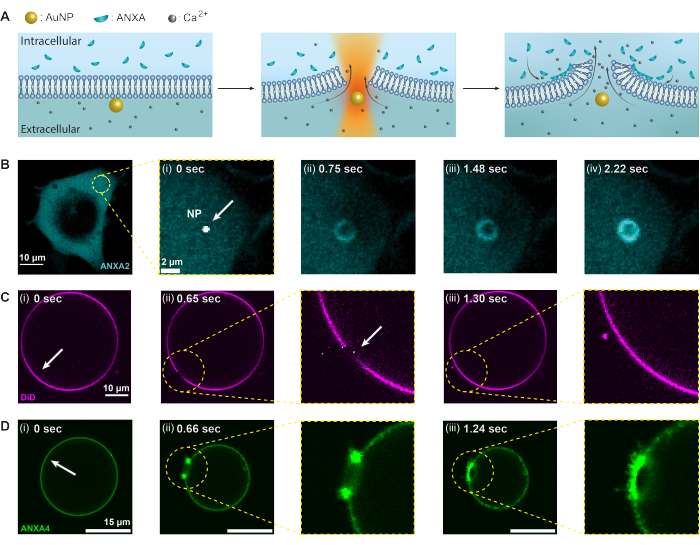
Şekil 2: Annexinler (ANXA'lar) termoplazmonik kaynaklı membran bozulmasına tepki. Başlangıçta, (A) plazma zarı, yüksek düzeyde Ca2 + iyonları içeren hücre dışı ortam ile kapsüllenmiş ANXA'lar içeren hücre içi ortam arasında bir bariyer görevi görür. Yakın kızılötesi (NIR) lazerle ışınlama üzerine, AuNP önemli miktarda ısı üreterek zarın yırtılmasına veCa2+ iyonlarının akmasına neden olur. Sonuç olarak, ANXA'ların negatif yüklü fosfolipidlere bağlandıkları yaralanma bölgesine alınmasını içeren plazma membran onarımı (PMR) mekanizması aktive edilir. (B-D) ANXA2 içeren bir hücrenin ve ANXA4 içeren bir GUV'nin konfokal mikroskopi görüntüleri bu süreci göstermektedir. (i) Işınlamadan önce, görüntüler, beyaz oklarla gösterilen ışınlama bölgeleri ile bozulmamış bir hücreyi veya GUV'yi gösterir. (ii) Nanopartikül ışınlaması üzerine, (B) ANXA'lar hızla yaralanma bölgesine alınır ve zar sargısının etrafında halka benzeri bir yapı oluşturur (B [ii-iv]). Panel (C), delinme üzerine, gözlemlenebilir membran yeniden şekillenmesi olmadan hızla yeniden kapanan, ANXA içermeyen membran lekeli bir GUV'yi göstermektedir. Öte yandan, panel (D), membran boyunca Ca2+ sızıntısı nedeniyle (i) ışınlamadan önce membrana zaten bağlı olan rekombinant ANXA4 içeren bir GUV göstermektedir. (ii) Delinme üzerine, ANXA4 serbest kenarlara bağlanır ve membran kenardan uzaklaşırken GUV'nin çökmesine neden olur. Ölçek çubukları şekil (B) için 10 μm, B (i) için 2 μm, (C) için 10 μm ve (D) için 15 μm ölçer. Bu rakam Moreno-Pescador et. al16 Royal Society of Chemistry'nin izniyle. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
Tam ANXA halka benzeri yapıların analizi (Şekil 2B ve Ek Şekil 1), yara boyutu ve morfolojisi hakkında yararlı bilgiler sağlar. ANXA halka yapısının yarıçapı, Bölüm 5'te açıklandığı gibi zaman ve mekan içinde belirlenebilir. Moreno ve ark.16, ANXA5 halka yapılarının analizinin Şekil 3'te gösterildiği canlı hücrelerde 135'ten fazla plazma membranı yaralanmasını analiz etti. Yarıçap, halkanın merkezinden eğrinin dış yarıçapına olan mesafenin, daraltılmış yoğunluk profilinin tam genişlik-yarı-maksimumuna dayalı olarak ölçülmesiyle belirlendi (Şekil 3A). Bulgular, zaman içinde sabit kalan ANXA5 halka boyutlarının (Şekil 3B) (Şekil 3D, G, H) ve uzayda (Şekil 3C, E, F) heterojen bir dağılımını göstermiştir. Bu sonuçlar, hasarlı membranın5 varsayımsal huni benzeri içe doğru tomurcuklanmasına canlı hücrelerde alternatif bir ANXA5 aracılı PMR stratejisinin göstergesi olarak, yaralanma bölgelerinin etrafında bir ANXA5 birikimi olduğunu göstermektedir.
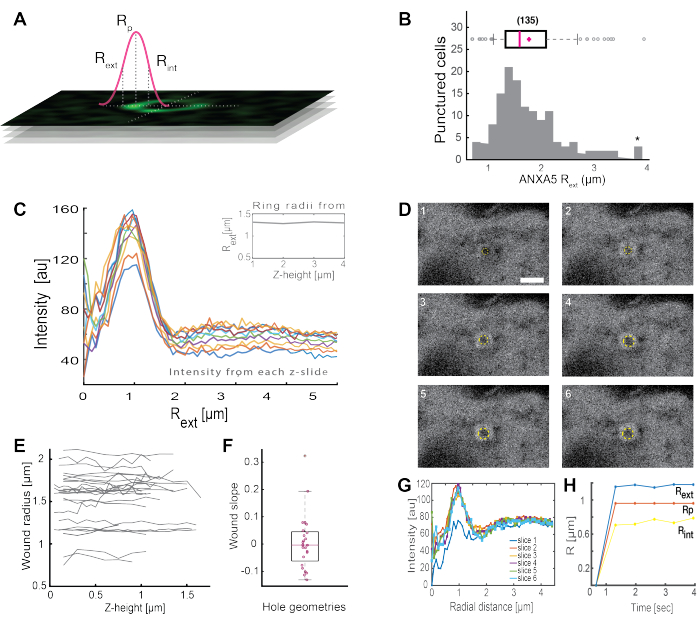
Şekil 3: Canlı hücrelerde bir yaralanma bölgesini çevreleyen ANXA5 halka yapılarının analizi. (A) Şematik gösterim, ANXA yoğunluk çizgisi profilinin tam genişlik-yarı maksimumuna dayanan analitik yaklaşımı göstermektedir. (B) Histogram, ölçülen 135 ANXA5 halka yarıçapını gösterir. (C) Z-yığınının her bir z bölümü için bir ANXA5-GFP halkası boyunca floresan yoğunluk çizgisi profilleri. (D) Konfokal görüntüler, ANXA5-GFP'nin yaralanmadan hemen sonra yara çevresinde biriktiği ve ardından yara stabilizasyonunun yapıldığı bir yaranın zaman evrimini göstermektedir. 1-6 etiketli zaman dilimleri, kare başına 0.66 s aralıklarla yakalandı. Ölçek çubuğu 2 μm'dir. (E) Yaraların yarıçapları, panel A'da sunulan yönteme göre yara derinliğinin bir fonksiyonu olarak belirlendi. (F) Yaranın eğimi, panel E'den çıkarılan verilere dayalı olarak z-yüksekliğinin bir fonksiyonu olarak ANXA5 halka yarıçapı olarak analiz edildi. (G) Floresan yoğunluk çizgisi profilleri, panel D'den ANXA5-GFP halkası boyunca ölçüldü, burada 1-6 arasındaki her zaman aralığı 1-6 dilimi olarak gösterilir. Son olarak, (H) ANXA5-GFP halka yarıçaplarının zaman evrimi, G panelindeki verilerden hesaplanan zamanın bir fonksiyonu olarak sunulur. Bu rakam Moreno-Pescador et. al16 Royal Society of Chemistry'nin izniyle. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
Sadece PM'nin bozulmasıyla oluşan halka benzeri yapılarla karşılaştırıldığında (Ek Şekil 1), çekirdeğe yakın yaralanmalar (Ek Şekil 2A) yaranın evrimini ve geometrisini etkileyebilir. Bazen, ANXA halkalarının yalnızca bir kısmı belirgindi, bu da şirket içi MATLAB analiz iş akışı kullanılarak da analiz edilebilir (bkz. Bölüm 5), ancak ek veriler kaybolabilir. Tipik olarak, yapışık olmayan hücrelerde gözlenen ANXA halkası oluşumları (Ek Şekil 2C) hem çekirdeğe hem de hücrenin çevresine yakın bulunur. Sonuç olarak, sunulan veri analizi için yetersiz olan daha uzun bir halka yapısı gözlemlenebilir. Ek olarak, yapışık olmayan hücrelerin PM hasarını takiben hücre ölümüne daha duyarlı olduğu görülmüştür. Ayrıca, AuNP agregalarının ışınlanmasından kaynaklanan yaralanmalar göz önüne alındığında, bu yaralanmaların daha şiddetli ve daha az kontrol edilebilir olabileceğine dikkat etmek önemlidir. Bunun nedeni, hücrenin büyük bir kısmına zarar verebilecek plazmonik ısıtmadaki önemli artıştır. Sonuç olarak, bu tür yaralanmalar ANXA5 halka analizine dahil edilmemiştir.
Ayrıca, ön bulgular, termoplazmonik kullanılarak plazma zarının bozulmasının, hücre içiCa2+ seviyelerinin yükselmesine neden olduğunu göstermektedir. Bu, tek AuNP'lerin düşük yoğunluklu ışınlamasında bile gözlendi, bu da Şekil 4'te gösterildiği gibi PM geçirgenliği35'i düşündürdü. Ca2+ akışı, Ca 2+ akışı üzerine konformasyonel bir değişikliğe uğrayan membrana bağlı bir kalsiyum probu olan GCaMP6s-CAAX'ı eksprese eden hücrelerde gözlendi ve bu nedenle yoğunluğunda bir artış gözlemlenebilir64. Kalsiyum yoğunluğu, zaman içinde hücrenin tüm ayak izi için ölçüldü. Arka plan gürültüsünü ortadan kaldırmak için, membran bozulması ve membran sonrası onarımdan önce arka plan Ca2+ seviyesi çıkarıldı. Maksimum yoğunluk, hücre içindeki ortalama Ca2 + yoğunluğunun normalleştirilmesiyle belirlendi, bu da Şekil 4B'de gösterildiği gibi hızlı bir başlangıç Ca2 + yoğunluk artışı ve ardından daha yavaş bir düşüş sergileyen bir yoğunluk eğrisi ile sonuçlandı.
Hücre, ~ 6.6 s'de maksimum kalsiyum yoğunluğuna ulaştı, bu da kalsiyum yoğunluğu zirvesinin (t = tc) yaranın kapanması için gereken süreye karşılık geldiğini öne süren Klenow ve ark.64'ün bulgularıyla tutarlıdır. Bununla birlikte, membran onarımı ve yara iyileşmesinin altında yatan mekanizmayı belirlemek için daha fazla araştırmaya ihtiyaç duyulurken, ön bulgular bu Ca2+ sürecinin pozitif kontrol olarak kullanılan yaralanmamış hücrede değil, sadece yaralı hücrede gözlendiğini göstermiştir. Bu, hücrenin termoplazmonik membran bozulması üzerine Ca2 + akışı yaşadığını doğrular, burada hücre içi kalsiyum seviyesi artık Ca2 + akışı ile rekabet halinde olmadığı için başarılı PMR'den sonra fazla hücre içi kalsiyum aktif olarak dışarı pompalanır ve sonunda hücre homeostazı64 elde edilir.
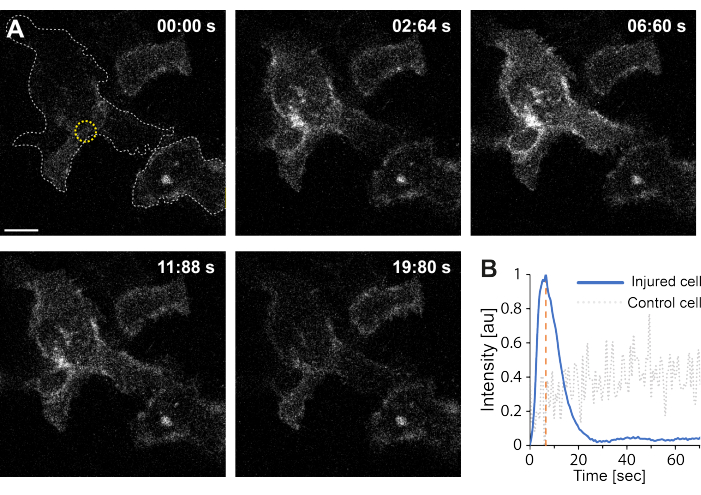
Şekil 4: Kalsiyum akışı, bir HEK293T hücresinin plazma zarının termoplazmonik tarafından parçalanmasıyla meydana gelir. Bir dizi konfokal görüntü, membrana bağlı kalsiyum probu GCaMP6s-CAAX'ı eksprese eden iki hücreyi (ilgilenilen hücre ve pozitif kontrol olarak kullanılan yaralanmamış bir hücre) gösterir. Ölçek çubuğu 10 μm'dir. (A) Işınlamadan önce, saat 00:00'da, iki hücrenin ayak izi gri noktalı çizgi ile görselleştirilir ve ışınlama bölgesi sarı daire ile gösterilir. Lazer ışınlaması üzerine, yara kapanma zamanına karşılık geldiği varsayılan bir zaman noktası olan turuncu kesikli çizgi ile gösterilen ~ 6.6 s'de maksimum yoğunluğa ulaşan hızlı bir Ca2+ akışı gözlenir64. (B) Yaralı hücredeki (mavi çizgi) GCaMP6s-CAAX probundan elde edilen kalsiyum yoğunluğu profili, komşu yaralanmamış bir hücredeki (gri noktalı çizgi) Ca2 + yoğunluğu ile karşılaştırıldı ve sadece PM bozulması üzerine net bir Ca2 + akışı gösterdi. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
Tartışma
Çalışma, termoplazmonik yaklaşımı, canlı hücrelerdeki protein tepkilerini keşfetmek ve zar bozulmasını takiben zarları modellemek için umut verici bir teknik olarak vurgulamaktadır. Bu yöntem sadece protein alımı hakkında değil, aynı zamanda protein-zar dinamiğinde yer alan proteinlerin biyofiziksel işlevi hakkında da kapsamlı bilgi sağlar. Sonuç olarak, yüzey onarımından sorumlu moleküler bileşenlerin tanımlanmasını kolaylaştırır ve plazma membran onarımının karmaşık ancak hayati mekanizmasının anlaşılmasını ilerletir. Membran bozulmasını indüklemek için mekanik, kimyasal ve optik teknikler gibi çeşitli yöntemler mevcut olsa da, bu yöntemler, hücrelere spesifik olmamak, hücre zarında birden fazla yaralanma oluşturmak veya membranda önemli hasara neden olmak ve yüksek güçlü darbeli lazerler kullanırken lazer yolu boyunca dahili hücresel materyali kesmek gibi sınırlamalardan muzdariptir. Konfokal mikroskopi ve optik cımbızın entegrasyonu en kapsamlı bilgileri sunarken, alternatif görüntüleme yöntemleri de kullanılabilir. Örneğin, plazmonik nanopartikülün görüntülenmesi yansıma mikroskobu kullanılarak elde edildiğinden, Leica konfokal mikroskoplarda yerleşik bir görüntüleme modu, karanlık alan mikroskobu 65,66, iSCAT 67,68 gibi diğer saçılma yöntemleri veya nanoparçacığın floresan etiketlemesi gibi ek görüntüleme teknikleri, AuNP görselleştirmesi için kullanılabilir, ancak bu, yöntemin uygulanabilirliğini sınırlayabilir.
Sunulan yöntem ayrıca model membranlarda nanoskopik delikler indükleyebilir ve farklı ekler arasındaki sinerji etkilerinin araştırılmasını sağlar. Bu, farklı şekilde etiketlenmiş rekombinant eklerin, örneğin sırasıyla RFP ve GFP'nin kapsüllenmesi ve ardından termoplazmonik ponksiyonun kapsüllenmesiyle elde edilir. Bu model sistemi, Şekil 2D'de gösterildiği gibi, annexinlerin serbest kenarların yakınındaki membranlarla nasıl etkileşime girdiğine dair fikir verir. Bununla birlikte, hücrelerden farklı olarak, GUV'lere açılan delikler genişlemeye devam eder, ardından vezikülün dengesizleşmesi devam eder. Konfokal mikroskopi kullanarak delik evrimini görüntülemek, delik çapının hızlı genişlemesi nedeniyle zor olabilir, ancak zaman içinde birkaç z-yığını yakalanarak gerçekleştirilebilir. Alternatif bir yöntem, daha hızlı görüntüleme için dönen bir disk konfokal kullanmak olabilir. Ayrıca, termoplazmonik yaklaşım, 20 °C ile 30 °C arasındaki numune sıcaklıklarında genellikle iki ila üç olmak üzere tek hücrelere veya GUV deneylerine uygulandığında tipik olarak saatte sınırlı sayıda optimal sonuç verir. Protein-membran dinamiğinin en doğru gözlemini elde etmek için, hücrelerin HEPES içeren bir tamponda tutulması ve numunenin her saat değiştirilmesi önerilir. Alternatif olarak, deneyler bir hücre inkübasyon odasında, yani %5CO2 ile 37 ° C'lik sabit bir sıcaklıkta gerçekleştirilerek deney penceresi uzatılabilir. Ayrıca, bu yaklaşımın stokastik optik rekonstrüksiyon mikroskobu (STORM) gibi diğer görüntüleme teknikleriyle birleştirilmesi, membran onarımında yer alan anahtar proteinlerin biyofiziksel işlevinin ve etkileşiminin tek molekül düzeyinde daha derin bir şekilde anlaşılmasını sağlayabilir. Bu, yara geometrisi ve annexin proteinlerinin yeri de dahil olmak üzere yaralanma bölgesi hakkında ayrıntılı bilgi sağlayabilir ve ayrıca membran yüzeyinin onarımında yer alan diğer kilit oyuncuları tanımlayabilir.
Membran yaralanmasını indüklemede maksimum etkinlik ve hassasiyet elde etmek için, her deneyden önce lazer odağının konumunu doğrulamak ve lazer odağının eksenel konumunun konfokal odakla çakıştığından emin olmak zorunludur. Bu hizalama, AuNP görüntüleme sırasında yoğunluğu optimize eder, bu da maksimum yerel sıcaklık artışına ve bunun sonucunda daha düşük lazer gücünde membran yaralanmasına yol açar. Bu işlem manuel olarak yürütülür ve bu nedenle odak, parçacığın konumuyla çakışan bir konuma manuel olarak çevrildiğinden, membran yırtılma verimliliğindeki değişkenliğe karşı hassastır. Bazı ticari sistemlerde olduğu gibi, yansıma modu olmayan mikroskoplarda, lazer odağının ve partikülün birlikte lokalizasyonu zor olabilir. Bu gibi durumlarda, alternatif görüntüleme modları (örneğin, parlak alan) kullanılabilir ve beklenen parçacık konumu etrafında yavaş bir raster taraması gerçekleştirilebilir. Düşük lazer gücünün yalnızca membran geçirgenliğine neden olabileceğine dikkat edilirken, yüksek lazer gücünün, cam yüzey bir soğutma etkisine sahip olsa bile, NP çevresinde suyun kaynama noktasını aşan sıcaklıklar üretebileceği unutulmamalıdır. NP'leri çevreleyen nanokabarcıkların oluşumunun 200 °C ile 300 °C25,48 arasında meydana geldiği tahmin edilmektedir, burada patlayıcı ısı ya lazer odağından parçacık yer değiştirmesine ya da parçacık parçalanmasına neden olabilir. Ek olarak, ısıtma sırasında nano veya mikro kabarcıkların oluşması bu yöntem için bir zorluk teşkil eder. Hava arayüzleri membranları ıslattığından ve istenmeyen bir durum olan protein destabilizasyonuna neden olabileceğinden, membran onarımını araştırırken ısıtmayı sınırlamak zorunludur. Özellikle, altın nanokabuklar yüksek sıcaklıklara tolerans göstermez ve yüksek çözünürlüklü mikroskopi58 ile gösterildiği gibi bu koşullar altında bozulur.
Bu makale, hem hücrelere hem de model membranlara uygulanabilen, membranlarda yüksek oranda lokalize delikler gerçekleştirmek için termoplazmonik kullanmak için ayrıntılı bir protokol sağlar. Isınma derecesini daha da azaltmak için, NIR ışığıyla rezonansa giren daha küçük nanopartiküller kullanılabilir, bu da endozomlarda, endoplazmik retikulumda ve nükleer zarfta hücre içi deliklere olanak tanır. Çubuklar ve nanomatruşkalar48 dahil olmak üzere bu tür nanopartiküller, hücre yüzeyinde kolayca alınan ve çekirdeğe doğru kaçakçılığı yapılan endositozlu altın nanopartikülleri hedefleyerek nükleer zarf onarımını araştırmak için kullanılabilir69. Genel olarak, bu teknik, PMR'de yer alan temel moleküler bileşenlerin tanımlanmasını ve incelenmesini, hücrelerin canlılığını korurken biyofiziksel işlevlerini ve rollerini aydınlatmayı sağlar.
Açıklamalar
Yazarların açıklayacak hiçbir şeyi yok.
Teşekkürler
Jesper Nylandsted'e bize rekombinant annexin proteinleri ve annexinleri kodlayan plazmitler sağladığı için teşekkür etmek istiyoruz. Bu çalışma, Danimarka Bağımsız Araştırma, Doğa Bilimleri Konseyi (DFF-4181-00196), Novo Nordisk Vakfı Disiplinlerarası Sinerji Programı 2018 (NNF18OC0034936), Danimarka Kanser Derneği Bilimsel Komitesi (R90-A5847-14-S2), Lundbeck Vakfı (R218-2016-534) ve Lundbeck Vakfı Mükemmeliyet Merkezi (Nanotıpta Biyomembranlar) tarafından finansal olarak desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 1064 nm yakalama lazeri | Spectra Physics | N/A | Spectra Physics J201-BL-106C, Nd: YVO4 NIR lazer |
| 160 nm Altın Nanokabuklar | NanoComposix | NCXGSIR150 | |
| 200 nm Altın Nanopartiküller | BBI Çözümleri | EM. GC200/7 | |
| 35 mm cam yüzey MatTex microwell | MATTEK | P35G-1.5-14-C | |
| Amber cam şişeler | Supelco Sigma Aldrich | 243438 | |
| Annexin A2 plazmitleri | N/A | N/A | Danimarka Kanser Araştırma Merkezi'ndeki işbirlikçimizden alındı |
| Annexin A4 rekombinant protein | Danimarka | Kanser Araştırma Merkezi'ndeki işbirlikçimizden alınan N/A N/A N-terminal GFP etiketli ANXA4 | |
| Annexin A5 rekombinant protein | N/A | N/A N-terminal | GFP, Danimarka Kanser Araştırma Merkezi'ndeki işbirlikçimizden alınan ANXA5 etiketli |
| beta-kazein | Sigma Life Science | C6905-1G | |
| CaCl2 | Suprlco (sigma Aldrich) | 10035-04-8 | |
| Santrifüj 5702 | Eppendorf | 5702 | |
| Kloroform | VWR Kimyasalları | 67-66-3 | |
| Kültür kabı (Nunclon Delta Yüzeyi) | Thermo scientific | 150460 | |
| DID hücre etiketleme Çözeltisi | Invitrogen | 7757 | |
| Damıtılmış su | Gibco | 15230-089 | |
| DOPC | Avanti Polar Lipidler | 850375C | Kloroformda çözünmüş |
| DOPS | Avanti Polar Lipids | 840035C | Kloroformda Çözülmüş |
| Dulbecco'nun Modifiye Eage'nin Ortamı | Thermo Fisher Scientific | 11995065 | |
| FIJI ImageJ dağılımı | ImageJ2 | N/A | |
| GCaMP6s-CAAX | N/A | Danimarka Kanser Araştırma Merkezi'ndeki işbirlikçimizden alındı | |
| Gibco Fetal Sığır Serumu | Fisher Bilimsel | 11573397 | Kültür ortamının% 10'u |
| Glikoz | PROLABO | 24 374.297 | |
| Hamilton şırıngaları | Hamilton Company | N/A | 50 ve 500 mikrolitre |
| Harrick Plazma Temizleyici PDG-002 | Harrick Plazma N | /A | |
| HEK293T hücreleri | N/A | Danimarka Kanser Araştırma Merkezi'ndeki | |
| işbirlikçimizden alındıLeica Acousto-Optik Işın Ayırıcı (AOBS) | Leica | N/A | |
| Leica PL APO 63x suya daldırma objektifi, NA = 1.2 | Leica | /A | |
| Leica SP5 konfokal tarama mikroskobu | Leica | N/A | |
| Lipofectamine | Fisher Scientific | 15338030 | |
| MatLab | The Mathworks, Inc., Natick, Massachusetts, Amerika Birleşik Devletleri | N/A | |
| NaCl | VWR Kimyasalları | 7647-14-5 | |
| Opti-MEM Azaltılmış Serum Ortamı | Thermo Fisher Scientific | 11058021 | |
| Parafilm | Bemis | PM-992 | |
| Penisilin-Streptomisin | Thermo Fisher Scientific | 15140122 | Kültür ortamının% 1'i |
| Fosfat Tamponlu Tuzlu Su (PBS) | Thermo Fisher Scientific | 10010023 | |
| Piezoelektrik aşama (PI 731.20) | Physik Instrumente (Almanya) | N / A | |
| Poli-L-Lizin | Sigma-Aldrich | P8920-100ML | kaplama için% 0.01-0.1 |
| Polivinil alkol | Sigma-Aldrich | 363065-25G | |
| yuvarlak cam slayt 25 mm & Oslash; | VWR | 631-1584 | |
| Sonikatör Brandson 2800 | Brandson | N/A | |
| sükroz | Sigma Life Science | 57-50-1 | |
| T25 doku kültürü şişesi | Falcon | 353108 | Mavi Bacalı kapak |
| Tris-HCl | Invitrogen | 15567-027 | |
| TripLE | Thermo Fisher Bilimsel | A1285901 | |
| Tripsin-EDTA | Fisher Bilimsel | 11590626 | |
| VWR Mikser mini girdap 230V EU | VWR | 12620-84 | ECN: 444-2790, SN: 150713022 |
Kaynaklar
- Bendix, P. M., et al. Interdisciplinary synergy to reveal mechanisms of annexin-mediated plasma membrane shaping and repair. Cells. 9 (4), 1029(2020).
- Gajic, O., Lee, J., Doerr, C. H., Berrios, J. C., Myers, J. L., Hubmayr, R. D. Ventilator-induced Cell Wounding and Repair in the Intact Lung. American Journal of Respiratory and Critical Care Medicine. 167, 1057-1063 (2003).
- McNeil, P. L., Khakee, R. Disruptions of muscle fiber plasma membranes. Role in exercise-induced damage. The American Journal of Pathology. 140 (5), 1097-1109 (1992).
- Yu, Q. C., McNeil, P. L. Transient disruptions of aortic endothelial cell plasma membranes. The American Journal of Pathology. 141 (6), 1349-1360 (1992).
- Boye, T. L., et al. Annexin A4 and A6 induce membrane curvature and constriction during cell membrane repair. Nature Communications. 8, 1623(2017).
- Bischofberger, M., Gonzalez, M. R., van der Goot, F. G. Membrane injury by pore-forming proteins. Current Opinion in Cell Biology. 21, 589-595 (2009).
- Tang, S. K. Y., Marshall, W. F. Self-repairing cells. Science (New York, N.Y.). 356, 1022-1025 (2017).
- Abreu-Blanco, M. T., Verboon, J. M., Parkhurst, S. M. Single cell wound repair: Dealing with life's little traumas. Bioarchitecture. 1, 114-121 (2011).
- Sønder, S. L., et al. Annexin A7 is required for ESCRT III-mediated plasma membrane repair. Scientific Reports. 9, 6726(2019).
- Andrews, N. W., Almeida, P. E., Corrotte, M. Damage control: cellular mechanisms of plasma membrane repair. Trends in Cell Biology. 24 (12), 734-742 (2014).
- Idone, V., Tam, C., Goss, J. W., Toomre, D., Pypaert, M., Andrews, N. W. Repair of injured plasma membrane by rapid Ca2+-dependent endocytosis. The Journal of Cell Biology. 180 (5), 905-914 (2008).
- Lauritzen, S. P., Boye, T. L., Nylandsted, J. Annexins are instrumental for efficient plasma membrane repair in cancer cells. Seminars in Cell & Developmental Biology. 45, 32-38 (2015).
- Häger, S. C., Nylandsted, J. Annexins: players of single cell wound healing and regeneration. Communicative & Integrative Biology. 12 (1), 162-165 (2019).
- Jaiswal, J. K., et al. S100A11 is required for efficient plasma membrane repair and survival of invasive cancer cells. Nature Communications. 5, 3795(2014).
- Draeger, A., Monastyrskaya, K., Babiychuk, E. B. Plasma membrane repair and cellular damage control: The annexin survival kit. Biochemical Pharmacology. 81 (6), 703-712 (2011).
- Moreno-Pescador, G. S., et al. Thermoplasmonic nano-rupture of cells reveals annexin V function in plasma membrane repair. Nanoscale. 14 (21), 7778-7787 (2022).
- Zhivotovsky, B., Orrenius, S. Calcium and cell death mechanisms: A perspective from the cell death community. Cell Calcium. 50 (3), 211-221 (2011).
- Gerke, V., Moss, S. E. Annexins: From structure to function. Physiological Reviews. 82 (2), 331-371 (2002).
- Idone, V., Tam, C., Andrews, N. W. Two-way traffic on the road to plasma membrane repair. Trends in Cell Biology. 18 (11), 552-559 (2008).
- Boye, T. L., et al. Annexins induce curvature on free-edge membranes displaying distinct morphologies. Scientific Reports. 8, 10309(2018).
- Bouter, A., et al. Annexin-A5 assembled into two-dimensional arrays promotes cell membrane repair. Nature Communications. 2, 270(2011).
- Boye, T. L., Nylandsted, J. Annexins in plasma membrane repair. Biological Chemistry. 397 (10), 961-969 (2016).
- Weinberger, A., et al. Gel-assisted formation of giant unilamellar vesicles. Biophysical Journal. 105 (1), 154-164 (2013).
- Numata, T., Tatsuta, H., Morita, Y., Otani, Y., Umeda, N. Localized thermal processing with a laser-trapped and heated metal nanoparticle. IEEJ Transactions on Electrical and Electronic Engineering. 2, 398-401 (2007).
- Bendix, P. M., Reihani, S. N. S., Oddershede, L. B. Direct measurements of heating by electromagnetically trapped gold nanoparticles on supported lipid bilayers. ACS Nano. 4 (4), 2256-2262 (2010).
- Kyrsting, A., Bendix, P. M., Stamou, D. G., Oddershede, L. B. Heat profiling of three-dimensionally optically trapped gold nanoparticles using vesicle cargo release. Nano Letters. 11 (2), 888-892 (2011).
- Andersen, T., Kyrsting, A., Bendix, P. M. Local and transient permeation events are associated with local melting of giant liposomes. Soft Matter. 10 (24), 4268-4274 (2014).
- Bahadori, A., Oddershede, L. B., Bendix, P. M. Hot-nanoparticle-mediated fusion of selected cells. Nano Research. 10, 2034-2045 (2017).
- Rørvig-Lund, A., Bahadori, A., Semsey, S., Bendix, P. M., Oddershede, L. B. Vesicle fusion triggered by optically heated gold nanoparticles. Nano Letters. 15 (6), 4183-4188 (2015).
- Moreno-Pescador, G., Arastoo, M. R., Ruhoff, V. T., Chiantia, S., Daniels, R., Bendix, P. M. Thermoplasmonic vesicle fusion reveals membrane phase segregation of influenza spike proteins. Nano Letters. 23 (8), 3377-3384 (2023).
- Bahadori, A., Lund, A. R., Semsey, S., Oddershede, L. B., Bendix, P. M. Controlled cellular fusion using optically trapped plasmonic nano-heaters. SPIE Proceedings. SPIE 9922, Optical Trapping and Optical Micromanipulation XIII. 992211, (2016).
- Bahadori, A., Moreno-Pescador, G., Oddershede, L. B., Bendix, P. M. Remotely controlled fusion of selected vesicles and living cells: a key issue review. Reports on Progress in Physics. 81 (3), 32602(2018).
- Moreno-Pescador, G., Arastoo, M. R., Chiantia, S., Daniels, R., Bendix, P. M. Thermoplasmonic induced vesicle fusion for investigating membrane protein phase affinity. bioRxiv. , (2022).
- Pescador, G. S. M., et al. Investigating plasma-membrane repair employing thermoplasmonics. Biophysical Journal. 120 (3), 45A(2021).
- Moreno-Pescador, G. S., Qoqaj, I., Thusgaard Ruhoff, V., Iversen, J., Nylandsted, J., Bendix, P. M. Effect of local thermoplasmonic heating on biological membranes. SPIE 11083, Optical Trapping and Optical Micromanipulation XVI. 110830M, (2019).
- Bement, W. M., Mandato, C. A., Kirsch, M. N. Wound-induced assembly and closure of an actomyosin purse string in Xenopus oocytes. Current Biology. 9 (11), 579-587 (1999).
- Weisleder, N., et al. Recombinant MG53 protein modulates therapeutic cell membrane repair in treatment of muscular dystrophy. Science Translational Medicine. 4 (139), 139ra85(2012).
- Sudji, I. R., Subburaj, Y., Frenkel, N., García-Sáez, A. J., Wink, M. Membrane disintegration caused by the steroid saponin digitonin is related to the presence of cholesterol. Molecules. 20 (11), 20146-20160 (2015).
- Babiychuk, E. B., Monastyrskaya, K., Potez, S., Draeger, A. Intracellular Ca2+ operates a switch between repair and lysis of streptolysin O-perforated cells. Cell Death & Differentiation. 16, 1126-1134 (2009).
- Nygård Skalman, L., Holst, M. R., Larsson, E., Lundmark, R. Plasma membrane damage caused by listeriolysin O is not repaired through endocytosis of the membrane pore. Biology Open. 7 (10), bio035287(2018).
- Swaggart, K. A., et al. Annexin A6 modifies muscular dystrophy by mediating sarcolemmal repair. Proceedings of the National Academy of Sciences of the United States of America. 111, 6004-6009 (2014).
- Yeheskely-Hayon, D., Minai, L., Golan, L., Dann, E. J., Yelin, D. Optically induced cell fusion using bispecific nanoparticles. Small. 9 (22), 3771-3777 (2013).
- Minai, L., Yeheskely-Hayon, D., Golan, L., Bisker, G., Dann, E. J., Yelin, D. Optical nanomanipulations of malignant cells: Controlled cell damage and fusion. Small. 8 (11), 1732-1739 (2012).
- Lukianova-Hleb, E., et al. Plasmonic nanobubbles as transient vapor nanobubbles generated around plasmonic nanoparticles. ACS Nano. 4 (4), 2109-2123 (2010).
- Vogel, A., Noack, J., Hüttman, G., Paltauf, G. Mechanisms of femtosecond laser nanosurgery of cells and tissues. Applied Physics B. 81, 1015-1047 (2005).
- Baffou, G., Polleux, J., Rigneault, H., Monneret, S. Super-heating and micro-bubble generation around plasmonic nanoparticles under cw illumination. Journal of Physical Chemistry C. 118 (9), 4890-4898 (2014).
- Sasikumar, K., Liang, Z., Cahill, D. G., Keblinski, P. Curvature induced phase stability of an intensely heated liquid. Journal of Chemical Physics. 140 (23), 234506(2014).
- Jauffred, L., Samadi, A., Klingberg, H., Bendix, P. M., Oddershede, L. B. Plasmonic heating of nanostructures. Chemical Reviews. 119 (13), 8087-8130 (2019).
- Neuman, K. C., Nagy, A. Single-molecule force spectroscopy: optical tweezers, magnetic tweezers and atomic force microscopy. Nature Methods. 5 (6), 491-505 (2008).
- Bendix, P. M., Jauffred, L., Norregaard, K., Oddershede, L. B. Optical trapping of nanoparticles and quantum dots. IEEE Journal of Selected Topics in Quantum Electronics. 20, 15-26 (2014).
- Samadi, A., Bendix, P. M., Oddershede, L. B. Optical manipulation of individual strongly absorbing platinum nanoparticles. Nanoscale. 46, 18449-18455 (2017).
- Jørgensen, J. T., Norregaard, K., Tian, P., Bendix, P. M., Kjaer, A., Oddershede, L. B. Single particle and PET-based platform for identifying optimal plasmonic nano-heaters for photothermal cancer therapy. Scientific Reports. 6, 30076(2016).
- Goldenberg, H., Tranter, C. J. Heat flow in an infinite medium heated by a sphere. British Journal of Applied Physics. 3 (9), 296-298 (1952).
- Eustis, S., El-Sayed, M. A. Why gold nanoparticles are more precious than pretty gold: Noble metal surface plasmon resonance and its enhancement of the radiative and nonradiative properties of nanocrystals of different shapes. Chemical Society Reviews. 35, 209-217 (2006).
- Landau, L. D., Lifshitz, E. M. Fluid Mechanics: Landau and Lifshitz: Course of Theoretical Physics. 6, Elsevier. (2013).
- Niederauer, C., Seynen, M., Zomerdijk, J., Kamp, M., Ganzinger, K. A. The K2: Open-source simultaneous triple-color TIRF microscope for live-cell and single-molecule imaging. HardwareX. 13, e00404(2023).
- Richardson, A. C., Reihani, N., Oddershede, L. B. Combining confocal microscopy with precise force-scope optical tweezers. SPIE Proceedings:SPIE 6326, Optical Trapping and Optical Micromanipulation III. 632628, (2006).
- Samadi, A., Klingberg, H., Jauffred, L., Kjær, A., Bendix, P. M., Oddershede, L. B. Platinum nanoparticles: a non-toxic, effective and thermally stable alternative plasmonic material for cancer therapy and bioengineering. Nanoscale. 10 (19), 9097-9107 (2018).
- ThermoFisher Scientific Attofluor Cell Chamber for microscopy. , https://www.thermofisher.com/order/catalog/product/A7816 (2023).
- Kreibig, U., Vollmer, M. Theoretical considerations. In: Optical Properties of Metal Clusters. 25, Springer, Berlin, Heidelberg. (1995).
- Mie, G. Beiträge zur Optik trüber Medien, speziell kolloidaler Metallösungen. Annalen der Physik. 330 (3), 377-445 (1908).
- Rueden, C. T., et al. ImageJ2: ImageJ for the next generation of scientific image data. BMC Bioinformatics. 18 (1), 529(2017).
- Schindelin, J., et al. Fiji: An open-source platform for biological-image analysis. Nature Methods. 9, 676-682 (2012).
- Klenow, M. B., Heitmann, A. S. B., Nylandsted, J., Simonsen, A. C. Timescale of hole closure during plasma membrane repair estimated by calcium imaging and numerical modeling. Scientific Reports. 11, 4226(2021).
- Li, T., Wu, X., Liu, F., Li, N. Analytical methods based on the light-scattering of plasmonic nanoparticles at the single particle level with dark-field microscopy imaging. Analyst. 142 (2), 248-256 (2017).
- Gibbs-Flournoy, E. A., Bromberg, P. A., Hofer, T. P. J., Samet, J. M., Zucker, R. M. Darkfield-Confocal Microscopy detection of nanoscale particle internalization by human lung cells. Particle and Fibre Toxicology. 8 (1), 2(2011).
- Taylor, R. W., Sandoghdar, V. Interferometric scattering microscopy: Seeing single nanoparticles and molecules via Rayleigh scattering. Nano Letters. 19 (8), 4827-4835 (2019).
- Wu, Y., Ali, M. R. K., Chen, K., Fang, N., El-Sayed, M. A. Gold nanoparticles in biological optical imaging. Nano Today. 24, 120-140 (2019).
- Klingberg, H., Oddershede, L. B., Loeschner, K., Larsen, E. H., Loft, S., Møller, P. Uptake of gold nanoparticles in primary human endothelial cells. Toxicology Research. 4 (3), 566-666 (2015).
Yeniden basım ve izinler
