Burada, zebra balığı embriyolarında ve larvalarında döllenmeden en az 1 ila 7 gün sonra herhangi bir aşamada yüksek uzamsal ve zamansal çözünürlüğe sahip hücrelerin nakli için bir protokol sunuyoruz.
Yöntem makalesi
Embriyonik ve Larva Zebra Balıklarında Yüksek Çözünürlüklü Hücre Nakli
Bu makalede
Özet
Özet
Gelişim ve yenilenme, genetik olarak kodlanmış, uzaysal-zamansal olarak dinamik hücresel etkileşimler süreciyle gerçekleşir. Hücre kaderini izlemek ve donör ve konakçı hücrelerin genetik, mekansal veya zamansal özelliklerinde uyumsuzlukları indüklemek için hayvanlar arasında hücre naklinin kullanılması, bu etkileşimlerin doğasını incelemenin güçlü bir yoludur. Civciv ve amfibiler gibi organizmalar, büyük ölçüde transplantasyona uygunlukları nedeniyle, sırasıyla gelişim ve rejenerasyon anlayışımıza çok önemli katkılarda bulunmuştur. Bununla birlikte, bu modellerin gücü, düşük genetik izlenebilirlik ile sınırlandırılmıştır. Benzer şekilde, ana genetik model organizmaların transplantasyon için daha düşük uygunluğu vardır.
Zebra balığı, gelişim ve rejenerasyon için önemli bir genetik modeldir ve hücre nakli zebra balıklarında yaygın olsa da, genellikle gelişimin erken blastula ve gastrula aşamalarında farklılaşmamış hücrelerin transferi ile sınırlıdır. Bu yazıda, zebra balığı nakli penceresini döllenmeden en az 1 ila 7 gün sonra herhangi bir embriyonik veya larva aşamasına genişleten basit ve sağlam bir yöntem sunuyoruz. Bu yaklaşımın hassasiyeti, hem donör hem de konakçı hayvanlarda mükemmele yakın uzamsal ve zamansal çözünürlüğe sahip bir hücre kadar küçük bir hücrenin transplantasyonuna izin verir. Burada, sırasıyla sinir gelişimi ve rejenerasyonu çalışmaları için embriyonik ve larva nöronlarının transplantasyonunu vurgulasak da, bu yaklaşım çok çeşitli progenitör ve farklılaşmış hücre tiplerine ve araştırma sorularına uygulanabilir.
Giriş
Hücre nakli, gelişim biyolojisinde temel bir teknik olarak uzun ve köklü bir geçmişe sahiptir. 20. yüzyılın başlarında, transplantasyon da dahil olmak üzere gelişim sürecini bozmak için fiziksel manipülasyonlar kullanan yaklaşımlar, embriyolojiyi gözlemsel bir bilimden deneysel bir bilime dönüştürdü 1,2. Dönüm noktası niteliğindeki bir deneyde, Hans Spemann ve Hilde Mangold, bir semender embriyosunun dorsal blastopore dudağını ektopik olarak bir konakçı embriyonun karşı tarafına nakletti ve yakındaki dokuyu ikincil bir vücut ekseni3 oluşturmaya teşvik etti. Bu deney, hücrelerin diğer hücreleri belirli kaderleri benimsemeye teşvik edebileceğini gösterdi ve daha sonra transplantasyon, gelişim biyolojisinde yeterlilik ve hücre kaderi belirleme, hücre soyu, indüktif yetenek, plastisite ve kök hücre gücü ile ilgili kritik soruları sorgulamak için güçlü bir yöntem olarak geliştirildi 1,4,5.
Daha yeni bilimsel gelişmeler, transplantasyon yaklaşımının gücünü genişletmiştir. 1969'da Nicole Le Douarin'in nükleolar boyamanın bıldırcın-civciv kimeralarındaki köken türlerini ayırt edebileceğini keşfetmesi, nakledilen hücrelerin ve soylarının izlenmesine izin verdi6. Bu kavram daha sonra transgenik floresan belirteçlerin ve gelişmiş görüntüleme tekniklerinin5 ortaya çıkmasıyla güçlendirildi ve hücre kaderini 6,7 izlemek, kök hücreleri ve güçlerini 8,9 tanımlamak ve beyin gelişimi sırasında hücre hareketlerini izlemekiçin kullanıldı 10. Ek olarak, moleküler genetiğin yükselişi, gelişimsel faktörlerin özerk ve özerk olmayan işlevlerinin kesin diseksiyonunu destekleyerek, farklı genotiplerin konakçıları ve donörleri arasındaki transplantasyonu kolaylaştırdı11.
Transplantasyon ayrıca, rejenerasyon dokularının büyümesini ve şekillenmesini düzenleyen hücresel kimlikleri ve etkileşimleri açıklayarak, özellikle planaryalar ve aksolotl gibi güçlü rejeneratif yeteneklere sahip organizmalarda rejenerasyon çalışmalarına önemli katkılarda bulunmuştur. Nakil çalışmaları, potens12, mekansal modelleme13,14, spesifik dokularınkatkıları 15,16 ve rejenerasyonda hücresel hafızaiçin roller 12,17 ilkelerini ortaya koymuştur.
Zebra balığı, korunmuş genetik programları, yüksek genetik izlenebilirliği, dış döllenmesi, büyük kavrama boyutu ve optik netliği nedeniyle sinir sistemi de dahil olmak üzere gelişim ve yenilenme çalışmaları için önde gelen bir omurgalı modelidir 18,19,20. Zebra balığı ayrıca erken gelişim aşamalarında transplantasyona oldukça uygundur. En belirgin yaklaşım, mozaik hayvanlar oluşturmak için etiketli bir donör embriyodan hücrelerin blastula veya gastrula aşamasında bir konakçı embriyoya nakledilmesidir. Blastula aşaması sırasında nakledilen hücreler, epiboli başladığında dağılacak ve dağılacak ve embriyo21 boyunca etiketli hücreler ve dokulardan oluşan bir mozaik üretecektir. Gastrula nakilleri, kalkan oluştuğu ve A-P ve D-V eksenleri belirlenebildiği için nakledilen hücrelerin kaba bir kader haritasına göre bir miktar hedeflenmesine izin verir21. Elde edilen mozaikler, genlerin hücreye özerk bir şekilde hareket edip etmediğini belirlemede, hücre bağlılığını test etmede ve gelişim boyunca doku hareketini ve hücre göçünü haritalamadadeğerli olmuştur 5,11. Mozaik zebra balığı, elektroporasyon22, rekombinasyon23 ve F0 transgenezi24 ve mutajenez25 dahil olmak üzere çeşitli şekillerde üretilebilir, ancak transplantasyon, uzay, zaman, hücre sayısı ve türlerinde en büyük manipüle edilebilirliği ve hassasiyeti sağlar. Zebra balığı transplantasyonunun mevcut durumu, spinal motor nöronların 26,27, retinal ganglion hücrelerinin 28,29 ve döllenmeden sonraki ilk 10-30 saat içinde nöral krest hücrelerinin transplantasyonu (hpf)30 ve yetişkin zebra balıklarında hematopoietik ve tümör hücrelerininnakli dahil olmak üzere birkaç istisna dışında, erken aşamalarda progenitör hücrelerle büyük ölçüde sınırlıdır (hpf)30 ve yetişkin zebra balıklarında hematopoietik ve tümör hücrelerinin 5,31. Transplantasyon yöntemlerini geniş bir yaş aralığına, farklılaşma aşamalarına ve hücre tiplerine genişletmek, bu yaklaşımın gelişimsel ve rejeneratif süreçler hakkında bilgi sağlama gücünü büyük ölçüde artıracaktır.
Burada, zebra balığı embriyolarında ve larvalarında döllenmeden en az 7 gün sonrasına kadar etkili olan yüksek çözünürlüklü hücre nakli için esnek ve sağlam bir teknik gösteriyoruz. Hedef dokularda floresan proteinleri eksprese eden transgenik konakçı ve donör balıklar, tek hücreleri çıkarmak ve bunları mükemmele yakın uzamsal ve zamansal çözünürlükle nakletmek için kullanılabilir. Zebra balığı embriyolarının ve larvalarının optik berraklığı, nakledilen hücrelerin, konakçı hayvan gelişirken veya yenilenirken canlı olarak görüntülenmesine olanak tanır. Bu yaklaşım daha önce uzay-zamansal sinyal dinamiklerinin embriyo32'de nöronal kimliği ve akson rehberliğini nasıl etkilediğini incelemek ve larva balıklarında33 rejenerasyon sırasında içsel ve dışsal faktörlerin akson rehberliğini teşvik ettiği mantığı incelemek için kullanılmıştır. Burada farklılaşmış nöronların transplantasyonuna odaklanırken, yöntemimiz gelişim ve rejenerasyondaki soruları ele almak için birçok aşamada ve dokuda hem farklılaşmamış hem de farklılaşmış hücre tiplerine yaygın olarak uygulanabilir.
Protokol
Bu prosedürün canlı zebra balığı ile çalışmakla ilgili tüm yönleri Minnesota Üniversitesi Kurumsal Hayvan Bakımı ve Kullanımı Komitesi (IACUC) tarafından onaylanmıştır ve IACUC yönergelerine uygun olarak gerçekleştirilmektedir.
1. Nakil aparatının tek seferlik ilk kurulumu (Şekil 1)
- Nakil mikroskobunu üreticinin talimatlarına göre monte edin.
NOT: Bu protokol, 40x su daldırma objektifine sahip dik bir floresan mikroskobu kullanır. - Kaba ve ince mikromanipülatörleri birleştirin ve üreticinin talimatlarına göre mikroskobun sağ tarafına monte edin.
NOT: Sahnenin iğneye göre Z boyutunda hareket etmemesi önemli olduğundan, mikroskop tabanına monte edilmiş mikromanipülatörler ile sabit kademeli bir mikroskop kullanıyoruz. Sabit kademeli bir mikroskop mevcut değilse, mikromanipülatör sahneye monte edilebilir. - Mikroelektrot tutucuyu elektrot tutamağına takın ve mikromanipülatöre monte edin.
- Üç musluğun bir tarafını mikroşırınga pompasına bağlayın. Vananın diğer tarafını kromatografi adaptörünü kullanarak polietilen boruya bağlayın.
- Polietilen borunun karşı tarafını kromatografi adaptörünü kullanarak mikroelektrot tutucusuna bağlayın.
- 10 mL'lik rezervuar şırıngasını hafif mineral yağ ile doldurun ve musluğun üst tarafına monte edin.
- Mikroşırınga pompasını ve hortumunu (hidrolik hat) rezervuardan mineral yağ ile doldurun ve tüm hava kabarcıklarını çıkardığınızdan emin olun.
NOT: Cihaz kurulduktan sonra, hidrolik hattın yalnızca ara sıra bakımını gerektirecektir. Rezervuar şırıngası çıkarılabilir ve gerektiğinde mineral yağ ile yeniden doldurulabilir.
2. Embriyo iticileri hazırlayın.
- 2 cm'lik bir misina parçası kesin ve ~1,5 cm açıkta kalacak şekilde kısmen P1000 pipet ucunun dar ucuna sokun. Oltayı küçük bir damla süper yapıştırıcı ile sabitleyin ve kurumaya bırakın.
3. Çözümler hazırlayın.
- Embriyo ortamında (LMA) çözülen %1 düşük erime noktalı agarozu hazırlamak için, agarozu kaynayan embriyo ortamındaçözün 34. Yuvarlak tabanlı test tüplerinde 1-2 mL alikotlar yapın ve 4 ° C'de saklayın.
- Aşağıdaki bileşenleri 116 mM NaCl, 2.9 mM KCl, 1.8 mM CaCl2, 5 mM HEPES pH 7.2, 50 birim / mL penisilin ve 50ug / mL streptomisin nihai konsantrasyonlarına birleştirerek Ringer'in penisilin-streptomisin ve trikat (RPT) ile çözeltisini hazırlayın, eriyene kadar karıştırın ve bir vakum filtresinden geçirin. Oda sıcaklığında saklayın. Kullanmadan hemen önce% 0.02'lik bir konsantrasyona tricaine ekleyin.
4. Donör ve ev sahibi hayvanları nakil için hazırlayın.
- Uygun genotiplere sahip konakçı ve donör hayvanları ve floresan olarak etiketlenmiş ilgili hücrelerle istenen yaşa yükseltin.
NOT: Bu nakiller için Tg(isl1:EGFPCAAX)fh474 donör hayvanlar32 ve Tg(isl1:mRFP)fh1 konakçı hayvanlar35 kullandık ve donörden konakçı vagus motor çekirdeklerine 3dpf'de nöronlar nakledildi. - Her cam slayta dikdörtgen bir şeffaf oje taslağı uygulayarak nakil slaytları hazırlayın (Şekil 2A). Oje, adım 4.8'de eklenen RPT'yi tutmak için hidrofobik bir bariyer oluşturur. Kullanmadan önce tamamen kurumasını bekleyin.
NOT: Slaytlar önceden hazırlanabilir ve süresiz olarak saklanabilir. - 40 mL su içeren 50 mL'lik bir behere bir tüp LMA yerleştirerek ve 1 dakika boyunca% 50 güçte veya eriyene kadar mikrodalgada pişirerek bir LMA alikotunu eritin. LMA'yı kuru banyo ısıtıcısında 40 °C'de tutun.
- Ev sahibi ve donör hayvanları forseps ile (varsa) dekoryonlayın ve oda sıcaklığında RPT ile doldurulmuş küçük Petri kaplarına yerleştirerek uyuşturun. Devam etmeden önce hayvanların tamamen anestezi alması için 5 dakika bekleyin.
- Bireysel donör ve ev sahibi hayvanları monte edin: Pasteur pipet ve pipet pompasını kullanarak, hayvanları RPT'den LMA'ya aktarın, ardından hayvanları küçük LMA damlaları halinde oje taslağı içindeki slaytlara aktarın. LMA'nın seyreltilmemesi için LMA'ya aktarılan RPT miktarını en aza indirin. LMA katılaşmadan önce, hayvanları yönlendirmek için bir embriyo itici kullanın, her bir hayvanın amaçlanan iğne yerleştirme yeri sağa doğru monte edildiğinden ve tüm hayvanların dikey olarak hizalandığından emin olun (Şekil 2B); Devam etmeden önce agarozun tamamen kurumasına (~ 5 dakika) izin verin.
NOT: Her donör hayvandan çok sayıda hücre alınabileceğinden, her slayta bir donör ile 2-4 konakçı hayvanı monte etmek daha verimlidir. - Bir neşter kullanarak, monte edilmiş hayvanların hemen sağındaki tüm agaroz damlalarından düz bir dikey dilim kesin (Şekil 2C). Gevşek agarozu laboratuvar mendilleriyle slayttan çıkarın.
- Bir neşter kullanarak, iğne yerleştirme bölgesini ortaya çıkarmak için agarozdan takozlar kesin (Şekil 2C). Gevşek agarozu laboratuvar mendilleriyle slayttan çıkarın.
- Agaroz damlaları tamamen suya batırana kadar slayta RPT uygulayın (Şekil 2D).
- Hazırlanan slaytı transplantasyon mikroskobuna monte edin. Donör hayvanı 40x hedefi kapsamında odak noktasına getirin. Bunu yapmak için, hedefi ortamın yüzeyini kırana kadar indirin, ardından hedefi istenen odak düzlemine yükseltin.
NOT: Nakil tamamlanana kadar objektif ile sıvı teması sürdürülmelidir (Şekil 3C). - İlgilendiğiniz floresan etiketli donör hücre(ler)i odak noktasına getirin; Ardından, nakil iğnesini bulmak için hazırlık olarak sahneyi sola hareket ettirin.
NOT: Bu noktada, 5. bölümde donör hayvanı kolayca yeniden bulabilmeniz için mikroskobu Y veya Z eksenlerinde ayarlamayın.
5. Nakil iğnesini hazırlayın.
- Mikropipet çekiciye bir mikropipet yerleştirin ve bir mikroenjeksiyon iğnesi çekin.
NOT: İğnenin şekli, 1 hücreli aşamalı zebra balığı embriyo enjeksiyonları veya yama klempleme için kullanılanlara benzer olmalıdır. Aşağıdaki programa sahip bir mikropipet çektirme kullanıyoruz: BASINÇ = 500, ISI = rampa + 80, ÇEKME = 90, HIZ = 70, ZAMAN = 250 (Malzeme Tablosuna bakın), ancak her bir çektirme için doğru ayarların muhtemelen ampirik olarak belirlenmesi gerekecektir. - İğne ucunu, bir diseksiyon kapsamı altında sahne mikrometresinin bölümleriyle hizalayın. Mikrometreyi bir ölçüm kılavuzu olarak kullanarak, iğneyi ilgilenilen hücrelerin çapından biraz daha büyük bir delik boyutuna kırmak için keskinleştirilmiş bir forseps çifti kullanın (Şekil 3A). Pürüzlü kenarlar iğnenin tıkanmasına katkıda bulunabileceğinden, kırılmanın mümkün olduğunca temiz olduğundan emin olun. NOT: Vagus motor nöronlar (5-7 μm çapında) için iğneler, 20 μm'lik bir dış çapa karşılık gelen 10 μm'lik bir iç çapa kadar kırılmalıdır. Gerekirse, iğne ucunun boyutu, şekli ve/veya açısı bir microforge veya microgrinder36 ile iyileştirilebilir.
- Hafif mineral yağ ile doldurulmuş ve pipet dolgusu ile donatılmış 50 mL'lik bir şırınga kullanarak iğneyi tamamen mineral yağ ile doldurun (Şekil 3B). Hava kabarcığı olmadığından emin olun. Doldurulmuş iğneyi montaj için hazır olana kadar bir kenara koyun.
NOT: Hava kabarcığı olmadığından emin olmak için, pipet dolgusunu iğnenin içine sonuna kadar sokun ve dolguyu iğneden yavaşça çekerken yağı serbest bırakın. - Nakil aparatında, üç musluğu, uzun kolu mikroşırınga pompasına bakacak şekilde çevirin ve hidrolik hattaki tüm hava kabarcıklarını temizlemek için rezervuar şırınga pistonuna basın. Piston üzerinde hafif bir basınç uygulayın (havanın hatta geri akışını önlemek için) ve üç vanayı uzun kolu rezervuar şırıngasına bakacak şekilde çevirin.
- Herhangi bir hava kabarcığı girmemesine dikkat ederek iğneyi tutucuya yerleştirin. İğnenin açısını, yataydan 10-15°'lik bir açıyla doğrudan sola bakacak şekilde ayarlayın (Şekil 3C).
- İğnenin ucunu mikroskop objektifi altında hareket ettirmek ve odak noktasına getirmek için kaba ve ince mikromanipülatörleri kullanın (Şekil 3D).
NOT: İğnenin X ve Y düzlemlerinde kaba konumlandırılması, iğneyi hareket ettirirken hedefin altındaki alanı doğrudan gözlemleyerek yapılabilir, çünkü iğne objektifin altına yerleştirildiğinde iletilen ışık huzmesini yansıtacaktır. Mikroskop göz mercekleri daha sonra ince konumlandırma için kullanılabilir. Bu adım sırasında mikroskop tablasının konumunu veya odağını ayarlamayın. İğne ucunu mevcut odak konumuna getirmek için mikromanipülatörleri kullanın. - İğne ucunun içine veya dışına sıvı akıyorsa, mineral yağ ile Ringer solüsyonu arasında stabil bir menisküs gözlenene kadar şırınga pompasını kullanarak basıncı ayarlayın (Şekil 3D).
NOT: Stabilizasyondan sonra iğne ucunda bir yağ kabarcığı kalırsa, iğneyi ucu RPT'den çekilene kadar sağa, ardından tekrar sola hareket ettirmek için kaba mikromanipülatör üzerindeki X düzlemi ayarı kullanılarak çıkarılabilir.
6. Transplantasyon
NOT: Tüm iğne hareketleri bu bölüm için ince mikromanipülatör kullanılarak yapılmalıdır.
- Donör hayvan tekrar görüş alanına getirilene kadar sahneyi sağa hareket ettirin ve iğnenin yanlışlıkla girmesini önlemek için dikkatli olun.
- Nakledilecek hücreleri yeniden merkezleyin ve odaklanın ve iğneyi hayvanın hemen dışındaki hücrelerle hizalayın (Şekil 4A).
NOT: Doğru hizalamayı sağlamak için parlak alan ve floresan arasında sık sık geçiş yapmanız gerekebilir. Nötr yoğunluk filtresinin kullanılması, her ikisini de aynı anda görselleştirmeye yardımcı olabilir. - İğneyi donör hayvana yerleştirin.
NOT: İğne ile tekrarlanan içeri ve dışarı hareketler cilde nüfuz etmeye yardımcı olabilir. - İğne ucundaki yağ menisküsünü adım 5.7'de açıklandığı gibi mikroşırga pompası ile hemen yeniden stabilize edin.
- İğne ucunu ilgilenilen hücrelere karşı konumlandırın ve mikroşırınga pompası ile hafif emme uygulayın (Şekil 4B).
NOT: Emme sırasında hafif içeri ve dışarı hareketler hücrelerin gevşemesine yardımcı olabilir. - Yeterli sayıda hücre alındığında, iğneyi donörden çıkarın ve iğne ucundaki yağ menisküsünü mikroşırga pompası ile hemen yeniden stabilize edin.
- İğne ile hayvanlara veya agaroza temas etmekten kaçınmaya dikkat ederek, ilk ev sahibi hayvanı görünecek şekilde sahneyi yeniden konumlandırın.
- Hücrelerin yerleştirileceği alanı ortalayın ve odaklanın ve iğneyi hayvanın hemen dışındaki bu bölge ile hizalayın (Şekil 4C).
- İğneyi konakçı hayvana yerleştirin ve iğne ucundaki yağ menisküsünü mikroşırınga pompası ile hemen yeniden stabilize edin.
- İğne ucunu biriktirme bölgesine yerleştirin ve iğneden doğru sayıda donör hücre salınana kadar mikroşırınga pompası ile hafif bir basınç uygulayın (Şekil 4D).
NOT: Donör ve konakçı hücreler farklı floroforlarla etiketlenmişse, eşzamanlı görselleştirmeye izin veren çok bantlı bir filtre bu aşamada çok yardımcı olabilir. - İğneyi konakçıdan çıkarın ve iğne ucundaki yağ menisküsünü mikroşırınga pompası ile hemen yeniden stabilize edin.
- Kalan tüm ana bilgisayarlar için 6.7-6.11 adımlarını tekrarlayın.
7. Ev sahibi hayvanın geri kazanılması
- 40x objektifi kaldırın ve iğneyi yükleme konumuna geri döndürmek için kaba mikromanipülatörü kullanın.
NOT: İğne birden fazla slayt için yeniden kullanılabilir. - Slaytı nakil mikroskobundan çıkarın ve diseksiyon mikroskobunun altına yerleştirin.
- Ev sahibi hayvanları forseps ile LMA düşüşünden dikkatlice çıkararak çıkarın. Bir cam Pasteur pipeti kullanarak, ev sahibi hayvanları penisilin / streptomisin içeren taze Ringer solüsyonu içeren bir tabağa aktarın. Hayvanların anesteziden kurtulduğundan emin olun ve görüntülenmeye hazır olana kadar onları bir embriyo kuluçka makinesinde tutun. Donör hayvanları onaylanmış protokollere göre ötenazi yapın.
NOT: Ötenazi için yöntemimiz, hayvanları en az 1 saat buz banyosuna batırmak ve ardından 500 mg / L sodyum hipoklorit içine daldırmaktır.
Sonuçlar
Transplantasyon deneylerinin sonuçları, bir floresan mikroskobu kullanılarak transplantasyon sonrası uygun zaman noktalarında konakçı hayvanlarda floresan etiketli donör hücrelerin görselleştirilmesiyle doğrudan gözlemlenir. Burada, 3 dpf'de bireysel anterior vagus nöronlarını naklettik. Ev sahibi hayvanlar daha sonra 12 veya 48 saat inkübe edildi, anestezi uygulandı, LMA'ya bir cam lamel üzerine monte edildi ve konfokal mikroskop ile görüntülendi (Şekil 5). Transplantasyondan 12 saat sonra (hpt), başarılı bir şekilde nakledilen bir donör nöron gözlemliyoruz (Şekil 5A). Hücrenin, konak vagus motor çekirdeğinin ön bölgesindeki konak vagus nöronları arasında yer aldığı için doğru konumlandırıldığını doğrulayabiliriz; hücre ayrıca birkaç kısa nörit çıkıntısının uzamasıyla gösterildiği gibi sağlam ve sağlıklı görünür (Şekil 5A). Transplantasyondan (dpt) 2 gün sonra, tek bir nöronun konak çekirdeğinin doğru pozisyonuna başarılı bir şekilde nakledildiğini tekrar doğrulayabiliriz (Şekil 5B). Bu noktada, nöronun 4. faringeal ark'a yeni bir akson uzattığını gözlemliyoruz (Şekil 5B). Doğrudan gözlem, prosedürün ne zaman başarısız olduğunu da ortaya çıkarır. Bu örnekte, hiçbir donör nöronun bulunmadığı 2 dpt'lik bir konak gözlemliyoruz; daha ziyade, muhtemelen transplantasyondan sonra ölen bir donör nöronun bir parçası olan küçük bir yeşil leke belirgindir (Şekil 5C). Nakil başarı oranları, kullanıcı deneyimine ve nakledilen hücrelerin sayısına ve türüne bağlı olarak değişse de, 3-4 dpf33'te gerçekleştirilen vagus motor nöron naklleri için f'lık (n = 453 nakil) bir başarı oranı (konakta 2-3 dpt'de bir akson uzatan hayatta kalan bir nöronun varlığı olarak tanımlanır) yaşarız.
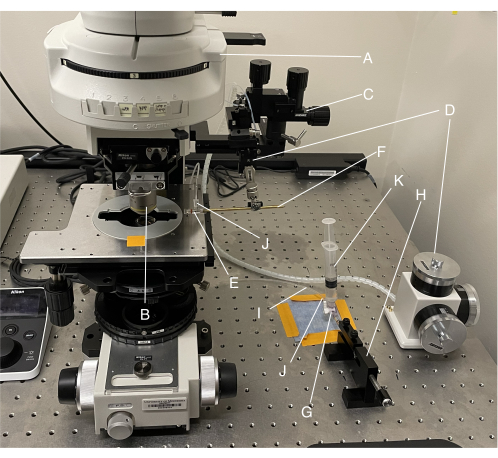
Şekil 1: Nakil aparatına genel bakış. (A) Dik floresan mikroskobu; (B) 40x suya daldırma hedefi; (C) kaba mikromanipülatör; (D) ince mikromanipülatör; (E) mikroelektrot tutucu; (F) elektrot kolu; (G) üç musluk; (H) mikroşırınga pompası; (I) polietilen boru; (J) kromatografi adaptörleri; (K) 10 mL rezervuar şırıngası. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
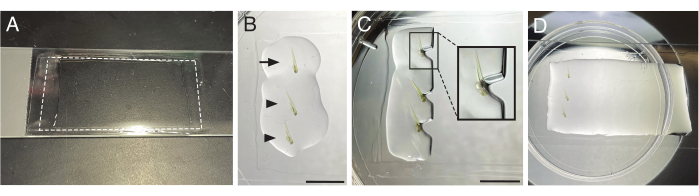
Şekil 2: Nakil için hayvanların montajı. (A) Dikdörtgen bir çerçevede (kesikli çizgi) şeffaf oje uygulanmış 3 inç x 1 inç buzlu cam slayt. (B) Donör (ok) ve konakçı (ok ucu) hayvanlar, agaroz damlalarına monte edilmiş, transplantasyon hedef bölgesi (arka beyin) ile dikey olarak hizalanmış, sağa doğru yönlendirilmiş hayvanlar. (C) Transplantasyon hedef bölgesini ortaya çıkarmak için sağ kenarı ve takozları kesilmiş agaroz. İç: kutulu bölgenin yakınlaştırılması. (D) Nakil slaytı, penisilin-streptomisin ve trikat içeren Ringer çözeltisi ile sular altında kaldı. Ölçek çubukları = 5 mm. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
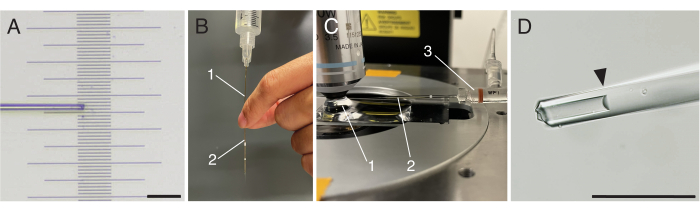
Şekil 3: Nakil iğnesi hazırlığı. (A) Bir aşama mikrometresinin üzerinde kırık nakil iğnesi. (B) İğneyi mineral yağ ile doldurmak için nakil iğnesine (2) yerleştirilen pipet dolgusu (1). (C) Nakil mikroskobu üzerinde yerinde hazırlanmış nakil lamı ve iğne. 1: 40x daldırma hedefi ile su basmış slayt arasındaki su menisküsü 2: Nakil iğnesi 3: Mikroelektrot tutucusu. (D) 40x büyütmede nakil mikroskobu ile görüntülenen, stabil yağ menisküsü (ok ucu) olan kırık bir nakil iğnesinin ucu. Ölçek çubukları = 100 μm Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
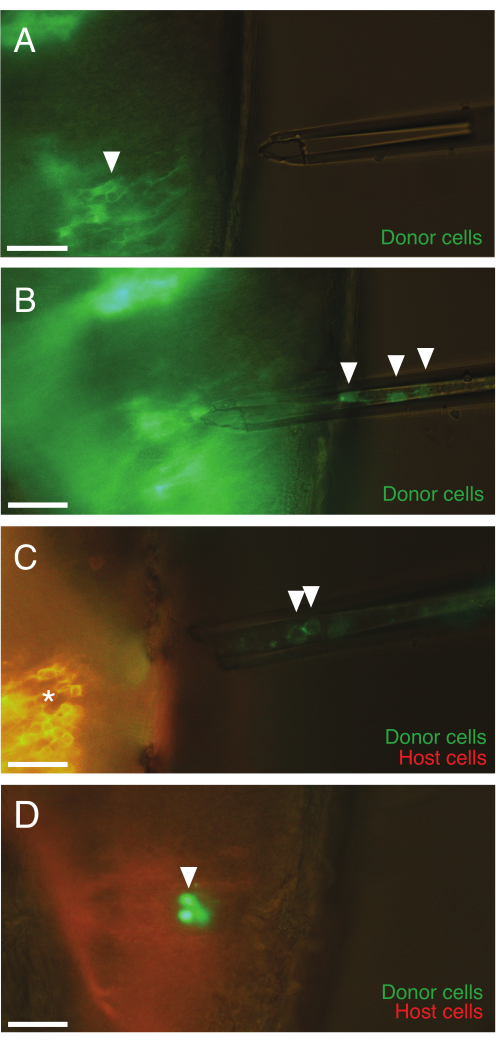
Şekil 4: Mikroskop altında yapılan nakil işlemi. (A) Donör hayvanın dışına yerleştirilmiş, vagus motor nöronları hedefleyen iğne (yeşil, ok ucu). (B) Floresan işaretli donör nöronları (ok uçları) aldıktan sonra donör hayvanın içine yerleştirilen iğne. (C) Anterior konak vagus motor nöronlarını (kırmızı, yıldız) hedefleyen, konakçı hayvanın dışına yerleştirilmiş birkaç donör nöron (ok ucu) içeren iğne. (D) Transplantasyon sonrası iğne çekilerek konakçı hayvan. GFP'yi (ok ucu) eksprese eden nakledilen bir donör nöron kümesi, konakçıya dışarı atılmıştır. Ölçek çubukları = 30 μm Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
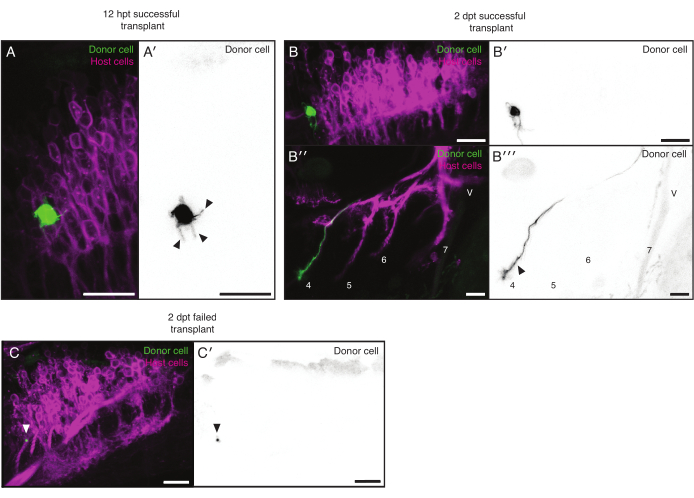
Şekil 5: Temsili sonuçlar. (A,B) Başarılı nakiller. (A) Bir donör nöron (A'da yeşil, siyah) içeren 12 hpt'lik bir konakçı vagus motor çekirdeğinin (macenta) ön bölgesi. Donör nöron birkaç nörit uzatmıştır (A' içindeki oklar). (B) Bir donör nöron (yeşil, B'', B') içeren 2 dpt'lik bir konağın (macenta) vagus motor çekirdeği (B-B'') ve faringeal akson dalları (B''-B'', akson dalları etiketli). Donör nöron, 4. dala (ok uçları) yeni bir akson uzattı. Şekil 5A,B farklı hayvanları temsil etmektedir. (C) Başarısız nakil. 2 dpt'lik bir konağın (macenta) vagus motor çekirdeği. Donör nöron mevcut değildir; daha ziyade, muhtemelen ölü bir donör nöronun (ok ucu) bir parçasını temsil eden küçük bir leke (yeşil, C'de siyah) mevcuttur. Ölçek çubukları = 20 μm. Kısaltmalar: dpt = transplantasyondan sonraki gün sayısı; hpt = transplantasyondan sonraki saat. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
Tartışma
Gelişimsel ve rejeneratif biyoloji, bir asırdan fazla bir süredir, hücre sinyalizasyonu ve hücre kaderi belirleme ilkelerini incelemek için transplantasyon deneylerine güvenmiştir. Zebra balığı modeli zaten genetik ve transplantasyon yaklaşımlarının güçlü bir birleşimini temsil ediyor. Mozaik hayvanlar oluşturmak için blastula ve gastrula aşamalarında transplantasyon yaygındır, ancak ne tür soruları ele alabileceği konusunda sınırlıdır. Embriyonik spinal motor nöronları ve retinal ganglion hücrelerini sırasıyla 16-18 hpf ve 30-33 hpf'de nakil yöntemleri bildirilmiş olmasına rağmen, daha sonraki evre transplantasyon nadirdir 26,27,28. Bu önceki çabalardan ilham alan bu çalışma, geç embriyonik ve larva aşamalarına uygulanabilen, rejenerasyon çalışmalarında kullanımı için kapıyı açan ve hücrelerin etiketlenmesini, transferini ve uzun vadeli takibini geliştirmek için modern floresan transgenik yaklaşımları entegre eden bir yaklaşımı tanımlayarak zebra balığı naklinin gücünü daha da artırmaktadır.
Bu protokol, rejeneratif bağlam da dahil olmak üzere birçok farklı farklılaşma aşaması ve yaştaki hücreleri nakletmek için yeni fırsatlar sunar. Örneğin, farklılaşmış nöronların transplantasyonu, nöronların geliştiği uzamsal ve zamansal bağlamları değiştirerek sinyal dinamiklerinin nöronal kimliği nasıl etkilediğini incelemek için kullanılmıştır32; nöronal belirlenimin zamanlamasını incelemek26; aksonları yaralamak ve tek hücreli çözünürlük33 ile yeniden büyümelerini izlemek için bir araç olarak; mutanttan vahşi tip nakiller yoluyla akson rejenerasyonu sırasında bir reseptörün hücre otonom rolünü incelemek33; ve rejeneratif akson rehberliğinde hedef hafızanın rolünü incelemek33. Şimdiye kadar nöronal transplantasyona odaklanmış olsak da, nöronların onları bu yaklaşıma benzersiz bir şekilde uygun kılan herhangi bir özelliğinin farkında değiliz; Aksine, bu yaklaşımın birçok hücre tipine uygulanabilir olduğuna inanıyoruz. Araştırmacıların bu tekniği kullanarak birçok bağlamda gelişim ve yenilenme dinamiklerini incelemek için yaratıcı yollar bulacaklarını umuyor ve bekliyoruz.
Bu protokoldeki kritik hususlar arasında hücre etiketlerinin seçimi, hücrelerin transplantasyon için uygunluğu ve doku erişilebilirliği yer alır. Donör hücreler için parlak, kararlı, kalıcı bir floresan etiket, hem transplantasyonu hem de sonraki izlemeyi kolaylaştırmak için önemlidir. Hem enjekte edilen boyalar hem de transgenler kullanılabilir, ancak transgenler daha kalıcı ve ilgilenilen hücrelere daha spesifik olabilir. Fotobleaching'e karşı direnç, nakil işleminde alınabilecek süreyi de uzatır. Donör hücreler, aşırı hasar vermeden çevre dokudan/hücre dışı matrikstan iğneye çekilebilecek kadar gevşek bir şekilde yapışık ve uygun şekle sahip olmalıdır. Farklı hücre tipleri için modifikasyonlar, ilgilenilen hücrenin çapından biraz daha büyük olması gereken iğne deliği boyutunun ayarlanmasını içerir; ilgilenilen hücrelere erişimi kolaylaştırmak için montaj sırasında hayvanı uygun şekilde yönlendirmek; ve hücreleri gevşetmek ve yukarı çekmek için gereken emme veya fiziksel bozulma seviyesini optimize etmek. Hayvan yaşlandıkça, belirli bir yaş sınırının farkında olmasak da, bazı dokular görsel ve/veya fiziksel olarak erişilemez hale gelebilir. Örneğin, kafatası muhtemelen sonunda nöronlara erişimi sınırlayacaktır. Modifikasyonlar, iç dokuları daha kolay görselleştirmek için pigmentsiz hayvanların kullanılmasını veya ön küçük kesilerin yapılmasını, mikrokılcal tüp kalınlığında ayarlamalar yapılmasını veya iğne girişini kolaylaştırmak için çekilmiş iğne şeklini içerebilir.
Bu protokolün sınırlamaları, yukarıda tarif edildiği gibi belirli tip ve yaşlardaki hücrelerin transplantasyona uygun olmamasını ve transplantasyon sırasında doku seviyesindeki yapıların korunmasının zorluğunu içerir. Bu prosedür, tek tek hücrelerin çıkarılması sırasında çevrelerinden ayrılmasını gerektirdiğinden, hücre-hücre etkileşimleri ve daha yüksek dereceli yapılar kaybolacaktır. Embriyogenez sırasında işlevsel hale gelen doğuştan gelen bağışıklık sistemi, doku hasarına veya nakil bölgesinde ölü hücrelerin ve kalıntıların varlığına yanıt verebilir ve bu da donör hücre sağkalımını etkileyebilir37,38. Daha sonraki aşamalarda, donör hücreler, döllenmeden 3-6 hafta sonra işlevsel hale gelen adaptif bağışıklık sistemi tarafından da reddedilebilir39,40. Bu sorun, adaptif veya doğuştan gelen bağışıklığı olmayan konakçılara nakledilerek önlenebilir: 41,42,43,44.
Protokolle ilgili sorun giderme gerektirebilecek olası zorluklar şunları içerir: İlk olarak, iğne içindeki malzeme emme ve basınç sırasında düzgün ve duyarlı bir şekilde hareket etmelidir. Ürkek ve tutarsız hareket, muhtemelen hidrolik hattaki hava kabarcıklarının varlığından veya iğnede kısmi bir tıkanıklıktan kaynaklanır; Bu nedenle, kurulum sırasında iğne ve hidrolik hattaki tüm hava kabarcıklarının giderilmesine dikkat edilmelidir. Hava kabarcıkları bulunursa, kaba mikromanipülatörü kullanarak iğneyi yükleme konumuna getirin, iğneyi tutucudan çıkarın ve yeniden monte etmeden önce iğneyi ve çizgiyi mineral yağ ile yıkayın. İğne tıkanması, pürüzlü iğne kırılmalarından kaçınılarak azaltılabilir. Tıkanmalar bazen, tıkanıklığı dışarı itmek için mineral yağın iğne ucundan dışarı atılmasıyla veya iğnenin tamamen geri çekilip ardından RPT'ye yeniden yerleştirilmesiyle çözülebilir; Aksi takdirde yeni bir iğne kullanılmalıdır. İkincisi, çıkarma sırasında hücreleri gevşetmede zorluk olabilir. Eğimli bir şekil için iğne ucunu belirli bir açıyla kırmak, emme sırasında iğneyi ileri geri hareket ettirmek ve emme gücünü ayarlamak, hücrelerin dokudan ayrılması için gevşetilmesine yardımcı olabilir. Belirli bir açıklık boyutuna ve açısına36 sahip eğimli iğneler hazırlamak için bir mikro öğütücü de kullanılabilir. Son olarak, çıkarma sırasında hücrelerde hasar olabilir. Ciddi şekilde hasar görmüş hücreler tanımlanmış şekillerini kaybedebilir ve enjeksiyon iğnesinde küçük parçalar veya amorf floresan lekeler olarak görünebilir. Nakilden sonra hücrelerin hayatta kalamaması da hasarın bir göstergesi olabilir ve konakçıda floresan olarak işaretlenmiş hücrelerin yokluğu ile kolayca test edilebilir. Tekrarlanan hücre hasarı için sorun giderme, iğnenin delik boyutunun arttırılmasını ve kesme kuvvetini azaltmak için uygulanan emme miktarının sınırlandırılmasını içerebilir. Kısmen tıkanmış bir iğne de kesme kuvvetlerini artırarak hasara yol açabilir.
Açıklamalar
Yazarların açıklanacak herhangi bir çıkar çatışması yoktur.
Teşekkürler
Cecilia Moens'e zebra balığı nakli eğitimi için teşekkür ederiz; Mükemmel balık bakımı için Marc Tye; ve el yazması hakkında geri bildirim için Emma Carlson. Bu çalışma, NIH hibe NS121595 AJI'ye tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 10 mL "rezervuar şırıngası" | Fisher Scientific | 14-955-459 | |
| 150 mL tek kullanımlık vakum filtresi, .2 & m, PES | Corning | 431153 | |
| 20 x 12 mm ısıtma bloğu | Corning | 480122 | |
| 3 musluk | Braun Medical Inc. | ||
| 3 x 1 Buzlu cam sürgü | VWR | 48312-004 | |
| 40x su daldırma objektifi | Nikon | MRD07420 | |
| Kalsiyum klorür dihidrat | Sigma-Aldrich | C3306 | |
| Kaba Manipülatör | Narishige | MN-4 | |
| Özel mikroşırınga pompası | Oregon Üniversitesi | Yok | Oregon Üniversitesi makine atölyesi (tsa.uoregon@gmail.com) tarafından üretilmiştir. Ticari olarak temin edilebilen bir alternatif aşağıda listelenmiştir. |
| Dumont #5 Forseps | Güzel Bilim Araçları | 1129500 | |
| Eclipse FN1 "Nakil Mikroskobu" | Nikon | N/A | |
| elektrot kolu | World Precision Instruments | 5444 | |
| Tüy Steril Cerrahi Bıçak, #11 | VWR | 21899-530 | |
| İnce mikromanipülatör, Üç eksenli Yağ hidroliği | Narishige | MMO-203 | |
| HEPES pH 7.2 | Sigma-Aldrich | H3375-100G | |
| Yüksek Hassasiyetli # 3 Stil Neşter Sapı | Fisher Scientific | 12-000-163 | |
| Kimble Tek Kullanımlık Borosilikat Pastör Pipeti, Geniş Uç, DWK'da 5.75 | Yaşam Bilimleri | 63A53WT | |
| KIMBLE Kromatografi Adaptörü | DWK Yaşam Bilimleri | 420408-0000 | |
| Kimwipes | Kimberly-Clark Professional | 34120 | |
| Hafif Mineral Yağ | Sigma-Aldrich | M3516-1L | |
| LSE dijital kuru banyo ısıtıcısı, 1 blok, 120 V | Corning | 6875SB | |
| Manuel mikroşırınga pompası | World Precision Instruments | MMP | Özel mikroşırınga pompasına ticari alternatif |
| Mikroelektrot Tutucu Dünya | Hassas Aletler | MPH310 | |
| MicroFil Pipet Dolgu | Dünyası Hassas Aletler | MF28G67-5 | |
| Oje | Elektron Mikroskopi Bilimleri | 72180 | |
| Nükleaz içermeyen su | VWR | 82007-334 | |
| P-97 Alevli/Kahverengi Tip Mikropipet Çektirme | Sutter Aletleri | P-97 | |
| Penisilin-streptomisin | Sigma-Aldrich | p4458-100ML | 5.000 birim penisilin ve 5 mg streptomisin/mL |
| pipet pompası 10 mL | Bel-Art | 37898-0000 | |
| Potasyum klorür | Sigma-Aldrich | P3911 | |
| Profesyonel | |||
| Falcon | 352054 | ||
| Sodyum klorür | Sigma-Aldrich | S9888 | |
| Sahne mikrometresi | Meiji Techno America | MA285 | |
| İğnesiz Şırıngalar, 50 mL | BD Medical | 309635 | |
| Trikain Metanosülfonat | Syndel USA | SYNCMGAUS03 | |
| Trilene XL pürüzsüz döküm Olta | Berkley XLFS6-15 | ||
| Boru, polietilen No. 205 | BD Medical | 427445 | |
| UltraPure Düşük Erime Noktalı Agaroz | Invitrogen | 16520050 | |
| Wiretrol II kalibre edilmiş mikropipetler | Drummond | 50002010 |
Kaynaklar
- Solini, G. E., Dong, C., Saha, M. Embryonic transplantation experiments: Past, present, and future. Trends Dev Biol. 10, 13-30 (2017).
- Gilbert, S. F. A Conceptual History of Modern Embryology. , Springer. New York, NY. (1991).
- Spemann, H., Mangold, H. Induction of embryonic primordia by implantation of organizers from a different species. 1923. Int J Dev Biol. 45 (1), 13-38 (2001).
- Kretzschmar, K., Watt, F. M. Lineage Tracing. Cell. 148 (1), 33-45 (2012).
- Gansner, J. M., Dang, M., Ammerman, M., Zon, L. I. Chapter 22 - Transplantation in zebrafish. Methods in Cell Biol. 138, 629-647 (2017).
- Le Douarin, N. Details of the interphase nucleus in Japanese quail (Coturnix coturnix japonica). Bull Biol Fr Belg. 103 (3), 435-452 (1969).
- Ho, R. K. Cell movements and cell fate during zebrafish gastrulation. Dev Suppl. , 65-73 (1992).
- Le Douarin, N. M. Developmental patterning deciphered in avian chimeras. Development, Growth & Differentiation. 50, S11-S28 (2008).
- Wagner, D. E., Wang, I. E., Reddien, P. W. Clonogenic neoblasts are pluripotent adult stem cells that underlie planarian regeneration. Science. 332 (6031), 811-816 (2011).
- Balaban, E., Teillet, M. A., Le Douarin, N. Application of the quail-chick chimera system to the study of brain development and behavior. Science. 241 (4871), 1339-1342 (1988).
- Carmany-Rampey, A., Moens, C. B. Modern mosaic analysis in the zebrafish. Methods. 39 (3), 228-238 (2006).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- Rojo-Laguna, J. I., Garcia-Cabot, S., Saló, E. Tissue transplantation in planarians: A useful tool for molecular analysis of pattern formation. Semin Cell Dev Biol. 87, 116-124 (2019).
- Tanaka, E. M. The molecular and cellular choreography of appendage regeneration. Cell. 165 (7), 1598-1608 (2016).
- Hu, Y., et al. Muscles are barely required for the patterning and cell dynamics in axolotl limb regeneration. Front Genet. 13, 1036641(2022).
- Wells, K. M., Kelley, K., Baumel, M., Vieira, W. A., McCusker, C. D. Neural control of growth and size in the axolotl limb regenerate. Elife. 10, e68584(2021).
- Otsuki, L., Tanaka, E. M. Positional memory in vertebrate regeneration: a century's insights from the salamander limb. Cold Spring Harb Perspect Biol. 14 (6), e040899(2022).
- de Abreu, M. S., et al. Zebrafish as a model of neurodevelopmental disorders. Neuroscience. 445, 3-11 (2020).
- Alper, S. R., Dorsky, R. I. Unique advantages of zebrafish larvae as a model for spinal cord regeneration. Front Mol Neurosci. 15, 983336(2022).
- Blader, P., Strähle, U. Zebrafish developmental genetics and central nervous system development. Hum Mol Genet. 9 (6), 945-951 (2000).
- Kemp, H. A., Carmany-Rampey, A., Moens, C. Generating chimeric zebrafish embryos by transplantation. J Vis Exp. (29), e1394(2009).
- Boulanger-Weill, J., et al. Functional interactions between newborn and mature neurons leading to integration into established neuronal circuits. Curr Biol. 27 (12), 1707-1720 (2017).
- Dong, J., Stuart, G. W. Transgene manipulation in zebrafish by using recombinases. Methods Cell Biol. 77, 363-379 (2004).
- Kawakami, K., Shima, A., Kawakami, N. Identification of a functional transposase of the Tol2 element, an Ac-like element from the Japanese medaka fish, and its transposition in the zebrafish germ lineage. Proc Natl Acad Sci U S A. 97 (21), 11403-11408 (2000).
- Hwang, W. Y., et al. Efficient genome editing in zebrafish using a CRISPR-Cas system. Nat Biotechnol. 31 (3), 227-229 (2013).
- Elsen, J. S. Determination of primary motoneuron identity in developing zebrafish embryos. Science. 252 (5005), 569-572 (1991).
- Elsen, J. Chapter 5 - Cellular methods: detailed procedure for transplanting single cells. The Zebrafish Book. , (2000).
- Poulain, F. E., Gaynes, J. A., Stacher Hörndli, C., Law, M. -Y., Chien, C. -B. Analyzing retinal axon guidance in zebrafish. Methods Cell Biol. 100, 3-26 (2010).
- Masai, I., et al. N-cadherin mediates retinal lamination, maintenance of forebrain compartments and patterning of retinal neurites. Development. 130 (11), 2479-2494 (2003).
- Raible, D. W., Elsen, J. S. Regulative interactions in zebrafish neural crest. Development. 122 (2), 501-507 (1996).
- White, R. M., et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2 (2), 183-189 (2008).
- Barsh, G. R., Isabella, A. J., Moens, C. B. Vagus motor neuron topographic map determined by parallel mechanisms of hox5 expression and time of axon initiation. Curr Biol. 27 (24), 3812-3825 (2017).
- Isabella, A. J., Stonick, J. A., Dubrulle, J., Moens, C. B. Intrinsic positional memory guides target-specific axon regeneration in the zebrafish vagus nerve. Development. 148 (18), 199706(2021).
- Westerfield, M. Chapter 1: General methods for zebrafish care. The Zebrafish Book. , (2000).
- Grant, P. K., Moens, C. B. The neuroepithelial basement membrane serves as a boundary and a substrate for neuron migration in the zebrafish hindbrain. Neural Dev. 5 (1), 9(2010).
- Konantz, J., Antos, C. L. Reverse genetic morpholino approach using cardiac ventricular injection to transfect multiple difficult-to-target tissues in the zebrafish larva. J Vis Exp. (88), e51595(2014).
- Novoa, B., Figueras, A. Zebrafish: model for the study of inflammation and the innate immune response to infectious diseases. Adv Exp Med Biol. 946, 253-275 (2012).
- Speirs, Z. C., et al. What can we learn about fish neutrophil and macrophage response to immune challenge from studies in zebrafish. Fish Shellfish Immunol. 148, 109490(2024).
- Trede, N. S., Langenau, D. M., Traver, D., Look, A. T., Zon, L. I. The use of zebrafish to understand immunity. Immunity. 20 (4), 367-379 (2004).
- Lam, S. H., Chua, H. L., Gong, Z., Lam, T. J., Sin, Y. M. Development and maturation of the immune system in zebrafish, Danio rerio: a gene expression profiling, in situ hybridization and immunological study. Dev Comp Immunol. 28 (1), 9-28 (2004).
- Wienholds, E., Schulte-Merker, S., Walderich, B., Plasterk, R. H. A. Target-selected inactivation of the zebrafish rag1 gene. Science. 297 (5578), 99-102 (2002).
- Petrie-Hanson, L., Hohn, C., Hanson, L. Characterization of rag1 mutant zebrafish leukocytes. BMC Immunol. 10, 8(2009).
- Roh-Johnson, M., et al. Macrophage-dependent cytoplasmic transfer during melanoma invasion in vivo. Dev Cell. 43 (5), 549-562 (2017).
- Bukrinsky, A., Griffin, K. J. P., Zhao, Y., Lin, S., Banerjee, U. Essential role of spi-1-like (spi-1l) in zebrafish myeloid cell differentiation. Blood. 113 (9), 2038-2046 (2009).
Yeniden basım ve izinler
