Bu protokol, mikobakterilerde Zn2+ sınırlı ribozomlar üretmek için Zn2+ sınırlı ortamın, büyüme kaplarının ve tohum kültürlerinin hazırlanmasını detaylandırır. Zn2 + izleri Zn2 + sınırlayıcı büyümeye yol açar ve model bakteri, Mycobacterium smegmatis ve insan patojeni M. tuberculosis'te in vitro olarak Zn2 + sınırlamasını doğrulamak için biyoindikatör olarak kullanılan morfojenik özellikleri tanımlarız.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Yöntem makalesi
Mycobacterium smegmatis'in Mikobakterilerde Çinko Sınırlı Büyüme Koşulları için Biyoindikatör Olarak Kullanılması
* These authors contributed equally
Bu makalede
Özet
Özet
Birçok bakteri, Zn2+ bağlayıcı ribozomal proteinleri Zn2+ bağımsız paraloglarla değiştirerek Zn2+ sınırlayıcı büyüme koşullarında alternatif ribozomlar oluşturur. Bu alternatif ribozomları incelemek için bir sistem tanımlamanın zor olduğu kanıtlanmıştır çünkü laboratuvarda Zn2 + kontaminasyonu yaygındır. Bu sorunu ele almak için, şelatlama maddeleri bazen büyüme ortamına eklenir, ancak bu yaklaşım kademeli Zn2 + sınırlamasına biyolojik yanıtı karıştırır ve ribozom hazırda bekletme ile ilişkilidir. Burada, şelatör eklemeden Zn2+ sınırlı büyüme için ortam ve tohumlama kültürlerinin hazırlanması için ayrıntılı talimatlar özetlenmiştir. Bu yöntemi takiben, model bakteri, Mycobacterium smegmatis, alternatif ribozomlara bağlı olan morfogeneze uğrar. Morfogenez izlenebilir olduğundan ve yalnızca Zn2 + sınırlayıcı koşullarda meydana geldiğinden, M. smegmatis biyolojik olarak ilgili büyüme koşullarını doğrulamak için bir biyoindikatör olarak kullanılabilir. Yabani tipte Zn2+ sınırlamasını gösteren üç biyoindikatör fenotipi (hücre yoğunluğu, hücre uzunluğu ve koenzim F420 floresansı) tanımlanmış ve alternatif ribozomlar oluşturamayan bir delesyon mutantı için bu biyoindikatörlerdeki değişiklikler özetlenmiştir. İz Zn2 + kontaminasyonunun her bir ortam partisi için kontrol edilmesi zor olduğundan ve her bir ortam preparatında Zn2 + 'nın kesin miktar tayini aşırı derecede külfetli olduğundan, bu biyoindikatör fenotipini takip etmek, Zn2 + sınırlı büyüme ortamının hazırlanmasını doğrulamanın erişilebilir bir yoludur. Zn2 + sınırlayıcı büyüme ve alternatif ribozom üretimi için uygun koşulların belirlenmesine yardımcı olmak için, biyoindikatör fenotiplerindeki değişiklikler, Zn2 + ile kontamine olmuş veya Zn2 + - sınırlı ortamın ciddi şekilde Zn2 + tükenmiş preparatları için de profillendi. M. tuberculosis'te Zn2 + sınırlayıcı büyüme ve alternatif ribozom üretimini elde etmek için daha fazla ayrıntı, ilişkili biyoindikatör fenotipi ile birlikte sunulmaktadır. Genel olarak, burada açıklanan ayrıntılı talimatlar ve biyoindikatör fenotipleri, mikobakterilerde translasyonel olarak aktif alternatif ribozomların üretiminin standartlaştırılmasına yardımcı olacaktır.
Giriş
Çinko iyonu (Zn2+) temel bir mikro besindir ve mikrobiyolojik ortamın standart bir bileşenidir. Bununla birlikte, Zn2+ sınırlayıcı koşullar yaygın olduğu için birçok bakteri çevrede Zn2+ sınırlamasına dayanır; soil1, marine2 ve host3 içindeki nişler genellikle Zn2+ sınırlıdır. Bu nedenle, çoğu bakteri, Zn2+ sınırlamasının üstesinden gelmek ve hücresel işlevi korumak için mekanizmalar geliştirmiştir4. Zn2+ homeostazının sürdürülmesiyle ilgili sistemler sıkı transkripsiyonel kontrol5 altındadır ve yüksek afiniteli Zn2+ içe aktarma sistemleri kullanarak Zn2+ süpürülmesinde, hücresel Zn2+ rezervlerinin mobilize edilmesinde ve belirli Zn2 + bağlayıcı proteinlerin alternatif Zn2 + bağımsız paraloglarla değiştirilmesinde rol oynar < sup sınıfı = "xref">6. İkincisinin bir örneği, bacteria class="xref">4'teki Zn 2+ duyarlı regülasyonların ortak bir özelliği olan Zn2+'dan bağımsız ribozomal protein (RP'ler) paraloglarıdır. Bu oldukça farklı Zn2+ bağımsız RP'ler, Zn2+ bağlayıcı CXXC motifi7'nin bozulmasıyla Zn2+ bağlama paraloglarından ayırt edilir. Dizilenmiş prokaryotik genomların yarısından fazlası, en az bir çift çoğaltılmış RP içerir, burada birçoğunda bir RP Zn2+'yı bağlarken, paralogu 8'i bağlamaz. C+/C- gösterimi (sistein açısından zengin Zn2+ bağlama motifinin varlığını/yokluğunu gösterir) bu paralog RP çiftlerine atıfta bulunmak için yaygın olarak kullanılırken7, Zn 2+'dan bağımsız RP'ler, Zn2+'da ribozom biyogenezi için alternatif RP'ler olarak hizmet ettiğinden, birincil (Prim), Zn2+ bağlayıcı RP paraloglarının alternatif (Alt) versiyonları olarak da tanımlanmıştır-bazı bakterilerde sınırlı durumdadır ve daha iyi aranabilirliğe sahip bir anahtar kelimedir9,10,11.
AltRP ifadesi Zn2+ tarafından sıkı bir şekilde düzenlendiğinden, AltRP ifadesinin Zn2+ sınırlaması karşısında Zn2+'ya bağımlı ribozomal proteinlere işlevsel fazlalık sunduğunu varsaymak mantıklıdır. Gerçekten de, AltRP'lerin bu özelliği, Zn2+ sınırlaması sırasında yüzey PrimRP L31'in serbest bırakılması ve AltRP L3112,13 ile değiştirilmesiyle büyümenin kurtarıldığı model toprak bakterisi Bacillus subtilis için gösterilmiştir. Bununla birlikte, bazı AltRP'ler, örneğin S14 gibi çekirdek PrimRP'lere benzerdir, yani ribozom biyogenezi12,13 sırasında dahil edilmeleri gerekir. Ribozomu AltRP'lerle yeniden inşa etmek, kararlı, enerji yoğun bir programdır. Bu çekirdek AltRP'ler Zn2+'yı ribozomdan kurtarmaya hizmet edebilirken, bazı AltRP'lerin Zn2+ sınırlı ortamda ek bir işlev geliştirmesi de mümkündür. Bu, AltRP'lerin paralog PrimRP'lerinden farklı olduğu gözlemiyle desteklenir; AltRP genlerinin dizi homolojisi, farklı türlerdeki homologlar arasında, aynı tür içindeki Zn2+ bağlayıcı PrimRP gen dizisine göre genellikle daha yüksektir7,10. Oldukça farklı AltRP'leri kodlayan genler Zn2+'ya bağlı transkripsiyonel kontrol altında olduğundan, sıkı bir şekilde düzenlenmiş ve yüksek oranda korunmuş ribozomal süperoperonlar14 üzerine uygulanan seçici baskıdan çıkarılırlar. Ribozomal mekanizmayı ve AltRP'leri kodlayan genetik bilgi üzerindeki ayrıştırılmış seçici baskı, bu RP'leri homolog PrimRP'lerden farklı evrimsel yörüngelere maruz bırakır ve aynı AltRP'nin farklı bakterilerde soya özgü evrimine izin verebilir10,15. AltRP'lerin bakterilerde yaygın olarak bulunması ve bu benzersiz RP'lerin ayrıştırılmış genetik düzenlemesi, AltRP'lerin bakteri ribozomlarına dahil edilmesinin AltRP içeren ribozomlara (Alt-ribozomlar) özel bir özellik kazandırıp kazandırmadığı konusunda ilginç bir soruyu gündeme getirmektedir.
Mikobakteriler, Alt-ribozomların mekanik özelliklerini araştırmak için ideal bir bakteri grubudur. İlk olarak, mikobakteriler, AltRP'leri kodlayan dört gen içeren yüksek oranda korunmuş bir altRP operonuna sahiptir: S14-2, S18-2, L28-2 ve L33-28,9. Mikobakteriyel AltRP'ler, PrimRP paraloglarından önemli ölçüde farklıdır; dört PrimRP/AltRP çiftinin hepsinde, belirli bir AltRP geni, tüm mikobakteriyel türlerde aynı türdeki PrimRP genine olduğundan daha benzerdir10. AltRP'lerin soya özgü evrimi, Mycobacterium tuberculosis ve M. bovis'teki AltRPs S18-2 ve L28-2 tarafından kanıtlandığı gibi, diğer mikobakterilerde bulunmayan C-terminalinde benzersiz diziler içeren Mikobakteriler içinde de belirgindir10. İkincisi, bu yüksek derecede ilişkili bakteri grubu, topraktan (örneğin, M. smegmatis) sayısız konakçıya kadar çeşitli ortamlarda bulunan patojenik olmayan ve patojenik üyeler içerir: insan (örneğin, M. tuberculosis), sığır (örneğin, M. bovis), suda yaşayan (örneğin, M. marinum) ve kuş (örneğin, M. avium), birkaç isim. Mikobakterilerdeki altRP operonunun yüksek oranda korunmuş doğası, belirli AltRP genlerinin soya özgü evrimi ve bu grubun üyelerinin bulunduğu çok farklı ortamlar, AltRP fonksiyonunun korunmuş ve soya özgü evrimini ve Alt-ribozomlarının mekanik özelliklerini ayrıştırmak için eşsiz bir fırsat sağlar. Prokaryotik genomlarda AltRP'lerin bolluğuna rağmen, AltRP'lerin ve Alt-ribozomların rolü yalnızca birkaç bakteride araştırılmıştır9,10,11,12,13,16,17,18,19. Mikobakterilerde Zn2 + sınırlayıcı büyüme koşullarını doğrulamak için belirli metriklere sahip standartlaştırılmış bir sistem kurmak, deneysel sonuçları iyileştirecek ve ribozom araştırması alanında Alt ribozomların anlaşılmasını ilerletecektir.
Zn2+ bir mikro besindir; bu nedenle, kimyasallarda ve suda Zn2 + 'yı kirleten izler, ortam hazırlığından çıkarılsa bile Zn2 + 'nın biyoyararlanımına katkıda bulunur. Suda veya kimyasallarda bulunan eser miktarda Zn2 + laboratuvarlar arasında büyük ölçüde değişebilir ve bu nedenle Zn2 + sınırlayıcı büyümenin sonucunu etkiler. Her bir bağımsız ortam hazırlığında [Zn2 +] 'nın ampirik olarak ölçülmesi, rutin büyüme testleri yürüten çoğu laboratuvar için aşırı derecede külfetlidir, ancak büyüme ortamında Zn2 + kontaminasyonu olasılığını ortadan kaldıran bir mekanizma özünde değerli olacaktır. Bu amaçla, burada M. smegmatis ve M. tuberculosis'te Zn2+ sınırlayıcı büyüme ve Alt-ribozom üretimi için kimyasal olarak tanımlanmış bir Zn 2+ - sınırlı ortam (ZLM), büyüme kapları ve tohum kültürleri hazırlamak için ayrıntılı bir yöntem sunulmaktadır. ZLM'de büyümeden sonra temel morfojenik özellikler (OD600 ile ölçülen hücre yoğunluğu, hücre uzunluğu ve koenzim F420'nin floresansı),Zn2+ sınırlamasının elde edildiğini doğrulamak için kullanılır. Koenzim F420, metanojenlerde ve mikobakterilerde katabolizma ve oksidatif strese karşı savunmada önemli rolleri olan bir deazaflavin kofaktörüdür20,21. Daha da önemlisi, mikobakteriler, bu kofaktör22'nin bolluğu nedeniyle 420 nm'de uyarıldığında otofloresandır. [Zn2 +] ve F420 floresan arasındaki moleküler bağlantı çözülmeden kalır, ancak kültürlerde F420 floresansını takip etmek izlenebilir ve güvenilir bir biyoindikatördür.
M. smegmatis'te, biyoindikatör fenotipleri vahşi tip bakterilerde meydana gelir, ancak altRP operonundan yoksun bir delesyon mutantı aynı morfojenik programa tabi tutulmaz ve diferansiyel bir biyoindikatör10 olarak kullanılabilir. M. tuberculosis, Zn2+ sınırlaması sırasında M. smegmatis ile aynı morfojenik programı takip etmese de, M. tuberculosis'in Zn'ye karşı sağlam ve küresel bir yanıtı vardır2+ sınırlama ve bu yöntemi izleyen önemli bir biyoindikatör fenotipi23. Böylece, burada tanımlanan sistem, Alt ve Alt ribozomların aynı büyüme koşulları altında (yani Zn2 + sınırlaması) üretilmesini sağlayarak, Alt ribozom fonksiyonunun mekanik diseksiyonunu ve bakteri fizyolojisini şekillendirmedeki rolünü kolaylaştırır. Bu büyüme yöntemi, aktif Alt-ribozomların yapısını çözmek ve vahşi tip M. smegmatis24'te translasyon aktivitelerini göstermek için kullanıldı. Bu büyüme yönteminin ve biyoindikatör fenotipinin, Zn2+ sınırlaması sırasında AltRP'lerin biyolojik işlevselliğini vurguladığını daha da destekleyen AltRP ekspresyonu, Zn2+'ya bağlı morfogenez için gereklidir ve Zn2+-sınırlı M. smegmatis10,25'in transkriptomu ve proteomu üzerinde derin bir etkiye sahiptir. Aynı yöntem, inokulum miktarında ve inkübasyon süresinde küçük değişikliklerle, M. tuberculosis9,23'ün Zn2+ ile sınırlı kültürlerini oluşturmak için kullanılır. Burada, hem M. smegmatis hem de M. tuberculosis'te Zn2+ sınırlayıcı büyüme elde etmek için protokoller ve biyoindikatör fenotipleri, M. smegmatis'e odaklanılarak detaylandırılmıştır, çünkü bu bakteri ortamdaki Zn2+ kontaminasyonuna daha duyarlıdır ve yavaş büyüyen patojenden daha yaygın olarak erişilebilirdir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Protokol
NOT: Bu çalışmada kullanılan suşlar, yabani tip M. smegmatis mc2 155 (Dr. Robert Husson, Boston Children's Hospital'dan hediye) ve ΔaltRP delesyon suşudur (Prisic laboratuvarından kaynaklanmıştır10). Yerel biyogüvenlik düzenlemelerine ve mevcut kaynaklara bağlı olarak Biyogüvenlik Seviyesi 1 (BSL1) veya BSL2 laboratuvarında kültüre edilebilirler. Burada protokol, BSL2 laboratuvarı için yazılmıştır. BSL1 laboratuvarında gerçekleştirilecekse, Bunsen beki ile aseptik teknik, biyogüvenlik kabininin yerini alabilir. Ek olarak, diğer suşları veya koşulları dahil etmek isteyen araştırmacıların, analiz edilen toplam kültür sayısına göre gereken medya hacmini hesaplamaları gerekecektir. Patojenik M. tuberculosis H37Rv (Mtb-H37Rv; Dr. Robert Husson, Boston Children's Hospital'dan hediye) ile BSL3 laboratuvarında, respiratör (örneğin PAPR veya N95) giyerek çalışın. Mtb-H37Rv gibi yüksek derecede virülan mikobakteriler kültüre edilirken flaskları yeniden kullanmayın. Oksotrofik M. tuberculosis mc26206 (Mtb-Aux) atenüedir ve BSL2 laboratuvarında manipüle edilebilir (Dr. William R. Jacobs Jr., Albert Einstein College of Medicine'dan hediye).
1. Erlenlerin hazırlanması
NOT: Zn2+-Sınırlı büyüme koşulları, yeniden kullanılabilir (otoklavlanabilir) polikarbonat 250 mL Erlenmeyer flasklarda sağlanır. Zn için cam flask kullanmayın.2+-büyümeyi sınırlamak veya daha sıkı asit yıkama prosedürlerini araştırıp bu protokolde sunulan sonuçlarla karşılaştırmak19Zn düzeyini sağlamak için yepyeni erlenmayerler yeterlidir.2+-büyüme koşullarını sınırlayın, ancak bir deneyde asla yeni ve eski erlenleri karışık kullanmayın. Zayıflama belirtileri gösteren (genellikle ek yerlerinde) veya yaklaşık 20 kereden fazla kullanılmış erlenleri atın. Kapak filtrelerini bozulma riskine karşı düzenli olarak kontrol edin ve zarar görmüşse imha edin. Eğer mevcutsa, kapakların üstüne vidalanan ve filtreleri örten kapak kapaklarını atın. Bu yöntem, erlenleri temizlemek ve yeniden kullanıma hazırlamak için alınan önlemleri özetlemektedir.
- Erlenmayerleri, aynı setin yalnızca Zn2+-kısıtlı koşullar için kullanılması amacıyla kalıcı olarak etiketleyin. Başka bir Erlenmayer setini Zn2+-bol büyüme için etiketleyin. Erlenmayerlerin karışmasını önlemek için farklı renklerle etiketleme yapmak faydalıdır.
- Erlenmayerlerdeki kültür kalıntılarının asla kurumasına izin vermeyin. Kültürü Erlenmayerden dekante ettikten hemen sonra Erlenmayerlere su ekleyin (örneğin, 100 mL). Eğer büyüme sonunda kültür hasat edilmeyecekse, bu protokolde açıklandığı üzere biyobelirteç fenotiplerini kaydettikten sonra, tüm kültürü %10 nihai çamaşır suyu konsantrasyonuna sahip bir sıvı atık imha kabına dökerek Erlenmayerleri boşaltın.
- Erlenmayerleri, içlerinde su varken ve kapakları kapalı halde sıvı döngüsünde (en az 121 °C'de 15 psi'da) 20 dk boyunca otoklavlayın.
- Otoklavlama işleminden sonra Erlenmayerleri iyonik olmayan, düşük köpüklü deterjanla yıkayın ve yumuşak bir temizleme fırçasıyla iyice fırçalayın. Yalnızca Zn2+-kısıtlı büyüme için kullanılan Erlenmayerleri yıkamak için ayrı bir fırça belirleyin. Erlenmayerlerin kalıntı veya döküntü olmadan temiz olduğundan emin olun. Kapakları fırçalamayın veya üzerlerinde sabun kullanmayın, deiyonize su ile nazikçe durulayın.
- Erlenmayerleri önce musluk suyuyla iyice durulayın, ardından üç kez deiyonize (tip II veya III) suyla ve en az bir kez daha ultrapure (tip I) suyla (25 °C'de 18.2 MΩ-cm ve ≤ 5 ppb toplam organik karbon) durulayın.
- Erlenmayerleri, dipte su birikmemesi için dikey olarak baş aşağı yerleştirin. Standart duvara monte laboratuvar kurutma raflarını kullanmayın, çünkü bunlar Erlenmayerleri eğik tutar ve küçük bir miktar su birikmesine neden olur. Standart bulaşıklık rafları yeterli olacaktır. Erlenmayerlerin ve kapakların tamamen kurumasını bekleyin.
- Kuruduktan sonra, kapakları Erlenmayerlere vidalayın ve kapakları alüminyum folyo ile kapatın. Steril durumunu belirtmek ve kapak filtrelerini tozdan korumak için folyonun üzerine bir parça otoklav indikatör bandı yapıştırın.
- Temizlenen Erlenmayerleri (en az 121 °C'de 15 psi'da) 20 dk boyunca otoklavlayın, ardından yükü kurutmak için döngü sonrası vakum uygulayın (otoklav bu özelliğe sahipse). Erlenmayerleri kuru ve tozdan korunmuş şekilde saklayın.
2. Zn2+-kısıtlı ortamın (ZLM) hazırlanması
NOT: Besiyeri hazırlamak için yalnızca plastik beherler, dereceli silindirler ve diğer sarf malzemelerini kullanın. Yalnızca Zn2+-kısıtlı besiyeri hazırlamak için kullanılacak bir laboratuvar malzemesi seti belirleyin. Tüm laboratuvar malzemelerini kullanım öncesinde ve sonrasında ultra saf (tip I) su ile iyice durulayın. Yüksek saflıkta kimyasallar kullanın ve mümkünse bunları aynı tedarikçilerden satın alın.
- Zn2+ tuzları eklenmemiş, Zn2+-kısıtlı Sauton besiyerini26, aşağıdaki kimyasalları manyetik karıştırıcılı 1 L'lik plastik bir beherde ~950 mL ultrapure su ile karıştırarak hazırlayın:
0.5 g KH2PO4 (0.05%; MW: 136.09)
0.5 g MgSO4 x 7H2O (0.05%; MW: 246.48)
2 g sitrik asit, susuz (0.2%; MW: 192.12)
4 g L-asparajin, %99 (0.4%; MW: 132.12)
60 mL gliserol (%6)
189 µL 1 M ferrik amonyum sitrat (0.005%; MW: 265)- Gliserolü tek kullanımlık, plastik 50 mL'lik serolojik pipet kullanarak ekleyin. Pipette artık gliserol kalmayana kadar besiyeri içinde yaklaşık 10 kez yukarı-aşağı pipetleme yaparak pipeti iyice durulayın.
NOT: Gliserol oldukça viskozdur ve ölçülmesi zordur. Alternatif olarak, gliserol bir mezürle ölçülebilir ve ardından yaklaşık 30 mL ultrapure su ile defalarca durulanıp bu su da besiyerine eklenebilir. Bu yöntem izleniyorsa, gliserol ve mezürdeki durulama suları eklendiğinde son hacmin ~950 mL'yi geçmemesi için daha düşük bir başlangıç hacmiyle (~600 mL) başlanmalıdır.
- Gliserolü tek kullanımlık, plastik 50 mL'lik serolojik pipet kullanarak ekleyin. Pipette artık gliserol kalmayana kadar besiyeri içinde yaklaşık 10 kez yukarı-aşağı pipetleme yaparak pipeti iyice durulayın.
- Besiyeri hacmini yaklaşık 950 mL'ye tamamlayın ve iyice karıştırın. L-asparajinin çözünmesi birkaç dakika sürer; devam etmeden önce beyaz parçacıkların tamamen yok olmasını bekleyin.
NOT: Ferrik amonyum sitrat çözeltisi besiyerine açık sarı bir renk verir. - Plastik bir kapta (örneğin, 15 mL'lik konik tüp) ultrapure su ile 15 mL taze NaOH çözeltisi (~%10 w/v) hazırlayın.
- pH metreyi kullanmadan önce ultrapure su ile iyice durulayın ve pH metrenin sadece bulb kısmını besiyerine daldırın. pH'ı ayarlarken pH metreyi hafif karıştırma eşliğinde besiyerinde bırakın. Tek kullanımlık plastik transfer pipeti kullanarak, nihai pH 7.4 olana kadar taze hazırlanmış NaOH ekleyin.
NOT: Besiyerinin başlangıç pH'ı oldukça asidiktir. pH'ı nötr aralığa getirmek için yüksek hacimde NaOH çözeltisi gerekir. Başlangıçta 4-6 mL NaOH çözeltisi ekleyin; pH 6.5 civarına ulaştığında NaOH çözeltisini damla damla ekleyin. Hedef pH olan 7.4 değerini aşmayın. Eğer aşılırsa, HCl veya diğer asitlerle yeniden ayarlamaya çalışmayın; besiyerini imha edin. Probun kontamine olmasını önlemek için ZLM hazırlamaya özel bir pH metre kullanmak ve bunu diğer besiyerleri veya tamponların pH'ını ölçmek için kullanmamak iyi bir uygulamadır. - Besiyerini bir mezüre aktarın ve ultrapure su ile nihai hacmi 1 L'ye tamamlayın. Besiyerini 0.2 µm'lik tek kullanımlık bir filtre flask aracılığıyla filtre sterilizasyonundan geçirin.
- Aseptik koşullarda 2.5 mL filtre sterilize edilmiş %20'lik Tween-80 çözeltisi ekleyin (nihai konsantrasyon %0.05). Işıktan uzak, 4 °C'de 6 aya kadar saklayın.
M. smegmatis'te Zn2+-kısıtlı büyüme
NOT: ZLM içeriğindeki Zn2+ miktarı partiden partiye farklılık gösterdiğinden, bir deneydeki tüm kültürler için aynı medya partisinin veya iyice karıştırılmış birden fazla medyanın kullanılması zorunludur. Kültürleri kurmak için gerekli medyanın yanı sıra, tohum kültürlerini yıkamak ve normalize etmek için yaklaşık 100 mL ek medyaya ihtiyaç duyulur.
- Tüm adımları bir biyogüvenlik kabininde gerçekleştirin. Tohum kültürlerini, bir büyüme deneyi kurmadan 18 saat önce hazırlayın. Aşırı büyümüş veya topaklanmış tohum kültürleri kullanmayın. Suş başına bir tohum kültürü yeterlidir.
- 50 mL'lik bir biyoreaktör tüpüne aseptik olarak 5 mL 7H9-ADC besiyeri (%0,05 Tween 80 ve %10 ADC zenginleştirmeli Middlebrook 7H9 bulyonu [nihai konsantrasyon: %0,5 sığır serum albümini, %0,2 dekstroz, %0,085 NaCl ve isteğe bağlı %0,0003 katalaz]) ekleyin.
- Çözünmüş gliserol stok hücrelerinden 10 µL'sini (hazırlanışı bkz. 26) aseptik olarak doğrudan besiyerine ekleyin. Tüpün kapağını sıkıca kapatın.
- Sıvının çalkalama sırasında tüpün yaklaşık yarısına kadar çıkması için tüpleri sallamalı inkübatöre yaklaşık 45° açıyla sağlam bir şekilde yerleştirin.
- Tüpleri 120 rpm çalkalama ile 37 °C'de yaklaşık 18 saat inkübe edin.
- Gece boyu inkübe edilen tohum kültürlerini, kültürün homojen şekilde bulanık olduğunu ve belirgin bir topaklanma olmadığını doğrulamak için kontrol edin. Gece boyu kültürün 600 nm'deki optik yoğunluğu (OD600) ideal olarak 0,5-0,8 civarında olmalıdır.
- Gece boyu büyüme için kullanılan biyoreaktör tüplerindeki kültürleri, oda sıcaklığında 5 dakika boyunca 3.000 x g santrifügasyonla çöktürün.
- Süpernatantı dökün veya aspire edin ve 5 mL ZLM içinde yeniden süspanse edin. Toplam üç yıkama için santrifügasyon ve yeniden süspansiyon adımlarını 2 kez daha tekrarlayın.
- Santrifügasyon adımları sırasında, sterilizasyon için bir küveti %70 etanol ile taşana kadar doldurun. Dolu küvetin biyogüvenlik kabininde 10 dakika beklemesine izin verin ve bir pipet kullanarak ZLM ile 3 kez iyice durulayın.
NOT: Hücre normalizasyon sürecinin verimli bir şekilde gerçekleştirilmesi zaman ve pratik gerektirir. Hücrelerin doğrudan etanolle sterilize edilmiş küvette normalize edilmesiyle süreç büyük ölçüde hızlanır. - Çalışmaya dahil olan suş sayısı kadar küvet hazırlayın; örneğin, bu protokol yabanı tip ve ΔaltRP mutantı için iki sterilize edilmiş küvet gerektirir.
- Santrifügasyon adımları sırasında, sterilizasyon için bir küveti %70 etanol ile taşana kadar doldurun. Dolu küvetin biyogüvenlik kabininde 10 dakika beklemesine izin verin ve bir pipet kullanarak ZLM ile 3 kez iyice durulayın.
- ZLM ile üç yıkamadan sonra, her bir hücre pelletini 2 mL ZLM içinde yeniden süspanse edin.
- Bir küvette 600 µL ZLM ile spektrofotometreyi sıfırlayın (blank). Küvetin sterilize edilmesine gerek yoktur. Küveti kenara ayırın ve her bir kültürü (yani suşu) normalize etmeden önce spektrofotometreyi sıfırlamak için kullanın.
- Her seferinde tek bir suşla çalışarak, adım 3.5'teki yıkanmış hücrelerden 600 µL'sini adım 3.4.1'de hazırlanan sterilize küvete aktarın ve başlangıç OD600 değerini ölçün. OD600 değeri 1'in üzerindeyse adım 3.8'e geçin. OD600 değeri 1'in altındaysa 3.7.1 ve 3.7.2 alt adımlarını takip edin.
- Adım 3.7'den elde edilen başlangıç OD600 okuması 1'in altındaysa, küvetteki tüm kültürü toplayın, santrifüj tüpündeki kalan yıkanmış tohum hücrelerine geri ekleyin ve kültürü adım 3.3'teki gibi tekrar santrifügajlayın. Daha yüksek bir hücre yoğunluğu elde etmek için kültürü adım 3.5'te kullanılandan daha düşük bir hacimde (örneğin 1 mL) yeniden süspanse edin ve adım 3.7'yi tekrarlayın.
- Adım 3.7.1 sonrası OD600 değeri hala 1'in altındaysa, kültür yeterince yoğun değildir; prosedürü adım 3.1'den itibaren yeniden başlatın. Kültürleri daha uzun süre inkübe edin veya gece boyu kültürlerin kurulması için ekilen inokülüm miktarını, nihai gece boyu kültür yoğunluğu adım 3.2'de açıklandığı gibi OD600 = 0,5-0,8 civarında olacak şekilde artırın.
- Aşağıdaki denklem ve adım 3.7'de ölçülen OD600 değerini kullanarak, küvetteki 600 µL yıkanmış hücreye OD600 = 1 değerini elde etmek için eklenmesi gereken ZLM hacmini hesaplayın:
ZLM Hacmi (μL) = (başlangıç OD600 - 1) × 600 μL - Adım 3.8'de hesaplanan ZLM hacmini adım 3.7'de hazırlanan küvete ekleyin, 5-10 kez pipetleyerek iyice karıştırın ve OD600 değerini yeniden ölçün.
- Aşağıda listelenen alt adımları takip ederek OD600 değerini OD600 = 1'in %5 tolerans aralığına ayarlayın. Her ayarlama için çok fazla uç kullanmamak için, biri (P1000 boyutunda) sadece kültürle karıştırmaya ayrılmış iki pipet kullanın.
- OD600 değeri 1'in üzerindeyse, damla damla ZLM ekleyin (her seferinde ~50 µL), 5-10 kez aşağı yukarı pipetleyerek iyice karıştırın ve OD600 değerini ölçün. Kültür, OD600 = 1 değerinin %5'lik aralığına girene kadar bu işlemi gerektiği kadar tekrarlayın.
- Normalizasyon sırasında OD600 değeri 1'in altına düşerse, adım 3.5'ten daha fazla yıkanmış hücre ekleyin (başlangıç için ~20 µL), 5-10 kez aşağı yukarı pipetleyerek iyice karıştırın ve OD600 değerini ölçün. Kültür, OD600 = 1 değerinin %5'lik aralığına girene kadar bu işlemi gerektiği kadar tekrarlayın (veya OD600 değeri 1'in üzerine çıkarsa adım 3.10.1'de açıklandığı gibi daha fazla ZLM ekleyin).
- Spektrofotometreye kültür dökülmesini önlemek için hücre normalizasyonu sırasında küvetteki hacmin ~1,5 mL'yi geçmediğinden emin olun. Gerekirse, seyreltme yaparken küvetten kültür çıkarın. Ayrıca küvetteki kültür hacminin, spektrofotometrenin OD600 değerini doğru ölçebilmesi için gereken minimum hacmin üzerinde olduğundan emin olun. Çoğu spektrofotometre en az 600 µL gerektirir.
- Hücre normalizasyon adımlarını (3.6 - 3.10), çalışmaya dahil olan tüm suşlar ve koşullar için tekrarlayın.
- Adım 1'de açıklandığı şekilde hazırlanan 250 mL'lik plastik Erlenmeyer flasklarına aseptik olarak 50 mL ZLM ekleyerek bir deney için gereken toplam flask sayısını hazırlayın.
- Küvetten doğrudan 50 µL OD600 = 1 normalize edilmiş kültürü aseptik olarak ekleyerek flaskları, nihai OD600 değeri 0,001 olacak şekilde (normalize edilmiş inokülümün 1:1000 seyreltimi) inoküle edin.
- Zn2+ kısıtlaması olmadan büyütülen kültürler için (yani Zn2+-bol besiyerleri, ZRM), 6 µM ZnSO4 nihai konsantrasyonuna ulaşacak şekilde 30 µL steril 10 mM ZnSO4 (1M steril stok çözeltiden taze hazırlanmış) doğrudan kültür flasklarına ekleyin.
- Flaskları, stasyoner faza ulaşana kadar 3 gün boyunca 37 °C'de 100 rpm çalkalama ile inkübe edin (Gün 0, inokülasyon günüdür).
- Büyümenin her gününde, 96 kuyucuklu düz tabanlı bir mikroplakada 200 µL kültür kullanarak aşağıdaki büyüme metriklerini ölçmek için bir monokromatör veya filtre tabanlı mikroplaka okuyucu kullanın. Hücrelerin çökmemesi için plaka okumalarını alikotlama işleminden hemen sonra yapın.
NOT: Mutlak floresan değerleri, oranlar ve floresan taramaları kadar bilgilendirici olmadığından ve ölçülen küçük hacim plaka kurulumu sırasında hızla oda sıcaklığına ulaştığından, plaka okuyucuyu önceden ısıtmak gerekli değildir. Kapaktaki yoğuşma sorun oluşturursa, floresan plakanın üstünden veya altından ölçülebilir; ancak alt taraftan okunduğunda floresan yoğunluk değerleri genel olarak daha düşüktür.- Hücre yoğunluğu (yani OD600): Mikroplaka okuyucudan elde edilen OD600 değerini raporlamak için, belirli bir hacimle (örneğin 200 µL) mikroplaka yol uzunluğundan gelen okumayı standart 1 cm yol uzunluğuna dönüştürecek bir standart eğri oluşturun.
- Kofaktör F420 floresansı (ex 420 nm/em 475 nm): Filtre tabanlı mikroplaka okuyucular için en yakın filtre setini (örneğin, ex 430 nm/em 488 nm) ve siyah 96 kuyucuklu mikroplakaları kullanın.
- 375 nm'deki arka plan floresansını ölçün (ex 375 nm/em 475 nm)
- Monokromatör kullanılıyorsa, ex 230 - 440 nm arasında 5 nm adımlarla ve 475 nm sabit emisyonla bir floresan yoğunluğu taraması gerçekleştirin.
- Monokromatör kullanılıyorsa, aşağıdaki denklemi kullanarak 375 nm'deki floresan yoğunluğunun 420 nm'ye oranını yüzdelik olarak hesaplayın:
F375/420 (%) = (F375/F420) x 100
4. Hücre uzunluğunun kaydedilmesi ve ölçülmesi
- 3. günde, hücre uzunluğunu görüntüleyin ve kaydedin. Bir cam lamı ve lamelli tüy bırakmayan bir bezle temizleyin. Kültürden 10 µL'lik bir damlayı lam üzerine pipetleyin ve lameli doğrudan kültürün üzerine bırakın. Kültürün yayılması ve lamelin altındaki tüm alanı neredeyse tamamen doldurması için lameli hafifçe bastırın. Kurumayı önlemek için lamları hazırlayın ve hemen görüntüleyin.
NOT: Eğer kültür kolayca yayılmıyorsa, kalıntılar iyi teması engeller ve su hareketi hücrelerin odakta yakalanmasını zorlaştırır. Yeni bir lam hazırlayın. - 100x yağ daldırma ve 10x oküler objektiflere (toplam 1000x büyütme) ve bir kamera aparatına sahip bileşik bir mikroskop (veya DIC, aşağıya bakınız) kullanarak hazırlanan lamı görüntüleyin.
NOT: Hücrelerin diferansiyel girişim kontrast (DIC) mikroskobunun10 sağladığı kontrastla görülmesi çok daha kolaydır. Mümkünse, yüksek kaliteli görüntüler için bu tip bir mikroskop kullanın. Rutin analizler ve Zn2+-kısıtlı büyüme durumunun doğrulanması için standart bir bileşik ışık mikroskobu yeterlidir. - Lamın odak düzleminde olan (yani hücrenin tüm uzunluğu görünür durumdadır) ve hareket etmeyen birden fazla hücrenin bulunduğu alanların fotoğraflarını çekin. En az 100 hücre ölçülecek şekilde, lamın farklı alanlarından (veya aynı kültürün birden fazla lamından) yeterli sayıda fotoğraf kaydedin.
- Aynı mikroskop ve objektifi kullanarak bir kalibrasyon lamının görüntüsünü alın.
- Fiji27 programında, kalibrasyon lamının uzunluğu boyunca bir çizgi çizmek için düz çizgi aracını kullanın. Analyze > Set scale seçeneğini belirleyin ve ölçek çubuğunun bilinen mesafesini ve birimini girin. Ölçeği sonraki tüm görüntülere ve ölçümlere uygulamak için Global seçeneğini belirleyin.
- Bir mikroskop fotoğrafını açın. Bir hücrenin uzunluğu boyunca bir çizgi çizmek için düz çizgi aracını kullanın ve hücreyi ölçmek için klavyedeki M tuşuna basın. Her kültürden en az 100 hücreyi ölçün.
- Fiji'deki açılır pencerede oluşturulan uzunluk verilerini bir hesap çizelgesi yazılımına kopyalayın veya istatistiksel analiz için virgülle ayrılmış değerler (.csv) dosyası olarak kaydedin.
5. Zn büyütme için modifikasyonlar2+-sınırlı M. tuberculosis (Mtb)
NOT: Mtb-H37Rv'nin aksine, Mtb-Aux L-lösin ve D-pantotenat sentezleyemez ve bu takviyeler besiyerine eklenir28Mtb-Aux için yapılan takviye, Zn'yi etkilememektedir.2+ kısıtlılık ve her iki suş ZLM'de benzer fenotipler sergilemektedir23Bu protokol, daha önce yayınlanmış bir protokolden modifiye edilmiştir.23temel farkın, topaklanmayı azaltmak ve makrofaj enfeksiyonları gibi sonraki uygulamalar için gerekli olan tek hücre zenginleştirmesine olanak sağlamak amacıyla kültürlerin 10 gün yerine 8 gün boyunca büyütülmesi olmasıdır. Diğer küçük farklılıklar için lütfen orijinal yayına bakınız.23İnokülasyon yöntemi, ...-den farklıdır M. smegmatis ...nın büyümesini başlatmak için gereken çok daha yüksek inokulum miktarı nedeniyle M. tuberculosis.
- Mtb-Aux için tüm besiyerlerine ek olarak 50 µg/mL L-leusin ve 48 µg/mL D-pantotenat takviyesi sağlayın. 50 mg/mL L-leusin ve 48 mg/mL kalsiyum D-pantotenat içeren 1000x stok çözeltilerini 0,2 µm'lik bir filtre ile filtre sterilizasyonuna tabi tutun ve sterilize edilmiş besiyerlerine ekleyin.
- Çözülmüş gliserol stok hücrelerinden 1 mL'yi aseptik olarak 14 mL'lik yuvarlak tabanlı kapaklı bir tüpteki (Mtb-Aux için) veya 50 mL'lik bir biyoreaktör tüpteki (Mtb-H37Rv için) 4 mL 7H9-ADC'ye ekleyin.
- Kültür OD600 ~1 değerine ulaşana kadar 37 °C'de çalkalamasız inkübe edin. Bu işlem yaklaşık 1 hafta sürecektir. Kültürü, tüpü bir biyogüvenlik kabininde açıp kültürü karıştırmak için birkaç kez pipetleyerek günde bir kez havalandırın.
- Durgun kültürden 1 mL'yi, 250 mL'lik havalandırmalı plastik bir flask içindeki 50 mL 7H9-ADC'ye inoküle edin. 7H9-ADC içindeki bir adet 50 mL'lik kültür, suş ve koşul başına (örneğin, ZLM ve ZRM'deki yabanı tip) biyolojik triplikatlar için yeterlidir. İnokülasyondan önce kültürün 5-10 dakika bekletilmesine izin vererek kümelerin tüpün dibine çökmesini sağlayın ve kültürü üstten alarak büyük kümelerin (yani büyük hücre agregatlarının) oluşmasını önlemeye dikkat edin.
NOT: Büyük kümelerle yapılan inokülasyon, kültür normalizasyonunu ve tekrarlanabilirliği etkileyen kümeli kültürler oluşturur. - Kültür OD600 0,5-0,8 (orta-log fazı) değerine ulaşana kadar 37 °C'de 100 rpm hızında çalkalamalı olarak inkübe edin. Bu işlem 3-5 gün sürecektir.
- Kültürü 50 mL'lik konik bir tüpe aktarın ve hücreleri oda sıcaklığında 10 dakika boyunca 3.000 x g santrifügasyon ile peletleyin. Süpernatantın 40 mL'sini serolojik bir pipetle aspire ederek ve kalan süpernatantı bir P1000 mikropipetle uzaklaştırarak atın.
NOT: Bu adım, 7H9-ADC besiyerinden gelen Zn2+ kalıntısını azaltmak için kritiktir. - Peleti 5 mL ZLM içinde resüspanse edin ve konik tüpteki toplam kültür hacmini ZLM ile 50 mL'ye tamamlayın.
- Hücreleri peletlemek için oda sıcaklığında 10 dakika boyunca 3.000 x g santrifügasyonu tekrarlayın. Süpernatantı atın. Hücre peletini adım 5.7'de açıklandığı gibi 50 mL nihai hacme resüspanse edin.
- Yıkanmış tohum hücrelerinin OD600 değerini ölçün ve aşağıdaki denklemi kullanarak 50 mL'de 0,05 (Mtb-H37Rv) veya 0,08 (Mtb-Aux) başlangıç OD600 değeri elde etmek için gereken hacmi hesaplayın:
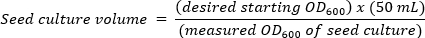
NOT: 0,05 başlangıç OD600 değeriyle Mtb-Aux büyümesi tutarsızdır; bu nedenle, tutarlı büyüme için 0,08 gibi daha yüksek bir OD600 kullanılır. - Adım 5.9'da hesaplanan tohum kültürü hacmini yeni bir 50 mL'lik konik tüpe aktarın ve hacmi ZLM ile 50 mL'ye tamamlayın. Yıkanmış ve normalize edilmiş kültürü konik tüpten, adım 1'de açıklandığı gibi hazırlanan plastik Erlenmeyer flasklara boşaltın. Her suş ve koşul için tüm biyolojik tekrarlar için aynı konik tüpü kullanarak işlemi tekrarlayın.
- Zn2+ sınırlaması olmadan büyütülen kültürler için (yani, Zn2+-zengin besiyerleri, ZRM), 6 µM ZnSO4 nihai konsantrasyonuna ulaşacak şekilde 30 µL steril 10 mM ZnSO4 doğrudan kültür flasklarına ekleyin.
- Kültür flasklarını 37 °C'de 100 rpm hızında çalkalamalı olarak 8 gün boyunca inkübe edin. Büyüme boyunca OD600 ve F420 floresansını adım 3'te açıklandığı gibi ölçün. Büyümenin ilk birkaç günü içinde kümeli olan kültürleri (yani, kültür bulanık görünmüyorsa ve kültür boyunca kümeler varsa) atın.
NOT: İdeal olarak, kültürler büyümenin ilk birkaç günü boyunca çoğunlukla planktoniktir (yani, gözle görülebilen büyük kümelerden arınmıştır). Mtb kültürleri, özellikle ZLM kültürleri, büyüme boyunca giderek daha fazla kümeli hale gelir ve geç log fazında besiyerinin yüzeyinde pul şeklinde yüzen kümeler beklenir23.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Sonuçlar
...’nın biyobelirteç fenotipleri M. smegmatis
Yabanı tip M. smegmatis Zn düzeyine ulaşan ZLM içinde büyütülmüş kültürler2+- büyüme sınırlayıcı koşullar altında, Zn altında büyütülmüş hücrelerle karşılaştırıldığında üç ana biyobelirteç fenotipine sahiptir2+-yeterli koşullar: [1] azalmış OD600, [2] uzamış hücreler ve [3] 420 nm'de azalmış pik floresans. AltRP'lerden yoksun mutant (ΔaltRP) aynı Zn değerine sahip değildir2+...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Alt-ribozomların mekanik temelleri üzerindeki bilgi boşluğuna önemli bir katkı, in vitro Zn2+ sınırlayıcı koşullara ulaşmanın zorluğudur. Laboratuvar ortamında eser Zn2+ kontaminasyonu yaygındır; bu nedenle, tekrarlanabilir Zn2+ ile sınırlı büyüme koşullarına ulaşmak zordur. Zn2+ kontaminasyonu çeşitli kaynaklardan kaynaklanabilir, ancak en önemli ve yaygın kontaminasyon ve değişkenlik kaynağı laboratuvar gereçlerini durulamak ve ortam yapmak için kullanılan ultra saf ...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Yazarların herhangi bir çıkar çatışması yoktur.
Teşekkürler
Bu çalışma, Ulusal Bilim Vakfı (NSF) KARİYER Ödülü 1844854, Amerikan Akciğer Derneği İnovasyon Ödülü IA -937538 ve Ulusal Sağlık Enstitüsü (NIH) NIAID R21 AI109293 tarafından finanse edilmiştir. Allexa D. Burger'in şu anki adresi, Mānoa, Honolulu, Hawaii'deki Hawaii Üniversitesi, Pasifik Biyobilimler Araştırma Merkezi'dir. ABD.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 1000 mL Vakum Filtrasyon Sistemleri, Standart Hat | VWR | 10040-440 | |
| 125 mL Erlenmeyer Çalkalayıcı Şişeleri | Greiner Bio-One | 679501 | |
| 14 mL Kültür Tüpleri, Plastik, Çift Konumlu Kapaklı | VWR | 60818-725 | |
| 250 mL Erlenmeyer Çalkalayıcı Şişeleri | Greiner Bio-One | 679502 | |
| 40X-1000X Lab Binoküler Biyolojik Bileşiği Mikroskop | Omax | M82EZ | |
| 50 mL Biyoreaksiyon Tüpleri, Steril | VWR | 76211-286 | |
| 50 mL Bayrak Kapaklı Yüksek Performanslı Santrifüj Tüpleri | VWR | 89039-656 | |
| Alcojet Az Köpüren Toz Deterjan | Alconox | 1404 | |
| Amonyum demir (III) sitrat, kahverengi | Thermo Scientific | AAA1119930 | MW: 265 g / mol, 1M çözelti için 5 mL ultra saf suya 1.325 g ekleyin; 4 ° C'de ışıktan korunarak saklayın |
| Sığır serum albümini | Thermo Scientific | J10857-A1 | |
| Kalsiyum D-Pantotenat | Thermo Scientific | AC243300050 | |
| Katalaz | Sigma-Aldrich | C1345-10G | |
| Sitrik asit susuz, kristal | Fisher Scientific | BP339-500 | |
| Dekstroz susuz | Fisher Scientific | D14-500 | |
| Difco Middlebrook 7H9 Et Suyu BD | Teşhis | 271310 | |
| Hücre Yoğunluğunun Belirlenmesi için DiluPhotometer OD600 ve Bradford Tahlilleri | Implen | OD600-10 | |
| GENios FL Mikroplaka Okuyucu | Tecan | Durdurulan | |
| Gliserol | Fisher Scientific | G33-4 | |
| Infinite M200 PRO Çok Modlu Mikroplaka Okuyucu | Tecan | LGE140213-20BL | |
| L-Asparagin | Termo Bilimsel | AAB2147336 | |
| L-Lösin | Termo Bilimsel | A1231122 | |
| Macrofire SP CCD kamera | Optronics | Olympus mikroskobu ile kullanım için | |
| Magnezyum sülfat heptahidrat | VWR | 97062-134 | |
| Milli-Q Doğrudan 8 Su Arıtma Sistemi | Millipore | C85358 | |
| Moticam X3 | Motic | Durduruldu, yerini Moticam X5 Plus aldı; bileşik mikroskop ile kullanım için | |
| Oleik asit | Thermo Scientific | 031997-14 | |
| Olympus BX51 dik mikroskop | Olympus | Durduruldu, BX53M ile değiştirildi | |
| Potasyum fosfat, monobazik | Fisher Scientific | BP362-500 | |
| Yarı Mikro İki Taraflı Tek Kullanımlık Plastik Küvetler | VWR | 97000-590 | |
| Sodyum klorür, kristal | VWR | VW1494-01 | |
| Sodyum hidroksit | Fisher Scientific | S318-500 | |
| Tween 80 | MP Biyomedikaller | 103170 | |
| Çinko sülfür heptahidrat, kristal/ACS | MP Biyomedikal | 219145290 |
Kaynaklar
- Alloway, B. Soil factors associated with zinc deficiency in crops and humans. Environ Geochem Health. 31 (5), 537-548 (2009).
- Middag, R., de Baar, H. J. W., Bruland, K. W. The relationships between dissolved zinc and major nutrients phosphate and silicate along the GEOTRACES GA02 transect in the west Atlantic ocean. Global Biogeochem Cycles. 33 (1), 63-84 (2019).
- Corbin, B. D., et al. Metal chelation and inhibition of bacterial growth in tissue abscesses. Science. 319 (5865), 962-965 (2008).
- Panina, E. M., Mironov, A. A., Gelfand, M. S. Comparative genomics of bacterial zinc regulons: Enhanced ion transport, pathogenesis, and rearrangement of ribosomal proteins. Proc Natl Acad Sci. 100 (17), 9912-9917 (2003).
- Outten, C. E., O’Halloran, T. V. Femtomolar sensitivity of metalloregulatory proteins controlling zinc homeostasis. Science. 292 (5526), 2488-2492 (2001).
- Merchant, S. S., Helmann, J. D. Elemental economy: microbial strategies for optimizing growth in the face of nutrient limitation. Adv Micro Physiol. 60, 91-210 (2012).
- Makarova, K. S., Ponomarev, V. A., Koonin, E. V. Two C or not two C: recurrent disruption of Zn-ribbons, gene duplication, lineage-specific gene loss, and horizontal gene transfer in evolution of bacterial ribosomal proteins. Genom Biol. 2 (9), RESEARCH 0033(2001).
- Yutin, N., Puigbò, P., Koonin, E. V., Wolf, Y. I. Phylogenomics of prokaryotic ribosomal proteins. PLoS One. 7 (5), e36972(2012).
- Prisic, S., et al. Zinc regulates a switch between primary and alternative S18 ribosomal proteins in Mycobacterium tuberculosis. Mol Microbiol. 97 (2), 263-280 (2015).
- Dow, A., Prisic, S. Alternative ribosomal proteins are required for growth and morphogenesis of Mycobacterium smegmatis under zinc limiting conditions. PLoS One. 13 (4), e0196300(2018).
- Chen, Y. X., et al. Selective translation by alternative bacterial ribosomes. Proc Natl Acad Sci. 117 (32), 19487-19496 (2020).
- Natori, Y., et al. A fail-safe system for the ribosome under zinc-limiting conditions in Bacillus subtilis. Mol Microbiol. 63 (1), 294-307 (2007).
- Gabriel, S. E., Helmann, J. D. Contributions of Zur-controlled ribosomal proteins to growth under zinc starvation conditions. J Bacteriol. 191 (19), 6116-6122 (2009).
- Wolf, Y. I., Rogozin, I. B., Kondrashov, A. S., Koonin, E. V. Genome alignment, evolution of prokaryotic genome organization, and prediction of gene function using genomic context. Genom Res. 11 (3), 356-372 (2001).
- Akanuma, G., et al. Evolution of ribosomal protein S14 demonstrated by the reconstruction of chimeric ribosomes in Bacillus subtilis. J Bacteriol. 203 (10), e00599(2021).
- Owen, G. A., Pascoe, B., Kallifidas, D., Paget, M. S. B. Zinc-responsive regulation of alternative ribosomal protein genes in Streptomyces coelicolor involves Zur and σR. J Bacteriol. 189 (11), 4078-4086 (2007).
- Li, Y., et al. Zinc depletion induces ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 115 (32), 8191-8196 (2018).
- Li, Y., Corro, J. H., Palmer, C. D., Ojha, A. K. Progression from remodeling to hibernation of ribosomes in zinc-starved mycobacteria. Proc Natl Acad Sci. 117 (32), 19528-19537 (2020).
- Graham, A. I., et al. Severe zinc depletion of Escherichia coli. J Biol Chem. 284 (27), 18377-18389 (2009).
- Greening, C., et al. Physiology, biochemistry, and applications of F420- and Fo-dependent redox reactions. Microbiol Mol Biol Rev. 80 (2), 451-493 (2016).
- Gurumurthy, M., et al. A novel F 420 -dependent anti-oxidant mechanism protects Mycobacterium tuberculosis against oxidative stress and bactericidal agents. Mol Microbiol. 87 (4), 744-755 (2013).
- Patino, S., et al. Autofluorescence of mycobacteria as a tool for detection of Mycobacterium tuberculosis. J Clin Microbiol. 46 (10), 3296-3302 (2008).
- Dow, A., et al. Zinc limitation triggers anticipatory adaptations in Mycobacterium tuberculosis. PLoS Pathogens. 17 (5), e1009570(2021).
- Tobiasson, V., Dow, A., Prisic, S., Amunts, A. Zinc depletion does not necessarily induce ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 116 (7), 2395-2397 (2019).
- Dow, A., Burger, A., Marcantonio, E., Prisic, S. Multi-omics profiling specifies involvement of alternative ribosomal proteins in response to zinc limitation in Mycobacterium smegmatis. Front Microbiol. 13, 811774(2022).
- Singh, A. K., Reyrat, J. Laboratory maintenance of Mycobacterium smegmatis. Curr Protoc Microbiol. Chapter 10, Unit10C.1(2009).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Meth. 9 (7), 676-682 (2012).
- Sampson, S. L., et al. Protection elicited by a double Leucine and Pantothenate auxotroph of Mycobacterium tuberculosis in Guinea pigs. Infect Immunity. 72 (5), 3031-3037 (2004).
- Cheeseman, P., Toms-Wood, A., Wolfe, R. S. Isolation and properties of a fluorescent compound factor420, from Methanobacterium strain M.o.H. J Bacteriol. 112 (1), 527-531 (1972).
- Wayne, L. G., Hayes, L. G. An in vitro model for sequential study of shiftdown of Mycobacterium tuberculosis through two stages of nonreplicating persistence. Infect Immunity. 64 (6), 2062-2069 (1996).
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Yeniden basım ve izinler
