Burada, nörolojik bozukluklar için mikroRNA (miRNA) biyobelirteçleri için kaynak olarak küçük hücre dışı veziküller elde etmek için minimum miktarda taze donmuş beyin dokusu kesitleri ve boyut dışlama kromatografisi ile birlikte erişilebilir bir yüksek hızlı santrifüjleme yöntemi kullanan bir protokol oluşturuyoruz.
Yöntem makalesi
Taze Dondurulmuş İnsan Beyninin Bölümlerinden Salınan Küçük Hücre Dışı Veziküllerde MikroRNA Yüklerinin Gücünden Yararlanma
Bu makalede
Özet
Özet
Küçük hücre dışı veziküller (sEV'ler), proteinler, lipitler ve nükleik asitler (mikroRNA, mRNA, DNA) gibi çeşitli yükleri taşıyan hücre-hücre iletişiminin çok önemli aracılarıdır. MikroRNA sEV kargosu, sEV'nin biyolojik engelleri (örneğin kan-beyin bariyeri) geçme ve çeşitli vücut sıvıları yoluyla erişilebilir hale gelme yeteneği nedeniyle güçlü bir non-invaziv hastalık biyobelirteç olarak potansiyel faydaya sahiptir. Vücut sıvılarındaki sEV biyobelirteçleri üzerine yapılan çok sayıda çalışmaya rağmen, doku veya hücreye özgü sEV alt popülasyonlarını, özellikle beyinden tanımlamak zor olmaya devam etmektedir. Çalışmamız, boyut dışlama kromatografisi (SEC) kullanarak sEV'leri minimum miktarda donmuş insan beyni bölümlerinden izole etmek için mevcut yöntemleri uyarlayarak bu zorluğu ele almaktadır.
Etik onaydan sonra, yaklaşık 250 μg taze dondurulmuş insan beyin dokusu (Manchester Beyin Bankası'ndan [İngiltere]'den elde edilen) 3 donör dokudan dilimlendi ve kollajenaz tip 3 / Hibernate-E solüsyonunda inkübe edildi, ara ajitasyon ile takip edildi, ardından seri santrifüjleme ve filtrasyon adımları izlendi. Daha sonra, sEV'ler SEC yöntemi kullanılarak izole edildi ve MISEV yönergeleri izlenerek karakterize edildi. Bu sEV'lerin içinden RNA'yı izole etmeden önce, çözelti, herhangi bir sEV olmayan hücre dışı RNA'yı çıkarmak için Proteinaz-K ve RNase-A ile muamele edildi. RNA miktarı ve kalitesi, qPCR ve küçük RNA dizileme deneyleri için kontrol edildi ve daha fazla işlendi.
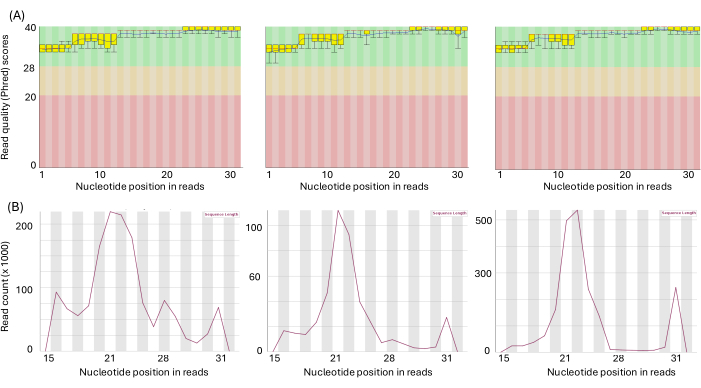
sEV'lerin varlığı, floresan nanopartikül izleme analizi (fNTA) ve yüzey belirteçleri için western blot (CD9, CD63, CD81) ile doğrulandı. Boyut dağılımı (50-200 nm) NTA ve elektron mikroskobu ile doğrulandı. Parçalanmış sEV'ler içindeki toplam RNA konsantrasyonu 3-9 ng/μL arasında değişmekteydi ve seçilen aday mikroRNA'lar için qPCR ile başarılı bir miktar tayini için kullanıldı. MiSeq'teki küçük RNA dizilimi, numune başına 1,4-5 milyon okuma ile yüksek kaliteli veriler (Q >32) sağladı.
Bu yöntem, sEV'lerin minimal beyin dokusu hacimlerinden verimli bir şekilde izole edilmesini ve karakterizasyonunu sağlar, invaziv olmayan biyobelirteç araştırmalarını kolaylaştırır ve nörodejeneratif hastalıklar ve potansiyel olarak diğer bozukluklar hakkında içgörüler sunarak adil hastalık biyobelirteç çalışmaları için umut vaat eder.
Giriş
Hücre dışı veziküller (EV'ler), tüm çok hücreli organizmalarda hücreler arası iletişimin kilit oyuncularından biridir1. EV'ler, proteinler, lipitler ve nükleik asitler gibi çeşitli kargo yüklerinin alıcı hücrelere transferini kolaylaştırabilen, hücreden türetilmiş lipid çift katmanlı zar parçacıklarıdır. EV'ler, 30 nm ila 1 μM arasında değişen geniş bir boyut aralığına sahip olabilir. Ortalama çap boyutu <200 nm olan lipide bağlı veziküller olarak tanımlanan küçük EV'ler (sEV'ler), kan-beyin bariyerini geçme yeteneğine sahiptir; bu nedenle, nörodejeneratif hastalıkların ve Alzheimer hastalığı (AD), frontotemporal demans (FTD), Parkinson hastalığı (PD) ve kanserler gibi diğer durumların prion benzeri yayılması ve alevlenmesinde rol oynamışlardır 2,3. Ayrıca, sEV'ler kan, beyin omurilik sıvısı (BOS), tükürük ve hatta idrar gibi bir dizi biyosıvıda bulunabileceğinden, faydalı kullanımları biyobelirteçler ve invaziv olmayan teşhis alanını kapsayabilir. Örneğin, AD araştırması, tau / Aβ ve hatta Aβ42 / Aβ404 gibi biyoakışkan patojenik protein oranlarının kullanımına işaret edebilir.
Bilinen bir sEV kargosu, mRNA'nın 3'-UTR bölgelerine bağlanan ve genellikle protein ekspresyonunu negatif olarak düzenleyen, yaklaşık 22 nükleotid uzunluğunda küçük, kodlamayan bir RNA molekülleri grubu olan mikroRNA'dır (miRNA). Birçok hücresel rolde yer alan miRNA'lar, kanserler ve nörodejeneratif hastalıklar dahil olmak üzere çeşitli hastalıkların patogenezinde de rol oynamaktadır. Cheng ve ark. AD hastalarındanserumdan türetilen sEV miRNA ekspresyon imzalarının yüksek verimli bir dizileme analizini gerçekleştirdi 5. Nörogörüntüleme kayıtları ve yaş, cinsiyet ve APOE ε4 alel sunumunun bilinen risk faktörleri ile birleştirildiğinde, sonuçların AD'yi %87 duyarlılık ve %77 özgüllük ile öngördüğü bulundu. Ayrıca araştırmalar, erken evre PD6'yı potansiyel olarak teşhis edebilen iki yukarı regüle edilmiş BOS miRNA'sı (miR-151a-3p, let-7f-5p) ve 3 aşağı regüle miRNA (miR-27a-3p, miR-125a-5p ve miR-423-5p) tanımlamıştır. Patolojik hastalıklarda, patolojik durum, hastalıkların belirli karakteristik semptomlarından önce gelebilirken, nörodejenerasyonda, patolojik işaretlerin birikimi bilişsel gerilemeden çok daha erken gerçekleşir.
MikroRNA'lar, çeşitli işlevleri ve daha yüksek dereceli epigenetik düzenlemeleri nedeniyle potansiyel olarak proteinlerden daha etkili bir biyobelirteçtir. Araştırmacılar, beyin dokusunu kullanarak, hastalıklar ve alt türleri için spesifik beyin kaynaklı sEV (BDsEV) miRNA imzalarını potansiyel olarak tanımlayabilirler. Örneğin, nöronal ve glial belirteçlere sahip sEV'ler farklı miRNA kargoları sunabilir ve analiz, hastalık tespiti için daha kesin yöntemlerle sonuçlanabilir. Ayrıca, BDsEV'lerin nöropatojenik proteinlerin transsinaptik yayılımında büyük bir rol oynadığı öne sürülmektedir7. Önceki raporlar, taze donmuş beyin dokusundan sEV'ler elde etmek için immünopresipitasyon ve yoğunluk gradyanı (sükroz gradyanı) ultrasantrifüj önermiştir 8,9. Bununla birlikte, bu yaklaşımlar, yüksek kaliteli sEV numuneleri elde etmek için ultrasantrifüj ve aşağı akış saflaştırma yöntemlerine sahip özel altyapı gerektirir10. Daha yeni raporlar, yaklaşımda çeşitli değişiklikler ve iyileştirmeler önermiştir 11,12,13; bununla birlikte, buna rağmen, insan dokularından sEV türevi mikroRNA'nın izolasyonu ve çalışması hala yaygın olarak uygulanmamaktadır. Bu protokolde açıklanan yaklaşım, bu tekniğe erişilebilirliği artırmak için beyin kaynaklı sEV çalışması için rafine, adım adım bir protokol sağlamayı amaçlamaktadır. Minimum miktarda beyin dokusu kullanarak bir protokol oluşturduk, bu protokolden boyut dışlama kromatografisi kullanarak saf sEV'leri izole ettik ve bu sEV'lerin mikroRNA kargosundan yüksek kaliteli yeni nesil dizileme verilerini gösterdik.
Protokol
Çalışma, Manchester Beyin Bankası (REC referansı 09/H0906/52) ve Salford Üniversitesi'ndeki etik kurul (Başvuru Kimliği: 3408) tarafından etik olarak onaylanmıştır.
1. Donmuş beyin dokusu kesitlerinde kollajenaz kullanılarak hücre içi matriksin parçalanması
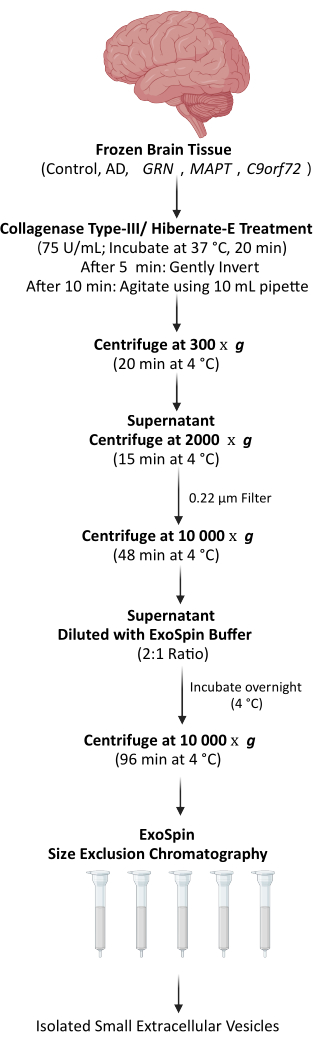
- Soğuk bir plaka üzerinde sterilize edilmiş bir neşter kullanarak 250 mg donmuş beyin dokusunu (yaklaşık 0.4 mm kalınlığında parçalar) ince bir şekilde dilimleyin ve 2 mL 75 U / mL kollajenaz tip-III / Hibernate-E solüsyonu ekleyin.
- Her numuneyi 37 °C'de bir su banyosunda 20 dakika inkübe edin. 5 dakikalık noktada, karıştırmak için her numuneyi iki kez ters çevirin; 10 dakikalık noktada, 10 mL plastik tek kullanımlık şerit kullanarak her bir numuneyi üç kez nazikçe pipetleyin.
- Her numuneyi buzun üzerine yerleştirin ve 1x Proteaz inhibitörü kokteyli ve 1x fosfataz inhibitörü ekleyin. Bu, enzim reaksiyonunu durdurur ve kollajenaz tip-III kullanılarak sindirimin son noktasıdır.
- Her beyin dokusu örneğini 300x g'da 4 ° C'de 10 dakika boyunca santrifüjleyin. Her bir süpernatanı toplayın ve daha fazla santrifüjü 2000 x g'da 4 ° C'de 15 dakika boyunca toplayın.
- Her süpernatanı tekrar toplayın ve 0,22 μm'lik bir filtreden süzün. Her bir süzüntüyü 10 000 x g'da 4 ° C'de 48 dakika boyunca santrifüjleyin.
- Süpernatanı toplayın ve her numuneye 2: 1 oranında yağış tamponu ekleyin. Gece boyunca 4 °C'de inkübe edin.
- Her bir numuneyi 10 000 x g'da 4 ° C'de 96 dakika boyunca santrifüjleyin ve peleti 100 μL hücre dışı vezikül (EV) içermeyen PBS'de yeniden süspanse edin.
2. Boyut dışlama kromatografi kolonlarının hazırlanması
- Kullanmadan önce, önceden hazırlanmış SEC sütununu oda sıcaklığında (RT) 15 dakika dengeleyin.
NOT: Vidalı kapaktan önce alt kapak çıkarılmalıdır. - Dengelemeden sonra, koruyucu tamponu kolonun üstünden çıkarın ve kolonu 250 μL EV içermeyen PBS kullanarak iki kez yıkayın. Her PBS yıkaması, yerçekimi yoluyla kolona girmek için bırakılır.
3. Boyut dışlama kromatografisi kullanılarak küçük hücre dışı veziküllerin izolasyonu
- Yeniden askıya alınmış peleti SEC kolonunun üstüne ekleyin ve sütunu 30 saniye boyunca 50 x g'de santrifüjleyin. Akışı atın.
- SEC kolonunun üstüne 180 μL EV içermeyen PBS ekleyin ve kolonu 1 dakika boyunca 50 x g'da santrifüjleyin, böylece beyinden türetilen sEV'lerin kolondan dışarı çıkmasına izin verin.
NOT: Protokolün yukarıda ayrıntıları verilen kısmı Şekil 1'de özetlenmiştir.
4. Küçük hücre dışı vezikül belirteçlerinin batı lekeleme ile doğrulanması
- Western blot analizinden önce sEV'leri parçalamak için (tüm membran ve sitozolik kargoların analiz edildiğinden emin olmak için), izole edilmiş sEV numunesini lizis ve ekstraksiyon tamponunda (1x proteaz inhibitörü ve 1x fosfataz inhibitörü) 1: 1 oranında seyreltin.
- Numuneyi 4 °C'de 30 dakika çalkalayın.
- Numuneyi 15 dakika boyunca 14 000 x g'da santrifüjleyin.
- Protein süpernatanı toplayın ve bir protein tahlil kiti kullanarak protein konsantrasyonlarını ölçün.
- Numuneleri 4x Laemmli tamponu ile karıştırın ve önceden boyanmış bir protein merdivenine karşı her bir oyuğa 20 μg protein yükleyin.
- Çözüldükten sonra, proteinleri 0.45 μm'lik bir nitroselüloz membrana aktarın. Transferden sonra, membranı% 5 BSA'da 2 saat boyunca bloke edin.
- Membranları gece boyunca birincil antikorlarla (Tablo 1) inkübe edin.
- Membranı yıkama tamponu ile üç kez yıkayın (PBS'de %1 Tween20) ve fare önleyici ikincil bir antikor kullanarak lekeleyin. Daha sonra, yıkama tamponu ile üç kez yıkayın (PBS'de %1 Tween20).
- Lekeleri görüntülemeden önce el yazmasındaki yukarıdaki adımları izleyin.
- Yaban turpu peroksidaz (HRP) Substratı kullanılarak görüntü.
5. Nanopartikül izleme analizi (NTA) ile küçük hücre dışı veziküllerin doğrulanması
- Numunedeki tüm parçacıkların konsantrasyonunu ve boyutunu analiz etmek için NTA gerçekleştirin. Bunu, her bir numuneyi PBS'de 1:1000'lik bir seyreltme faktöründe seyrelterek gerçekleştirin.
- Numuneyi NTA cihazına enjekte edin ve numuneyi 550 nm dalga boyunda okuyun. Bu aşamada, MISEV kılavuzlarında önerildiği gibi partikül başına protein miktarını (genellikle femtogram olarak ifade edilir) ölçmek için partikül miktarını kullanın.
- Daha sonra, floresan NTA için, PBS'de 1:1000'lik bir seyreltme faktörü ile turuncu hücre maskesini (CMO) (bir numune içindeki tüm biyolojik parçacıkları boyar) seyreltin. Bundan sonra, sEV numunesi kullanarak CMO boyasını 1:10'luk bir seyreltme faktörü ile seyreltin - Bu seyreltme adımını karanlıkta 4 °C'de 30 dakika inkübe edin.
- İkinci CMO seyreltmesini PBS kullanarak 1:1000'lik bir seyreltme faktörü ile seyreltin.
NOT: CMO boyasının son seyreltilmesi 1:10 000 000 olmalıdır. - NTA cihazını kullanarak 550 nm dalga boyunda her bir sEV örneğinin CMO'sunu okuyun.
- Tetraspanin floresan antikorları için (Malzeme Tablosuna bakınız), ilk olarak, PBS'deki her bir antikoru 1:10'luk bir seyreltme faktörü ile seyreltin. Bundan dolayı, boyaların her birini sEV numunesi kullanarak 1:10'luk bir seyreltme faktörü ile seyreltin - Seyreltme adımını karanlıkta 4 ° C'de 2 saat inkübe edin.
- İkinci antikor seyreltmesini PBS kullanarak 1:1000'lik bir seyreltme faktörü ile seyreltin.
NOT: Her tetraspanin antikorunun son seyreltilmesi 1:100 000 olmalıdır. - NTA cihazını kullanarak 550 nm dalga boyunda sEV örneğinin floresan antikor okumalarını okuyun.
6. Transmisyon elektron mikroskobu (TEM) ile küçük hücre dışı veziküllerin doğrulanması
NOT: Bu protokol Liverpool Üniversitesi Biyomedikal Mikroskopi Tesisi tarafından gerçekleştirilmiştir.
- İlk olarak, sEV örneklerini glutaraldehit kullanarak sabitleyin ve uranil asetat kullanarak lekeleyin.
- Derecelendirilmiş bir dizi alkol aracılığıyla, numuneyi TEM için hazır hale getirin.
- Uygun bir Transmisyon Elektron Mikroskobu kullanarak görüntü örnekleri.
7. Proteinaz K ve RNaz A tedavisi
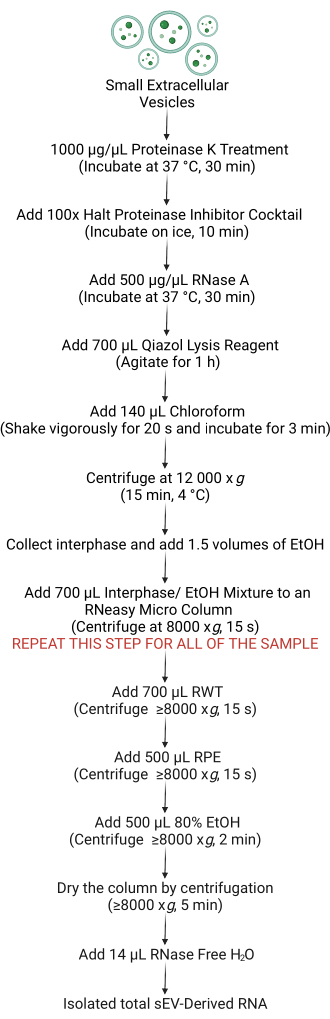
- 50 μL izole beyin türevlerine 1 μL 20 μg/μL proteinaz K ekleyin ve 37 °C'de 30 dakika inkübe edin.
- 1x proteinaz inhibitörü kokteyli ekleyerek her reaksiyonu durdurun ve 10 dakika buz üzerinde inkübe edin.
- İnkübasyondan sonra, her numuneye 1 μL 10 μg/μL RNase A ekleyin ve 37 °C'de 30 dakika daha inkübe edin.
NOT: Hemen 8. bölüme geçin.
8. Küçük hücre dışı veziküllerden toplam RNA izolasyonu
- Toplam RNA'yı izole etmek için, 50 μL beyin kaynaklı EV (BDsEV) örneğine 700 μL yüksek kaliteli RNA geri kazanım lizis reaktifi ekleyin. Her numuneyi 1 saat çalkalayın.
- 140 μL kloroform ekleyin, her numuneyi 20 saniye kuvvetlice çalkalayın ve RT'de 3 dakika inkübe etmeye bırakın.
- Numuneyi 12 000 x g'da 4 ° C'de 15 dakika santrifüjleyin ve interfazı numuneden toplayın. 1.5x hacimde %100 etanol ekleyin.
- 700 μL interfaz/etanol karışımı RNA izolasyon kolonları ekleyin ve RT'de 15 saniye boyunca ≥8000 x g'da santrifüjleyin.
NOT: Tüm interfaz/etanol örneklerini kullanarak bu adımı tekrarlayın. - Kolona 700 μL yıkama tamponu ekleyin ve 15 saniye boyunca ≥8000 x g'da santrifüjleyin. Akışı atın.
- 500 μL tampon RPE ekleyin ve tekrar 15 saniye boyunca ≥8000 x g'da santrifüjleyin. Akışı atın.
- 500 μL% 80 etanol ekleyin ve 2 dakika boyunca ≥8000 x g'da santrifüjleyin. Akışı atın.
- Bu noktada, kolonları kapak açıkken 5 dakika boyunca tam hızda (>8000 x g) santrifüj ederek kolon membranını kurutun.
- Kolonu yeni bir toplama tüpüne aktarın, doğrudan kolon membranına 14 μL RNaz içermeyen su ekleyin ve BDsEV'lerden toplam RNA'yı elde etmek için 1 dakika boyunca ≥8000 x g'da santrifüjleyin.
- MiRNA tahlil tipini seçerek, numunelerin bir miktar tayini florometresinde ölçüldüğü bir miRNA kantitasyon tahlil kiti kullanarak numunelerle toplam mikroRNA'yı ölçün.
9. Küçük RNA dizilimi
- Numune içinde miRNA'nın miktar tayini yapıldıktan sonra, Küçük RNA-Seq Kütüphanesi Hazırlık Kitini kullanarak bir cDNA kütüphanesi sentezleyin.
NOT: Bu protokolü kullanarak, kütüphane oluşturma dört adım içeriyordu: 3' adaptör ligasyonu, saflaştırma, 5' adaptör ligasyonu ve ters transkripsiyon - sonunda bir RNA/cDNA kütüphanesi oluşturulur. Kütüphane oluşturulduktan sonra, uç nokta PCR amplifikasyonu, indeks primerleri eklenerek (çoğullama amacıyla kullanılır) gerçekleşir ve ardından numuneler saflaştırılır. - RNA kalitesini test etmek için, her bir preparatın boyutunu ve tepe yoğunluğunu detaylandıran bir kalite kontrol uygulama testi kullanın.
- DNA konsantrasyonunu test etmek için, dsDNA tahlil tipini seçerek bir miktar belirleme florometresinde DNA miktar tayinini ölçün.
- Reaktif kitini kullanarak numuneleri Küçük RNA Seq için hazırlayın, ardından numuneler akış hücresine yüklenir.
Sonuçlar
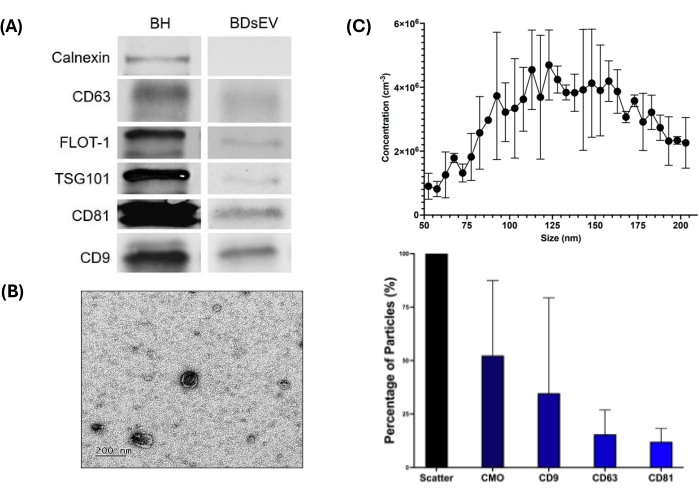
BDsEV'lerin varlığını doğrulamak için üç teknik kullanıldı: western blotting, NTA ve TEM (Şekil 3). Western blot sonuçları (Şekil 3A ve Ek Dosya 1), beş pozitif markörün tümünün (CD9, CD63, CD81, Flot-1 ve TSG101) varlığını ve sEV'lerde Calnexin yokluğunu (negatif kontrol olarak kullanılır) gösterir ve hücresel içerikle kontaminasyon olmadığını doğrular. Beklendiği gibi, beyin homojenatları (BH), test edilen belirteçler için sEV'lerde gözlemlenenden daha fazla protein gösterir. TEM görüntüleri, BDsEV'lerin morfolojisini ve numune içindeki nispi boyutlarını doğruladı (Şekil 3B), bu da nanoparçacık izleme analizi ile daha da doğrulandı (Şekil 3C).
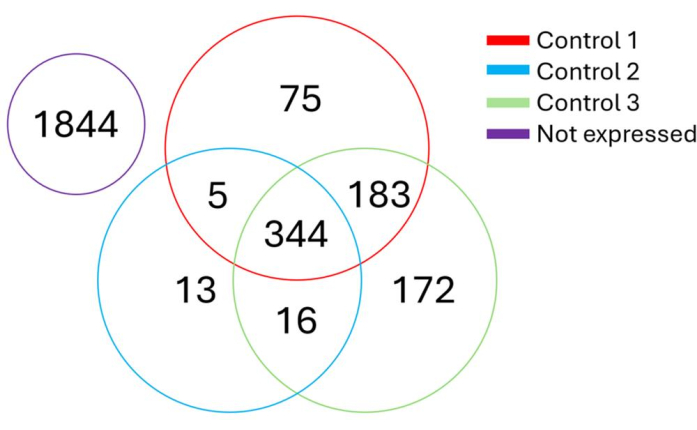
Şekil 3C (üst panel), 50-200 nm arasında kalan izole partikül boyutlarını göstermektedir. NTA verilerinden, saçılma sonucunu temsil edilen parçacıkların 0'ü olarak alırsak, CMO, bir lipid çift tabakasına sahip olan parçacıkların yaklaşık R.35'ini temsil eder (Şekil 3C, alt panel). Bu CMO lekeli partiküllerin 4.66'sı CD9, .49'u CD63 ve .01'i CD81 içeriyordu. NTA kontrol verileri için Ek Dosya 2'ye bakın.
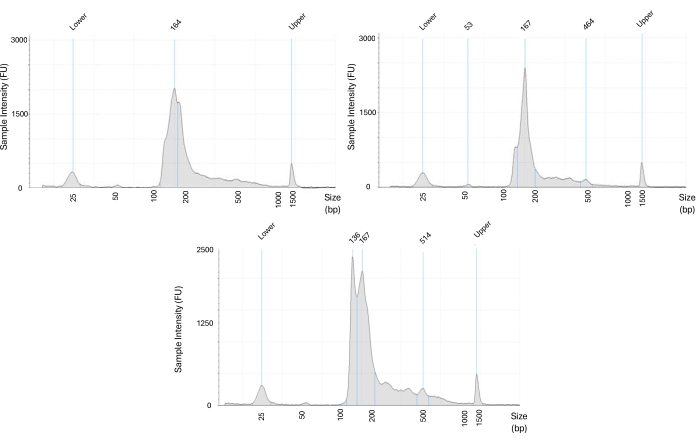
İzole RNA'nın kantitasyon verileri (Tablo 2), cDNA kütüphaneleri oluşturulurken normalize edilen değerler olan 3.24-8.76 (ng/μL) arasında değişen seviyeleri göstermektedir. TapeStation tahlil sonuçları (Şekil 4), yaklaşık 120-160 bp'lik ana zirveleri gösterir, bunun altındaki daha küçük zirveler yaklaşık 50 bp'dir ve diğer küçük zirveler yaklaşık 484 bp'den daha yüksektir.
Yeni nesil sıralama verileri için kalite kontrolleri, adaptör kırpma işleminden sonra çok yüksek kaliteli okumalar gösterir (Şekil 5A). Tüm dizi pozisyonları, 1000 nükleotidde 1'den daha az hata oranlarını gösteren >30'luk bir Phred puanı gösterir. Şekil 5B
Tartışma
Beyin kaynaklı küçük hücre dışı vezikülleri ve bunların mikroRNA yüklerini izole etmek için bu değiştirilmiş ve geliştirilmiş protokol, sonraki ürünlerin kalitesinden ve miktarından ödün vermeden minimum doku kullanmanın fizibilitesini göstermektedir. Biyobelirteç keşfi alanında, hücre ve doku tiplerine özgü moleküler tanımlayıcıların belirlenmesi, vücut sıvılarını kullanan non-invaziv tanı testlerinin daha erişilebilir yollarına yol açabilir. Ayrıca, burada açıklanan yaklaşım, farklı hücre tipleri (nöronal ve glial), doku tipleri (hipokampal doku ve prefrontal korteks dokusu) ve biyosıvılar içindeki spesifik sEV alt popülasyonlarının tanımlanması için bir çerçeve sağlar - bu da kargo yükleme imzaları, patofizyoloji ve hastalık kapsamı hakkında daha iyi bir anlayış sağlayacaktır. Daha önce Vella ve ark.'da ana hatlarıyla belirtildiği gibi, yoğunluk gradyanlı ultrasantrifüjleme (180.000 x g'a kadar hızlar kullanılarak) ile birlikte BDsEV izolasyonu için 450 mg ila 1 g kullanılması önerilmiştir8. Bu metodolojide, sEV'ler daha düşük miktarlarda (%>50 azalma) taze dondurulmuş beyin dokusu örnekleri (250-450 mg) kullanılarak başarılı bir şekilde izole edilmiştir. sEV'leri izole etmek için kullanılan beyin dokusu miktarının azalması, maliyetlerin ve sarf malzemelerinin azalmasına yol açar. Aynı şekilde, protokol, ultrasantrifüjleme (180.000 x g) yerine yüksek hızlı santrifüjleme (10.000 x g) ile birleştirilmiş SEC uygulamasıyla daha erişilebilir hale getirildi.
fNTA ve TEM kullanarak, sEV'lerin boyut aralığı profilinin, MISEV yönergeleri13,14 tarafından önerildiği gibi karakteristik 30-200 nm boyut aralığına girdiğini ve TEM'in elde edilen sEV'lerin morfolojik doğrulamasını sağladığını belirledik. Şekil 3C'de ve Ek Dosya 4'te gösterildiği gibi, partiküllerin %>87'si <250 nm boyut aralığındadır ve numuneler ortalama olarak 10.56 fg protein/BDsEV göstermektedir. Küçük hücre dışı veziküllerin spesifik türleri, eksozomlar gibi karakteristik olarak daha küçük alt popülasyonların, biyogenezin doğası gereği düzensiz bir yapıya sahip olduğu söylenen mikro-parçacıklara kıyasla tek tip bir morfolojiye sahip olduğu gözlendiğinde, boyut ve şekil bakımından farklılık gösterir15. fNTA için, numunelerdeki toplam parçacıkları analiz etmek, boyut profili ve konsantrasyonların ayrıntılarını sağlamak için bir saçılma okuması (520 nm) üretildi. Okumalar, partiküllerin %50'sinden fazlasının biyolojik olduğunu (CMO'nun boyanması yoluyla), sEV'lerin boyut aralığına giren biyolojik partikül popülasyonlarının tetraspanin belirteçleri gösterdiğini ve CD9'un kontrol numunelerimizde en baskın olduğunu (%34.66) göstermektedir. Western blotlama için, karakteristik membran ve sitozolik protein kargolarının varlığı, sEV varlığına dair kanıt sağladı ve Calnexin yokluğu, BDsEV'lerin herhangi bir hücresel kontaminasyondan arınmış olduğunu doğruladı. Aşağı akış işleme için mevcut olan miRNA'nın sEV kargosunun bir parçası olduğundan (ve diğer hücre dışı RNA'nın değil) daha fazla emin olmak için, sEV'leri Proteinaz K ve RNaz A enzimleri ile tedavi ettik ve BDsEV'lerin dışındaki hücre dışı boşlukta harici olarak bulunan herhangi bir protein ve RNA'yı parçalamak için sEV zarlarını bozduk16.
Toplam RNA, sEV'lerden ekstrakte edildi ve qRT-PCR ve yeni nesil dizileme (küçük RNA için) gibi alt uygulamalar için hazırlandı. Kalite kontrol tahlillerini kullanan standart kontroller, dizileme için hazır yüksek kaliteli numuneler ve cDNA kütüphaneleri gösterdi. cDNA kütüphaneleri, yaklaşık 120-160 bp'de zirve yapar ve değişen uzunluklarda adaptör dizilerine sahip miRNA'dan türetilmiş cDNA zirvelerine atfedilir ve daha küçük zirveler potansiyel olarak adaptör dimerlerini temsil eder.
FASTQC ve CutAdapt kullanılarak yeni nesil dizileme verilerinin analizi, BDsEV miRNA'larından elde edilen yüksek kaliteli sonuçları göstermektedir. Şekil 5'te gösterildiği gibi, okunan her pozisyonun 30'dan (Q30) daha yüksek bir Q puanı vardır ve bu da 0.001-0.0001 (1000-10.000'de 1) hata olasılığını gösterir. Ayrıca, dizi uzunluğu dağılım analizi (Şekil 6), miRNA'nın karakteristik aralığına (19-25 bp) giren baskın pikleri gösterir, bu da elde edilen veriler için yüksek kalite ve özgüllük önerir.
Gelecekteki çok sayıda çalışma, yalnızca doku örneklerinin miktarını azaltmakla kalmayıp aynı zamanda reaktiflerin maliyetinden de tasarruf sağlayarak maliyet ve kaynak tasarrufu sağlamanın yanı sıra, gelişmiş erişilebilirliği nedeniyle bu yöntemden faydalanacaktır. Gerekli doku miktarındaki azalma (%>50) bu yöntemi de daha etik hale getirmektedir. Hassas sağlık alanındaki küresel çabalarla uyumlu olarak, burada ayrıntıları verilen iyileştirilmiş iş akışı, BDsEV'leri ve kargolarını kullanarak non-invaziv (veya minimal invaziv) rotalar aracılığıyla doğru hücre tipine özgü biyobelirteçlere başlamak için nispeten daha uygun fiyatlı araçlar sağlar. Bu, çok çeşitli nörolojik durumlar için kullanılabilir. Bu yöntemin olası bir sınırlaması, araştırmacıların sEV izolasyonu için insan beyni dışında bir doku kullanmak istemeleri durumunda protokolün ayarlanması gerekmesidir. Uzun vadede, bu geliştirilmiş yöntem, invaziv olmayan, dokuya özgü biyobelirteç keşfini ve doğrulamasını dünya çapında daha adil ve erişilebilir hale getirecektir.
Açıklamalar
Yazarların hiçbiri için herhangi bir çıkar çatışması yoktur.
Teşekkürler
Bu çalışma, Birleşik Krallık Alzheimer Derneği'nden Joseph Morgan'ın doktora öğrenciliği (Hibe numarası 549/SERA-52) ve Salford Üniversitesi'nin İnovasyon Stratejisi fonları (SEFA-39 hibesi) tarafından finanse edilmiştir. Beyin dokusu, Demans için Beyinler Ağı'nın Manchester beyin bankasından (REC Reference 09/H0906/52) elde edildi.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Sığır Serumu Albümin | Merck | A9418-100G | |
| Hücre Maskesi Turuncu Plazma Membran Lekesi | ThermoFisher Scientific | C10045 | |
| Kollajenaz Tip-III | Kök Hücre Teknolojileri | 07422 | |
| ExoSpin Sütunları ve Tampon | Hücre Yönlendirme Sistemleri Ltd. | EX01-50 | Bu kit, bu deneyde kullanılan SEC sütunlarını, yağış tamponunu ve EV içermeyen PBS'yi içerir. |
| Halt Proteaz İnhibitörü Kokteyli (100x) | ThermoFisher Scientific | 78429 | |
| Hibernate-E Medium | ThermoFisher Scientific | A1247601 | |
| Laemmli Numune Tamponu (4x) | BioRad | 1610747 | |
| Lexogen Küçük RNA-Seq Kütüphanesi Hazırlık Kiti | Lexogen | 052.24 | Bu kit, i7 İndeks primer plakalı Küçük RNA hazırlama reaktif kutusu içerir. |
| miRNeasy Mikro Kiti (50) | Qiagen | 217084 | Bu kit, yüksek kaliteli RNA geri kazanım lizis reaktifi (Qiazol), RNA izolasyon kolonları, izolasyon tamponları (RWT, RPE) ve RNaz içermeyen su içerir. |
| MiSeq Reaktif Kiti v3 | Illumina | MS-102-3001 | Bu, Illumina Hazırlama |
| Kiti Nitroselüloz Membran, 0.45 & mu; m | ThermoFisher Scientific | 88018 | |
| PE/Dazzle 594 anti-insan CD63 Antikoru | BioLegend | 143914 | fNTA Analizi için Kullanılan |
| PE/Dazzle 594 anti-insan CD81 Antikoru | BioLegend | 349520 | fNTA Analizi için Kullanılan |
| PE/Dazzle 594 anti-insan CD9 Antikoru | BioLegend | 312118 | fNTA Analizi için Kullanılır |
| PhosSTOP | Merck | ||
| Pierce BCA Protein Test Kiti | ThermoFisher Scientific | 23225 | |
| Proteinaz K | ThermoFisher Scientific | 25530049 | |
| Qubit mikroRNA Test Kiti | ThermoFisher Scientific | Q32880 | |
| Qubit 1X dsDNA HS test kiti | ThermoFisher Scientific | Q33230 | |
| Qubit 3.0 Florometre | ThermoFisher Scientific | Q33216 | |
| RIPA Lizis ve Ekstraksiyon Tamponu | ThermoFisher Scientific | 89901 | |
| RNase A | ThermoFisher Scientific | EN0531 | |
| SuperSignal West Femto Maksimum Hassasiyet Substratı | ThermoFisher Scientific | 34094 |
Kaynaklar
- Jia, Y., et al. Small extracellular vesicles isolation and separation: Current techniques, pending questions and clinical applications. Theranostics. 12 (15), 6548-6575 (2022).
- Fornari, S., Schäfer, A., Jucker, M., Goriely, A., Kuhl, E. Prion-like spreading of Alzheimer's disease within the brain's connectome. J R Soc Interface. 16 (159), 20190356(2019).
- Zhang, P., et al. Tumor-derived small extracellular vesicles in cancer invasion and metastasis: molecular mechanisms, and clinical significance. Mol Cancer. 23 (1), 18(2024).
- Constantinides, V., et al. CSF Aβ42 and Aβ42/ Aβ40 ratio in Alzheimer's disease and frontotemporal dementia. Diagnostics. 13 (4), 783(2023).
- Cheng, L., et al. Prognostic serum miRNA biomarkers associated with Alzheimer's disease shows concordance with neuropsychological and neuroimaging assessment. Mol Psychiatry. 20 (10), 1188-1196 (2015).
- Roser, A. E., Caldi Gomes, L., Schünemann, J., Maass, F., Lingor, P. Circulating miRNAs as diagnostic biomarkers for Parkinson's disease. Front Neurosci. 12, 625(2018).
- Jackson, N., Guerrero-Muñoz, M. J., Castillo-Carranza, D. L. The prion-like transmission of tau oligomers via exosomes. Front Aging Neurosci. 14, 974414(2022).
- Vella, L., et al. A rigorous method to enrich for exosomes from brain tissue. J Extracell Vesicles. 6 (1), 1348885(2017).
- Yousif, G., Qadri, S., Parray, A., Akhthar, N., Shuaib, A., Haik, Y. Exosomes derived neuronal markers: Immunoaffinity isolation and characterization. Neuromolecular Med. 24 (3), 339-351 (2022).
- Kumar, K., et al. Recent advances in microfluidic approaches for the isolation and detection of exosomes. TRAC-Trend Anal Chem. 159, 116912(2023).
- Ransom, L., et al. Human brain small extracellular vesicles contain selectively packaged, full-length mRNA. Cell Rep. 43 (4), 114061(2024).
- Gomes, P., et al. A novel isolation method for spontaneously released extracellular vesicles from brain tissue and its implication for stress-driven brain pathology. Cell Commun Signal. 21 (1), 35(2023).
- Welsh, J., et al. Minimal information for studies of extracellular vesicles (MISEV 2023): From basic to advanced approaches. J Extracell Vesicles. 13 (2), e12404(2023).
- Théry, C., et al. Minimal information for studies of extracellular vesicles 2018 (MISEV2018): a position statement of the International Society for Extracellular Vesicles and update of the MISEV2014 guidelines. J Extracell Vesicles. 7 (1), 1535750(2018).
- Pirisinu, M. The long journey of extracellular vesicles towards global scientific acclamation. Adv Pharm Bull. 13 (3), 489-501 (2023).
- Bender, A., Sullivan, B. P., Lillis, L., Posner, J. D. Enzymatic and chemical-based methods to inactivate endogenous blood ribonucleases for nucleic acid diagnostics. J Mol Diagn. 22 (8), 1030-1040 (2020).
Yeniden basım ve izinler
