Bu makale, farelerde ve sıçanlarda fiziksel kısıtlama stresi kullanarak stres tepkilerini indükleme prosedürlerini kapsar. Kemirgen modellerinde kısıtlama stresi seçerken ve kullanırken dikkat edilmesi gereken ek hususlar tartışılmaktadır.
Yöntem makalesi
Farelerde ve sıçanlarda stresi indüklemek için kısıtlama
Bu makalede
Özet
Özet
Tüm hayvan türlerinde, stresli koşullara maruz kalmak stres tepkilerine neden olur. Kemirgen modellerini kullanarak stresin etkilerini incelemenin bir yöntemi, kısıtlama stresi prosedürüdür. Kısıtlama stresi, fizyoloji, genetik, nörobiyoloji, immünoloji ve stresten etkilenen diğer sistemlerdeki değişiklikleri araştırmak için onlarca yıldır kullanılmaktadır. Prosedürün gerçekleştirilmesinin kolaylığı, düşük maliyet ve strese maruz kalmanın yoğunluğu ve süresi için ölçeklendirilebilecek çok sayıda değişiklik nedeniyle, geniş bir çalışma literatürü farelerde ve sıçanlarda kısıtlama stresi kullanmıştır. Bir örnek olarak, bu çalışma, transgenik farelerde kısıtlama stresinin plazma kortikosteron seviyeleri ve optogenetik olarak indüklenen norepinefrin salınımı üzerindeki etkisini gösteren daha önce yayınlanmış verileri sunmaktadır. Akut kısıtlama stresi plazma kortikosteron seviyelerini arttırdı, ancak bu etki farelerde tekrarlanan kısıtlama stresini takiben köreldi. Bununla birlikte, stria terminalisin yatak çekirdeğinde uyarılmış norepinefrin salınımı sadece tekrar kısıtlama stres grubunda artmıştır. Bu veriler, bağımlı ölçüler üzerindeki kısıtlama parametrelerinin önemli hususlarını vurgulamaktadır. Karşılaştırma için sıçanlarda kısıtlama stresinin ek açıklamaları da dahil edilmiştir. Son olarak, kısıtlama parametrelerinin (örneğin, akut ve kronik) ve hayvan deneklerin özelliklerinin (suş, cinsiyet, yaş) etkisi tartışılmaktadır.
Giriş
Evrensel stres deneyimi nedeniyle, strese maruz kalmayı takiben değişen tepkilerin mekanizmalarına ilişkin araştırmalar, birkaç on yıl boyunca tutarlı bir araştırma alanı olmuştur1. Bu araştırmalar, genellikle tekrarlanan ve / veya öngörülemeyen stres faktörlerine uzun süre maruz kalmaktan kaynaklanan, fizyolojik ve davranışsal işlevlerde uyumsuz değişikliklere neden olan stres deneyimlerinden akut stres faktörlerine uyum ve duyarlılığı artırmak için faydalı olabilecek stres yönlerini ayrıştırmaya başlamıştır. Stresörlere verilen bu tepkilerin çoğu beyin fonksiyonunu, hipotalamik-hipofiz-adrenal (HPA) eksenini, otonom sinir sisteminin sempatik ve parasempatik dallarını ve bağışıklık sistemini etkiler. Stresörlere maruz kalma, primatlarda ve diğer birçok memelide kortizol ve kemirgenlerde kortikosteron gibi adrenokortikotropik hormon (ACTH) ve glukokortikoid hormonları artırmak için kortikotropin salınan faktörün (CRF) artan salınımını başlatır2. Ek olarak, epinefrin ve norepinefrin, sempatik sinir sistemi yanıtının bir parçası olarak çevre ve beyin boyunca salınır3. Bu kimyasal sinyaller daha sonra bağışıklık fonksiyonu, metabolizma, üreme ve nöronal reaktivite gibi bir dizi fizyolojik sistemle etkileşime girer4.
Stresli deneyimler, diğerlerinin yanı sıra anksiyete ve depresyondaki artışlar, öğrenme ve hafızadaki değişiklikler, karar verme ve yürütme işlevindeki bozukluklar ve madde kullanım bozukluğuna yatkınlık dahil olmak üzere sayısız durumla ilişkilidir. Bu etkilerin her biri hem stres etkeninin parametrelerine hem de stres yaşayan bireyin özelliklerinebağlıdır 4. Stres etkeninin doğası, akut veya kronik ve kontrol edilebilir veya öngörülemeyen olarak, gözlemlenen sonuçları önemli ölçüde değiştirir. Stresin bu yönleri, insan deneyimleri ve hayvan modelleri arasında tutarlı görünmektedir. Bu nedenle, hayvan çalışmalarında stresi modellemek için, türe, cinsiyete ve duruma uygun strese maruz kalma parametrelerini seçmek için dikkatli bir değerlendirme yapılmalıdır.
Kemirgenlerle yapılan çalışmalar için bir dizi stresör mevcut olsa da (sosyal izolasyon stresi veya sosyal yenilgi gibi psikososyal stresörler, kortizol veya yohimbin uygulaması gibi farmakolojik stresörler, ayak şoku ve kısıtlama gibi fiziksel stresörler ve koşullar arasında birleşen veya değişen multimodal stresörler dahil), bu makalenin odak noktası farelerde ve sıçanlarda kısıtlama stresinin kullanımı üzerinde olacaktır. Kısıtlama stresi, gerçekleştirilmesi kolay, ucuz, çeşitli büyüklükteki kemirgenlere göre ayarlanabilir, hem akut hem de uzun vadeli dönemlere göre ölçeklenebilir ve nadiren özneye olumsuz zarar verdiği için diğer stres faktörlerine göre seçilebilir5. Bu makale, kısıtlama stresine maruz kalmanın neden olduğu kalıcı değişikliklere odaklansa da, bazı çalışmalar, stres etkeninden kaçışta yer alan aktif başa çıkma davranışları da dahil olmak üzere, kısıtlama sırasında ortaya çıkan mekanizmaları ve davranışları incelemek için kemirgenlerde kısıtlamayı kullanır 6,7,8,9. Bu makalenin amacı, kısıtlama stresinin fareler veya sıçan denekler üzerindeki etkisini değerlendirmek için metodolojik değerlendirmeler sağlamaktır.
Protokol
Deneyler ve protokoller, Chapel Hill'deki Kuzey Carolina Üniversitesi'ndeki (fareler) ve Fairfield Üniversitesi'ndeki (sıçanlar) Kurumsal Hayvan Bakımı ve Kullanımı Komitesi (IACUC) tarafından onaylanmıştır ve NIH10'un yönergelerini takip etmektedir.
1. Farelerde kısıtlama stresi
NOT: Fareler, stresin fizyoloji ve nöronal sistemler üzerindeki etkilerini incelerken bir dizi avantaj sunar. Transgenik fare hatlarının yaygınlığı ile, genler ve strese maruz kalma arasındaki etkileşimlere ilişkin mekanik araştırmalar kolayca yapılabilir. Transgenik veya vahşi tip fareler kullanılıp kullanılmadığı, arka plan suşunun dikkate alınması önerilir. Ek olarak, büyüklükleri ve sosyal konutları nedeniyle fareler, diğer türlere göre alan kullanımında avantaj sunar.
- Kısıtlama stresine maruz kalma
- Fareleri rastgele olarak ev kafesi kontrolüne, akut kısıtlama stresine veya kronik kısıtlama stres gruplarına atayın.
- Strese maruz kalma süresini belirleyin. Akut stresörler için, kısıtlama aparatında kapalı olarak 5 dakikadan 12 saate kadar süren tek bir seans kullanın. Kronik stresörler için, seansın akut stresörün uzunluğuyla eşleştiğinden, ancak 3 gün kadar kısa ve 21 gün boyunca günlük olarak tekrarlandığından emin olun.
NOT: Fareler kısıtlama koşullarındayken yiyecek ve suya erişemeyecekleri için, ev kafesi kontrol hayvanlarının da yiyecek ve suya erişiminin olmaması gerekip gerekmediğini düşünün. - Havalandırma delikleri eklemek için 50 mL konik tüpleri değiştirin.
- Borunun tüm alanlarında hava akışını sağlamak için her bir konik borunun etrafında eşit delikler açmak için 1/8" uçlu bir elektrikli matkap kullanın.
- Bu delikleri, farenin tüpte hangi yöne baktığına bakılmaksızın farenin havaya erişmesine izin verecek şekilde yerleştirin. Değişiklikten sonra keskin kenar kalmadığından emin olun.
NOT: Bu modifiye edilmiş konik tüpler çoğu yetişkin fare için etkili olmalıdır (~ 20-40 g), ancak küçük / genç fareleri veya daha büyük suşları kısıtlayamaz.
- Hayvan barınağı ve davranışsal testlerden ayrı bir test odasında, kısıtlamaya atanan hayvanı, fareyi belirlenen kısıtlama uzunluğu boyunca tüpte sınırlamak için kapak takılı olarak modifiye edilmiş konik tüpe yerleştirin.
NOT: Test odası tasarımının özellikleri, tesisteki mevcut alana göre değişebilir; Oda, çeker ocaklar ve diğer laboratuvar ekipmanları ve/veya laboratuvar masaları/tezgahları içerebilir veya boş bir prosedür odası olabilir. Bununla birlikte, oda kurulumundan bağımsız olarak, stres tepkilerinde bağlam kaynaklı değişiklikleri önlemek için kısıtlama odası ortamı, tekrarlanan kısıtlama maruziyetleri üzerinde tutarlı kalmalıdır11. - Emniyet borusunu düz bir yüzeye yatay olarak yerleştirin. Gerekirse, tüpü laboratuvar bandı veya bir pipet havzası/reaktif haznesi ile sabitleyin, böylece fare içindeyken yuvarlanmaz.
NOT: Stres koşulları altında, fareler ultrasonik seslendirmeler üretir. Çalışma tasarımının diğer kısıtlanmış deneklerden ses izolasyonu gerektirip gerektirmediğini düşünün12. Kortikosteron ve stres tepkilerinin diğer belirteçleri sirkadiyen ritimleri takip eder. Bu nedenle, aydınlatma koşulları ve stres etkeninin zamanı ile ilgili değerlendirmeler yapılmalıdır. Stres grupları arasında, kısıtlama günün tutarlı bir saatinde, tercihen ışık döngüsünün 13,14,15 başlarında yapılmalıdır. Burada sunulan çalışma için, fareler ışıklar yandıktan sonra yaklaşık 3 saat boyunca kısıtlandı. - Kısıtlama stresi sırasında her hayvanı en az 20 dakikada bir izleyin. Hayvanın olağandışı tepkiler gösterip göstermediğini görsel olarak belirleyin (yavaş nefes alma, hareket eksikliği). Gözlenirse, fareyi emniyet tüpünden çıkarın, bir veterinerle iletişime geçin ve fareyi çalışmadan çıkarın.
- Fareyi ev kafesine geri koyun ve yiyecek ve suya erişim sağlayın.
2. Sıçanlarda kısıtlama stresi
NOT: Daha büyük kemirgenler olarak, sıçanların stresin etkilerini araştırırken göz önünde bulundurulması gereken avantajları vardır. Fareler gibi, sıçanlar da strese maruz kalmaya farklı tepkiler veren çeşitli suşlara sahiptir16,17. Ek olarak, sıçanların artan boyutu, sıçanların kendi kendine ilaç uygulaması gibi belirli davranışsal önlemlerle kullanılmasını kolaylaştırır.
- Kısıtlama stresine maruz kalma
- Fareyi rastgele olarak ev kafesi kontrolüne, akut kısıtlama stresine veya kronik kısıtlama stres gruplarına atayın.
- Strese maruz kalma süresini belirleyin. Akut stresörler için, kısıtlama aparatında kapalı olarak 5 dakikadan 12 saate kadar süren tek bir seans kullanın. Kronik stresörler için, seansın akut stresörün uzunluğuyla eşleştiğinden, ancak 3 gün kadar kısa ve 21 gün boyunca günlük olarak tekrarlandığından emin olun.
NOT: Sıçanlar kısıtlama durumundayken yiyecek ve suya erişemeyecekleri için, ev kafesi kontrol hayvanlarının da yiyecek ve suya erişiminin olmaması gerekip gerekmediğini düşünün. - Piyasada bulunan bir emniyet tüpü için aşağıda açıklanan adımları izleyin.
NOT: Sıçanlar için ticari olarak temin edilebilen emniyet tüpleri mevcuttur. Bu cihazlar, yuvarlak ve düz tabanlı seçeneklere sahip metal tel, kaplar ve plastik/pleksiglas tüpler dahil olmak üzere çeşitli tasarımlara sahiptir. Her seçeneğin kullanımı basittir.- Fareyi cihaza yerleştirin, ardından nesnenin boyutuna göre ayarlanmış bir fiş ekleyin ve yerine kilitleyin. Emniyet tüpüne yerleştirildiğinde, baştan kuyruğa dönüşleri önlemek için farenin sıkıca kapatıldığından ancak kolayca nefes alabildiğinden emin olun.
NOT: Bu cihazlar fareleri dizginlemek için tasarlanmıştır ve solunum için modifikasyona ihtiyaç duymaz. Bu çalışma, cihazı sabitlemek için tüpün altındaki bir platformda vantuz içeren kuyruk damarı tutucusunu (Malzeme Tablosu) kullanır. Bu cihazın ek bir yararı, kısıtlama sırasında tüpe veya kuyruk damarına kan alımı sırasında konunun takılması ve çıkarılması sırasında konunun kontrolü için kuyruğun cihazın dışından erişilebilir olmasıdır.
- Fareyi cihaza yerleştirin, ardından nesnenin boyutuna göre ayarlanmış bir fiş ekleyin ve yerine kilitleyin. Emniyet tüpüne yerleştirildiğinde, baştan kuyruğa dönüşleri önlemek için farenin sıkıca kapatıldığından ancak kolayca nefes alabildiğinden emin olun.
- Hayvan barınağı ve davranış testlerinden ayrı bir test odasında, kısıtlama ile atanan animaları, belirlenen kısıtlama uzunluğu boyunca kısıtlama tüpüne yerleştirin. Emniyet borusunu düz bir yüzeye yatay olarak yerleştirin.
NOT: Stres koşulları altında, sıçanlar ayrıca ultrasonik seslendirmeler üretir. Çalışma tasarımının diğer kısıtlanmış deneklerden ses izolasyonu gerektirip gerektirmediğini düşünün. - Kısıtlama stresi sırasında her hayvanı en az 20 dakikada bir izleyin. Hayvanın olağandışı tepkiler gösterip göstermediğini görsel olarak belirleyin (yavaş nefes alma, hareket eksikliği). Gözlenirse, fareyi emniyet tüpünden çıkarın, bir veterinerle iletişime geçin ve fareyi çalışmadan çıkarın.
- Fareyi ev kafesine geri koyun ve yiyecek ve suya erişim sağlayın.
3. Stresin değerlendirilmesi
- HPA aktivasyonunun ölçülmesi
- Uygunsa, kısıtlama stresine maruz kaldıktan veya ev kafesinden çıkarıldıktan sonra, gövde kanını heparinize tüplere toplamak için denekleri hızla dekapite edin.
- Plazmayı santrifüjleme yoluyla izole edin ve plazma örneklerini -80 °C'de saklayın. Enzime bağlı bir immünosorbent testi (ELISA) kiti kullanarak kan kortikosteronunu analiz edin.
NOT: Kortikosteron genellikle strese maruz kalmanın ciddiyetinin, özellikle akut stresin bir okuması olarak kullanılmasına rağmen, kortikosteron seviyeleri her zaman strese bağlı davranış değişiklikleri ile ilişkili değildir6. Ayrıca, kortikosteron salınımını düzenleyen HPA ekseni tepkisi, aynı stres etkenine(18) tekrar tekrar maruz kalma ile alışkanlık haline gelir. Alternatif olarak, adrenokortikotrofik hormon (ACTH), akut stres etkeninin4 yoğunluğunun daha güvenilir bir ölçüsü olabilir. Stres etkeni maruziyetinin sona ermesini takiben yaklaşık bir saat boyunca yüksek kalır, ancak şiddetli ve uzun süreli (yaklaşık > 2 saat) stres üretimini yorabilir.
- Davranışsal etkiler
- Uygunsa, kısıtlama stresine maruz kaldıktan veya ev kafesinden çıkarıldıktan sonra, kemirgenin davranışsal performansını uygun davranışsal görevle değerlendirin.
NOT: Kısıtlamanın çeşitli davranış modelleri üzerindeki etkileri hakkında daha fazla bilgi tartışma bölümünde bulunabilir.
- Uygunsa, kısıtlama stresine maruz kaldıktan veya ev kafesinden çıkarıldıktan sonra, kemirgenin davranışsal performansını uygun davranışsal görevle değerlendirin.
- Nörobiyoloji
- Alternatif olarak veya ek olarak, kısıtlama stresine maruz kalma veya kontrolü takiben nörobiyolojik işlevi değerlendirin. Çok çeşitli tahliller, hücresel, sinaptik ve devre üzerindeki kısıtlama stresi etkilerini araştırabilir. Tahlillere bağlı olarak, seçilen analizi gerçekleştirmek için bir in vivo ölçüm cihazı implante edin veya beyin dokusunu alın.
NOT: Stresin protein sentezindeki hücre tipine özgü değişiklikler ve epigenetik modifikasyonlar üzerindeki etkileri, McEwen ve meslektaşları tarafından kapsamlı bir şekilde gözden geçirilmiştir1. Bu genetik ve protein modifikasyonları, sinaptik bağlantıları ve devreleri değiştirmek için plastisiteyi indükler. Bu çalışmaları yürütmek için, strese maruz kaldıktan sonra beyin dokusunu toplayın ve genomik, proteomik, ex vivo fizyoloji ve diğer analizleri yapın. Alternatif olarak, mikrodiyaliz, hızlı taramalı döngüsel voltametri (FSCV), fiber fotometri ve diğerleri gibi in vivo ölçümler yoluyla nörobiyolojik değişiklikleri değerlendirin. Bu yaklaşımlar, hem kısıtlama stresine maruz kalmayıtakiben 2,19 hem de şimdi kısıtlamasırasında 8,9,20 nörokimyasal salınımı ve nöronal aktivasyonu kaydeder. Kısıtlama stresinin etkilerinin altında yatan nörobiyolojik mekanizmaları değerlendirmek için araç kutusu hızla genişlemektedir ve stresin karmaşıklıklarına yeni bakış açıları kazandırmaktadır.
- Alternatif olarak veya ek olarak, kısıtlama stresine maruz kalma veya kontrolü takiben nörobiyolojik işlevi değerlendirin. Çok çeşitli tahliller, hücresel, sinaptik ve devre üzerindeki kısıtlama stresi etkilerini araştırabilir. Tahlillere bağlı olarak, seçilen analizi gerçekleştirmek için bir in vivo ölçüm cihazı implante edin veya beyin dokusunu alın.
Sonuçlar
Daha önce yayınlanmış bir çalışmada21, bu yazıda açıklanan kısıtlama stresi prosedürleri, kısıtlama stresinin kortizol ve norepinefrinin düzenlenmesi üzerindeki etkisini değerlendirmek için kullanıldı ve protokol 3.3'te belirtilen stresin neden olduğu nörobiyolojideki değişikliklerin geniş olasılıklarının altına düştü. Bu çalışmada, farelerin kısıtlanması için yukarıda açıklanan protokolü kullandık. Bu makalenin kısıtlama odağının kapsamı dışında kalan ek ayrıntılar, örneğin beyin bölgesinin gerekçesi, optogenetik stimülasyon parametreleri veya FSCV, atıfta bulunulan makalede bulunabilir.
Noradrenerjik nöronlarda seçici olarak channelrhodopsin eksprese eden erkek ve dişi transgenik fareler (DBH: Cre + /-:: Ai32 +/-) kullandık ve ex vivo FSCV21 ile stria terminalisin (BNST) yatak çekirdeğinde uyarılmış norepinefrin salınımını ölçtük. Fareler, protokol 1'de tarif edildiği gibi akut (2 saat) ve kronik olarak (5 gün boyunca 2 saat / gün) veya ev kafesi kontrolünde kısıtlandı. Maruziyeti takiben, protokol 3.1'de tarif edildiği gibi kortikosteron analizi için bazı deneklerden kan alındı. Akut kısıtlama stresinden hemen sonra, fareler yüksek kortikosteron seviyeleri gösterdi, ancak tekrarlanan stresin ardından yanıt köreldi (bkz. Şekil 1). Kısıtlama stresinin norepinefrin salınımı üzerindeki etkisini değerlendirmek için ek fareler kullanıldı. Son stres maruziyetinden 24 saat sonra, beyin dokusu hızla çıkarıldı ve BNST'de norepinefrin salınımını kaydetmek için dilimlendi. İlginç bir şekilde, akut kısıtlama uyarılmış norepinefrin salınımını etkilemedi, ancak tekrarlanan strese maruz kalma, stimülasyon parametreleri boyunca uyarılmış norepinefrin salınımında önemli bir artışa neden oldu (bkz. Şekil 2). Bu sonuçlar, protokol 2 17,22'de açıklanan yaklaşımlar kullanılarak sıçanlarda kısıtlama stresinin norepinefrin salınımı üzerindeki etkisine ilişkin önceki araştırmalarla birleşmektedir.

Şekil 1: Ev kafesi kontrollerinin plazmasındaki kortikosteron (naif) ve akut (tek) ve kronik (tekrarlayan) kısıtlama stresini takiben. Tek bir 2 saatlik akut kısıtlama stresi seansının ardından, plazma kortikosteron seviyeleri hem naif hem de tekrarlayan stres deneklerine kıyasla yükseldi. Sonuçlar ortalama ± SEM olarak ifade edilir. N = grup başına 5-6 fare. **p < 0.05, ***p < 0.005. Bu rakam Schmidt ve ark.21'in izniyle değiştirilmiştir. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
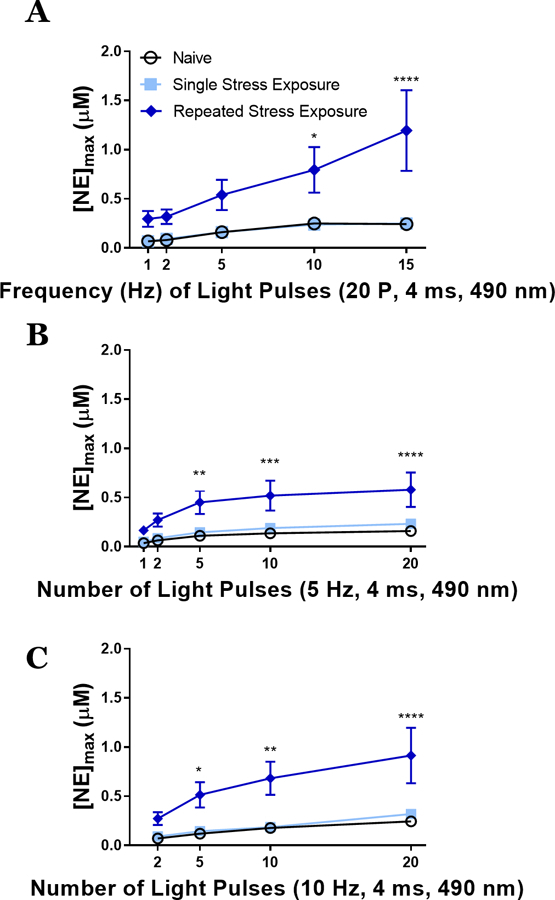
Şekil 2: Optogenetik olarak uyarılan norepinefrin salınımı, kronik (tekrarlayan) kısıtlama stresini takiben artar. Son stres maruziyetini takip eden gün, farelerin stria terminalisinin yatak çekirdeğinde optogenetik olarak uyarılmış norepinefrin salınımını ölçmek için ex vivo hızlı taramalı döngüsel voltametri yapıldı. (A) 20 darbe (20 P) stimülasyonunun frekans (Hz) varyasyonları, tekrarlanan stres grubunda daha fazla norepinefrin saldı. (B, C) 5 Hz (B) veya 10 Hz (C) stimülasyon frekansında darbe sayısındaki (2-20) değişiklikler, tekrarlanan stres grubunda daha fazla norepinefrin salınımına işaret etti. Ortalama ± SEM; n = 5−6 fare/grup, 7−8 dilim/grup sağlar. *p < 0.05, **p < 0.05, ***p < 0.005 ve ****p < 0.0001. Bu rakam Schmidt ve ark.21'in izniyle değiştirilmiştir. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
Tartışma
Kemirgen modellerinde stresin fizyolojik, nörobiyolojik ve davranışsal fonksiyonlar üzerindeki etkilerini araştırmak için kemirgenler için stres oluşturan koşullar kullanılmalıdır. Bu hususlar arasında, denekte stres tepkileri üreten koşullar da yer almaktadır. Kısıtlama, kemirgenlerde insanlardaki stres etkileriyle eşleşen fizyolojik ve davranışsal tepkiler üretmek için onaylanmış bir prosedürdür. Bu protokole benzer bir metodoloji kullanılarak, anksiyete, depresyon, ağrı ve madde kullanım bozukluğu dahil olmak üzere psikiyatrik bozukluk modelleriyle ilgili bir dizi moleküler, hücresel, endokrin ve fizyolojik yanıtı değerlendirmek için kısıtlama kullanılmıştır 1,19. Burada, yayınlanmış bir çalışmadan elde edilen veriler, kemirgenlerde bir kısıtlama örneği olarak sunulmaktadır, ancak kısıtlamanın etkileri, bu özel örneğin ötesinde, çok çeşitli bağımlı önlemlere kadar uzanmaktadır. Kısıtlama, bir stres etkeni olarak kullanılmak üzere seçilebilir, çünkü farelerde ve sıçanlarda gerçekleştirilmesi kolaydır, kurulması ucuzdur ve kullanılan parametrelere bağlı olarak çeşitli stres tepkileri seviyelerini indüklemek için uyarlanabilir.
Strese neden olan diğer yaklaşımlarla karşılaştırıldığında, kısıtlamanın çalışma tasarımı sırasında dikkate alınması gereken bazı sınırlamaları vardır 4,23. Özellikle, kısıtlama stresi her zaman aralıklı ayak şoku gibi diğer fiziksel stres faktörlerinde gözlenen davranış değişikliklerine neden olmaz24. Bu tutarsızlıklar, kısıtlamanın çeşitli ortamlarda ortaya çıkabilmesi avantajının bir sonucu olabilirken, ayak şoku daha çok şok ızgarası zeminleri ile donatılmış bir test odası ile sınırlıdır. Stres bağlamları, ortaya çıkan etkileri büyük ölçüde etkiler11. Ek olarak, geleneksel bir kısıtlama tüpü veya cihazı içinde hapsetmek bir dezavantajdır çünkü kısıtlama sırasında özneye erişimi sınırlar. Bu sınırlamanın üstesinden gelmek ve kısıtlama seansları sırasında nörobiyolojik veri toplama için bağlamaya izin vermek için "REcording Signal TRansients ACCessible IN a Tube (RESTRAINT)" gibi daha yeni kısıtlama cihazları geliştirilmiştir8,9,20. Bu engeli ele almak için başka bir yaklaşım, kısıtlamaya benzer bir teknik olarak hareketsizleştirme stresini kullanır - genellikle, hareketsizleştirme ve kısıtlama eşanlamlı olarak kullanılır, ancak önemli farklılıklarla25. İmmobilizasyon stresi, bir hayvanın kollarını, bacaklarını ve başını bir yüzeye sabitlemeyi içerirken, kısıtlama, kısıtlayıcı bir cihazın içine yerleştirmeyi içerir. Bu nedenle, immobilizasyon stresi, kan, beyin omurilik sıvısı, pupilla yanıtları veya stres araştırmalarının ilgisini çekebilecek diğer fizyolojik etkilerin toplanması için konuya erişim sağlarken hareketi kısıtlar. Kemirgenlerde stresi indüklemek için kullanılan ek stresörler arasında çevresel soğuk stresi, kortikosteron veya yohimbin gibi farmakolojik ajanların uygulanması, etolojik olarak ilgili sosyal yenilgi veya avcı kokusuna maruz kalma deneyimleri ve kronik öngörülemeyen stres (CUS) gibi multimodal stres bulunur. Bu alternatif stres modaliteleri, stresin belirli yönlerini modellemedeki avantajları nedeniyle kullanım için seçilmiştir. Örneğin, kısıtlamanın farelerde ve sıçanlarda26 CUS modellerinin bir yönü olmasına rağmen, CUS'un etkileri, kronik kısıtlama stresine eşdeğer bir maruz kalma ile üretilenlerden farklı olabilir27,28. Tekrarlanan kısıtlamanın öngörülebilirliği, homotipik kısıtlama stresinin etkinliğini sınırlayan gelecekteki kısıtlama olaylarına verilen yanıtı azaltır. Alternatif olarak, CUS ve diğer heterotipik stres modelleri, alışkanlığı en aza indirmek için stresörleri veya bağlamları döndürür 11,18. Bu öngörülemeyen stres modelleri, kontrol ve beklenti kaybını tam olarak özetlemek için insan psikiyatrik koşullarının yönlerini daha iyi modelleyebilir. Diğer stres modalitelerinin ele almada daha iyi olduğu kısıtlamanın bir başka dezavantajı, strese yatkınlığa ve stres tamponlamasına sosyal katkısıdır 29,30,31. Kemirgenler ve insanlar, belirli ilişkilere ve hiyerarşilere sahip sosyal hayvanlardır. Kısıtlama stresi sosyalleşmeyi içermese de, sosyal yenilgi stresi gibi psikososyal stresörler kemirgenler için etolojik olarak ilgili bir stres faktörü sağlar 32,33,34.
Kısıtlama stresinin kullanımında, uygulamanın yoğunluğu ve tekrarı manipüle edilebilecek bir parametredir5. Daha sağlam bir kısıtlama gerilimi oluşturmak için, çalışma tasarımı, kısıtlama cihazında daha uzun bir süre gerektirebilir. Akut veya uzun süreli kısıtlama seansları için sırasıyla 5 dakika kadar kısa veya 12 saat kadar uzun süre olası parametrelerdir35,36. Kısıtlama maruziyetinin uzunluğu belirlendikten sonra, stres etkeninin tekrarı da çeşitli stres seviyelerini indüklemede bir faktör olabilir35,37. Tekrarlanan kısıtlama stresinin, gözlemlenen etkilerde mutlaka bir artış anlamına gelmediğine dikkat edilmelidir. Sıklıkla tekrarlanan kısıtlama stresi, stres tepkilerini alışkanlık haline getirir veya başka bir şekilde azaltır18. Burada sunulan verilerde, tekrarlanan kısıtlama stresine kortikosteron tepkisi ile alışkanlığı gözlemledik, aynı zamanda sadece tekrarlanan strese maruz kalma grubunda uyarılmış norepinefrin salınımındaki farklılıkları ölçtük. Bu nedenle, alışkanlık etkilerini belirlemeden önce tekrarlanan kısıtlamanın etkileri dikkatlice araştırılmalıdır35.
Ek olarak, kısıtlama stresi kullanan çalışmalarda kullanılan barınma koşullarının sonuçları da dikkate alınmalıdır. Stresli özelliklerle etkileşim, kemirgenlerde stres tepkilerini etkiler 30,38,39. Bu nedenle, deney grupları arasında tutarlı yanıtları sürdürmek için, denekler ya bireysel olarak barındırılmalı ya da tüm kafes arkadaşlarının aynı stres durumunu yaşadığı bir grup olarak barındırılmalıdır37. Kritik olarak, tüm deneklerin bu sosyal izolasyonu yaklaşımının bir dezavantajı, sosyal izolasyon konutunun aynı zamanda bir stres faktörü olmasıdır40,41. Bununla birlikte, konut koşullarından bağımsız olarak, sonuç ölçümlerini etkileyen stresin sosyal tamponlanmasını önlemek için mümkünse strese maruz kalma izolasyonda gerçekleşmelidir30. Bu barınma koşullarıyla birlikte, çevresel ışık döngülerine göre strese maruz kalmanın zamanlaması14,15 olarak kabul edilmelidir. Bazı çalışmaların37'ye dikkat çektiği gibi, kortikosteroid seviyeleri sirkadiyen ritimleri takip eder, bu nedenle stres faktörlerini ışık döngüsünde farklı zamanlarda uygulamak tutarsız etkiler üretebilir. Bu nedenle, kısıtlama için tek tip bir başlangıç zamanı oluşturmak ve sürdürmek çok önemlidir. Örneğin, kortikosteronun sirkadiyen kontrolü üzerindeki egzersiz stresi etkilerini inceleyen bir makale, kontrol farelerinde kortikosteronun ışık döngüsünün sonlarında zirve yaptığını, ancak stresli farelerde kortikosteronun stabil bir tepe13 olmadan yüksek kaldığını göstermektedir. Bu bulgular ışığında, en büyük etkileri elde etmek için kemirgenleri ışık döngüsünün erken dönemlerinde strese sokmak önerilir.
Kısıtlama koşullarının parametrelerinin ötesinde, hayvan deneğinin özelliklerinin de kısıtlama stresörleri kullanan çalışmalarda dikkate alınması önemli olmuştur. Örneğin, çok sayıda çalışma, kısıtlama stresi 12,35,37,42,43,44 kullanarak cinsiyet farklılıkları bildirmiştir. Bu farklılıkların altında yatan mekanizmaları anlamak araştırmaya değerdir ve insanlar stres yaşadıklarında adil tedaviler için daha iyi sonuçlara yol açabilir. Belki de kadınlar ve erkekler stresörleri farklı şekilde yaşar ve işler, bu da kadınlarda anksiyete ve depresyonun artmasına neden olur44. Örneğin, kısıtlama stresi erkeklerde öğrenme performansını azaltırken, kadınlarda öğrenme performansını artırır45. Tarihsel olarak, kemirgenlerde yapılan kısıtlama stresi çalışmaları, deneklerini erkeklerle sınırlamıştır, ancak ileriye dönük olarak, her iki cinsiyeti de içerecek deneyler tasarlamalıyız. Fare veya sıçan türlerinde kısıtlama (ve diğer) stres faktörlerini kullanan deneyler tasarlanırken göz önünde bulundurulması gereken bir diğer konu özelliğide 46,47,48,49,50,51 türüdür. Gerinim etkileri, bir dizi paradigmada gözlemlenmiştir ve bazı suşlar, kısıtlama stresine daha şiddetli tepkiler göstermektedir. Son olarak, kısıtlama stresi kullanılırken denek yaşı dikkate alınmalıdır. Hamile bir anneyi kısıtlayarak doğum öncesi maruz kalmadan strese kadar, yaşlı popülasyonlarda kısıtlamaya kadar, kısıtlama stresi herhangi bir zaman noktasına uyarlanabilir. Stres tepkisindeki farklılıklar yaşam boyugösterilmiştir 45,52,53,54,55,56. Yaşlanma meydana geldikçe vücut büyüklüğündeki değişikliklere uyum sağlamak için farklı kısıtlama cihazlarına ihtiyaç duymanın yanı sıra, kısıtlama stresörleri kullanılırken yaşa bağlı stres deneyimleri de göz önünde bulundurulmalıdır.
İster 3.2'de açıklanan davranışsal bir görev olsun, ister 3.3'te açıklanan nörobiyolojik bir değişken olsun, uygun sonuç ölçümünün seçimi dikkate alınmalıdır. Birincisi, akut, hafif strese maruz kalmanın bazı öğrenme görevlerinde performansı artırdığı gösterilmiştir, ancak yoğun veya kronik strese maruz kalmanın öğrenme ve hafıza görevlerinde performansı bozduğu gösterilmiştir57. Bilişsel performanstaki bu değişimlerin prefrontal korteks, amigdala ve hipokampus arasındaki devre düzensizliği tarafından düzenlendiği düşünülmektedir. Bununla birlikte, kısıtlama stresinin bilişsel esneklik üzerindeki etkileri, çeşitli kısıtlama parametrelerinin tersine öğrenmeyi veya set kaydırmayı nasıl değiştirdiğinin net bir resmini engelleyen tutarsız bulgularla daha karışıktır58. İlaçların davranışsal etkileri ile ilgili olarak, kısıtlama stresinin, diğer stres faktörleri gibi, bir dizi uyuşturucu sınıfında madde kullanım bozukluğu ile ilgili davranışları artırdığı gösterilmiştir59. Bununla birlikte, bu etkiler, kısıtlama stresinin, nüksün edimsel koşullandırma modellerinde uyuşturucu arayışını tetiklediğinin bildirilmediği, ancak eski haline getirme60 dahil olmak üzere koşullu yer tercihi görevleriyle ölçülen uyuşturucu etkilerinin ilişkisel öğrenmesini artırdığı için biraz seçicidir. Bu tutarsızlığın, kısıtlama cihazlarının edimsel koşullandırma odalarından ayrı bir bağlam yaratması nedeniyle meydana geldiği düşünülürken, ayak şoku stresi edimsel ortamda meydana gelebilir. Bu sınırlamanın üstesinden gelmek için, strese maruz kalmanın edimsel kendi kendine uygulama seansları sırasında sunulabilecek ipuçlarıyla eşleştirilmesi, ilaç alımında ve uyuşturucu aramada strese bağlı artışlar göstermiştir61. Kronik kısıtlamanın uyuşturucuya bağlı davranışlar üzerindeki etkileri daha az iyi karakterize edilmiştir. Anksiyete ve depresyon gibi duygusal bozukluk modelleri göz önüne alındığında, hem insanlarda hem de hayvan modellerinde strese maruz kalma kaygı ölçümlerini artırır. Kemirgenlerde, anksiyetenin kısıtlama stresi değerlendirmeleri, hayvanın arenadaki duvarlar boyunca merkeze kıyasla lokomotor tepkisinin izlenmesiyle ölçülen açık alan aparatındaki timotaksis tepkilerini içerir. Kısıtlamayı takiben kaygı benzeri davranışlar sergileyen hayvanlar, yanlara yakın yerlerde daha fazla zaman geçirecek ve daha az merkez geçişine sahip olacaktır. Kaygıyı ölçmek için başka bir yaklaşım, yükseltilmiş artı labirenttir. Bu görev, yerden yaklaşık 3 fit yükseklikte haç şeklinde bir aparat kullanır. Cihazın iki kolu duvar bariyerlerini içerir; İki kolun açık kenarları vardır. Anksiyete benzeri davranışlar sergileyen hayvanlar, kapalı kollarda açık kollara göre daha fazla zaman geçireceklerdir62,63. Depresyon benzeri davranışlar, kemirgenlerin bir su silindirine yerleştirildiği ve yüzen tepkilere kıyasla mücadele eden tepkiler için ölçüldüğü zorunlu yüzme görevi ile değerlendirilir64. Kaçma mücadelesinin sona ermesinin gerçekten depresyon benzeri davranışı temsil edip etmediği sorgulandı65, ancak görevin antidepresan ilaçlar için bir ekran olarak fayda sağladığını gösterdi. Depresyon benzeri davranışlar, sükroz tercihinde strese bağlı azalmalar yoluyla da değerlendirilebilir66. Tatlı sıvı tüketimindeki bu değişiklikler, klinik depresyonun anhedoni yönlerinin bir değerlendirmesi olarak alınır.
Özetle, farelerde ve sıçanlarda kısıtlama, fizyoloji, genetik, immünoloji ve sinirbilim çalışmalarında stres ve kaygı tepkileri üretmek için doğrulanmış bir prosedürdür. Strese neden olan diğer yaklaşımlarla karşılaştırıldığında, kısıtlama ucuzdur, gerçekleştirilmesi kolaydır, anksiyete, depresyon, madde kullanım bozukluğu ve travma sonrası stres bozukluğu dahil olmak üzere insan bozukluklarının yönlerini modellemek için yararlıdır ve çok çeşitli parametrelerle uyarlanabilir. Bu nedenlerden dolayı, kısıtlama stresi, kemirgenlerde stresin etkisini belirlemek için yararlı bir yöntem olmaya devam etmektedir.
Açıklamalar
Raporlanacak çıkar çatışması yok.
Teşekkürler
Holly Rahurahu ve Sam Shaffer tarafından sağlanan editoryal geri bildirimleri takdir ediyorum.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 50 mL Genel Amaçlı Vidalı Kapaklı Konik Boru | Küre Scientific | 6288 | |
| Tek Kullanımlık Pipet Havzası | Fisher Scientific | 13-681-500 | |
| Arbor Tahlilleri | için ELISA Kiti | K014-H | |
| Tailveiner Tutucu Tüp | Braintree Scientific | RTV |
Kaynaklar
- McEwen, B. S., et al. Mechanisms of stress in the brain. Nat Neurosci. 18 (10), 1353-1363 (2015).
- Snyder, A. E., Silberman, Y. Corticotropin releasing factor and norepinephrine related circuitry changes in the bed nucleus of the stria terminalis in stress and alcohol and substance use disorders. Neuropharmacology. 201, 108814(2021).
- Morilak, D. A., et al. Role of brain norepinephrine in the behavioral response to stress. Prog Neuropsychopharmacol Biol Psychiatry. 29 (8), 1214-1224 (2005).
- Bali, A., Jaggi, A. S. Preclinical experimental stress studies: protocols, assessment and comparison. Eur J Pharmacol. 746, 282-292 (2015).
- Buynitsky, T., Mostofsky, D. I. Restraint stress in biobehavioral research: Recent developments. Neurosci Biobehavior Rev. 33 (7), 1089-1098 (2009).
- Grissom, N., Kerr, W., Bhatnagar, S. Struggling behavior during restraint is regulated by stress experience. Behav Brain Res. 191 (2), 219-226 (2008).
- Patel, S., Roelke, C. T., Rademacher, D. J., Hillard, C. J. Inhibition of restraint stress-induced neural and behavioural activation by endogenous cannabinoid signalling. Eur J Neurosci. 21 (4), 1057-1069 (2005).
- Luchsinger, J. R., et al. Delineation of an insula-BNST circuit engaged by struggling behavior that regulates avoidance in mice. Nat Commun. 12 (1), 3561(2021).
- Joffe, M. E., et al. Acute restraint stress redirects prefrontal cortex circuit function through mGlu5 receptor plasticity on somatostatin-expressing interneurons. Neuron. 110 (6), 1068-1083.e5 (2022).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guide for the Care and Use of Laboratory Animals. , National Academies Press. Washington, DC. (2011).
- Grissom, N., Iyer, V., Vining, C., Bhatnagar, S. The physical context of previous stress exposure modifies hypothalamic-pituitary-adrenal responses to a subsequent homotypic stress. Horm Behav. 51 (1), 95-103 (2007).
- Fetterly, T. L., et al. α2A-Adrenergic receptor activation decreases parabrachial nucleus excitatory drive onto BNST CRF neurons and reduces their activity in vivo. J Neurosci. 39 (3), 472-484 (2019).
- Barriga, C., Martín, M. I., Tabla, R., Ortega, E., Rodríguez, A. B. Circadian rhythm of melatonin, corticosterone and phagocytosis: effect of stress. J Pineal Res. 30 (3), 180-187 (2001).
- Rybkin, I. I., Zhou, Y., Volaufova, J., Smagin, G. N., Ryan, D. H., Harris, R. B. S. Effect of restraint stress on food intake and body weight is determined by time of day. Am J Physiol. 273 (5), R1612-R1622 (1997).
- Bartlang, M. S., et al. Time matters: pathological effects of repeated psychosocial stress during the active, but not inactive, phase of male mice. J Endocrinol. 215 (3), 425-437 (2012).
- McElligott, Z. A., et al. Noradrenergic synaptic function in the bed nucleus of the stria terminalis varies in animal models of anxiety and addiction. Neuropsychopharmacology. 38 (9), 1665-1673 (2013).
- Pardon, M. -C., et al. Stress reactivity of the brain noradrenergic system in three rat strains differing in their neuroendocrine and behavioral responses to stress: implications for susceptibility to stress-related neuropsychiatric disorders. Neuroscience. 115 (1), 229-242 (2002).
- Grissom, N., Bhatnagar, S. Habituation to repeated stress: Get used to it. Neurobiol Learn Mem. 92 (2), 215-224 (2009).
- Ma, M., Chang, X., Wu, H. Animal models of stress and stress-related neurocircuits: A comprehensive review. Stress Brain. 1 (2), 108-127 (2021).
- Williford, K. M., et al. BNST PKCδ neurons are activated by specific aversive conditions to promote anxiety-like behavior. Neuropsychopharmacology. 48 (7), 1031-1041 (2023).
- Schmidt, K. T., et al. Stress-induced alterations of norepinephrine release in the bed nucleus of the stria terminalis of mice. ACS Chem Neurosci. 10 (4), 1908-1914 (2019).
- Cecchi, M., Khoshbouei, H., Javors, M., Morilak, D. A. Modulatory effects of norepinephrine in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuroscience. 112 (1), 13-21 (2002).
- López-Moraga, A., Beckers, T., Luyten, L. The effects of stress on avoidance in rodents: An unresolved matter. Front Behav Neurosci. 16, 983026(2022).
- Mantsch, J. R., Baker, D. A., Funk, D., Lê, A. D., Shaham, Y. Stress-induced reinstatement of drug seeking: 20 years of progress. Neuropsychopharmacology. 41 (1), 335-356 (2016).
- Molina, P., Andero, R., Armario, A. Restraint or immobilization: A comparison of methodologies for restricting free movement in rodents and their potential impact on physiology and behavior. Neurosci Biobehav Rev. 151, 105224(2023).
- Burstein, O., Doron, R. The unpredictable chronic mild stress protocol for inducing anhedonia in mice. J Vis Exp. (140), e58184(2018).
- Haile, C. N., GrandPre, T., Kosten, T. A. Chronic unpredictable stress, but not chronic predictable stress, enhances the sensitivity to the behavioral effects of cocaine in rats. Psychopharmacology. 154 (2), 213-220 (2001).
- Marin, M. T., Cruz, F. C., Planeta, C. S. Chronic restraint or variable stresses differently affect the behavior, corticosterone secretion and body weight in rats. Physiol Behav. 90 (1), 29-35 (2007).
- Kikusui, T., Winslow, J. T., Mori, Y. Social buffering: relief from stress and anxiety. Philos Trans R Soc Lond B Biol Sci. 361 (1476), 2215-2228 (2006).
- Watanabe, S. Social factors modulate restraint stress induced hyperthermia in mice. Brain Res. 1624, 134-139 (2015).
- DeVries, A. C., Glasper, E. R., Detillion, C. E. Social modulation of stress responses. Physiol Behav. 79 (3), 399-407 (2003).
- Martinez, M., Calvo-Torrent, A., Pico-Alfonso, M. A. Social defeat and subordination as models of social stress in laboratory rodents: A review. Aggr Behav. 24 (4), 241-256 (1998).
- Golden, S. A., Covington, H. E., Berton, O., Russo, S. J. A standardized protocol for repeated social defeat stress in mice. Nat Protoc. 6 (8), 1183-1191 (2011).
- Koolhaas, J. M., De Boer, S. F., Buwalda, B., Meerlo, P. Social stress models in rodents: Towards enhanced validity. Neurobiol Stress. 6, 104-112 (2017).
- Albonetti, M. E., Farabollini, F. Behavioural responses to single and repeated restraint in male and female rats. Behav Processes. 28 (1-2), 97-109 (1992).
- Glaser, R., Kiecolt-Glaser, J. K. Stress-induced immune dysfunction: implications for health. Nat Rev Immunol. 5 (3), 243-251 (2005).
- Olave, F. A., et al. Chronic restraint stress produces sex-specific behavioral and molecular outcomes in the dorsal and ventral rat hippocampus. Neurobiol Stress. 17, 100440(2022).
- Zalaquett, C., Thiessen, D. The effects of odors from stressed mice on conspecific behavior. Physiol Behav. 50 (1), 221-227 (1991).
- Sterley, T. -L., et al. Social transmission and buffering of synaptic changes after stress. Nat Neurosci. 21 (3), 393-403 (2018).
- Bartolomucci, A., et al. Individual housing induces altered immuno-endocrine responses to psychological stress in male mice. Psychoneuroendocrinology. 28 (4), 540-558 (2003).
- Krohn, T., Sørensen, D., Ottesen, J., Hansen, A. The effects of individual housing on mice and rats: a review. Anim Welf. 15 (4), 343-352 (2006).
- Chadda, R., Devaud, L. L. Differential effects of mild repeated restraint stress on behaviors and GABAA receptors in male and female rats. Pharmacol Biochem Behav. 81 (4), 854-863 (2005).
- Perrot-Sinal, T. S., Gregus, A., Boudreau, D., Kalynchuk, L. E. Sex and repeated restraint stress interact to affect cat odor-induced defensive behavior in adult rats. Brain Res. 1027 (1-2), 161-172 (2004).
- Ter Horst, G. J., Wichmann, R., Gerrits, M., Westenbroek, C., Lin, Y. Sex differences in stress responses: Focus on ovarian hormones. Physiol Behav. 97 (2), 239-249 (2009).
- Bowman, R. E. Stress-induced changes in spatial memory are sexually differentiated and vary across the lifespan. J Neuroendocrinol. 17 (8), 526-535 (2005).
- Beery, A. K., Holmes, M. M., Lee, W., Curley, J. P. Stress in groups: Lessons from non-traditional rodent species and housing models. Neurosci Biobehav Rev. 113, 354-372 (2020).
- Armario, A., et al. Differential hypothalamic-pituitary-adrenal response to stress among rat strains: Methodological considerations and relevance for neuropsychiatric research. Curr Neuropharmacol. 21 (9), 1906-1923 (2023).
- O'Mahony, C. M., Clarke, G., Gibney, S., Dinan, T. G., Cryan, J. F. Strain differences in the neurochemical response to chronic restraint stress in the rat: Relevance to depression. Pharmacol Biochem Behav. 97 (4), 690-699 (2011).
- O'Mahony, C. M., Sweeney, F. F., Daly, E., Dinan, T. G., Cryan, J. F. Restraint stress-induced brain activation patterns in two strains of mice differing in their anxiety behaviour. Behav Brain Res. 213 (2), 148-154 (2010).
- Mozhui, K., et al. Strain differences in stress responsivity are associated with divergent amygdala gene expression and glutamate-mediated neuronal excitability. J Neurosci. 30 (15), 5357-5367 (2010).
- Fox, M. E., Studebaker, R. I., Swofford, N. J., Wightman, R. M. Stress and drug dependence differentially modulate norepinephrine signaling in animals with varied HPA axis function. Neuropsychopharmacology. 40 (7), 1752-1761 (2015).
- Novais, A., Monteiro, S., Roque, S., Correia-Neves, M., Sousa, N. How age, sex and genotype shape the stress response. Neurobiol Stress. 6, 44-56 (2017).
- McEwen, B. S., Morrison, J. H. The brain on stress: Vulnerability and plasticity of the prefrontal cortex over the life course. Neuron. 79 (1), 16-29 (2013).
- Sadler, A. M., Bailey, S. J. Repeated daily restraint stress induces adaptive behavioural changes in both adult and juvenile mice. Physiol Behavi. 167, 313-323 (2016).
- Doremus-Fitzwater, T. L., Varlinskaya, E. I., Spear, L. P. Social and non-social anxiety in adolescent and adult rats after repeated restraint. Physiol Behav. 97 (3-4), 484-494 (2009).
- Brown, G. R., Spencer, K. A. Steroid hormones, stress and the adolescent brain: A comparative perspective. Neuroscience. 249, 115-128 (2013).
- Arnsten, A. F. T. Stress signalling pathways that impair prefrontal cortex structure and function. Nat Rev Neurosci. 10 (6), 410-422 (2009).
- Hurtubise, J. L., Howland, J. G. Effects of stress on behavioral flexibility in rodents. Neuroscience. 345, 176-192 (2017).
- Giovanniello, J., Bravo-Rivera, C., Rosenkranz, A., Matthew Lattal, K. Stress, associative learning, and decision-making. Neurobiol Learn Mem. 204, 107812(2023).
- Sinha, R., Shaham, Y., Heilig, M. Translational and reverse translational research on the role of stress in drug craving and relapse. Psychopharmacology. 218 (1), 69-82 (2011).
- Carter, J. S., et al. Long-term impact of acute restraint stress on heroin self-administration, reinstatement, and stress reactivity. Psychopharmacology. 237 (6), 1709-1721 (2020).
- Cecchi, M., Khoshbouei, H., Morilak, D. A. Modulatory effects of norepinephrine, acting on alpha 1 receptors in the central nucleus of the amygdala, on behavioral and neuroendocrine responses to acute immobilization stress. Neuropharmacology. 43 (7), 1139-1147 (2002).
- Khoshbouei, H., Cecchi, M., Morilak, D. A. Modulatory effects of galanin in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuropsychopharmacology. 27 (1), 25-34 (2002).
- Yankelevitch-Yahav, R., Franko, M., Huly, A., Doron, R. The forced swim test as a model of depressive-like behavior. J Vis Experiments. (97), e52587(2015).
- Molendijk, M. L., De Kloet, E. R. Immobility in the forced swim test is adaptive and does not reflect depression. Psychoneuroendocrinology. 62, 389-391 (2015).
- Mao, Y., Xu, Y., Yuan, X. Validity of chronic restraint stress for modeling anhedonic-like behavior in rodents: a systematic review and meta-analysis. J Int Med Res. 50 (2), 03000605221075816(2022).
Yeniden basım ve izinler
