Bu makale, Brillouin mikrospektroskopisi kullanılarak 3D bir matriks içinde yaşayan sferoidlerin mekanik karakterizasyonu için bir protokolü tanımlar. Bu tamamen optik yöntem, mikro ölçekli çözünürlük ve nicel mekanik özelliklerle küresel görselleştirmeyi mümkün kılar. Bu yaklaşımın mekanik fenotipleme için etkileri vardır; örneğin, tümör sferoidlerinin patolojik durumlarını 3D mikro ortamda belirlemek.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Yöntem makalesi
Brillouin Spektroskopisi Kullanılarak Sferoidlerin Mekanik Haritalanması
* These authors contributed equally
Bu makalede
Özet
Özet
Biyomedikal bilimde büyük ilgi gören yeni bir teknik olan Brillouin spektroskopisi, araştırmacıların örneklerin viskoelastik ve mimari özelliklerini tahrip etmeyen, temassız bir şekilde sorgulayarak mekanik ve yapı ile ilgili bilgi toplamalarını sağlar. Bu yaklaşım, görünür ışığın termal olarak indüklenen akustik dalgalar/fononlarla etkileşimini ölçerek 3B örneklerin mekanik özelliklerini değerlendirir. Brillouin spektroskopisi'nin sağladığı bilgiler, biyofiziğin in vivo değerlendirmesi ve hastalık patolojilerinin olası teşhisi için potansiyele sahiptir. Brillouin spektroskopisinin önemli bir avantajı, biyolojik bir örnek içindeki mikro ölçekli mekaniği değerlendirebilme yeteneğidir; Bu çözünürlüğü elde edebilen diğer geleneksel teknikler, örneğin atomik kuvvet mikroskobi, doğrudan temas gerektirdikleri için örnekleri yalnızca 2B olarak inceleyebilir. Bu çalışma, 3D hidrojel matris içinde gömülü yaşayan sferoidlerin biyomekaniğini incelemek için Brillouin mikrospektroskopisinin uygulanmasını açıklar. Hücresel sferoidlerin 3D mikro ortamda kapsüllenmesi, hücreler ile ekstrasellüler matriks arasındaki arayüzü in vivo yakından tekrarlayan bir sferoid sistem oluşturur. Protokolümüzde, Brillouin spektrumlarının sferoid örnek hazırlama ve ölçümlerini ardışık floresan görüntüleme ile tanımlıyoruz. Ayrıca, spektral veri analizi prosedürlerini ve optik sistemle ilgili teknik detayları tartışıyoruz.
Giriş
Hücreleri 3D modellerde kültürleme, tipik 2B hücre kültür yöntemlerine kıyasla avantajlıdır; çünkü canlı olarak bulunan doku yapılarını ve hücre-hücre etkileşimlerini daha iyi özetler. Sferoidler, karmaşık hücre-hücre etkileşimlerini kolaylaştıran 3D hücre agregajlarıdır; Bu etkileşimler, doku kültürü plastiği üzerinde tek katmanlı olarak yetiştirilen hücrelerde bozulur. Sferoidler, hücrenin geldiği mikro ortamı taklit eden bir iskele içinde yetiştirilebilir. Örneğin, hidrojeller, sertlik, bozunabilirlik, gözenek boyutu ve büyümefaktörleri 1'in dahil edilmesi gibi parametrelerin hassas kontrolünü sağladıkları için hücreler/sferoidlerin kültürlenmesinde kullanılan popüler bir biyomateryaldir (Şekil 1A). Mekanik ipuçları genellikle kanser ve fibroz gibi hastalık patolojilerinde biyokimyasal değişikliklerden öncegelir 2,3, bu nedenle, klinik olarak ilgili 3D hastalık modellerinde biyomekanik imza edinmek, terapötik uygulamayı bilgilendirmek ve altta yatan patofizyolojiyi anlamak için tanısal müdahalelerin geliştirilmesinde çok önemlidir4.
Brillouin Mikroskopisi (BM), biyolojik malzemelerin mekanik özelliklerinin 2D düzlemler 5,6,7 ölçülerinde ölçülmesini sağlayan bir görüntüleme tekniğidir. BM, atomik kuvvet mikroskobu (AFM) ve elastografi gibi daha yaygın kullanılan diğer yöntemlere göre bazı önemli avantajlara sahiptir. AFM'nin yüksek uzaylı-zamansal mekanik çözünürlüğe ulaşabileceği ve elastografinin örneklerdeki mekaniğiinceleyebildiği iyi belgelenmiştir 8,9. BM, incelenen malzemeyle doğrudan temas gerektirmez, bu da hidrojel içindeki sferoidler gibi erişim zor örnekler/hücreler için AFM üzerinde ideal bir tekniktir. BM'nin bir diğer önemli avantajı, örneklerin etiketlenmesini gerektirmemesi ve biyolojik örnekler içinde mikro ölçekli çözünürlük sağlayabilmesidir; bu da yaygın kullanılan elastografi yöntemlerininbaşaramamasıdır 7; Daha gelişmiş optik elastografi teknikleri mikro ölçekliçözünürlük 10'da çalışabilir. Heterojen biyolojik örneklerin Brillouin görüntülemesinde hassas ve etkili çözünürlükün tanımlanmasının kolay olmadığı belirtilmelidir. İlk olarak, belirli bir aydınlatma dalga boyu için, odak noktası boyutunu tanımlayan optik özelliklere bağlıdır (objektif lensin sayısal açıklığı, NA'sı ve örnek opaklığı). Ayrıca, örneğin mekanik özelliklerinin ve Brillouin spektrumunun şeklinin doğruluğu, malzemenin akustik özelliklerinden (fonon dalga boyu ve yayılma uzunluğu) etkilenir.11,12. Brillouin spektroskopisinin arkasındaki temel olgu, Brillouin saçılmasıdır; burada gelen monokromatik lazer ışığı, biyolojik ortamda kendiliğinden oluşan, termal olarak indüklenmiş akustik fononlarla etkileşime girer. Bu, Şekil 1B'de ışığın ve (Brillouin frekans kayması, BFS) ile inelastik saçılmasına yol açar ve genellikle birkaç GHz mertebesinde olur; fotonun enerji kaybedeceğine veya kazandığına bağlı olarak, Brillouin Stokes ve anti-Stokes zirveleri sırasıyla saçılmış ışığın spektrumunda tespit edilir. Ortamdaki yerel ses hızına olan bağımlılığı sayesinde, BFS elastik boylamasına modülle ilişkilidir; bu modül ise Youngmodülü 7,13 ile ampirik olarak ilişkilidir; ancak, bu modüller arasında karşılaştırmalar yapılırken dikkatli olunmalıdır; çünkü (i) doğrudan birbirleriyle ilişkili değiller, (ii) Young modülü genellikle biyolojik örnekler ve yumuşak madde için Pa-kPa aralığındadır, iken Brillouin'den elde edilen boyuna modül GPa aralığındadır ve (iii) kırılma indeks değişiklikleri ve malzeme yoğunluğu gibi parametrelerdikkate alınmalıdır 7. Brillouin çizgi genişliği (Şekil 1B'de) BM'den elde edilen başka bir ölçüdür. Boylamasına kayıp modülü ile ilişkilidir ve örneğin viskozitesine dair içgörüler sağlar; Bu özellikler viskoelastiklik14 ile ilişkilendirilebilir. Böylece, BM viskoelastik özelliklerin değerlendirilmesine olanak tanır; burada daha büyük bir BFS daha sert bir malzeme, daha büyük bir çizgi genişliği ise daha viskoz bir malzeme anlamına gelir (Şekil 1B). Fotonların frekans kayması geçirmediği elastik (Rayleigh) saçılışın, Brillouin saçılmasına kıyasla belirgin şekilde daha yüksek bir gerçekleşme olasılığına sahip olduğu belirtilmelidir. Bu nedenle, Brillouin spektrometrelerinin Rayleigh sinyalini bastıracak şekilde donatılması gerekir.
BM, çeşitli dokuların, biyomalzemelerin ve 3D hücre kültürü modellerinin mekanik özelliklerini karakterize etmek için kullanılmıştır. Örneğin, BM, melanoma ile çevresindeki sağlıklı dokuyu ayırt etmek için kullanıldı ve kanser olmayan dokunun melanoma15'ten anlamlı şekilde daha yumuşak olduğunu gösterdi. Rad ve ark. hidrojellerin polimer konsantrasyonunu artırmanın BFS ve çizgi genişliğinin artmasına yol açtığını göstermiştir. En düşük polimer konsantrasyonlarında, hücreli hidrojellerde, boş hidrojellere kıyasla yedi gün içinde Brillouin frekans değişimlerinde daha büyük azalmalar görüldü; bunun hidrojelin hücresel yeniden modellenmesinden kaynaklandığı öne sürüldü. Bu, %10 polimer konsantrasyonunda gözlemlenmedi ve bu da bu hidrojellerde hücre canlılığı eksikliğini ortayakoyuyordu16.
Bu çalışmayla en ilgili olan, BM'nin 17,18,19,20 sferoidlerinin mekanik özelliklerini incelemek için kullanılmasıdır. Özellikle, yerel mikro ortamın küresel mekanik üzerindeki etkisi BM20 kullanılarak tespit edilebilir. Uyumlu hidrojellerde yetiştirilen tümör sferoidlerine kıyasla, sert hidrojellerde yetiştirilen sferoidler daha yüksek bir BFS göstermiştir ki, bu da artan elastik modül20'nin göstergesidir. Bir sferoid içindeki mekanik özelliklerin mekansal varyasyonu da BM ile karakterize edilebilir. Örneğin, tümör sferoidlerinin BFS'sinin küre çekirdeği 20,21'e doğru arttığı bulunmuştur. Ayrıca, BFS'deki azalma tümör sferoidlerinin artan invazivliğiylekorelasyondur 20. BM, tümör sferoidlerinin osmotik şok22'ye yanıt olarak mekanik değişikliklerini incelemek için kullanılmıştır. Çalışmada, küre büyümesi 5 gün boyunca izlendi ve BM ile gözlemlenen kanser ile sağlıklı sferoidler arasındaki başlangıçta mekanik farkların zamanla kaybolduğu tespit edildi. Başka bir çalışmada ise 7 gün sonra sferoidin BFS'sinde artış bulundu; bu, küre boyutu ve hücre sayısının artmasınabağlandı. 16.
Ayrıca, Brillouin mikroskobu ile AFM ve reoloji ile birlikte çok modal araştırmalar yapılmış, hücrelerin ve hidrojellerinmekanik özelliklerini incelemek için yapılmıştır 16,23,24. Rad ve ark., BM ile ölçülen eğilimleri bağlamlandırmak için reolojiyi kullanarak, hidrojellerin polimer konsantrasyonuna göre boylamasına modül ile depolama kayma modülü arasında güçlü bir pozitif korelasyonsağlamıştır 16. Brillouin mikroskobu ve optik cımbız mikro-reolojisi, 3D hidrojellerde kültürlenen kanser hücrelerinin mekaniğini ölçmek içinkullanılmıştır 23. Bu çalışmada, hidrojellerde büyüyen tek hücrelere kıyasla sferoidlerdeki hücreler arasında mekanik heterojenliğin azaldığı tespit edilmiştir.
Bu çalışmada, hidrojellere gömülü canlı sferoidlerin mekanik özelliklerini ticari bir Brillouin mikroskobu ile incelemek için bir protokol detaylandırılmıştır (Şekil 1). Berghaus ve ark., yüksek çözünürlüklü bir Brillouin spektrometresi inşa etme adımlarını ve referans malzemelerle kalibre etme yöntemini ayrıntılı olarakanlatan bir protokol tanımladılar 25. Ayrıca, Shi ve ark. tarafından hazırlanan bir protokol, embriyon dokusunun mekanik özelliklerindeki değişiklikleri izlemek için Brillouinmikroskobunun kullanılmasını tanımlar. Kemik iliği nişini taklit etmek ve bu ortamın mekanik özelliklerini incelemek için poli(etilen glikol) (PEG)-maleimid hidrojellerinde mezenkimal kök hücre (MSC) sferoidleri kullanıyoruz. Bu 3D model, lösemi, multipl miyelom ve ikincil kemik kanseri gibi kemik iliği hastalıklarının mekanik imzasını ortaya çıkarma potansiyeline sahiptir. Bu nedenle protokol, bozulmuş mekanobiyolojinin patolojide önemli rol oynayabileceği diğer hastalıkların 3B modellerine doğrudan aktarılabilir. Sferoid ve hidrojel hazırlanma, floresans görüntüleme ve Brillouin mikroskopisi teknikleri detaylandırılmıştır. Önerilen prosedürler, olası dezavantajlar ve tekniğin olası iyileştirmeleri tartışılır. Detaylı deneysel kurulum tanımı, Şekil S1'de ve deneysel kurulumla ilgili Ek Malzemeler ve yöntemler bölümünde sunulmaktadır.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Protokol
1. 2D hücre kültürü
NOT: Mümkün olduğunda, tüm hücre kültürü çalışmalarının steril bir ortamda, kontaminasyonu önlemek için doku kültürü standartı bir laminar akış başlığı kullanılarak yapıldığından emin olun. Mevcut protokolde MSC'ler kullanılmış, ancak çalışmanın özel amaçlarına bağlı olarak diğer hücre tipleri sferoidler oluşturmak için kullanılabilir.
- Dulbecco'nun Modifiye Kartal Ortamı (DMEM) hücre kültür ortamında kültür MSC'leri, hücreleri kaplayacak kadar hacme sahip, 4,5 g/L D-Glukoz, + %10 fetal sığır serumu (FBS), 100 μM sodyum piruvat, %1 önemsiz amino asit (NEAA), %1 penisilin ve streptomisin içerir. Hücreleri 37 °C ve %5CO2 sıcaklıkta kuluçka yapın.
- Geçiş hücreleri, %70-80 birleşimle, %0,05 tripsin etilenediamintetraasetik asit (EDTA) ile (eklenen tripsin hacmi DMEM hacminin 1/3 %'i olmalıdır) 3 dakika boyunca 37 °C ve %5 CO2 ile inkübe geçirerek hücreleri plakadan ayırır. Reaksiyonu durdurmak için, FBS içeren kültür ortamı ekleyin (en azından eklenen tripsin hacmine eşdeğer). Hücreleri hemositometre ile sayın.
2. Sferoidlerin hazırlanması
NOT: Mümkün olduğunda, tüm hücre kültürü çalışmalarının steril bir ortamda, kontaminasyonu önlemek için doku kültürü standartı bir laminar akış başlığı kullanılarak yapıldığından emin olun. Bu çalışmada, mikro kuyu plakaları MSC sferoidlerinin oluşturulmasında kullanılmıştır. Bu plakalar 24 kuyudan oluşur ve her kuyu 400 μm çapında 1200 mikrokuyu içerir. Bu, çok sayıda sferoidin hazırlanmasına olanak tanır (Şekil 2).
- Mikro kuyu plakasını hazırlamak için, her kuyuya 500 μL anti-yapışma yıkama çözeltisi ekleyerek kuyuları ön işleyebilirsiniz. Santrifüj plakası 1.300 g'de oda sıcaklığında 5 dakika boyunca koyun. 20x büyütmede mikroskop altında, hava kabarcıkları olup olmadığını kontrol edin. Varsa, santrifüj adımını tekrarlayın. Anti-yapışma durulama çözeltisini çıkarın.
- Plakayı yıkamak için 1 mL fosfatla tamponlanmış tuzlu (PBS) ekleyin ve aspirasyon yapın. Durulama çözeltisi tamamen çıkarıldığından emin olmak için bunu iki kez yapın.
- Her sferoid başına hücre sayısını ve jel başına sferoid sayısını belirleyin. Bu, bireysel araştırma sorularına bağlı olacaktır. Örneğin, her sferoid için 100 hücre ve jel başına 100 sferoid kullandık. Bu nedenle, bu protokol için mikrokuyu plakasından sadece bir kuyu yeterli oldu ve toplamda 1200 sferoid oluşturdu. Bir kuyu için gereken hücre sayısını hesaplamak için şu hesaplamayı yaptık: 1200 x 100 = 1.2 x 10⁵. 1.2 x 10⁵ hücre içeren hücre askı hacmini hesaplayın. Hücre süspansiyonunu oda sıcaklığında 5 dakika boyunca 300 g ile santrifüj edin ve süpernatantı çıkarın.
- Hücreleri 1 mL DMEM (+4,5 g/L D-Glukoz, + L-Glutamin) ile 100 μM sodyum piruvat, %1 NEAA, %1 penisilin ve streptomisin takviye ederek yeniden süzülür. Mikro kuyu plakasının bir kuyusuna 1 mL hücre süspansiyonu ekleyin ve hücreleri kuyu boyunca eşit şekilde dağıtmak için nazikçe yukarı ve aşağı pipetleyin. Hava kabarcıkları oluşturmamaya dikkat edin. Plakayı 100 g ile oda sıcaklığında 3 dakika santrifüjle yapın.
NOT: Bu aşamada medyaya FBS eklememiyoruz. Bu, hücrelerin doku kültürü plastiğine tutunmasını önlemek içindir. - Plakayı mikroskop altında gözlemleyerek hücrelerin eşit şekilde dağıtıldığından ve mikro kuyrukların dibine battığından emin olun. Hücreleri 37 °C ve %5CO2 sıcaklıkta kuluçka yapın. 24 saat sonra küre oluşumunu gözlemleyin.
NOT: Sferoidler, hücre tipine ve istenen kompaktlığına bağlı olarak plakada 48 saate kadar bırakılabilir. - Tabaktan küreleri toplamak için, önce kültür ortamını yavaşça ve nazikçe çıkarın, böylece küreleri rahatsız etmemeyi hedefleyin. Sferoidlerin plastik eşyalara yapışmasını önlemek için, pipet uçlarını ve tüplerini %1 FBS ile PBS ile kaplayın. Kürelerin pipet uçlarına sıkışmasını önlemek için, ucu keserek açıklığı genişletin. Bu adımlarda küre kaybını önlemek için ekstra bir önlem olarak maksimum iyileşme ipuçları kullanılabilir. Mikro kuyu plakasının her kuyusuna 500 μL PBS ekleyin ve küreleri yerinden çıkarmak için yukarı ve aşağı pipet ekleyin. PBS'yi askıda duran sferoidlerle bir tüpte toplayın (Şekil 2).
- Plakayı mikroskop altında 20x büyütmede inceleyin ve bu adımı çoğu küre başarıyla çıkarılana kadar tekrarlayın.
- Süspansiyondaki sferoid sayısını saymak için, süspansiyondan 50 μL 96 kuyululu bir plakanın bir kuyusuna aktarılır. 50 μL'deki sferoidlerin sayısını say. Saymayı kolaylaştırmak için, kuyunun dibine kalıcı bir işaretleyici kullanılarak bir haç çizilebilir. Küre sayısını (1) denklemi kullanarak hesaplayın:
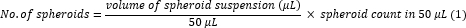
3. PEG hidrojellerinin hazırlanması
NOT: Mümkün olduğunda, tüm hücre kültürü çalışmalarının steril bir ortamda, kontaminasyonu önlemek için doku kültürü standartı bir laminar akış başlığı kullanılarak yapıldığından emin olun. Bu çalışmada PEG-maleimid hidrojelleri kullanıldı, ancak diğer türler de kullanılabilir. PEG-maleimid hidrojelleri, tiol-Michael eklemereaksiyonu 27 kullanılarak oluşturulmuştur. Kullanılan çapraz bağlayıcılar, iki sistein kalıntısı (VPM peptidi, GCRDVPMSMRGGDRCG) ile çevrili PEG-ditiol ve proteaz bozunabilir peptid karışımıydı. Mevcut çalışmadaki jeller %70 PEG-ditiol ve %30 bozunabilir VPM peptidi kullanmıştır.
- 200 mg/mL stok VPM peptid çözeltisi yapın ve jel başına 2,4 μL peptid ekleyin. 200 mg/mL stok bir PEG-ditiol çözeltisi yapın ve jel başına 5,6 μL ekleyin.
- Çapraz bağlayıcılarla karışmadan önce sferoidleri PBS'de yeniden askıya alın (Şekil 2). Sferoid süspansiyonu PEG-ditiol (jel başına 5,6 μL) ve VPM (jel başına 2,4 μL) ile karıştırın. Bu çözüme Çözüm B denir.
NOT: Bu protokolde, her jel için 100 sferoid eklendi. - 250 mg/mL PEG-Maleimide stok çözeltisi yapın. Jel başına 50 μg fibronektin ekleyin. PEG-Maleimid ve fibronektin çözeltisini karıştırın; buna Çözelti A denir. Pipet Çözeltisi A (100 μL jeller için 40,3 μL) 12 kuyruklu doku kültür plakasının dibine koyar. Tam çapraz bağlama sağlamak için 100 μL jeller için 59,7 μL Çözüm B eklenerek mola oranı 1:1 maleimide:tiol ile eklenir; jelleşmenin anında gerçekleşmesini sağla. Hidrojellerin son hacmi 100 μL'dir.
- Jelleşmeye izin vermek için jelleri 37 °C ve %5CO2 sıcaklıkta 30 dakika kuluçka yapın. Kuyuya tam kültür ortamı (%10 FBS, 100 μM sodyum piruvat, %1 NEAA ve %1 penisilin ve streptomisin takviyesi içeren DMEM) ekleyerek jelin tamamen suya batmasını sağlar (Şekil 2). Jeli 37 °C ve %5CO2 sıcaklığında inkübe edin, Brillouin mikroskobu altında ölçüm yapılmaya hazır olana kadar.
NOT: Brillouin ölçümlerinden önce hidrojeller içindeki sferoid kültürün süresi, hücre tipine ve araştırma sorusuna bağlı olacaktır. Örneğin, bu çalışmada sferoidler genellikle hidrojeller içinde 7 güne kadar kültürlenir ve bu süre boyunca Brillouin mikroskoposu ile izlenir. Sferoid kapsülasyonlu veya olmayan hidrojellerin viskoelastik özellikleri karakterize edilmiş ve sferoidlerin jel mekaniği üzerinde belirgin bir etkisi göstermemiştir (Şekil S2).
4. Hidrojellerde floresans boyama ve sferoidlerin görüntülemesi
NOT: Bu çalışmada, hücre çekirdekleri ve sitoskeleti oluşturan aktin filamentleri, Brillouin ölçümlerinden önce floresan boyama ve görüntülenme yapıldı.
- Aktini lekelemek için, görüntülemeden 3 saat önce canlı aktin lekesi kültür ortamına 500'de 1 seyreltme ile ekleyin. Numuneyi ışıktan uzak tutmak için folyoya sararak kullanın. Jeli 37 °C ve %5CO2 ile inkübe edin.
- Çekirdekleri boyamak için, görüntülemeden 40 dakika önce jelin çevresindeki kültür ortamına 2 damla/mL canlı nükleer leke ekleyin. Örnekleri kuluçka makinesine geri gönderin.
- Boyama kuluçka süresi tamamlandıktan sonra mümkün olan en kısa sürede floresan görüntüleri alın. Uygun optik yolun (mikroskop kamerasını açığa çıkaran) ve doğru filtre tekerleği pozisyonunun seçildiğini doğrulayın. Odadaki ışıkları kısın ve arka planı yakalayın. Işık yayan diyot (LED) ışık kaynağını açın ve boyama protokolüne bağlı olarak dalga boyuncalığını seçin (burada çekirdekler için 385 nm, aktin görüntüleme için 621 nm kullanılmıştır). Tercih edilen yazılımla 20x büyütme ile sferoidlerin floresan görüntülerini elde edin. İş bitince LED kaynağını kapatın.
5. Sferoidlerin Brillouin mikroskopisi
- Cihazların açılması ve lazer emisyonu
- Cihazları açın: bilgisayar, spektrometre, mikroskop kameraları, mikroskop, lazer soğutma fanı ve kontrolcünün anahtarını açarak lazer emisyonu. Lazerin termalize olduğundan emin olmak için spektrometre optimizasyonundan 15 dakika önce bunu yapıldığından emin olun. Bir güç ölçerle (deneyimizde 100 mW) yayılan lazer gücünün beklendiği gibi olduğunu doğrulayın.
- Sıcaklık kontrol uygulamasını açın ( bkz. Malzemeler Tablosu) ve etalon sonrası ışın gücünü ölçerek etalon sıcaklığının optimize edildiğini doğrulayın. Eğer beklenenden çok daha düşükse (kullanılan optik yoğunluk (OD) filtresi hesaba katıldıktan sonra), hedef sıcaklığı 1 °C değiştirin ve zamanla güçte artış olup olmadığını gözlemleyin. Eğer azalma varsa, değişim yönünü tersine çevirin. Güç beklendiğine yaklaştığında, azıma ulaşana kadar küçük adımlarla (0,1 °C) ayarla.
- Akrilik küpün içinde objektif lens odak noktasının ayarlanması
NOT: "Pompa katil"den spektrometreye elastik saçılma ve bağlanmanın bastırılması, her deneyden önce sert, homojen referans materyal örneğiyle optimize edilir. Bu çalışmada akrilik küp kullanılmıştır. - SpectraLok yazılımını açın ve tüm cihazlar tespit edilene kadar bekleyin. Ana pencerenin sol tarafında (Şekil 3), spektrometre kamerasını seçin.
- Akrilik küpü mikroskop numune tutucusuna şeffaf tarafı objektif merceğe bakacak şekilde takın. Objektif lensi mümkün olduğunca aşağı indirin ve küpü altına ortalayın. Mikroskoptaki optik yolun spektrometre kamerasının maruz kalması için seçildiğinden emin olun (döner port seçicisini L konumuna ayarlayın).
NOT: Bizim kurulumuzda L portu konfokal sirkülatöre bağlıken, R portu mikroskop kamera portuna bağlı. - SpectraLok Kamera penceresinde sensör pozlama süresini 500 ms'e, yazılım kazancını ise 100 ms'e ayarlayın. Yazılım kazanç ayarı sadece görselleştirme için kontrastı artırır.
- Akrilik küpü mikroskop numune tutucusuna şeffaf tarafı objektif merceğe bakacak şekilde takın. Objektif lensi mümkün olduğunca aşağı indirin ve küpü altına ortalayın. Mikroskoptaki optik yolun spektrometre kamerasının maruz kalması için seçildiğinden emin olun (döner port seçicisini L konumuna ayarlayın).
- Lazer deklanşörünü açın.
NOT: Lazer yayımı açıkken, kafa/gözleri lazer ışını yoluna asla sokmamaya dikkat edin.- Yakalama tuşuna basın ve objektif lensi yukarı doğru hareket ettirin. Sinyal yoğunluğunda önemli bir artış olacak ve doygun bir desen (Şekil 4A) ortaya çıkacaktır. Bu, hava-akrilik küp arayüzünde lazer ışığının güçlü bir yansımasından kaynaklanır. Lens daha yukarı taşındığında, sinyal yoğunluğu azalır ve Brillouin zirveleri belirgin hale gelir. Objektif merceği Brillouin zirvelerinin yoğunluğu sabit olana kadar yeniden konumlandırmaya devam edin (Şekil 4B). Bu, tamamen akrilik küp içinde bulunan odak noktasına karşılık gelir.
- Etalon basıncının en iyi şekilde elastik olarak saçılan ışığı en aza indirmek için optimize edilmesi
NOT: Aşağıdaki adımların amacı, elastik olarak saçılan Rayleigh sinyalini bastırarak sadece frekans kaydırılmış Brillouin ışığının spektrometre kamerasına ulaşmasını sağlamaktır. - SpectraLok yazılımında, Pump Killer (PK) kontrol penceresini açın (Şekil 5).
- En parlak Brillouin siparişlerinden birine yakınlaştırın ve basınç aktüatörü konumunu hareket ettir rel'e tıklayarak 100 μm aralıklarla ayarlayarak Rayleigh zirve yoğunluğunu en aza indirin. Rayleigh sinyali artıyorsa, değişim yönünü tersine çevirerek geri çevirin. Daha sonra, etalon basıncını 10 μm aralıklarla ince ayarlar.
NOT: Akrilik küpte Rayleigh ışığı tamamen bastırılabilir; Heterojen bir biyolojik örneklemde bu durum geçerli olmayabilir. - Çizgi üst katmanını spektral veriyi "açmak" için optimize etmek
NOT: Aşağıdaki prosedür, kamera sensörünün (x, y) piksel koordinatlarının LUT arama tablosunun uygulanmasıyla dalga boyuna uygun şekilde eşlenmesini sağlar. - Kamera penceresinde, Brillouin emirlerinden birine yakınlaştırın.
- Kamera görüntüsünde LUT'un uygulandığı şeritleri görselleştirmek için s tuşuna basın (Şekil 6A). Ayarlar penceresini açın ve şeritlerin optimal yatay ofsetini yeniden hesaplamak için hızlı kalibrasyon tuşuna basın. Sensör doygunsa, bu adımdan önce pozlama süresini kısıtlayın.
- Kamera penceresinde, mor çizgilerin Brillouin zirvelerinin merkezi bölgesiyle iyi örtüldüğünü doğrulayın (Şekil 6B).
- PK-spektrometre bağlanmasının optimize edilmesi
- Kolimatör lens eksenlerinin ayarlanması, PK'dan spektrometreye ışığın bağlanmasının verimliliğini en üst düzeye çıkarır.
- Spektrum penceresini açın ve spektrumu almak için aç ' seçeneğine tıklayın (Şekil 7).
- PK kontrol penceresini açın. 0.0005° artışlarla, Brillouin sinyalini maksimize etmek için kolimatör eksenleri 1 ve 2 yinelemeli olarak ayarlanır. Gerekirse, etalon basıncı kontrolü daha da optimize edilebilir. Homojen bir akrilik küpte, Rayleigh sinyali tamamen bastırılabilir (Şekil 7A). Bazı kalıntı Rayleigh sinyalleriyle doğru Brillouin ölçümleri mümkün olsa da (Şekil 7B), zayıf bastırma durumunda (Şekil 7C), elastik olarak saçılan ışık Brillouin sinyalini gizler.
- Elde edilen Brillouin sinyalinin referans genliğiyle karşılaştırılabilir olduğunu doğrulayın. Örneğin, sistemimizde, 500 ms pozlamada ve OD 0.3 ile Brillouin tepe yoğunluk genliği yaklaşık 3000 sayımdır. PK parametrelerindeki değişiklikleri yapılandırma dosyasına kaydetmek için, PK penceresinde hepsini yenile ve hepsini kaydet. Ayrıca, ana pencerede Dosya G/Ç bölümünde kaydet tuşuna basın.
- Tarama yazılımına geçmek ve parametrelerin hâlâ optimize edilip edilmediğini doğrulamak
- SpectraLok'u kapatın ve tarama yazılımını açın. Mevcut protokolde LabVIEW tabanlı yazılım kullanılmakta olup, Şekil S3'te daha ayrıntılı olarak açıklanmıştır. Tarama geometrisini ayarlamak için, bu özel kullanıcı arayüzü (UI) Prior XY-Z çeviri aşamasını kontrol etmek için kullanılır; ancak başka yöntemler de kullanılabilir.
- Cam tabanlı petri kabını, akrilik küp yerine hidrojel-sferoid numuneyle birlikte takın (Şekil 8). Jelin susuz kalmasını önlemek için kuluçka makinesi 37 °C ve %95 göreli nem olarak ayarlanır. Petri kabı kapağını çıkarın ve jelin batırılması için medya ekleyin. Jelin hareketini önlemek için jelin üstüne bir örtü parçası ekleyin.
- Küresi bul. Lazer ışını engellendiğinde, mikroskop optik yolunu okul merceğine geçirin. Beyaz ışık aydınlatmasını açın. Joystick'i kullanarak sample aşamasını manuel olarak kontrol edin, küresi bulup ona odaklanın.
- Küre için parlak alan görüntüsünü alın. Kontrol çarkını döndürerek aydınlatma parlaklığını ayarlayın. Optik yolu R'ye ayarlayın, böylece mikroskop kamerası ortaya çıkar. Pozlama süresi gerektiğinde yüksek kontrastlı bir görüntü elde etmek için ayarlanabilir (yani 50 ms).
- Spektrometre ve açma parametrelerinin hâlâ optimize edildiğini doğrulayın. Mikroskop portunu L konumuna ayarlayın ve lazerle arka planı yakalayın. Çarkı ateşleme rejimine çevirerek lazeri açın. İstenen sinyal-gürültü oranına göre pozlama süresi seçilir. Bu ölçümlere özgü pozlama süresi 200-500 ms'dir.
- İlk kalibrasyondan bir süre (yani birkaç saat) geçmişse veya sistemde mekanik bir bozulma olduysa, etalon basınç ayarı veya PK-spektrometre bağlantısı artık optimal olmayabilir. Gerekirse yukarıda bahsedilen ayarları tekrar optimize etmek için 5.3-5.5 adımlarını tekrarlayın.
- Açılan spektrumdan, Brillouin zirve oturma serisini seçin. Eşik değerini Brillouin zirvelerinin yoğunluğunun yaklaşık yarısı kadar ayarlayın. Bu eşiğin altında genlikli Brillouin zirvelerini göz ardı edin. Lazer dalga boyunu, tanımlanan tüm Brillouin zirve çiftlerine göre düzeltin.
- Çok boyutlu tarama geometrisinin ayarlanması
- Tarama bölgesinin genişliğini ve adım boyutunu ayarlayarak raster tarama geometrisini seçin.
NOT: Yaklaşık 70 μm boyuttaki sferoidler için, düşük çözünürlüklü tarama için genellikle 150 μm × 150 μm tarama alanı ve 10 μm adım boyutu kullanırız. Bu, yaklaşık 3,4 dakikada düşük çözünürlüklü bir 2B harita elde eder.- Taramayı başlat.
- Brillouin sistemini kapatmak
- Yazılımı kapat ve bilgisayarı kapat. Kontrol cihazındaki tuşu kullanarak lazer emisyonunu kapatın. Deklanşör tekerleğini bloklu konumda bırakın. Lazer fan soğutmasını kapatın. Mikroskop ve spektrometre kameralarını kapatın. Son olarak, mikroskobu kapatın.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Sonuçlar
Tarama sonrası elde edilen dosyalar arasında spektrumlar, tarama uyum parametreleri (.csv), tarama parametreleri ve analizi, BFS ve çizgi genişliği haritaları, ilgi alanının belirlendiği parlak alan görüntüsü ve UI penceresinin ekran görüntüsü bulunur. Çok boyutlu Brillouin taramasının her noktası için bir BFS değeri elde edilir. Şekil 9'da, parlak alan görüntüsüyle birlikte yüksek çözünürlüklü bir örnek tarama ve aktin filamentleri ile çekirdekleri gösteren...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Hidrojellere gömülü sferoidlerin mikroskala çözünürlüğüyle biyomekanik olarak görüntülemesi için Brillouin mikroskoposunu kullanmak için bir protokol oluşturduk. Hidrojel, elde edilen BFS değerlerindeki farklılıklarla canlı sferoidden ayırt edilebilir. Temsil eden sonuçlarda MSC sferoidleri ve PEG-maleimid hidrojelleri kullandık; ancak bu protokol diğer hücre tiplerine (örneğin, kanser hücre hatları) geniş çapta uygulanabilir. Bu çalışmadaki hücreler canlı ve ilgili bir 3D mikro ortamda ...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Yazarlar, T. Allen ve G. Wardle'ın, bu çalışmada kullanılan Brillouin spektrometresini üreten ve satan LightMachinery'nin çalışanları olduğunu belirtmektedir. Şirket, bu çalışmanın yayımlanmasından fayda sağlayabilir. Diğer tüm yazarlar rekabet eden çıkarlar belirtmemektedir.
Teşekkürler
Yazarlar, bu yöntemin geliştirilmesini desteklemek için MechanoMeds Faz 2 hibesi, UKRI/EPSRC, EP/X033554/1 hibe numarasından elde edilen fonları kabul etmektedir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 4-kol PEG-Maleimid (20 kDa) | Yaratıcı PEGWorks | PSB-455 | https://creativepegworks.com/product/4-arm-peg-mal-mw-20k |
| AggreWell 400 plakaları | STEMCELL Teknolojileri | 34411 | http://stemcell.com/products/aggrewell400.html |
| Hava aralığında etalon | LightMachinery | HF-16074-660 | https://lightmachinery.com/spectrometers/brillouin-spectroscopy-excitation-laser-optimization/ |
| Anti-yapışma yıkama çözeltisi | STEMCELL Teknolojileri | 7010 | https://www.stemcell.com/products/aggrewell-rinsing-solution.html |
| Bold Line Top Stage Kuluçka Makinesi | Okolab | H301-NIKON-NZ100/200/500-N | https://www.oko-lab.com/live-cell-imaging/stage-top-digital-gas/chamber/nikon/h301-nikon-nz100-200-500-n |
| Cobolt Flamenco-100 660 nm lazer | Huebner | 0660-05-01-0100-700 | https://hubner-photonics.com/products/lasers/single-frequency-lasers/05-01-series/ |
| Konfokal sirkülatör | LightMachinery | HF-13311 | Yok |
| D-LEDi Floresans aydınlatma sistemi | Nikon | MBF83000 | https://www.microscope.healthcare.nikon.com/en_EU/products/light-sources/d-ledi |
| EPI-FL modülü | Nikon | Ti2-LA-FL-3 | https://www.microscope.healthcare.nikon.com/en_EU/products/accessories/intermediate-modules |
| Fibronectin (insan) | YoProteins | 663 | https://www.yoproteins.com/fibronectin-human-5-mg-663.html |
| Gibco Dulbecco' s Modifiye Kartal Ortamı (DMEM) | ThermoFisher | 11965092 | https://www.thermofisher.com/order/catalog/product/11965092 |
| HyperFine Brillouin spektrometresi | LightMachinery | HF-8999-PK-660 | https://lightmachinery.com/spectrometers/brillouin-hyperfine-spectrometer/ |
| LED-DA/FI/TR/Cy5-B Dörtlü bantlı filtre küpü | Nikon | MXR00753 | https://www.microscope.healthcare.nikon.com/en_EU/products/accessories/fluorescent-filter-cubes |
| Mezenkimal kök hücreler (MSC) | PromoCell | C-12974 | https://promocell.com/us_en/human-mesenchymal-stem-cells-hmsc.html |
| Motorlu çeviri aşaması | Önceki Bilimsel Çalışmalar | H117E2NN | https://www.prior.com/imaging-components/motorized-stages?filter=MicroscopeBrand-33 |
| NucBlue™ Live ReadyProbes™ reaktif (Hoechst 33342) | ThermoFisher | R37605 | https://www.thermofisher.com/order/catalog/product/R37605 |
| Objective, S Plan Fluor 20X NA 0.45, hava | Nikon | MRH08230 | https://www.microscope.healthcare.nikon.com/products/optics/selector/comparison/-1708 |
| ORCA-Fusion CMOS kamera | Hamamatsu | C14440-20UP | https://www.hamamatsu.com/eu/en/product/cameras/cmos-cameras/C14440-20UP.html |
| PEG-ditiol, 2 kDa | Yaratıcı PEGWorks | PLS-613 | https://creativepegworks.com/product/hs-peg-sh-mw-2k-10g |
| sCMOS kamera | Teledyne Vision Çözümleri | 01-IRIS-15-USB-M-16-C | https://www.teledynevisionsolutions.com/en-gb/products/iris/?model=01-IRIS-15-USB-M-16-C&vertical=tvs-photometrics&segment=tvs |
| SPY555-aktin | Spirokrom | CY-SC202 | https://spirochrome.com/product/spy555-actin/ |
| TemperatureApp | Sıcaklık kontrol yazılımı | ||
| VPM peptid, GCRDVPMSMRGGDRCG | GenScript | Yok | Yok |
| Eclipse Ti-2A mikroskobu | Nikon | Eclipse Ti-2A | https://www.microscope.healthcare.nikon.com/en_EU/products/inverted-microscopes/eclipse-ti2-series |
Kaynaklar
- Caleb, J., Yong, T. Is it time to start transitioning from 2D to 3D cell culture. Front Mol Biosci. 7, 33(2020).
- Walker, M., Gourdon, D., Cantini, M. Beyond static models: mechanically dynamic matrices reveal new insights into cancer and fibrosis progression. Curr Opin Biomed Eng. 33, 100570(2025).
- Walker, M., Morton, J. P. Hydrogel models of pancreatic adenocarcinoma to study cell mechanosensing. Biophys Rev. 16 (6), 851-870 (2024).
- Ryu, S., Martino, N., Kwok, S. J. J., Bernstein, L., Yun, S. H. Label-free histological imaging of tissues using Brillouin light scattering contrast. Biomed Opt Express. 12 (3), 1437-1448 (2021).
- Zhang, J., Scarcelli, G. Mapping mechanical properties of biological materials via an add-on Brillouin module to confocal microscopes. Nat Protoc. 16 (2), 1251-1275 (2021).
- Kabakova, I., et al. Brillouin microscopy. Nat Rev Methods Primers. 4, 8(2024).
- Prevedel, R., Diz-Muñoz, A., Ruocco, G., Antonacci, G. Brillouin microscopy: an emerging tool for mechanobiology. Nat Methods. 16 (10), 969-977 (2019).
- Czajkowsky, D. M., Iwamoto, H., Shao, Z. Atomic force microscopy in structural biology: from the subcellular to the submolecular. J Electron Microsc. 49 (3), 395-406 (2000).
- Glaser, K. J., Manduca, A., Ehman, R. L. Review of MR elastography applications and recent developments. J Magn Reson Imaging. 36 (4), 757-774 (2012).
- Jordan, J., et al. Rapid stiffness mapping in soft biologic tissues with micrometer resolution using optical multifrequency time-harmonic elastography. Adv Sci. 12 (8), e2410473(2025).
- Mattarelli, M., Vassalli, M., Caponi, S. Relevant length scales in Brillouin imaging of biomaterials: the interplay between phonons propagation and light focalization. ACS Photonics. 7 (9), 2319-2328 (2020).
- Caponi, S., Fioretto, D., Mattarelli, M. On the actual spatial resolution of Brillouin imaging. Opt Lett. 45 (5), 1063-1066 (2020).
- Wu, P. H., et al. A comparison of methods to assess cell mechanical properties. Nat Methods. 15 (7), 491-498 (2018).
- Rodríguez-López, R., et al. Network viscoelasticity from Brillouin spectroscopy. Biomacromolecules. 25 (2), 955-963 (2024).
- Troyanova-Wood, M., Meng, Z., Yakovlev, V. V. Differentiating melanoma and healthy tissues based on elasticity-specific Brillouin microspectroscopy. Biomed Opt Express. 10 (4), 1774-1781 (2019).
- Rad, M. A., et al. Micromechanical characterisation of 3D bioprinted neural cell models using Brillouin microspectroscopy. Bioprinting. 25, e00179(2022).
- Conrad, C., Gray, K. M., Stroka, K. M., Rizvi, I., Scarcelli, G. Mechanical characterization of 3D ovarian cancer nodules using Brillouin confocal microscopy. Cell Mol Bioeng. 12 (3), 215-226 (2019).
- Yan, G., Monnier, S., Mouelhi, M., Dehoux, T. Probing molecular crowding in compressed tissues with Brillouin light scattering. Proc Natl Acad Sci U S A. 119 (4), e2113614119(2022).
- Hilai, K., et al. Mechanical evolution of metastatic cancer cells in 3D microenvironment. Small. 21, 2403242(2025).
- Mahajan, V., et al. Mapping tumor spheroid mechanics in dependence of 3D microenvironment stiffness and degradability by Brillouin microscopy. Cancers. 13 (21), 5549(2021).
- Margueritat, J., et al. High-frequency mechanical properties of tumors measured by Brillouin light scattering. Phys Rev Lett. 122 (1), 018101(2019).
- Zhang, J., Nikolic, M., Tanner, K., Scarcelli, G. Rapid biomechanical imaging at low irradiation level via dual line-scanning Brillouin microscopy. Nat Methods. 20 (5), 677-681 (2023).
- Nikolić, M., Scarcelli, G., Tanner, K. Multimodal microscale mechanical mapping of cancer cells in complex microenvironments. Biophys J. 121 (19), 3586-3599 (2022).
- Scarcelli, G., et al. Noncontact three-dimensional mapping of intracellular hydromechanical properties by Brillouin microscopy. Nat Methods. 12 (12), 1132-1134 (2015).
- Berghaus, K. V., Yun, S. H., Scarcelli, G. High speed sub-GHz spectrometer for Brillouin scattering analysis. J Vis Exp. (106), e53468(2015).
- Shi, C., et al. Monitoring the mechanical evolution of tissue during neural tube closure of chick embryo. J Vis Exp. (201), e66117(2023).
- Trujillo, S., et al. Engineered 3D hydrogels with full-length fibronectin that sequester and present growth factors. Biomaterials. 252, 120104(2020).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Chiu, C. L., Clack, N. Napari: a Python multi-dimensional image viewer platform for the research community. Microsc Microanal. 28 (S1), 1576-1577 (2022).
- Passeri, A. A., et al. Brillouin spectroscopy for accurate assessment of morphological and mechanical characteristics in micro-structured samples. J Phys Photonics. 6 (3), 035016(2024).
- Scarcelli, G., Yun, S. H. In vivo Brillouin optical microscopy of the human eye. Opt Express. 20 (8), 9197(2012).
- Pollard, T. D., Cooper, J. A. Actin, a central player in cell shape and movement. Science. 326, 1208-1212 (2009).
- Antonacci, G., Braakman, S. Biomechanics of subcellular structures by non-invasive Brillouin microscopy. Sci Rep. 6 (1), 37217(2016).
- Coker, Z. N., et al. Brillouin microscopy monitors rapid responses in subcellular compartments. PhotoniX. 5 (1), 9(2024).
- Yang, F., et al. Pulsed stimulated Brillouin microscopy enables high-sensitivity mechanical imaging of live and fragile biological specimens. Nat Methods. 20 (12), 1971-1979 (2023).
- Antonacci, G., et al. Recent progress and current opinions in Brillouin microscopy for life science applications. Biophys Rev. 12 (3), 615-624 (2020).
- Savitzky, A., Golay, M. Smoothing and differentiation of data by simplified least squares procedures. Anal Chem. 36, 1627-1639 (1964).
- Yan, G., et al. Evaluation of commercial virtually imaged phase array and Fabry-Pérot based Brillouin spectrometers for applications to biology. Biomed Opt Express. 11 (12), 6933-6944 (2020).
- Elsayad, K. Spectral phasor analysis for Brillouin microspectroscopy. Front Phys. 7 (62), 1-8 (2019).
- Mahmodi, H., et al. Principal component analysis in application to Brillouin microscopy data. J Phys Photonics. 6 (2), 025009(2024).
- Antonacci, G., Foreman, M. R., Paterson, C., Török, P. Spectral broadening in Brillouin imaging. Appl Phys Lett. 103 (22), 221105(2013).
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Yeniden basım ve izinler
