Alkol kötüye kullanımı, baskılanmış mitokondriyal solunum ve biyoenerjetik nedeniyle alveoler makrofaj () bağışıklığını bozar. Yakın zamanda etanol (EtOH) maruziyetinin'lerde mitokondriyal solunum için glutamin bağımlılığını artırdığını gösterdik. Burada, hücre dışı akı biyoanalizörü kullanılarak EtOH ile tedavi edilen'lerde mitokondriyal solunum için glutamin kullanımını belirlemek için yöntemler sağlanmaktadır.
Yöntem makalesi
Hücre Dışı Akı Biyoanalizörü Kullanılarak Kronik Etanole Maruz Kalan Alveolar Makrofajlar için Yakıt Kaynağı Olarak Glutaminin Değerlendirilmesi
Bu makalede
Özet
Özet
Alveoler makrofajlar ('ler), alt solunum yolunda patojenlere karşı ilk hücresel savunma hattıdır. Bununla birlikte, kronik ve aşırı alkol kullanımı,'lerin kısmen düzensiz yakıt metabolizması ve biyoenerjetik yoluyla alveolar boşluktan fagositize etme ve patojenleri temizleme yeteneğini bozar. Önceki çalışmalarımız, kronik etanol (EtOH) tüketiminin mitokondriyal biyoenerjetik değerleri bozduğunu ve'lerde laktat seviyelerini artırdığını göstermiştir. Ayrıca, yakın zamanda EtOH'nin glutamin bağımlılığını ve glutamine bağımlı maksimal solunumu arttırdığını, esnekliği azalttığını, piruvata bağımlı solunumdan glutamine bağımlı solunuma doğru kaydığını gösterdik. Glutaminoliz, piruvat laktik asit üretimi için kullanıldığında veya diğer yakıt kaynakları yetersiz olduğunda mitokondriyal solunum için önemli bir telafi edici yoldur. 72 saat boyunca EtOH veya EtOH'ye (% 0.08) maruz kalan bir fare hücre hattı, MH-S hücreleri kullanarak, hücre dışı akı biyoanalizörü kullanarak mitokondriyal solunum ve biyoenerjetiklerin bir yakıt kaynağı olarak glutamin üzerindeki bağımlılığını belirledik. Glutaminin glutamata enzimatik dönüşümünü önleyen bir glutaminaz 1 inhibitörü olan bis-2- (5-fenilasetamido-1,3,4-tiadidol-2-il) etil sülfüre (BPTES) yanıt olarak gerçek zamanlı ölçümler yapıldı, medya aracında veya tek başına araca yanıt olarak, ardından mitokondriyal stres test edildi. Burada sağlanan adım adım protokol, birden fazla biyolojik ve deneysel kopyada glutamine bağımlı bazal mitokondriyal solunum, mitokondriyal ATP'ye bağlı solunum, maksimal mitokondriyal solunum ve mitokondriyal yedek solunum kapasitesinin ortalama seviyelerini analiz etmek için yöntemlerimizi ve hesaplamalarımızı açıklamaktadır.
Giriş
Alkol kullanım bozukluğu (AUD) Amerika Birleşik Devletleri'nde 28 milyondan fazla insanı etkilemektedir1. AUD'li kişilerin solunum yolu enfeksiyonu geliştirme olasılığı 2-4 kat daha fazladır 2,3, erken morbidite ve mortalite riskini artırır 3,4,5. Alkol kötüye kullanımı, kısmen akciğer bağışıklık fonksiyonunu baskılayarak solunum yolu enfeksiyonlarına karşı duyarlılığı artırır. Alveoler makrofajlar ('ler), alt akciğerdeki patojenlere karşı ilk hücresel savunma hattıdır, burada solunan mikropları fagositize eder ve temizlerler. Bununla birlikte, kronik alkol tüketimi,'lerin patojenleri yutma ve öldürme kapasitesini bozar 6,7.
'lerin fagositoz gibi bağışıklık fonksiyonları, yüksek adenozin trifosfat (ATP) üretimi için gerekli metabolik olarak aktif yollar gerektiren enerji gerektiren süreçlerdir. Mitokondriyal oksidatif fosforilasyon, ATP üretmek için en verimli hücresel süreçtir, ancak kronik etanol (EtOH) maruziyeti mitokondriyal kaynaklı oksidatif stresi artırır, bu da'lerde mitokondriyal disfonksiyona neden olabilir 8,9,10. Hücresel oksijen tüketim oranı (OCR) kullanılarak ölçülen mitokondriyal solunum, gerçek zamanlı olarak bir hücre dışı akı biyoanalizörü kullanılarak ölçülebilir. Mitokondriyal biyoenerjetik değerleri belirlemek için oligomisin (ATP sentaz inhibitörü), karbonil siyanür-p-triflometoksifenilhidrazon (FCCP, proton birleştirici) ve rotenon / antimisin A'ya (sırasıyla R / A, mitokondriyal kompleks I ve III inhibitörleri) yanıt olarak değerlendirilen mitokondriyal solunum profilleri kullanılır. Kronik EtOH, azalmış mitokondriyal bazal solunum, ATP'ye bağlı solunum, maksimal solunum ve yedek solunum kapasitesi10 ile kanıtlandığı gibi'lerde mitokondriyal biyoenerjetik değerleri azaltır.
Hücreler, ATP üretimi için piruvat, glutamin veya yağ asitleri gibi yakıt kaynaklarına çeşitli düzeylerde bağımlıdır. Ayrıca, hücresel biyoenerjetik düzenlemeleri için yakıt kullanımını değiştirebilecekleri bir esneklik seviyesine de sahiptirler. Glutaminoliz, özellikle piruvat laktik asit üretimine yönlendirildiğinde veya yağ asitleri yetersiz olduğunda mitokondriyal solunum için önemli bir yoldur. Son çalışmamız, kronik EtOH maruziyetinin glutamin üzerindeki bağımlılığını arttırdığını ve mitokondriyal solunum için glutamin ve diğer yakıt kaynaklarını kullanmak için esnekliğini azalttığını göstermiştir11. Bu sonuçlar, EtOH'ye maruz kalan MH-S hücrelerinin piruvat oksidasyon inhibitörü UK5099 ile tedavisinin, UK5099 ile tedavi edilen ortam kontrolüne maruz kalan MH-S hücrelerine kıyasla mitokondriyal biyoenerjetik değerleri değiştirmediğini gösteren verilerle birlikte, piruvata bağımlı solunumdan uzaklaşmayı ve EtOH MH-S hücrelerinde glutamine bağımlı solunuma doğru bir kayma olduğunu göstermiştir. Bununla birlikte, bu değişim biyoenerjetik taleplerini karşılamak için yetersizdir11. Burada, hücre dışı akı biyoanalizörü kullanarak kronik EtOH'ye maruz kalan'lerde mitokondriyal solunum için bir yakıt kaynağı olarak glutamini değerlendirme yöntemlerini açıklıyoruz. Bu protokol, 96 oyuklu (11,04 mm2 alan) bir format için oluşturulmuş ve optimize edilmiştir ve daha büyük hücre kültürü kuyusu boyutları için ayarlanmalıdır. Mitokondriyal biyoenerjetik için glutamin bağımlılığı, glutaminin glutamata enzimatik dönüşümünü seçici olarak inhibe etmek için bis-2- (5-fenilasetamido-1,3,4-tiadidol-2-il) etil sülfür (BPTES, glutaminaz 1 inhibitörü) kullanılarak belirlenir. Bu çalışmada sunulan veriler, Crotty ve ark.11'de yayınlanan, tedavi edilmemiş kontrol ve kronik EtOH'ye maruz kalan fare hücre hattı, MH-S hücrelerinin medya kontrolü ve BPTES ile tedavi edilen deney grupları için ek biyolojik kopyalardır.
Protokol
1. İn vitro kronik EtOH maruziyeti
- Nemlendirilmiş bir inkübatörde %10 fetal sığır serumu, %1 penisilin/streptomisin, 11.9 mM sodyum bikarbonat, 40 mg/mL gentamisin ve 37°C'de %5CO2 ile 50 μM 2-merkaptoetanol içeren RPMI-1640 içeren tam ortamda bir fare alveolar makrofaj hücre hattı olan MH-S hücrelerinin kültürü.
- EtOH ile veya EtOH (0.8 mg / mL veya% 0.08) ile kültürlenmiş MH-S hücrelerini 72 saat boyunca tedavi edin, burada EtOH her 24 saatte bir değiştirilmelidir. EtOH ile muamele edilmiş MH-S hücrelerini, inkübatör suyunda% 0.08 EtOH içeren ayrı bir nemlendirilmiş inkübatörde% 5 CO2 ile% 37 ° C'de inkübe edin.
2. Hücre dışı akı biyoanalizörü kullanarak glutamini bir yakıt kaynağı olarak değerlendirmek için MH-S hücrelerinin kaplanması
- İşlenmemiş kontrol (Con) ve kronik EtOH ile muamele edilen MH-S hücrelerinin, 96 oyuklu hücre dışı akı mikrokültür plakasına geçmek için T-75 şişelerinde en az% 50 birleşmeye (% 70 -% 90 birleşme idealdir) kadar büyütüldüğünden emin olun. BPTES enjeksiyonlarıyla karşılaştırmak için Con ve EtOH deneysel koşullarının biyolojik kopyası başına 5-6 teknik kopya ve her biri için ortam kontrolleri için bir plaka haritası hazırlayın (biyolojik n= 1 için toplam dört grup).
- Hücreleri ortam veya fosfat tamponlu tuzlu su ile durulayın.
- Şişeye 6 mL serum içeren ortam ekleyin.
- Hücreleri ayrılana ve plakanın alt kısmı temiz olana kadar kazıyın. Tripsin, MH-S hücre dekolmanı için gerekli değildir, ancak diğer hücre tiplerinde yardımcı olabilir.
- Serolojik bir pipet veya 1 mL pipet kullanarak hücreleri ayırın.
- Askıdaki hücreleri 15 mL'lik konik bir tüpe aktarın ve 6 dakika boyunca 200 x g'da santrifüjleyin.
- Süpernatanı aspire edin.
- 1 mL ortam ekleyin ve hücreleri iyice yeniden süspanse edin.
- 10 μL'yi bir mikrosantrifüj tüpüne aktarın ve 10 μL tripan mavisi ekleyin. İyice karıştırın.
- 10 μL hücre / tripan mavisi karışımını bir hemositometre veya hücre sayacının bir tarafına aktarın.
- Bir ışık mikroskobu veya hücre sayacı kullanarak hücre sayısını sayın.
- Hücre yoğunluğunu mililitre başına ortalama canlı hücre sayısı olarak hesaplayın.
- İhtiyaç duyulan seyreltmeler için hesaplamalar yapın:
Gerekli kuyu sayısı x 10000-15000 hücre = gereken toplam hücre sayısı.
İhtiyaç duyulan kuyu sayısı x 80 μL = ihtiyaç duyulan toplam yeniden askıya alınmış hücre hacmi. - 96 oyuklu hücre dışı akı mikrokültür plakasının gerekli kuyucuklarına 80 μL hücre uygulayın.
- Köşe kuyularını herhangi bir hücre veya ortamdan tamamen yoksun bırakın. Bu kuyular arka plan ölçümleri için kullanılacaktır.
- Hücrelerin hücre dışı akı mikrokültür plakasında yapışmasını ve dengelenmesini sağlamak için hücreleri gece boyunca %5 CO2 ile 37 ° C'lik nemlendirilmiş bir inkübatörde inkübe edin.
- Adım 1'i kullanarak 96 oyuklu hücre dışı akı mikrokültür plakasındaki MH-S hücrelerini 72 saat boyunca tedavi edin.
- Hücre dışı akı biyoanalizörü deneyini çalıştırmadan önce en az 4 saat ve 24 saate kadar, 96 oyuklu bir hücre dışı akı pak kartuşunu nemlendirin.
- Hücre dışı akı pakının üst kısmını çıkarın ve akı pakının sondalanan kısmını yüzü yukarı bakacak şekilde tezgahın üzerine yerleştirin. Hücre dışı akı pak kartuşunun alt kısmındaki her bir oyuğa 200 μL hücre dışı akı kalibranı çözeltisi uygulayın.
- Bölümleri bir araya getirin ve hücre dışı akı pak kartuşunu parafilme sarın. 37 °C CO2 olmayan nemlendirilmiş inkübatöre veya 37 °C boncuk banyosuna yerleştirin.
- Tahlil tasarımını içeren bilgisayarı açın ve deneyi gerçekleştirmeden en az 4 saat önce ısınmasını sağlamak için hücre dışı akı biyoanalizör cihazına bağlı çalıştırma/analiz yazılımını açın.
3. MH-S hücrelerinde mitokondriyal solunum için bir yakıt kaynağı olarak glutamini değerlendirmek için hücre dışı bir akı biyoanalizörü kullanma
NOT: Bu prosedürün genel görünümü Şekil 1'de gösterilmiştir.
- Con- ve EtOH ile muamele edilmiş kültürlenmiş MH-S hücrelerini bir ışık mikroskobu altında kontrol edin ve hücrelerin sağlıklı olduğundan ve tek tabakalı bir şekilde kuyucuklara yapıştığından emin olun. Testi güvenilir bir şekilde gerçekleştirmek için hücrelerin en az %70 birleşim (%90 birleşim idealdir) olduğundan emin olun.
- Hücre dışı akı baz ortamını aşağıdaki takviyelerle hazırlayın:
- 35 mL hücre dışı akı baz ortamını 50 mL'lik bir tüpe alikot.
- 350 μL 100 mM sodyum piruvat (1 mM nihai konsantrasyon), 350 μL D-glikoz (10 mM nihai konsantrasyon) ve 350 μL GlutaMAX ekleyin, bu da L-glutamin (2 mM nihai konsantrasyon) ile karşılaştırıldığında daha raf stabildir.
NOT: Aynı konsantrasyonda taze L-glutamin de kullanılabilir. - Çözeltiyi 37 °C'ye ısıtın ve pH'ın 37 °C'de 7,4 ± 0,05 olduğundan emin olun.
- Büyüme ortamını hücre dışı mikrokültür plakasından nazikçe aspire edin. Alttan hücreleri aspire etmeden mümkün olduğunca az ortam bırakın. Maksimum 50 μL hücre dışı akı takviyeli baz ortamı ile bir kez yıkayın.
- Her bir oyuğa 180 μL hücre dışı akı takviyeli baz ortamı ekleyin ve hücre dışı mikrokültür plakasını dengeyi sağlamak için 37 ° C CO2 olmayan nemlendirilmiş bir inkübatörde 30 dakika ila 1 saat inkübe edin.
- Glutamin oksidasyon test reaktiflerini çözün:
- BPTES tüpüne, 120 mM'lik bir stok çözeltisi yapmak için 700 μL hücre dışı akı takviyeli baz ortamı ekleyin. Bileşiği düzgün bir şekilde çözündürmek için 10 kez yukarı ve aşağı pipetleyin.
DİKKAT: BPTES cilt ve göz tahrişine neden olur ve solunum yolu tahrişine neden olabilir. Kullanırken koruyucu eldiven, göz koruması ve yüz koruması kullanın. İçeriği ve kapları onaylı bir atık imha tesisine atın. - Oligomisin tüpüne, 100 mM'lik bir stok çözeltisi yapmak için 630 μL hücre dışı akı takviyeli baz ortamı ekleyin. Bileşiği düzgün bir şekilde çözündürmek için 10 kez yukarı ve aşağı pipetleyin.
- FCCP tüpüne, 100 mM'lik bir stok çözeltisi yapmak için 720 μL hücre dışı akı takviyeli baz ortamı ekleyin. Bileşiği düzgün bir şekilde çözündürmek için 10 kez yukarı ve aşağı pipetleyin.
DİKKAT: FCCP yutulduğunda zararlıdır, ciddi cilt yanıklarına ve göz hasarına neden olur, alerjik cilt reaksiyonuna neden olabilir ve su yaşamında uzun süreli zararlı etkilere neden olabilir. Kullanırken koruyucu eldiven, koruyucu giysi, göz koruması ve yüz koruması kullanın. İçeriği ve kapları onaylı bir atık imha tesisine atın. - R / A tüpüne, 50 mM'lik bir stok çözeltisi yapmak için 540 μL hücre dışı akı takviyeli baz ortamı ekleyin. Bileşiği düzgün bir şekilde çözündürmek için 10 kez yukarı ve aşağı pipetleyin.
DİKKAT: Rotenon yutulduğunda veya solunduğunda ölümcüldür, cilt tahrişine neden olur, ciddi göz tahrişine neden olur, solunum yolu tahrişine neden olabilir ve uzun süreli etkileri olan su yaşamı için çok toksiktir. Koruyucu eldiven, göz koruması, yüz koruması ve solunum koruması kullanın. İçeriği ve kapları onaylı bir atık imha tesisine atın. Antimisin A yutulduğunda ölümcüldür ve uzun süreli etkileri olan su yaşamı için çok toksiktir. İçeriği ve kapları onaylı bir atık imha tesisine atın.
- BPTES tüpüne, 120 mM'lik bir stok çözeltisi yapmak için 700 μL hücre dışı akı takviyeli baz ortamı ekleyin. Bileşiği düzgün bir şekilde çözündürmek için 10 kez yukarı ve aşağı pipetleyin.
- Substrat oksidasyonu ve mitokondriyal stres testi reaktiflerinin çalışma konsantrasyonlarını hazırlayın:
- BPTES için, 30 μM BPTES çalışma çözeltisi yapmak için 1.500 μL hücre dışı akı takviyeli baz ortamı 500 μL 120 mM BPTES stok çözeltisi ile karıştırın.
- Oligomisin için, 16 mM'lik bir oligomisin çalışma çözeltisi yapmak için 2.520 μL hücre dışı akı takviyeli baz ortamı 480 μL 100 mM oligomisin ile karıştırın.
- FCCP için, 4.5 mM'lik bir FCCP çalışma çözeltisi yapmak için 2.865 μL hücre dışı akı takviyeli baz ortamı 135 μL 100 mM FCCP ile karıştırın.
- R / A için, 5 mM R / A çalışma çözeltisi elde etmek için 2.700 μL hücre dışı akı takviyeli baz ortamı 300 μL 50 mM R / A ile karıştırın.
- Hücre dışı akı pak kartuşunun üst kısmındaki bağlantı noktalarına aşağıdakileri yükleyin:
- 20 μL hücre dışı akı takviyeli baz ortamı ile arka plan ve ortam kontrol kuyularını A portuna, 22 μL oligomisin port B'ye, 25 μL FCCP PORT C'ye ve 27 μL R/A port D'ye yükleyin.
- 20 μL ortam kontrolü veya BPTES ile hücre içeren kuyucukları port A'ya (BPTES için 3 μM'lik nihai konsantrasyon), 22 μL oligomisin port B'ye (oligomisin için 2 μM final konsantrasyonu), 25 μL FCCP'yi port C'ye (FCCP için son konsantrasyon 0.5 μM) ve 27 μL R/A (R/A için son konsantrasyon 0.5 μM) port D'ye yükleyin.
- Aşağıdaki zamanlama ve enjeksiyon stratejisini kullanarak cihaza bağlı olan tahlil tasarımı ve analizi için bilgisayar yazılım programını kullanarak hücre dışı akı biyoanalizörü deneyini gerçekleştirin:
- BPTES için port A ile enjeksiyon için, ölçüm sayısını 6 olarak ayarlayın. Karıştırma süresini 3 dakika bekleme süresi ve 0 dakika ölçüm süresi ile 3 dakikaya ayarlayın.
- Oligomisin için port B ile enjeksiyon için, ölçüm sayısını 3 olarak ayarlayın. Karıştırma süresini 3 dakika bekleme süresi ve 0 dakika ölçüm süresi ile 3 dakikaya ayarlayın.
- FCCP için C portlu enjeksiyon için ölçüm sayısını 3 olarak ayarlayın. Karıştırma süresini 3 dakika, 6 dakika bekleme süresi ve 3 dakika ölçüm süresi ile ayarlayın.
- R/A için D portlu enjeksiyon için ölçüm sayısını 3 olarak ayarlayın. Karıştırma süresini 3 dakika bekleme süresi ve 0 dakika ölçüm süresi ile 3 dakikaya ayarlayın.
- Ayarlanan tüm arka planı, medya kontrolünü ve deney grubu kuyularını gözden geçirin. Testi kaydedin ve çalıştırın. İlk olarak, hücre dışı akı pakını AD enjeksiyonları ile yükleyin. Kalibrasyon, hücre plakası yüklenmeye hazır olana kadar gerçekleşecektir.
- Testin sonunda hücre plakasını hemen çıkarın. Sonuçları daha sonra başka bir cihazda analiz etmek için kaydedin.
- Bir ışık mikroskobu kullanarak hücrelerin hala yapışıp yapışmadığını kontrol edin. 1x'i fosfat tamponlu salin ve liz hücreleri ile tercih edilen bir hücre lizis tamponu ile yıkayın. -80 °C'de saklayın veya protein konsantrasyonu için hemen test edin.
4. MH-S hücrelerinde mitokondriyal solunum için bir yakıt kaynağı olarak glutamini değerlendirmek için sonuçların analizi
- Oksijen tüketim oranı (OCR) verilerini proteine normalleştirmek için her kuyucuktaki hücrelerden proteini çıkarın:
- Kuyucuk başına protein konsantrasyonunu (nanogram/mikrolitre [ng/μL]) hesaplayın.
- Tüm hücre dışı akı mikrokültür plakası için ortalama protein konsantrasyonunu (ng / μL) hesaplayın.
- Bir normalizasyon faktörü elde etmek için her bir oyuğun protein konsantrasyonunu ortalama plakanın protein konsantrasyonuna bölün.
- Normalleştirme faktörünü, tahlil tasarımı ve analizi için bilgisayar yazılım programını kullanarak ilgilenilen veri dosyasına uygulayın.
- Tüm arka plan kuyularının OCR değerlerinin 0'a yakın olduğundan emin olun.
- Başlangıçta OCR'nin < 10 olduğu tüm hücre kutucuklarının seçimini kaldırın. Veriler silinmez, ancak vurgulanan kutular dışa aktarılan veri dosyasında gösterilir.
- Tahlil tasarımı ve analizi için verileri bilgisayar yazılım programından bir bilgisayar elektronik tablo programına aktarın.
- Dosyayı bilgisayar elektronik tablo programında açın ve OCR değerlerini azaltarak tüm verileri sıralayın. Arka plan kuyucuklarını, daha önce seçimi kaldırılmış (ve silinmemiş) kuyucukları, düşük hücre canlılığına sahip kuyucukları, düşük hücre birleşmesine sahip kuyucukları, tam enjeksiyon stratejisi tamamlanmamış kuyuları, yanlış protein konsantrasyonu okumalarına sahip kuyuları, temel OCR < 10'lu kuyuları ve önceden belirlenmiş diğer kriterleri silin.
- Kalan tüm verileri ölçüme, ardından gruba ve ardından OCR'ye göre sıralayın.
- Her bir biyolojik N'nin teknik ortalaması, ölçümle bağımsız olarak çoğalır. Teknik kopyaların ortalamasını aldıktan sonra biyolojik N başına deney grubu başına en az 18 farklı değer (3 başlangıç, ortam/BPTES'ten sonra 3, oligomisin sonrası, FCCP'den sonra 3 ve rotenon / antimisin A'dan sonra 6) olduğundan emin olun. Bunu her biyolojik N için ayrı ayrı yapın, böylece ortalamanın standart sapması veya standart hatası daha sonra analiz edilen veriler için hesaplanabilir.
- Tüm ortalama değerleri, deney grubuna göre ayrılmış yeni bir elektronik tabloya kopyalayın.
- Her deney grubunda enjeksiyon stratejisine göre OCR değerlerinin ortalamasını alın.
- Oksijen tüketimine dayalı olarak mitokondriyal biyoenerjetik parametrelerini hesaplayın:
- Bazal solunumu hesaplayın:
- Bazal mitokondriyal solunumu aşağıdaki gibi hesaplayın:
Bazal mitokondriyal solunum (pmol O2 tüketilen) = ([AVG OCR ölçümleri #1, 2, 3 - AVG OCR ölçümleri #16, 17, 18] x [Zaman #3 - Zaman #1])
NOT: Bazal solunum, medya kontrolü ve BPTES grupları arasında benzer olmalıdır, çünkü bu, inhibitör enjekte edilmeden öncedir. - Glutamine bağımlı olmayan bazal mitokondriyal solunumu aşağıdaki gibi hesaplayın:
Glutamine bağımlı olmayan bazal mitokondriyal solunum (tüketilen pmol O2 ) = ([AVG OCR ölçümleri #4, 5, 6, 7, 8, 9 - AVG OCR ölçümleri #16, 17, 18] x [Zaman #9 - Zaman #4])
NOT: Glutamine bağımlı olmayan bazal mitokondriyal solunum, hücreler glutamine büyük ölçüde bağımlı olmadıkça bazal mitokondriyal solunumdan daha az olmalıdır. - Glutamine bağlı bazal mitokondriyal solunumu aşağıdaki gibi hesaplayın:
Glutamine bağlı bazal mitokondriyal solunum (tüketilen pmol O2 ) = ([AVG OCR ölçümleri #1, 2, 3 - AVG OCR ölçümleri #4, 5, 6, 7, 8, 9] x [Zaman #9 - Zaman #4])
NOT: Toplam bazal mitokondriyal solunum, bazal mitokondriyal solunumdan çıkarılmamalı ve bunlar farklı zaman noktalarında hesaplandığından glutamine bağımlı olmamalıdır.
- Bazal mitokondriyal solunumu aşağıdaki gibi hesaplayın:
- ATP'ye bağlı solunumu aşağıdaki gibi hesaplayın:
- Tüm yakıtlardan toplam mitokondriyal ATP'ye bağlı solunumu aşağıdaki gibi hesaplayın:
Tüm yakıtlardan toplam mitokondriyal ATP'ye bağlı solunum (tüketilen pmol O2 ) = ([AVG OCR ölçümleri #1, 2, 3 - AVG OCR ölçümleri #10, 11, 12] x [Zaman #12 - Zaman #10])
NOT: #10, 11 ve 12 ölçümleri için ortalama OCR, medya kontrolü ve BPTES grupları arasında benzer olmalıdır, çünkü oligomisin ATP sentazı güçlü bir şekilde inhibe etmelidir ve bir yakıt yolunun inhibe edilmesi toplam ATP'ye bağlı solunumu değiştirmemelidir. - Glutamine bağımlı olmayan ATP'ye bağlı mitokondriyal solunumu aşağıdaki gibi hesaplayın:
Glutamine bağımlı olmayan ATP'ye bağlı mitokondriyal solunum (tüketilen pmol O2 ) = ([AVG OCR ölçümleri #4, 5, 6, 7, 8, 9 - AVG OCR ölçümleri #10, 11, 12] x [Zaman #12 - Zaman #10])
NOT: Glutamine bağımlı olmayan ATP'ye bağlı mitokondriyal solunum, hücreler glutamine büyük ölçüde bağımlı olmadıkça ATP'ye bağlı mitokondriyal solunumdan daha az olmalıdır. - Glutamine bağlı ATP'ye bağlı mitokondriyal solunumu aşağıdaki gibi hesaplayın:
Glutamine bağlı ATP'ye bağlı mitokondriyal solunum (pmol O2 tüketilir) = Tüm yakıtlardan toplam ATP'ye bağlı mitokondriyal solunum - glutamine bağımlı olmayan ATP'ye bağlı mitokondriyal solunum
- Tüm yakıtlardan toplam mitokondriyal ATP'ye bağlı solunumu aşağıdaki gibi hesaplayın:
- Maksimum solunumu aşağıdaki gibi hesaplayın:
- Toplam maksimum mitokondriyal solunumu aşağıdaki gibi hesaplayın:
Toplam maksimal mitokondriyal solunum (tüketilen pmol O2 ) = ([AVG OCR ölçümleri #13, 14, 15 - AVG OCR ölçümleri #16, 17, 18] x [Zaman #15 - Zaman #13]) - Glutamine bağımlı olmayan maksimum mitokondriyal solunumu aşağıdaki gibi hesaplayın:
Glutamine bağımlı olmayan maksimal mitokondriyal solunum (tüketilen pmol O2 ) = ([BPTES gruplarının AVG OCR ölçümleri #13, 14, 15 - BPTES gruplarının AVG OCR ölçümleri #16, 17, 18] x [Zaman #15 - #Time 13]) - Glutamine bağlı maksimum mitokondriyal solunumu aşağıdaki gibi hesaplayın:
Glutamine bağlı maksimal mitokondriyal solunum (pmol O2 tüketilir) = Tüm yakıtlardan toplam maksimum mitokondriyal solunum - Glutamine bağımlı olmayan maksimal mitokondriyal solunum
NOT: Bu hesaplama, diğer yakıtlara kıyasla glutaminin yedek kapasitesi için hücre bağımlılığını belirlemek için kullanılabilir. Maksimum mitokondriyal solunum ne kadar büyük olursa, glutamine olan bağımlılık o kadar büyük olur, bu da BPTES grupları - maksimum mitokondriyal solunumda bir kayıp veya toplam solunumun bir yüzdesi olarak kontrol grupları olarak ifade edilebilir.
- Toplam maksimum mitokondriyal solunumu aşağıdaki gibi hesaplayın:
- Yedek solunum kapasitesini aşağıdaki gibi hesaplayın:
- Toplam yedek solunum kapasitesini aşağıdaki gibi hesaplayın:
Toplam yedek solunum kapasitesi (tüketilen pmol O2 ) = ([AVG OCR ölçümleri #13, 14, 15 - AVG OCR ölçümleri #1, 2, 3] x [Zaman #15 - Zaman #13]) - Glutamine bağımlı olmayan yedek solunum kapasitesini aşağıdaki gibi hesaplayın:
Glutamine bağımlı olmayan yedek solunum kapasitesi (tüketilen pmol O2 ) = ([BPTES gruplarının AVG OCR ölçümleri #13, 14, 15 - BPTES gruplarının AVG OCR ölçümleri #1, 2, 3] x [Zaman #15 - Zaman #13]) - Glutamine bağlı yedek solunum kapasitesini aşağıdaki gibi hesaplayın:
Glutamine bağlı yedek solunum kapasitesi (tüketilen pmol O2 ) = Tüm yakıtlardan toplam yedek solunum kapasitesi - Glutamine bağımlı olmayan yedek solunum kapasitesi
NOT: Bu hesaplama, glutamine bağımlı hücrelerin esnekliğini ve gerektiğinde glutamin olmadan daha fazla solunum sağlayıp sağlayamayacaklarını temsil eder.
- Toplam yedek solunum kapasitesini aşağıdaki gibi hesaplayın:
- Bazal solunumu hesaplayın:
- Ortam kontrollerini inhibitör gruplarına göre çıkarın ve istenirse kontrol grubuna göre tüketilen pmol O2'yi normalleştirin.
- Glutamine bağlı OCR biyoenerjetik profilleri (pmol O2/dk), bazal solunum (pmol O2), ATP'ye bağlı solunum (pmol O2), maksimal solunum (pmol O2) ve yedek solunum kapasitesi (pmol O2) grafiklerini oluşturun.
- Mitokondriyal biyoenerjetik son nokta değerlerini çubuk grafiklerde gösterin veya medya kontrol gruplarına göre inhibitör gruplarının araçları olarak ifade edin. Her biyolojik N ayrı ayrı hesaplanırsa, tüm biyolojik N'lerde analiz edilen veriler için ortalamanın standart sapmasını veya standart hatasını hesaplayın.
5. İstatistiksel analiz
- Uygun veri analiz yazılımını kullanarak tüm istatistiksel analizleri gerçekleştirin.
- OCR biyoenerjetik profillerinin doğrusal noktaları için, bu dört deney grubundan gelen verileri iki faktörle (tedavi ve enjeksiyon stratejisi) karşılaştırmak için iki yönlü ANOVA ve ardından Tukey'in post hoc analizlerini gerçekleştirin: Con + media, Con + BPTES, EtOH + media ve EtOH + BPTES.
- Bazal solunum, ATP'ye bağlı solunum, maksimal solunum ve glutamine bağlı yedek solunum kapasitesi çubuk grafikleri için, Con + BPTES ve EtOH + BPTES olmak üzere iki deney grubundan elde edilen verileri karşılaştırmak için Student'ın t-testi analizlerini yapın.
- Verileri, ortalamanın (SEM) standart hatası ± ortalama olarak sunun. p < 0.05'i istatistiksel olarak anlamlı olarak kabul edin.
Sonuçlar
Kronik EtOH maruziyeti, MH-S hücrelerinde glutamin bağımlılığını azaltır.
Glutaminoliz, mitokondriyal solunum için kritik bir yoldur ve glutamini hücresel biyoenerjetik için önemli bir yakıt kaynağı olarak destekler. EtOH'ye kronik maruz kalmanın, MH-S hücrelerinin mitokondriyal solunum için bir yakıt kaynağı olarak glutamin üzerindeki bağımlılığını değiştirip değiştirmediğini belirlemek için, MH-S hücreleri EtOH kontrolü (Con) veya EtOH olmadan tedavi edildi ve OCR, mitokondriyal solunum ile ilişkili reaktiflerin seri enjeksiyonlarına yanıt olarak zaman içinde ölçüldü. Oligomisin (ATP sentaz inhibitörü), FCCP (proton birleştirici) ve R/A'nın (sırasıyla mitokondriyal kompleks I ve kompleks III inhibitörleri) seri enjeksiyonlarına yanıt olarak OCR biyoenerjetik profilleri, ATP'ye bağlı solunum, maksimal solunum ve yedek solunum kapasitesi gibi diğer mitokondriyal biyoenerjetik parametrelerini hesaplamak için kullanılır. Gösterilen tüm veriler, Crotty ve ark.11'de yayınlanan Con + media, Con + BPTES ve EtOH + media, EtOH + BPTES MH-S hücre deney gruplarının ek biyolojik kopyalarıdır. Şekil 2A'da gösterildiği gibi, oligomisin, kompleks V'nin inhibisyonu nedeniyle OCR'yi azalttı, FCCP, membran potansiyelinin mitokondriyal ayrışması ve mitokondriye bağımlı ATP nesil12 nedeniyle OCR'yi artırdı ve R/A, mitokondriye bağlı OCR'yi etkili bir şekilde kapattı. Seri enjeksiyonlara verilen OCR biyoenerjetik yanıtlarının bu profilleri, hücre dışı akı biyoanalizörü13,14 kullanılarak mitokondriyal stresi değerlendirmek için kullanıcı kılavuzu ile tutarlıdır.
Con- ve EtOH ile muamele edilen MH-S hücrelerinde bazal OCR ölçüldükten sonra, bir glutaminaz 1 inhibitörü olan bir medya kontrolü veya BPTES enjeksiyonu yüklendi. Con + media versus Con + BPTES MH-S hücreleri ve EtOH + media vs EtOH + BPTES MH-S hücreleri OCR biyoenerjetik profillerinde farklılık göstermedi (Şekil 2A). EtOH + BPTES MH-S hücreleri, Con + BPTES'e kıyasla glutamine bağımlı bazal solunumda bir azalma gösterdi ( Şekil 2A ve Şekil 2B'deki ölçüm #3 ile karşılaştırıldığında ölçüm #4), EtOH'nin MH-S hücrelerinin bazal glutamin oksidasyonunu azalttığını ve mitokondriyal solunuma katkıda bulunduğunu düşündürmektedir. EtOH + BPTES MH-S hücreleri, Con + BPTES ile karşılaştırıldığında glutamine bağımlı ATP'ye bağlı mitokondriyal solunum kaybı sergiledi (Şekil 2C). EtOH + BPTES MH-S hücreleri, Con + BPTES ile karşılaştırıldığında glutamine bağımlı maksimal solunumda künt bir kayıp göstermesine rağmen (Şekil 2D), EtOH + BPTES MH-S hücreleri, Con + BPTES ile karşılaştırıldığında glutamine bağımlı yedek solunum kapasitesinde azalma göstermiştir (Şekil 2E). Bu sonuçlar, EtOH MH-S hücrelerinin, FCCP ile strese girdiğinde olduğu gibi, solunum için glutamine daha fazla bağımlı olma yeteneğine sahip olduğunu, ancak glutamin biyoyararlanımındaki bir azalmadan daha ağır basan glutamin talebindeki bir artış nedeniyle bunu yapamayabileceklerini göstermektedir.
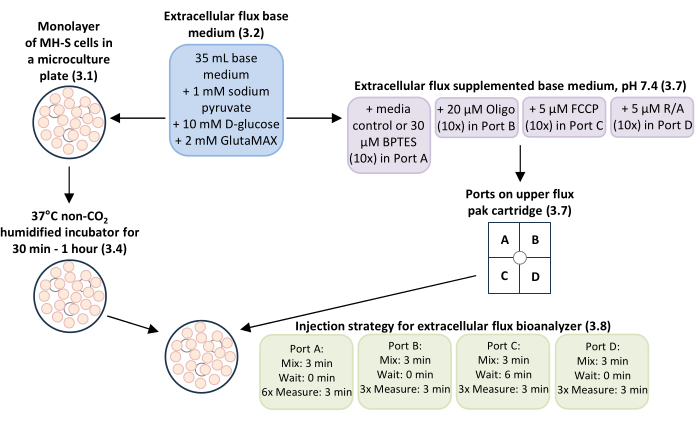
Şekil 1: Bir fare alveolar makrofaj hücre hattı olan MH-S hücrelerinde glutamine bağımlı mitokondriyal solunum ve biyoenerjetik ölçümü için iş akışına genel bakış. Hücre dışı akı mikrokültür plakası kuyucuklarında (adım 3.1) kültürlenen MH-S hücrelerinin tek tabakaları, 37 ° C'de CO2 olmayan nemlendirilmiş bir inkübatörde 30 dakika boyunca hücre dışı akı baz ortamı ile inkübe edildi (adım 3.4). Takviyeler eklenmiş hücre dışı akı baz ortamı (adım 3.2), ortam kontrolü olarak ve glutamin oksidasyon inhibitörü BPTES'in çalışma konsantrasyonlarını 3 μM nihai konsantrasyona, mitokondriyal kompleks V inhibitörü oligomisin (Oligo) 0.5 μM nihai konsantrasyona, mitokondriyal uncoupler karbonil siyanür-p-triflorometoksifenilhidrazon (FCCP) 0.5 μM nihai konsantrasyona ve mitokondriyal kompleks I ve kompleks III inhibitörleri rotenon / antimisin A (R / A) ila 0.5 μM'ye seyreltmek için kullanıldı üst hücre dışı akı pak kartuşundaki AD portlarını yüklemek için son konsantrasyon (adım 3.7). Hücre dışı akı biyoanalizörü kullanılarak deneysel çalışma için karıştırma, bekleme ve ölçüm süreleri için enjeksiyon stratejisi şuydu: 3 dakikalık karıştırma süresi, 0 dakikalık bekleme süresi ve Port A (medya kontrolü veya BPTES) için 3 dakikalık ölçüm süresinin 6 ölçümü; Port B (Oligo) için 3 dakikalık karıştırma süresi, 0 dakikalık bekleme süresi ve 3 dakikalık ölçüm süresinde 3 ölçüm; 3 dk karıştırma süresi, 6 dk bekleme süresi ve Port C (FCCP) için 3 dk ölçüm süresi; ve 3 dakikalık karıştırma süresi, 0 dakikalık bekleme süresi ve Port D (R/A) için 3 dakikalık ölçüm süresinde 3 ölçüm. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
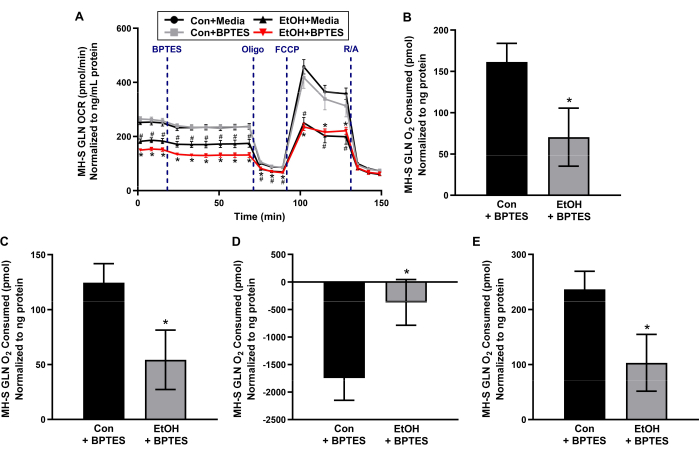
Şekil 2: Kronik etanol (EtOH), bir fare alveolar makrofaj hücre hattı olan MH-S hücrelerinde glutamine bağımlı mitokondriyal solunumu azaltır. MH-S hücreleri tedavi edilmedi (Con) veya EtOH ile tedavi edildi (% 0.08, 72 saat) ve zaman içinde oksijen tüketim oranı (OCR), medya kontrolü veya bir glutamin (GLN) oksidasyon inhibitörü (3 μM BPTES) ile enjeksiyondan önce ve sonra hücre dışı akı biyoanalizörü kullanılarak ölçüldü, ardından seri mitokondriyal kompleks V inhibitörü enjeksiyonları (0.5 μM oligomisin, Oligo), mitokondriyal birleştirici (0.5 μM karbonil siyanür-p-triflorometoksifenilhidrazon, FCCP) ve mitokondriyal kompleks I ve kompleks III inhibitörleri (0.5 μM rotenon/0.5 μM antimisin A, R/A). (A) Glutamine bağımlı (B) bazal solunum, (C) ATP'ye bağlı solunum, (D) maksimal solunum ve (E) yedek solunum kapasitesini hesaplamak için OCR biyoenerjetik profilleri kullanıldı. Doğrusal noktalar ortalamaları ± SEM'i temsil eder (n = 4, #p < 0.05'e karşı Con + media ve *p < 0.05'e karşı Con + BPTES, Tukey'in post hoc ile tek yönlü ANOVA). Çubuklar ± SEM ortalamalarını temsil eder (n = 4, *p < 0.05'e karşı Con + BPTES, Öğrencinin t-testi). Sunulan veriler, Crotty ve ark.11'de yayınlanan, tedavi edilmemiş kontrol ve kronik EtOH'ye maruz kalan MH-S hücrelerinin medya kontrolü ve BPTES ile tedavi edilen deney grupları için ek biyolojik kopyalardır. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
Tartışma
Burada sunulan veriler, Crotty ve ark.11'de yayınlanan, ortam kontrolü veya BPTES ile tedavi edilmiş, tedavi edilmemiş ve kronik EtOH'ye maruz kalmış MH-S hücreleri için ek biyolojik kopyalardır. Açıklanan protokol, EtOH'ye maruz kalan MH-S hücrelerinin, hücre dışı bir akı biyoanalizörü kullanarak mitokondriyal solunum ve biyoenerjetik için bir yakıt kaynağı olarak glutamin üzerindeki bağımlılığını değerlendirmek için kullanılır. Protokolde birkaç kritik adım vardır. İlk olarak, MH-S hücre oluşumu ve birleşmesi önemlidir. MH-S hücreleri başlangıçta düşük birleşmede hücre dışı akı mikrokültür kuyularında kültürlenir ve hücreler% 90'lık son birleşmede tek tabakada olduğunda kullanılır. MH-S hücrelerinin EtOH maruziyeti 72 saat olduğundan, hücre dışı akı biyoanalizörü üzerinde deneysel çalıştırmadan önce% 90'lık son birleşme elde edildi. Bu, bu deneyleri çalıştırmadan önce hücre tek tabaka oluşumu ve% 90 -% 100 birleşme ile ilgili diğer raporlarla tutarlıdır 15,16,17. İkinci olarak, mitokondriyal solunum değerlerinin her numunede proteine normalleştirilmesi kritik öneme sahiptir. Bazı çalışmalar mitokondriyal biyoenerjetik hücre sayısını 18,19,20 olarak normalleştirir. Bununla birlikte, bu tahlildeki seri enjeksiyon stratejisi, mitokondriyi sırayla strese sokmak içindir. 'ler gibi esas olarak oksidatif fosforilasyona dayanan hücrelerde, bu, hücre dışı akı biyoanalizörü üzerinde yapılan deneysel çalışma sırasında hücre ölümüne yol açabilir. Bu nedenle, hücre sayıları deneyin başlangıcından deney çalışmasının sonuna kadar tutarlı olmayabilir ve mitokondriyal solunum değerlerinin proteine normalleşmesi optimaldir21,22. Hücreye özgü OCR profillerini daha doğru raporlamak için burada tüm kuyucuklarda ortalama protein kullanan bir protein normalleştirme faktörü önerilmektedir. Üçüncüsü, biyolojik kopyalar arasında sonuçların analizi anahtardır. Bazen, mitokondriyal biyoenerjetik profillerin temsili görüntüleri, çoklu biyolojik kopyalar 10,11,24 boyunca ortalama mitokondriyal solunum yerine 22,23 sunulur. Bununla birlikte, bu temsili görüntüler, deneyler arasındaki varyasyonların tam bir resmini sağlamaz. Her bir biyolojik replikasyonu ayrı ayrı hesaplayarak, ortalamanın standart hatası, tüm biyolojik replikalar boyunca ortalama mitokondriyal solunum değerlerinin değişimini gösterebilir ve mitokondriyal biyoenerjetik profiller arasındaki istatistiksel farkları hesaplamak için kullanılabilir.
Tahlili hücre dışı akı biyoanalizörü üzerinde çalıştırmadan önce, her bir kuyucukta bir hücre tek tabakası elde etmek için hücre dışı akı mikrokültür plakasında kültürleme için MH-S hücrelerinin optimal hücre yoğunluğunun belirlenmesi gerekiyordu. MH-S hücreleri için uygun Oligo ve FCCP konsantrasyonlarının da oluşturulması gerektiğinden, Oligo ve FCCP'nin seri dilüsyonları ile farklı MH-S hücre yoğunluklarının testleri yapıldı21,25. 10.000-15.000 MH-S hücresinin ilk kültürü, EtOH 10 ile ve EtOH10 olmadan 72 saatlik maruziyetten sonra% 90 birleşmede bir tek hücre tabakası ile sonuçlandı. Bu optimizasyon deneylerine dayanarak, 2 μM Oligo ve 0.5 μM FCCP, mitokondriyal solunumda değişikliklere neden olan bu reaktiflerin minimum konsantrasyonları olarak belirlenmiştir10.
Başlangıçta ve BPTES ile tedaviden sonra mitokondriyal solunumun gerçek zamanlı ölçümleri, glutaminin glutamata enzimatik dönüşümünü önleyen bir glutaminaz 1 inhibitörü, Con- ve EtOH'ye maruz kalan MH-S hücrelerinde bazal solunum için glutamin bağımlılığını belirlemek için kullanılır. Bu çalışmada sunulan verilerin bir sınırlaması, EtOH'ye maruz kalan MH-S hücrelerinde glutamine ek olarak mitokondriyal solunum ve biyoenerjetik için yakıt kaynağı olarak kısa ve orta zincirli yağ asitlerinin rollerinin araştırılmamış olmasıdır. Crotty ve ark.11 tarafından yapılan önceki çalışmadan elde edilen sonuçlar, EtOH MH-S hücrelerinin, toplam mitokondriyal solunumdaki kaybı tam olarak telafi etmeden piruvata bağımlı solunumdan glutamine bağımlı solunuma doğru bir kayma sergilediğini göstermiştir. Ayrıca, aynı deneyi UK5099 (bir piruvat oksidasyon inhibitörü) ve etomoksir (uzun zincirli bir yağ asidi oksidasyon inhibitörü) kombine enjeksiyonu ile gerçekleştirerek, mitokondriyal solunum için yakıt kaynağı olarak hem piruvat hem de yağ asitlerinin yokluğunda glutaminin katkısı EtOH'ye maruz kalan MH-S hücrelerinde belirlenebilir.
Mitokondriyal solunum, neredeyse yetmiş yıldır bir Clark elektrodu kullanılarak ölçülmüştür26 ve ayrıca mitokondriyal solunumu ölçmek için plaka bazlı floresan testleri de vardır27. Bununla birlikte, bu yöntemler önemli ölçüde daha fazla zaman alıcıdır ve/veya hücre dışı akı biyoanalizörü ile elde edilebilecek ölçümlerin hassasiyetinden yoksundur. Mitokondriyal solunum ve biyoenerjetik için bir yakıt kaynağı olarak glutamini değerlendirmek için hücre dışı akı biyoanalizörü kullanmanın avantajı, aynı anda birden fazla biyolojik kopya ile deneylerin yapılabilmesidir. Ek olarak, hücre dışı akı biyoanalizörü, izole edilmiş mitokondri veya sağlam hücreler üzerinde deney yapma esnekliği sağlar. Pulmoner arter düz kas hücreleri gibi yüksek konsantrasyonda mitokondriye sahip olmayan hücreler için, sınırlı örneklerden yeterli mitokondriyi izole etmek zordur. Hücre dışı akı biyoanalizörü kullanılarak, mitokondriyal solunum, sağlam pulmoner arter düz kas hücrelerinde28 veya birincil fare'lerinde10,11 ölçülebilir. Bu çalışmada kullanılan protokol, mitokondriyal solunum için bir yakıt kaynağı olarak glutamini ve birincil insan'leri gibi sınırlı örneklem büyüklüğüne sahip diğer örneklerin biyoenerjetik değerlerini değerlendirmek için kullanılabilir. Daha önce, MH-S hücrelerindeki EtOH kaynaklı mitokondriyal kaynaklı oksidatif stres ve düzensizliklerin, birincil fare'lerinde ve insan'lerindebenzer bir mitokondriyal düzensizlik profili sergilediğini göstermiştik 6,7,11,28,29,30. Toplu olarak, çalışmalar, mitokondriyal kaynaklı oksidatif stres ile karakterize edilen patolojik durumlarda'lerde mitokondriyal solunum ve biyoenerjetik için bir yakıt kaynağı olarak glutamini değerlendirmek için bu yöntemin kullanılmasını desteklemektedir.
Açıklamalar
Tüm yazarların bildirecek herhangi bir ilgili finansal çıkar çatışması yoktur.
Teşekkürler
Sarah S. Chang, BS'nin ilk hücre kültürü ve MH-S hücrelerinin deney için hazırlanması konusundaki katkılarını kabul ediyoruz. Bu çalışma, NIAAA R01-AA026086 tarafından SMY'ye (ORCID: 0000-0001-9309-0233), KMC'ye NIAAA F31-F31AA029938 ve Emory Üniversitesi Farmakoloji ve Kimyasal Biyoloji Anabilim Dalı'ndan Randy Hall'a NIGMS T32-GM008602 tarafından desteklenmiştir. Bu raporun içeriği, Gazi İşleri Bakanlığı'nın veya ABD Hükümeti'nin görüşlerini temsil etmemektedir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 15 mL konik tüp | VWR Uluslararası, Inc. | 21008-670 | Mitokondri ile ilgili reaktiflerin stok konsantrasyonlarını hazırlamak için kullanılır. |
| 2-merkaptoetanol ve nbsp; | Sigma Aldrich A.Ş. | M6250 | MH-S hücrelerini kültürlemek için kullanılır. |
| Hücre kazıyıcı | Dot Scientific, Inc. | 70-1180 | T-75 şişelerinden MH-S hücrelerini kazımak için kullanılır. |
| Kontes 3 FL Enstrüman: hücre sayacı | Fisher Scientific Company | AMQAF2000 | Deneyler için plakaya MH-S hücrelerinin sayısını saymak için kullanılır. |
| D-glikoz | Sigma Aldrich A.Ş. | G8270 | Hücre dışı akı baz ortamı için kullanılır. |
| Ethanol | Fisher Scientific Company | 4355720 MH-S hücreleri için deneysel tedavi. | |
| Fetal sığır serumu | Sciencell Araştırma Laboratuvarları | 500 | MH-S hücrelerini kültürlemek için kullanılır. |
| Gentamicin | Sigma Aldrich A.Ş. | G1397 | MH-S hücrelerini kültürlemek için kullanılır. |
| GlutaMAX | Thermo Fisher Scientific | 35050061 | Hücre dışı akı baz ortamı için kullanılır. |
| GraphPad Prism 10.2.3 | GraphPad Yazılımı | N/A | İstatistiksel analiz için yazılım. https://www.graphpad.com/features'dan satın alındıktan sonra indirilebilir. |
| MH-S hücreleri | Amerikan Tipi Kültür Koleksiyonu | CRL-2019 | Fare alveolar makrofaj hücre hattı. |
| Mikrosantrifüj tüpü | ABD Bilimsel, Inc. | 4036-3212 | Mitokondri ile ilgili reaktiflerin çalışma konsantrasyonlarını hazırlamak için kullanılır. |
| Microsoft 365 Excel: bilgisayar elektronik tablo programı | Microsoft | N/A | Veri organizasyonu ve mitokondriyal biyoenerjetik hesaplamaları için yazılım. https://www.microsoft.com/en-us/microsoft-365/excel'dan satın alındıktan sonra indirilebilir. |
| Penisilin / streptomisin | Fisher Scientific Company | 15140122 | MH-S hücrelerini kültürlemek için kullanılır. |
| Fosfat tamponlu tuzlu su | VWR International, Inc. | 45000-446 | MH-S hücrelerini yıkamak için kullanılır. |
| RPMI-1640 | VWR Uluslararası, Inc. | 45000-396 | MH-S hücrelerini kültürlemek için kullanılır. |
| Seahorse Wave Pro Software: tahlil tasarımı ve analizi için bilgisayar yazılım programı | Agilent Technologies, Inc. | N/A | Bilgisayar, Seahorse XF Pro Analyzer cihazına bağlıdır. Şuradan indirilebilir https://www.agilent.com/en/product/cell-analysis/real-time-cell-metabolic-analysis/xf-software/software-download-for-seahorse-wave-pro-software?productURL=https%3A%2F%2Fwww.agilent.com%2Fen%2Fproduct%2Fcell-analysis%2Freal-time-cell-metabolic-analysis%2Fxf-software%2Fseahorse-wave-pro-software-2007523. |
| Denizatı XF Baz Ortamı: hücre dışı akı baz ortamı, pH 7.4 | Agilent Technologies, Inc. | 103334-100 | Deneysel çalışmalardan önce mitokondri ile ilgili reaktiflerin stok ve çalışma konsantrasyonlarını hazırlamak ve MH-S hücrelerini kültürlemek için kullanılır. |
| Denizatı XF Glutamin Oksidasyon Stres Test Kiti | Agilent Technologies, Inc. | 103674-100 | Stok BPTES, oligomisin, FCCP ve rotenon / antimisin A içerir. |
| Seahorse XF Pro Analyzer: hücre dışı akı biyoanalizörü | Agilent Technologies, Inc. | N/A | Hücre dışı akı biyoanalizörü. |
| Denizatı XFe96 FluxPak: 96 oyuklu hücre dışı akı pak kartuşları, 96 oyuklu hücre dışı akı mikrokültür plakaları ve kalibrant çözeltisi | Agilent Technologies, Inc. | 102416-100 | Hücre dışı akı biyoanalizörü kullanarak tahliller için MH-S hücrelerini hazırlamak için kullanılır. |
| Serolojik pipet | Santa Cruz Biyoteknoloji A.Ş. | sc-550678 | MH-S hücrelerinden ortamı çıkarmak için kullanılır. |
| Sodyum bikarbonat | Sigma Aldrich Co. | S6014 | MH-S hücrelerini kültürlemek için kullanılır. |
| Sodyum piruvat | Sigma Aldrich A.Ş. | P4562 | Hücre dışı akı baz ortamı için kullanılır. |
| T-75 şişeleri | Santa Cruz Biyoteknoloji A.Ş. | sc-200263 | MH-S hücrelerini kültürlemek için kullanılır. |
Kaynaklar
- 2021 National Survey on Drug Use and Health (NSDUH). Table 5.6A - Alcohol Use Disorder in Past Year: Among People Aged 12 or Older; by Age Group and Demographic Characteristics, Numbers in Thousands, 2021. , Substance Abuse and Mental Health Services Administration (SAMHSA). At https://www.samhsa.gov/data/sites/default/files/reports/rpt39441/NSDUHDetailedTabs2021/NSDUHDetailedTabs2021/NSDUHDetTabsSect5pe2021.htm (2021).
- Everts, R. J., et al. Nosocomial pneumonia in adult general medical and surgical patients at Christchurch Hospital. N Z Med J. 113 (1111), 221-224 (2000).
- de Roux, A., et al. Impact of alcohol abuse in the etiology and severity of community-acquired pneumonia. Chest. 129 (5), 1219-1225 (2006).
- Moss, M. Epidemiology of sepsis: race, sex, and chronic alcohol abuse. Clin Infect Dis. 41 (Suppl 7), S490-S497 (2005).
- Fernandez-Sola, J., et al. High alcohol intake as a risk and prognostic factor for community-acquired pneumonia. Arch Intern Med. 155 (15), 1649-1654 (1995).
- Yeligar, S. M., Harris, F. L., Hart, C. M., Brown, L. A. Glutathione attenuates ethanol-induced alveolar macrophage oxidative stress and dysfunction by downregulating NADPH oxidases. Am J Physiol Lung Cell Mol Physiol. 306 (5), L429-L441 (2014).
- Yeligar, S. M., Mehta, A. J., Harris, F. L., Brown, L. A., Hart, C. M. Peroxisome proliferator-activated receptor gamma regulates chronic alcohol-induced alveolar macrophage dysfunction. Am J Respir Cell Mol Biol. 55 (1), 35-46 (2016).
- Liang, Y., Harris, F. L., Brown, L. A. Alcohol induced mitochondrial oxidative stress and alveolar macrophage dysfunction. Biomed Res Int. 2014, 371593(2014).
- Liang, Y., Harris, F. L., Jones, D. P., Brown, L. A. Alcohol induces mitochondrial redox imbalance in alveolar macrophages. Free Radic Biol Med. 65, 1427-1434 (2013).
- Morris, N. L., Harris, F. L., Brown, L. A. S., Yeligar, S. M. Alcohol induces mitochondrial derangements in alveolar macrophages by upregulating NADPH oxidase 4. Alcohol. 90, 27-38 (2021).
- Crotty, K. M., Kabir, S. A., Chang, S. S., Mehta, A. J., Yeligar, S. M. Pioglitazone reverses alcohol-induced alterations in alveolar macrophage mitochondrial phenotype. Alcohol Clin Exp Res (Hoboken). 48 (5), 810-826 (2024).
- Demine, S., Renard, P., Arnould, T. Mitochondrial uncoupling: A key controller of biological processes in physiology and diseases. Cells. 8 (8), 795(2019).
- Hill, B. G., et al. Integration of cellular bioenergetics with mitochondrial quality control and autophagy. Biol Chem. 393 (12), 1485-1512 (2012).
- Chacko, B. K., et al. The Bioenergetic Health Index: a new concept in mitochondrial translational research. Clin Sci (Lond). 127 (6), 367-373 (2014).
- Fan, Y., et al. Analyzing mitochondrial respiration of human induced pluripotent stem cell-derived myeloid progenitors using Seahorse technology. STAR Protoc. 4 (1), 102073(2023).
- Gu, X., Ma, Y., Liu, Y., Wan, Q. Measurement of mitochondrial respiration in adherent cells by Seahorse XF96 Cell Mito Stress Test. STAR Protoc. 2 (1), 100245(2021).
- Plitzko, B., Loesgen, S. Measurement of oxygen consumption rate (OCR) and extracellular acidification rate (ECAR) in culture cells for assessment of the energy metabolism. Bio Protoc. 8 (10), e2850(2018).
- Winnica, D., et al. Bioenergetic differences in the airway epithelium of lean versus obese asthmatics are driven by nitric oxide and reflected in circulating platelets. Antioxid Redox Signal. 31 (10), 673-686 (2019).
- Nickens, K. P., Wikstrom, J. D., Shirihai, O. S., Patierno, S. R., Ceryak, S. A bioenergetic profile of non-transformed fibroblasts uncovers a link between death-resistance and enhanced spare respiratory capacity. Mitochondrion. 13 (6), 662-667 (2013).
- Mdaki, K. S., Larsen, T. D., Weaver, L. J., Baack, M. L. Age related bioenergetics profiles in isolated rat cardiomyocytes using extracellular flux analyses. PLoS One. 11 (2), e0149002(2016).
- Dranka, B. P., et al. Assessing bioenergetic function in response to oxidative stress by metabolic profiling. Free Radic Biol Med. 51 (9), 1621-1635 (2011).
- Chacko, B. K., et al. Methods for defining distinct bioenergetic profiles in platelets, lymphocytes, monocytes, and neutrophils, and the oxidative burst from human blood. Lab Invest. 93 (6), 690-700 (2013).
- Tyrrell, D. J., Bharadwaj, M. S., Jorgensen, M. J., Register, T. C., Molina, A. J. Blood cell respirometry is associated with skeletal and cardiac muscle bioenergetics: Implications for a minimally invasive biomarker of mitochondrial health. Redox Biol. 10, 65-77 (2016).
- Shah-Simpson, S., Pereira, C. F., Dumoulin, P. C., Caradonna, K. L., Burleigh, B. A. Bioenergetic profiling of Trypanosoma cruzi life stages using Seahorse extracellular flux technology. Mol Biochem Parasitol. 208 (2), 91-95 (2016).
- Nicholls, D. G., et al. Bioenergetic profile experiment using C2C12 myoblast cells. J Vis Exp. 46, e2511(2010).
- Chance, B., Williams, G. R. Respiratory enzymes in oxidative phosphorylation. I. Kinetics of oxygen utilization. J Biol Chem. 217 (1), 383-393 (1955).
- Gerencser, A. A., et al. Quantitative microplate-based respirometry with correction for oxygen diffusion. Anal Chem. 81 (16), 6868-6878 (2009).
- Yeligar, S. M., et al. PPARgamma regulates mitochondrial structure and function and human pulmonary artery smooth muscle cell proliferation. Am J Respir Cell Mol Biol. 58 (5), 648-657 (2018).
- Yeligar, S., Tsukamoto, H., Kalra, V. K. Ethanol-induced expression of ET-1 and ET-BR in liver sinusoidal endothelial cells and human endothelial cells involves hypoxia-inducible factor-1alpha and microrNA-199. J Immunol. 183 (8), 5232-5243 (2009).
- Yeligar, S. M., Harris, F. L., Brown, L. A. S., Hart, C. M. Pharmacological reversal of post-transcriptional alterations implicated in alcohol-induced alveolar macrophage dysfunction. Alcohol. 106, 30-43 (2023).
Yeniden basım ve izinler
