Hücre hatları, konakçı hücrelerinin dışında kültürlenemeyen hücre içi organizmalar üzerinde yapılan çalışmalarda faydalıdır. Wolbachia ile enfekte olmuş hatlar birçok keşfi mümkün kılmış olsa da, bu hatlardaki heterojenlik değişken deneysel sonuçlara yol açabilir. Wolbachia ile enfekte JW18 hücrelerinden tek hücreli klonlar ve sürekli kültürler oluşturmak için bir protokol sunuyoruz.
Yöntem makalesi
Wolbachia ile enfekte Drosophila melanogaster JW18 Hücre Hattından Monoklonal Kültürlerin Üretilmesi
Bu makalede
Özet
Özet
Hücre hatları, biyolojik araştırmalarda yaygın olarak kullanılan modellerdir. Konakçı organizmaların dışında verimli bir şekilde çoğaltılamayan hücre içi bakteriler üzerinde yapılan çalışmalarda özellikle yararlıdırlar. Birçok omurgasızın hücre içi bir simbiyotu olan Wolbachia, böcek konakçılarında güçlü üreme ve antiviral etkilere neden olur. Wolbachia ile enfekte olmuş böcek hücreleri, Wolbachia fenotiplerini incelemek için yaygın olarak kullanılmaktadır. Bununla birlikte, bu hücre dizileri genellikle potansiyel olarak değişen fenotiplere ve deneysel tedavilere yanıtlara sahip karışık hücre popülasyonlarından oluşur. Özellikle, Wolbachia'lı hücre hatlarının, bir pasajdan diğerine değişken büyüme oranları ve değişken Wolbachia enfeksiyonu prevalansı sergilediği bildirilmiştir. Bunu düzeltmek için, Wolbachia ile enfekte olmuş Drosophila melanogaster'den türetilmiş JW18 hücre hattından monoklonal hücre hatları ürettik. Bu klonal çizgiler farklı zaman noktalarında kurulmuştur ve farklı Wolbachia enfeksiyon durumlarını göstermektedir. Bu değişkenlik, bir ebeveyn JW18 popülasyonuna uygulanan herhangi bir tedavinin, tüm kültürün fizyolojisini etkilemek yerine alt popülasyonların seçimine yol açabileceğini düşündürmektedir. Burada, Wolbachia ile enfekte olmuş böcek hücrelerinden tek hücreli klonlar ve sürekli klonal kültürler oluşturmak için daha kontrollü ve tekrarlanabilir deneyler sağlayan bir protokol sunuyoruz.
Giriş
Drosophila melanogaster hücreleri, genetik çalışmalarda, hastalık araştırmalarında ve yüksek verimli ilaç taraması için bir platform olarak yaygın olarak kullanılmaktadır1. Ayrıca, gezegendeki en yaygın hücre içi mikroplardan biri olan Wolbachia'yı incelemede de yardımcı oluyorlar. Wolbachia, böcek türlerinin 2,3,4% 40-70'inde bulunan, maternal olarak yayıldığı ve üreme manipülasyonlarını indüklediği gram negatif zorunlu hücre içi bir bakteridir 5,6,7,8. Wolbachia ayrıca enfekte konakçılaraantiviral koruma sağlayabilir 9,10,11,12,13,14,15 üreme manipülasyonları ile birlikte sivrisineklerden insanlara arbovirüs bulaşmasını kontrol etmek için kullanılmaktadır 16,17. Çeşitli sistemlerde, Wolbachia'nın apoptozu18 kontrol ettiği, temel besinleri19 sağladığı ve gen ve protein ekspresyonunudeğiştirdiği gösterilmiştir 20,21,22,23,24,25.
Hücre hatları, basit biyolojileri, kolaylıkları ve büyük miktarlarda yayılma yetenekleri nedeniyle Wolbachia'yı incelemek için bir model olarak ortaya çıktı. Hücre hatlarının, Wolbachia'yı yeni konakçılar26 ile simbiyoza önceden adapte etmede ve Wolbachia'nın mutasyonlarıbiriktirmesine izin vermede yararlı olduğu kanıtlanmıştır 27,28. Filarial hastalıkların29 tedavisinde ve Wolbachia-konak çeviri etkileşiminin30 incelenmesinde yardımcı olabilecek anti-Wolbachia bileşiklerini taramak için kullanıldılar. Wolbachia simbiyozları 29,30,31 üzerine yapılan çalışmalarda hücre hatları vazgeçilmez olmasına rağmen, çoğu Wolbachia fenotipinin altında yatan mekanizmalar bilinmemektedir. Bu, hücre kültürü model sisteminin hala geliştirilebileceğini göstermektedir.
Wolbachia ile enfekte böcek hücre hatları, böcek embriyolarından ve larvalarından elde edilir. Aedes albopictus embriyolarından türetilen Aa23, daha sonra Wolbachia simbiyozu 33,34,35 üzerine birçok çalışma için kullanılan ilk stabil Wolbachia enfekte hat 32 idi. JW18 hücre hattı, D. melanogaster 29,36'dan üretilen ilk doğal olarak Wolbachia ile enfekte olmuş hatlardan biriydi. Melekile enfekte olmuş sineklerin 1 saat ila 15 saat embriyolarından türetilen bu hat, diğer Drosophila hücre hatları için bir Wolbachia kaynağı olarak da hizmet etmiştir: 1182-4H ve S2R + 37. Embriyolar yüksek oranda pluripotent hücrelere sahip olduklarından, plastikte büyümeye adapte olarak, bazen bireysel hücre soyları için farklı olan yeni özellikler kazanabilirler. Bu, bu hücrelerde herhangi bir zamanda ve nesiller boyunca gözlenen hücre morfolojilerinin ve Wolbachia enfeksiyon sıklıklarının heterojenliğini açıklayabilir29.
Aag2 gibi sivrisinek hücre hatları üzerinde yapılan çalışmalar, monoklonal ve ebeveyn hücre hatlarının hücre özelliklerindeki farklılıklar nedeniyle tedavilere farklı yanıt verebileceğini gösterdiğinden, JW18 kültüründeki hücresel çeşitlilik endişeleri artırmaktadır38. Sonuç olarak, karışık bir hücre popülasyonuna tedavilerin uygulanması yanıltıcı sonuçlar verebilir. Homojen bir hücre popülasyonunun bir tedaviye tepkisini incelemek için (tek tek hücre tipleri için seçim değil), ebeveyn JW18 hücre hattından monoklonal kültürler oluşturduk. Bu hücrelerden monoklonal kültürler oluşturmak için daha önce herhangi bir girişimde bulunulmamıştır. Protokol, tek hücrelerin ebeveyn JW18 hücre hattından izole edilmesini, ardından bunların bakımını ve sürekli klonal kültürler oluşturmak için şişelere aktarılmasını içerir. Tek tek hatların Wolbachia enfeksiyon durumunu kontrol ettik ve bu temel özellikte farklı olduklarını gösterdik. Homojen hücre kültürleri, gelecekteki deneylerin doğruluğunu ve tekrarlanabilirliğini sağlamada kritik öneme sahiptir.
Protokol
NOT: Canlı hücreler ve ortamlarıyla yapılan tüm çalışmalar, kontaminasyonu önlemek için biyolojik bir güvenlik kabininde gerçekleştirilmelidir.
1. Medya hazırlığı
- Shield ve Sang Insect besiyerini %10 fetal sığır serumu (FBS) ile destekleyerek taze Kültür Ortamı hazırlayın.
- Harcanmış ve şartlandırılmış medya
- JW18 hücrelerini, 25 ° C'de% 10 FBS ile desteklenmiş taze Kalkan ve Sang Böcek ortamı içeren 25 cm'lik 2 bir şişede büyütün. Hücreler birleşene kadar (~ 1 hafta) kuluçkaya yatırın.
- Hücreleri büyütmek, Wolbachia, hücre kalıntıları ve diğer kirleticileri gidermek için kullanılan 1 haftalık kullanılmış hücre kültürü ortamını filtreleyin: 5 μm'lik bir steril filtre ve ardından 50 mL'lik bir şırıngaya takılan 0.2 μm'lik bir steril filtre kullanın.
- Taze ortamı, harcanan ortamın %20'si ile takviye ederek şartlandırılmış ortam hazırlayın. 96 oyuklu bir plaka (~ 30 mL) için yeterli şartlandırılmış ortam hazırlayın; serolojik pipet kullanarak, filtrelenmiş kullanılmış ortamın 6 mL'sini 24 mL taze Kalkan ve %10 FBS ile desteklenmiş Sang Böcek ortamı ile karıştırın.
2. 96 oyuklu plakanın hazırlanması
- JW18 hücre süspansiyonunun hazırlanması
- Bir hücre kazıyıcı kullanarak hücreleri birleşik, 1 haftalık bir şişeden kazıyın ve serolojik bir pipet kullanarak yeniden süspanse edin.
- Hücreleri bir Neubauer odası kullanarak sayın ve 2 x 10³ hücre / mL'lik bir nihai konsantrasyon elde etmek için şartlandırılmış ortamla seyreltin.
- Plakaya şartlandırılmış ortam eklenmesi
- Hazırlanan şartlandırılmış ortamı bir reaktif rezervuarına aktarın.
- Çok kanallı bir pipet kullanarak, A1 kuyusu hariç, 96 oyuklu plakanın her bir oyuğuna 100 μL şartlandırılmış ortam ekleyin.
- Hücre süspansiyonunun seri seyreltilmesi
- A1 kuyusuna 200 μL hücre süspansiyonu ekleyin.
- Tek kanallı bir pipet kullanarak, 100 μL'yi A1 kuyusundan B1 kuyusuna aktarın ve Şekil 1A'daki gibi nazikçe karıştırın (kabarcıkları önleyin).
- Son kuyucuktan son 100 μL'yi atarak seri seyreltmeyi sütun 1'de tekrarlayın.
- Plaka boyunca seyreltme
- İlk kolondaki her bir oyuğa toplam 200 μL hacme kadar 100 μL şartlandırılmış ortam ekleyin. Yavaşça karıştırın.
- Çok kanallı pipeti kullanarak, ilk sütundan ikinciye 100 μL aktarın. Yavaşça karıştırın.
- Plaka boyunca tüm sütunlar (1-12) için bu işlemi tekrarlayın (Şekil 1A).
- Yeniden süspansiyondan sonra, son sütundan 100 μL atın. Bu noktada, her kuyucuk 100 μL hücre süspansiyonu içerir.
- Tüm oyuklara 100 μL daha kültür ortamı ekleyin ve her bir oyuktaki son hacmi 200 μL'ye getirin.
3. Tek hücrelerin tanımlanması
- Plakayı örtün, Parafilm ile kapatın ve uygun şekilde etiketleyin.
- Plakayı mikroskop altında gözlemleyin, her bir kuyucuğu tek hücreler için dikkatlice kontrol edin (Şekil 1B). Yalnızca bir hücrenin varlığını doğrulamak için kuyuları ve kenarları iyice taradığınızdan emin olun.
NOT: Bu, protokoldeki en kritik adımlardan biridir. - Tek hücrelerin kuyu sayısını 96 oyuklu bir plaka haritasına (kağıda) kaydedin.
NOT: Tek hücrelerin, plakanın sağına ve altına doğru kuyucuklarda bulunma olasılığı daha yüksektir. - Tek hücreler tanımlandıktan ve işaretlendikten sonra, plakayı 25 ° C'de bir inkübatörde saklayın. Hücreleri her 2 günde bir izleyin.
4. Hücrelerin bakımı ve transferi
- Hücre izleme
NOT: JW18 hücrelerinin tek bir hücreden bölünmeye başlaması tipik olarak 3 gün sürer ve klonal popülasyonlar farklı oranlarda büyüyebilir (Şekil 2).- Bakteriyel kontaminasyon açısından ve ortamın kurumadığından emin olmak için kuyuları her 2-3 günde bir izleyin. Kuyular kuruyor gibi görünüyorsa, gerektiği gibi taze ortamla doldurun.
- Hücre genişlemesi
- Hücreler 96 oyuklu plakada birleştiğinde, bunları 24 oyuklu bir plakaya aktarın (Şekil 1D).
- Daha sonra, hücreleri 6 oyuklu bir plakaya ve son olarak bir şişeye aktarın (Şekil 1E, F).
NOT: Bu kademeli genişleme, sürekli bir klonal hücre hattı oluşturma olasılığını artırır.
- Hücre dondurma
- Bir klonal kültür oluşturulduktan sonra, ileride kullanmak üzere hücrelerin bir kısmını dondurun.
- Bir hücre sıyırıcı kullanarak hücreleri şişeden kazıyın ve bunları 15 mL'lik bir santrifüj tüpüne aktarın. 250 x g'da 4 °C'de 5 dakika santrifüjleyin.
- 2x dondurma ortamı hazırlayın (%20 FBS ve %10 DMSO ile desteklenmiş Kalkan ve Sang Böcek Ortamı).
- Santrifüjlemeden sonra, süpernatantın bir kısmını atın ve istenen nihai hacmin yarısını bırakın. Kalan süpernatanıma eşit hacimde 2x dondurma ortamı ekleyin ve peleti bir pipet kullanarak nazikçe yeniden süspanse edin.
- Her 1.5 mL kriyoviyal içine 1 mL süspansiyonu alın ve şişeleri buzun üzerine yerleştirin. Şişeleri gece boyunca -80 °C'de saklayın, ardından uzun süreli saklama için ertesi gün sıvı nitrojen tankına aktarın.
- Bir klonal kültür oluşturulduktan sonra, ileride kullanmak üzere hücrelerin bir kısmını dondurun.
5. Wolbachia durumunu doğrulamak için PCR
- Fenol-kloroform yöntemini kullanarak monoklonal kültür örneklerinden DNA'yı çıkarın39.
- 1.5 mL'lik bir mikrosantrifüj tüpüne 1 mL birleşik kazınmış ve yeniden süspanse edilmiş hücreleri ortama yerleştirin ve hücreleri 4 ° C'de 5 dakika boyunca 290 x g'da santrifüjleyin. Süpernatanı (hücre kültürü ortamı) atın ve tüpü buzun üzerine yerleştirin.
- 0.1 M Tris HCl (pH 9.0), 0.1 M EDTA ve% 1 SDS'den oluşan 250 μL Çözelti A ekleyin. Hücreleri yeniden süspanse edin ve bir ısıtma bloğunda 30 dakika boyunca 70 ° C'de inkübe edin.
- İnkübasyondan sonra, 35 μL 8 M potasyum asetat ekleyin, tüpü hafifçe sallayın (girdaptan kaçının) ve 30 dakika daha buz üzerinde inkübe edin.
- 13.000 rpm'de 4 ° C'de 15 dakika döndürün, süpernatanı yeni bir tüpe aktarın ve eşit hacimde fenol-kloroform ekleyin. İyice çalkalayın ve tekrar döndürün, bu adımı bir kez tekrarlayın.
- Süpernatanı yeni bir tüpe aktarın, ardından 150 μL izopropanol ekleyin, çalkalayın ve 5 dakika boyunca 10.000 rpm'de döndürün. Süpernatanı dikkatlice çıkarın, peleti 1 mL %70 etanol ile yıkayın ve 13.000 rpm'de döndürün.
- Peletleri oda sıcaklığında 10 dakika kuruttuktan sonra, 100 μL TE tamponunda tekrar süspanse edin. DNA'yı ölçün ve -20 °C'de saklayın.
- DreamTaq Green PCR ana karışımı kullanarak Wolbachia'yı tespit etmek için monoklonal kültür örneklerinden ekstrakte edilen DNA ile geleneksel bir PCR gerçekleştirin. Wolbachia ve Drosophila için wsp 81F ve wsp 691R primerleri40, DNA kalite kontrolü için rpl32 primerleri41 kullanın.
- 7.5 μL ana karışım, 10 μM'de her bir primerden 0.5 μL, 1:50 seyreltilmiş 1 μL DNA ve 15 μL reaksiyon karışımı elde etmek için 5.5 μL moleküler dereceli su ekleyin.
- Aşağıdaki PCR programını kullanın: 94 dakika boyunca 4 °C, 30 döngü x (94 saniye için 40 °C, 55 saniye boyunca 40 °C, 72 saniye boyunca 30 °C), 72 dakika boyunca 10 °C. PCR sonrası, numuneleri 4 °C'de saklayın.
- Bantları görselleştirmek için elde edilen PCR ürünleri ile 90 V'ta TAE tamponunda %2'lik bir agaroz jel içinde Agaroz jel elektroforezi gerçekleştirin. wsp (632 bp) ve rpl32 (194 bp) bantlarını tanımlamak için yanına bir DNA merdiveni ekleyin.
6. Hücre dizilerinde Wolbachia enfeksiyonunu görselleştirmek için BALIK boyama
- Yapışık hücrelerin Wolbachia'yı Quasar 670 etiketli 16s rRNA FISH prob seti ile boyaması için Stellaris FISH protokolünde açıklandığı gibi floresan in situ hibridizasyon (FISH) gerçekleştirin. Nükleik asitleri Hoechst 33342 ile boyayın.
NOT: Bu prob seti, wMel 16S rDNA dizisine dayalı olarak tasarlanmıştır ve Schneider ve ark.42'de yayınlanan prob seti ile eşleşir (bkz. Ek Tablo S1).- Üreticinin talimatlarını (Fiksasyon tamponu, Hibridizasyon tamponu, Yıkama tamponu A ve B, sulandırılmış özel prob seti) üreticinin talimatlarını izleyerek hazırlayın43.
- 24 oyuklu kültür plakasında% 70 etanol ile sterilize edilmiş 18 mm yuvarlak kapak camında yapışkan hücreleri büyütün. Hücreler istenen birleşmeye ulaştığında, büyüme ortamını aspire edin ve 1 mL 1x PBS ile yıkayın. 1 mL fiksasyon tamponu ekleyin ve oda sıcaklığında 10 dakika inkübe edin. Hücreleri 1 mL 1x PBS ile iki kez yıkayın.
- Lameli hücrelerle birlikte 1 mL% 70 etanole batırarak geçirgen hale getirin ve gece boyunca 4 ° C'de inkübe edin; Numuneleri hibridizasyondan önce 1 haftaya kadar bu sıcaklıkta etanolde saklayın. Etanolü aspire edin ve 1 mL Yıkama Tamponu A ekleyin; Oda sıcaklığında 2-5 dakika inkübe edin.
- 150 mm'lik bir kültür kabına suya doymuş bir kağıt havlu ve bir Parafilm tabakası yerleştirerek nemlendirilmiş bir oda hazırlayın. 1 μL 12.5 μM prob stoğu içeren 100 μL hibridizasyon tamponunu Parafilm üzerine pipetleyin. Kapak camını nazikçe ters çevirin ve hücreleri aşağı bakacak şekilde hibridizasyon tamponunun üzerine yerleştirin. Hazneyi Parafilm ile örtün ve kapatın, ardından karanlıkta 37 ° C'de en az 4 saat (gerekirse 16 saate kadar) inkübe edin.
- Hibridizasyondan sonra, kapak cam hücrelerini 1 mL Yıkama Tamponu A içeren taze bir kuyucuğa dikkatlice aktarın ve 37 ° C'de 30 dakika inkübe edin. Tamponu aspire edin ve 700 μL Yıkama Tamponu A'ya 0,5 μL 20 mM Hoechst stoğu ekleyin; 37 °C'de karanlıkta 30 dakika inkübe edin.
- Hoechst çözeltisini çıkarın ve 1 mL Yıkama Tamponu B ekleyin; Oda sıcaklığında 2-5 dakika inkübe edin. Son olarak, bir mikroskop lamına küçük bir damla (10 μL) montaj ortamı yerleştirin ve kapak camı hücrelerini aşağı bakacak şekilde damlanın üzerine monte edin. Fazla montaj ortamını nazikçe fitilleyin ve kapak camının çevresini şeffaf oje ile kapatın.
- Slaytları 4 °C'de saklayın ve mümkün olan en kısa sürede görüntülemeye devam edin.
- ImageJ44 kullanarak görüntüleri işleyin. Kanalları bölün ve renk paletini gerektiği gibi değiştirin.
Sonuçlar
Tek hücreli süspansiyon ve kaplamanın hazırlandığı günden (0. gün) sürekli hücre hatlarının oluşturulmasına (45. veya 77. gün, Şekil 2) kadar ışık mikroskobu ile monoklonal kültürlerin kurulması sürecini görselleştirdik. Hücre bölünmesinin ilk belirtileri, kuyucuk başına zaten dört hücre varken 3. günde (kaplamadan 4 gün sonra, kaplama 0. günde yapıldığı için) gözlenmiştir (Şekil 2). 14. günde, klonlar ya tek tabaka (JW18-B9, C7 ve E5) ya da geçiş sırasında bozulan bir küre (JW18-G4) olarak büyüdü. 28. günde, hücre hatları arasındaki büyümedeki farklılıklar en belirgindi. JW18-C7 kültürü 45. günde birleşirken, kalan klonal kültürler sadece 77. günde kuruldu. Ayrıca, hücre morfolojilerindeki farklılıkları yakalamak için kuruluştan 30 sonra dört farklı kültürü görselleştirdik (Şekil 3).
Monoklonal kültürlerin Wolbachia enfeksiyon durumunu belirlemek için PCR (Şekil 4) ve FISH (Şekil 5) uygulandı. Bir klon hariç hepsinin (JW18-C7), Wolbachia enfeksiyonunun göstergesi olan wsp geni için bir bant ürettiğini gözlemledik. FISH, PCR sonuçlarını doğruladı: JW18-B9, JW18-E5 ve JW18-G4 klonları Wolbachia enfeksiyonunu korurken, klon JW18-C7'de Wolbachia yoktu. Genel olarak, karışık bir JW18 hücre popülasyonundan, üçü orijinal Wolbachia enfeksiyonunu koruyan dört klonal kültür oluşturabildik. Ham verilere Figshare: https://figshare.com/s/15fde47ca7338f31dda9 adresinden erişilebilir.
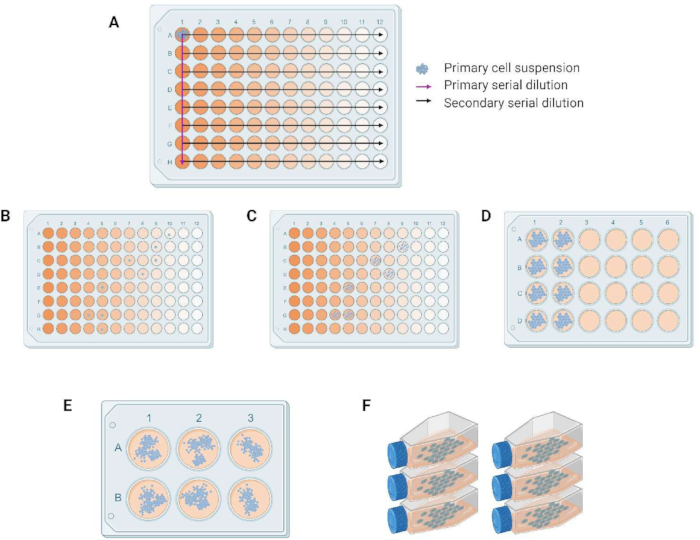
Şekil 1: Monoklonal kültür üretimi için iş akışı. (A) 96 oyuklu plakadaki birincil ve ikincil seyreltmeler. (B) Seri seyreltme sonrası tek hücreler. (C-E) Hücrelerin çoğalmasında ilerleme ve sırasıyla 96 oyuktan 24 ve 6 oyuklu plakaya transfer. (F) 25cm2 hücre kültürü şişelerinde sürekli kültürler. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
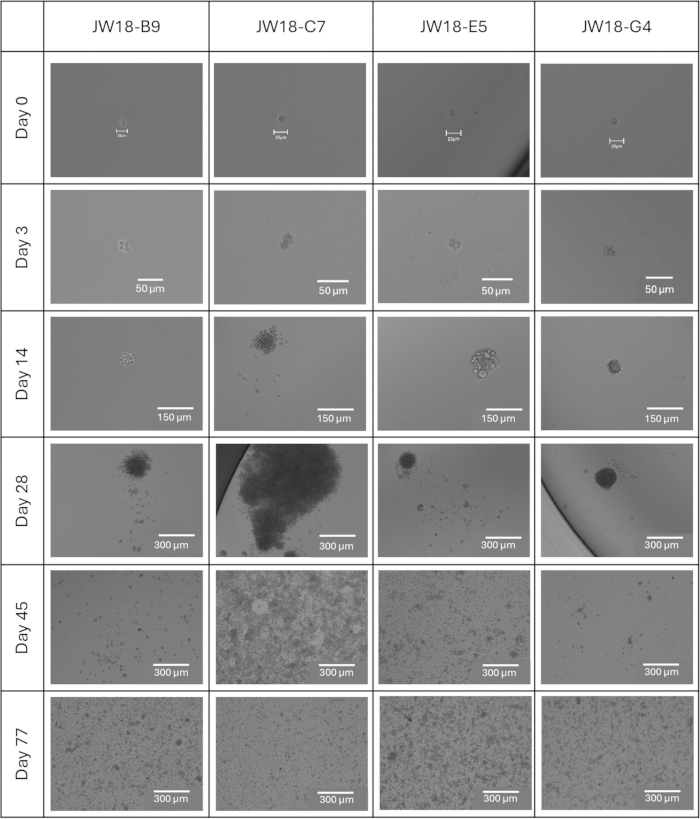
Şekil 2: JW18 klonal hatlarının tek hücreden çok hücreli kültüre ilerlemesi. 0. günden (kaplama günü) 77. güne kadar, tüm çizgilerin 25cm2'lik bir hücre kültürü şişesinde başarıyla oluşturulduğu klonal çizgilerin parlak alan görüntüleri. Ölçek çubukları = 25 μm (gün 0), 50 μm (gün 3), 150 μm (gün 14), 300 μm (gün 28, 45, 77). Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
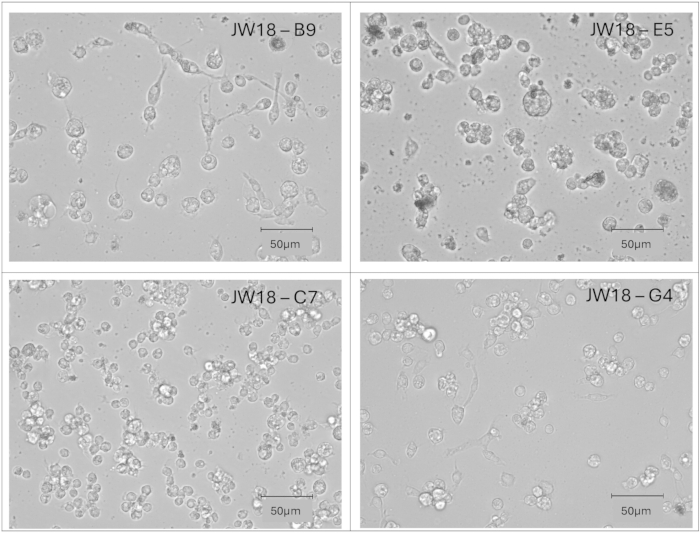
Şekil 3: Bireysel JW18 klonal çizgilerinin morfolojisi. Kuruluş sonrası 30. geçitte hücre morfolojilerini gösteren klonal çizgilerin parlak alan görüntüleri. Ölçek çubukları = 50 μm. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
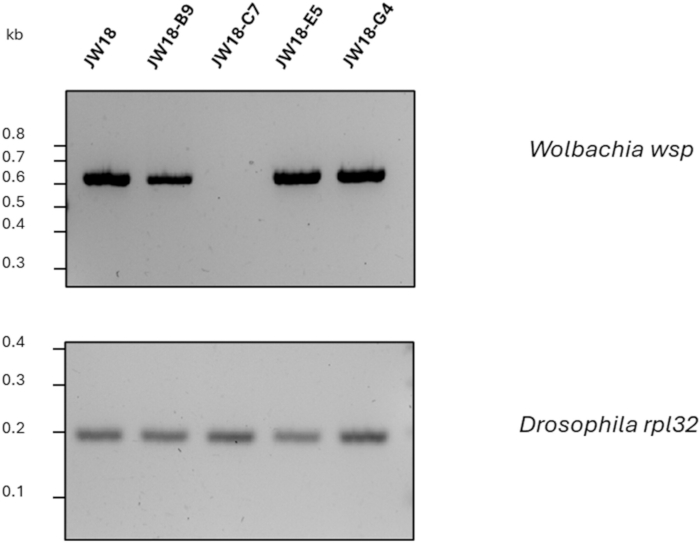
Şekil 4: PCR ile incelenen klonal kültürlerin Wolbachia durumu. JW18 ebeveyn hücre hattında Wolbachia için PCR ve klonal hatlar JW18-B9, JW18-C7, JW18-E5 ve JW18-G4'te kuruluş sonrası geçiş 11. Wolbachiawsp bandı Wolbachia'nın varlığını doğrularken, Drosophilarpl32 bandı bir DNA kalite kontrol PCR'sidir. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
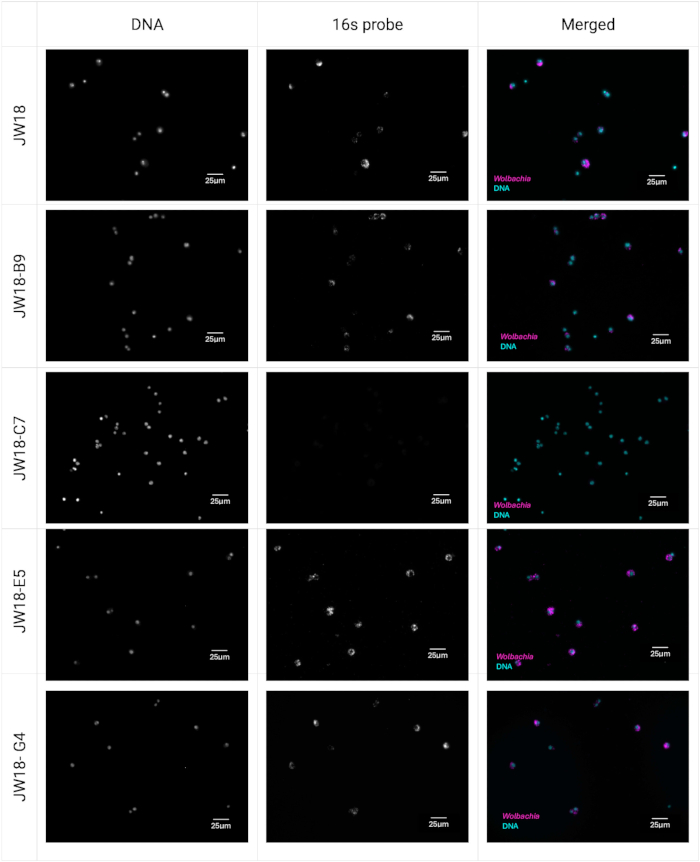
Şekil 5: FISH ile incelenen klonal kültürlerin Wolbachia durumu.JW18 ebeveyn hücre hattı ve klonları JW18-B9, JW18-C7, JW18-E5, JW18-G4, kuruluş sonrası 13. geçişte FISH boyama ile görselleştirildi. Wolbachia, macenta içinde ayarlanmış Quasar 670 etiketli 16s rRNA Stellaris FISH probu ile boyanır ve nükleik asitler camgöbeği içinde Hoechst 33342 ile boyanır. Ölçek çubukları = 25 μm. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
Ek Tablo S1: Wolbachia w Mel 16S rDNA'ya karşı tasarlanmış oligonükleotid probları ve bunların Schneider ve ark. tarafından yayınlanan problarla karşılaştırılması.42. Bu tabloyu indirmek için lütfen buraya tıklayın.
Tartışma
Burada, diğer Drosophila ve böcek hücre hatlarına uygulanabilen JW18 D. melanogaster hücre hattından tek hücreli klonlar üretmek için standart bir yöntemin ana hatlarını çiziyoruz. Protokol, tek tek hücreleri izole etmek için hazırlanmış bir hücre süspansiyonunun 96 oyuklu bir plaka boyunca seri seyreltilmesini içerir. Bu hücreler daha sonra sürekli kültürler oluşturmak için en uygun koşullar altında inkübe edilir. Protokol ayrıca hücre sağkalımını ve tek hücre bölünmesini teşvik etmek için %20 şartlandırılmış ortamın eklenmesini de içerir45,46.
Protokoldeki kritik bir adım, seri seyreltmeyi takiben her kuyucukta tek bir hücrenin varlığının doğrulanmasıdır. Bu adım, tüm protokolün başarısı için gerekli olduğu için titiz bir dikkat gerektirir. Tek hücreli kökenin gelecekteki onayını kolaylaştırmak için, seçilen kuyucukların görüntülerinin çeşitli açılardan yakalanması önerilir.
Diğer bir önemli adım, hücrelerin kültür kapları arasında aktarılmasını içerir. Sürekli bir kültürün başarılı bir şekilde kurulmasını sağlamak için, hücreler ancak birleşim noktasına ulaştıklarında transfer edilmelidir. Hücre büyümesi iki haftadan fazla durgunlaşırsa, ortamı yenilemek daha fazla büyümeyi teşvik edebilir. Birleşmeden önce hücrelerin erken transferi hücre ölümüne neden olabilir.
Bu protokol, Floresanla Aktive Edilen Hücre Sıralama (FACS)38,46 gibi yaygın olarak kullanılan diğer yöntemlerden daha fazla zaman alıcı ve emek yoğun olsa da, çeşitli avantajlar sunar. Bunlar arasında maliyet etkinliği, minimum hücre hasarı riski, floresan işaretleyicilere gerek olmaması, pahalı ekipman ve optimizasyon süresi yer alır. Genel olarak, bu protokol sürekli hücre hatlarından homojen böcek hücresi popülasyonları oluşturmak için çok uygundur.
Monoklonal kültürlerin özellikleri
Sonuçlarımız, monoklonal kültürlerin oluşum hızları ve Wolbachia enfeksiyon durumları açısından farklılık gösterdiğini göstermektedir (Şekil 2, Şekil 4 ve Şekil 5). Wolbachia içermeyen klon JW18-C7, tek hücreli izolasyon protokolümüzde birleşmeye en hızlı ulaşan klondu. Wolbachia ya bu hücre soyundan her zaman yoksun olabilirdi ya da konakçı hücrenin bölünme hızına ayak uyduramama nedeniyle kaybolmuş olabilirdi. Klonlama protokolümüzdeki başlangıçtaki düşük hücre yoğunluğu nedeniyle de kaybolmuş olabilir. Bununla birlikte, diğer klonal hücre dizileri için bu gerçekleşmediğinden, bunun olası olmadığını düşünüyoruz. JW18-C7'nin Wolbachia ile deneysel enfeksiyonu (diğer tetrasiklin ile tedavi edilmiş klonların yanı sıra), bu hattın simbiyont için izin verilip verilmediğini cevaplayabilir.
Hücresel heterojenlik, JW18 hücre hattına özgü değildir ve daha önce diğer Wolbachia ile enfekte hücre hatları 32,47,48,49,50,51,52 için bildirilmiştir. İyileştirilmesi için önceki bir girişim, Wolbachia'nın D. simulans yumurtalarından veya Aa23 hücrelerinden bir C7-10 A. albopictus hücre hattı53'e transferini içeriyordu. C7-10, Wolbachia transferlerinden 54,55 yıllar önce klonlanmıştır ve transferler, incelemeyi düşündüğümüz doğal enfeksiyonu oluşturmaz.
Bireysel JW18 klonları için Wolbachia enfeksiyon durumu ve monoklonal kültür kuruluş zamanındaki fark (hücre bölünme hızındaki farklılıkların göstergesi), spesifik tedavilere yanıt olarak Wolbachia titresi ve böcek hücresi büyüme hızını birbirine bağlayan önceki çalışmalar için derin etkilere sahip olabilir. Değişen hücre sayıları, simbiyont yoğunlukları veya tedavi sırasında gen ekspresyonundaki değişiklikler, karışık bir popülasyondaki tüm hücrelerin durumundaki değişikliklerden ziyade belirli özelliklere sahip hücre tiplerinin seçiminden kaynaklanabilir. Temel özelliklerde değişkenliğe sahip karışık bir hücre popülasyonuna tedavilerin uygulanması, bu nedenle önyargılı, tekrarlanamayan sonuçlar verebilir.
Açıklamalar
Yazarların açıklanacak herhangi bir çıkar çatışması yoktur.
Teşekkürler
William Sullivan'a (Kaliforniya Üniversitesi, Santa Cruz, ABD), Laura Serbus'a (Florida Uluslararası Üniversitesi, ABD) ve Luis Teixeira'ya (Universidade Católica Portuguesa, Lizbon, Portekiz) JW18 hücre hattı ve onunla nasıl çalışılacağına dair faydalı öneriler için teşekkür ederiz. Protokolle ilgili faydalı önerileri için Nidhi Krishna Shrivastava'ya (Jagiellonian Üniversitesi, Krakov, Polonya) minnettarız. Yuliya Chykunova'ya (Jagiellonian Üniversitesi, Krakov, Polonya) el yazmasını düzelttiği için teşekkür ederiz.
Şekil 1 , BioRender ile oluşturulmuştur (Chrostek, E. (2024) https://BioRender.com/o69b306).
Bu çalışma, EC'ye verilen ERC Başlangıç Bursu (Hibe sözleşmesi ID: 101040311) ve NF'ye verilen Kesin ve Doğa Bilimleri Doktora Okulu'ndan (Jagiellonian Üniversitesi) doktora bursu ile desteklenmektedir. Bununla birlikte, ifade edilen görüş ve düşünceler yalnızca yazarlara aittir ve Avrupa Birliği veya Avrupa Araştırma Konseyi Yürütme Ajansı'nın görüşlerini yansıtmayabilir. Bunlardan ne Avrupa Birliği ne de izin veren makam sorumlu tutulamaz.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 0.22 &mikro; m şırınga fliter | TPP'nin | 99722 | Steril |
| 10x Fosfat Tamponlu Salin (PBS) | ThermoFisher Bilimsel | 70011044 | Steril |
| 12 veya 18 mm yuvarlak kapak camı | Herhangi bir marka | ||
| 15 mL Falcon tüpleri | Genoplast | 601052 | Steril |
| 24 oyuklu plaka | SitoBir | CC7682-7524 | Doku kültürü tedavi edildi |
| 5 &mikro; m şırınga filtresi | Ne adam | 10462000 | Steril |
| 6 oyuklu plaka | SitoBir | CC7682-7506 Serisi | Doku kültürü tedavi edildi |
| 96 oyuklu plaka | SitoBir | CC7682-7596 Serisi | Doku kültürü tedavi edildi |
| Agaroz | ThermoFisher Bilimsel | J66501.30 | |
| Hücre kültürü şişesi, 25 cm2 | Greiner Biyo-on | 391-3103 | Steril |
| Hücre kazıyıcılar | Greiner Biyo-on | 391-3010 | Steril |
| Şeffaf oje | Herhangi bir marka | ||
| CryoPure şişeleri | Sarstedt | 72.379 | Steril |
| DMSO, hücre kültürü derecesi | Merck | D2650-100ML | Steril |
| DreamTaq PCR Ana Karışımı | ThermoFisher Bilimsel | K1081 Serisi | |
| EDTA | Merck | 324503-100GM | Steril |
| Elektroforez Güç Kaynağı | Merck | PS 251-2 | |
| Eppendorf Yoğunlaştırıcı Artı | Merck | EP5305000509 | Herhangi bir markanın vakum yoğunlaştırıcısı yerine kullanılabilir. |
| Etanol | Merck | 1009861000 | |
| EVOS M5000 Görüntüleme Sistemi | ThermoFisher Bilimsel | AMF5000 | Klon ilerlemesini izlemek için herhangi bir markanın ters çevrilmiş mikroskobu kullanılabilir. BALIKLARI görselleştirmek için floresan mikroskop gereklidir. |
| Fetal Sığır Serumu | Merck | F9665 Serisi | Isı ile inaktive edilmiş |
| Formaldehit | ThermoFisher Bilimsel | 047377.9L | |
| Formamid | Merck | F7503-100ML | |
| Jel elektroforez tankları | Balta Bilimsel | MSMIDI | |
| Jel Görüntüleyici | BioRad | 12009077 | GelDoc Go Jel Görüntüleme Sistemi |
| GeneRuler 100 bp DNA Merdiveni | ThermoFisher Bilimsel | SM0243 Serisi | |
| Isıtma Bloğu | ThermoFisher Bilimsel | 88870005 | |
| Herasafe 2025 Sınıf II Biyolojik Güvenlik Kabini | ThermoFisher Bilimsel | 51033314 | Herhangi bir markanın biyolojik güvenlik dolabı, içinde steril bir ortam sağladığı sürece kullanılabilir. |
| Hoechst 33342 Çözelti (20 mM) 5 mL | ThermoFisher Bilimsel | 62249 | Karanlıkta saklayın. |
| Hidroklorik asit | Merck | 258148-2.5L | |
| Integra Biosciences Corp PIPETBOY acu 2 Pipet Yardımı | Fisher Bilimsel | NC0085686 | Herhangi bir markanın serolojik pipet kontrol cihazı kullanılabilir. |
| İzopropanol | Merck | I9516-1L | |
| Laboratuvar dondurucu | Liebherr | LGUex 1500 MediLine | Sabit sıcaklığı koruyabilen herhangi bir dondurucu uygundur. |
| Sıvı nitrojen tankı | ThermoFisher Bilimsel | CY50985 | |
| Mikroskop slaytları | Merck | CLS294875X25-72EA | |
| Moleküler dereceli su | |||
| Çok kanallı pipet | Eppendorf Belediyesi | 3125000036 | |
| Nano damla | Peqlab | ND-1000 Serisi | |
| Neubauer Hemositometre | Merck | BR717810-1EA | |
| Parafilm M Sızdırmazlık Filmi | Merck | HS234526B-1EA | |
| Peltier soğutmalı inkübatör | Memmert | IPP55 artı | Sabit 25'i koruyabilen herhangi bir kuluçka makinesi var mı? C uygundur. JW18 hücre hattı veya klonları için CO2 kontrolü gerekmez. |
| Fenol/Kloroform/İzoamil alkol (25:24:1) | ThermoFisher Bilimsel | 327115000 | |
| Pipet seti | Eppendorf Belediyesi | EP2231300008 | |
| Potasyum asetat | Merck | P1190-500G | Steril |
| Kuasar 670-etiketli 16s rRNA FISH prob ayarlamak | Biyoarama Teknolojileri | Özel yapım, probların sıraları Tablo 1'de bulunabilir. | |
| Soğutmalı MikroSantrifüj | Laboratuvar ağı | C2500-R Serisi | |
| rpl32 primer ileri 5'-CCGCTTCAAGGGACAGTATC-3' | Eurofins genomiği | Makalede belirtilen referansa dayalı olarak özel olarak üretilmiştir | |
| rpl32 primer ters 5'-CAATCTCCTTGCGCTTCTTG-3' | Eurofins genomiği | Makalede belirtilen referansa dayalı olarak özel olarak üretilmiştir | |
| SDS | ThermoFisher Bilimsel | AM9823 Serisi | Steril |
| Serolojik pipetler | Corning | 357771 | |
| Shields ve Sang M3 Böcek Orta | Merck | S8398 Serisi | Steril |
| Stellaris RNA FISH Hibridizasyon Tamponu | Biyoarama Teknolojileri | SMF-HB1-10 Serisi | Steril |
| Stellaris RNA BALIK Yıkama Tamponu A | Biyoarama Teknolojileri | SMF-WA1-60 Serisi | Steril |
| Stellaris RNA FISH Yıkama Tamponu B | Biyoarama Teknolojileri | SMF-WB1-20 | Steril |
| Steril Reaktif Rezervuarları | ThermoFisher Bilimsel | 8094 | Steril |
| TAE tamponu | Merck | 1061741000 | 1x |
| TE tampon | Merck | 93283 | Steril |
| Termal döngüleyici | Syngen Biyoteknoloji | Termoblok 96 | Herhangi bir markanın termal döngüleyicisi yerine kullanılabilir. |
| Tris tabanı | Merck | 10708976001 | Steril |
| Ultra düşük sıcaklıklı dondurucu | PHC şirketi | MDF-DU502VH-PE | -80 ? C kullanılabilir. |
| Vectashield Montaj Orta | Vektör Laboratuvarları | H-1000-10 | |
| wsp primer ileri 5'-TGGTCCAATAAGTGATGAAGAAAC-3' | Eurofins genomiği | Makalede belirtilen referansa dayalı olarak özel olarak üretilmiştir | |
| wsp primer ters 5'-AAAAATTAAACGCTACTCCA-3' | Eurofins genomiği | Makalede belirtilen referansa dayalı olarak özel olarak üretilmiştir |
Kaynaklar
- Luhur, A., Klueg, K. M., Zelhof, A. C. Generating and working with Drosophila cell cultures: current challenges and opportunities. Wiley Interdiscip Rev Dev Biol. 8 (3), e339(2019).
- Hilgenboecker, K., Hammerstein, P., Schlattmann, P., Telschow, A., Werren, J. H. How many species are infected with Wolbachia? A statistical analysis of current data. FEMS Microbiol Lett. 281 (2), 215-220 (2008).
- Zug, R., Hammerstein, P. Still a host of hosts for Wolbachia: analysis of recent data suggests that 40% of terrestrial arthropod species are infected. PLoS One. 7 (6), e38544(2012).
- Weinert, L. A., Araujo-Jnr, E. V., Ahmed, M. Z., Welch, J. J. The incidence of bacterial endosymbionts in terrestrial arthropods. Proc R Soc B. 282 (1807), 20150249(2015).
- Hoffmann, A. A., Turelli, M. Unidirectional incompatibility in Drosophila simulans: inheritance, geographic variation and fitness effects. Genetics. 119 (2), 435-444 (1988).
- O'Neill, S. L., Giordano, R., Colbert, A. M., Karr, T. L., Robertson, H. M. 16S rRNA phylogenetic analysis of the bacterial endosymbionts associated with cytoplasmic incompatibility in insects. Proc Natl Acad Sci U S A. 89 (7), 2699-2702 (1992).
- Stouthamer, R., Breeuwer, J. A. J., Luck, R. F., Werren, J. H. Molecular identification of microorganisms associated with parthenogenesis. Nature. 361 (6407), 66-68 (1993).
- Rousset, F., Bouchon, D., Pintureau, B., Juchault, P., Solignac, M. Wolbachia endosymbionts responsible for various alterations of sexuality in arthropods. Proc R Soc Lond B Biol Sci. 250 (1328), 91-98 (1992).
- Hedges, L. M., Brownlie, J. C., O'Neill, S. L., Johnson, K. N. Wolbachia and virus protection in insects. Science. 322 (5902), 702(2008).
- Teixeira, L., Ferreira, Á, Ashburner, M. The bacterial symbiont Wolbachia induces resistance to RNA viral infections in Drosophila melanogaster. PLoS Biol. 6 (12), e1000002(2008).
- Glaser, R. L., Meola, M. A. The native Wolbachia endosymbionts of Drosophila melanogaster and Culex quinquefasciatus increase host resistance to West Nile virus infection. PLoS One. 5 (8), e11977(2010).
- van den Hurk, A. F., et al. Impact of Wolbachia on infection with chikungunya and yellow fever viruses in the mosquito vector Aedes aegypti. PLoS Negl Trop Dis. 6 (11), e1892(2012).
- Aliota, M. T., et al. The wMel strain of Wolbachia reduces transmission of chikungunya virus in Aedes aegypti. PLoS Negl Trop Dis. 10 (4), e0004677(2016).
- Kean, J., et al. Fighting arbovirus transmission: natural and engineered control of vector competence in Aedes mosquitoes. Insects. 6 (1), 236-278 (2015).
- Joubert, D. A., et al. Establishment of a Wolbachia superinfection in Aedes aegypti mosquitoes as a potential approach for future resistance management. PLoS Pathog. 12 (2), e1005434(2016).
- Ross, P. A. Designing effective Wolbachia release programs for mosquito and arbovirus control. Acta Trop. 222, 106045(2021).
- Flores, H. A., O'Neill, S. L. Controlling vector-borne diseases by releasing modified mosquitoes. Nat Rev Microbiol. 16 (8), 508-518 (2018).
- Pannebakker, B. A., Loppin, B., Elemans, C. P. H., Humblot, L., Vavre, F. Parasitic inhibition of cell death facilitates symbiosis. Proc Natl Acad Sci U S A. 104 (1), 213-215 (2007).
- Hosokawa, T., Koga, R., Kikuchi, Y., Meng, X. -Y., Fukatsu, T. Wolbachia as a bacteriocyte-associated nutritional mutualist. Proc Natl Acad Sci U S A. 107 (2), 769-774 (2010).
- Zheng, Y., et al. Differentially expressed profiles in the larval testes of Wolbachia-infected and uninfected Drosophila. BMC Genomics. 12 (1), 595(2011).
- Xi, Z., Gavotte, L., Xie, Y., Dobson, S. L. Genome-wide analysis of the interaction between the endosymbiotic bacterium Wolbachia and its Drosophila host. BMC Genomics. 9 (1), 1(2008).
- Lindsey, A. R. I., Bhattacharya, T., Hardy, R. W., Newton, I. L. G. Wolbachia and virus alter the host transcriptome at the interface of nucleotide metabolism pathways. mBio. 12 (1), e03472-e03520 (2021).
- Detcharoen, M., Schilling, M. P., Arthofer, W., Schlick-Steiner, B. C., Steiner, F. M. Differential gene expression in Drosophila melanogaster and D. nigrosparsa infected with the same Wolbachia strain. Sci Rep. 11 (1), 11336(2021).
- Gruntenko, N. E., et al. Drosophila melanogaster transcriptome response to different Wolbachia strains. Int J Mol Sci. 24 (24), 17411(2023).
- Frantz, S. I., Small, C. M., Cresko, W. A., Singh, N. D. Ovarian transcriptional response to Wolbachia infection in D. melanogaster in the context of between-genotype variation in gene expression. G3 (Bethesda). 13 (5), jkad047(2023).
- McMeniman, C. J., et al. Host adaptation of a Wolbachia strain after long-term serial passage in mosquito cell lines. Appl Environ Microbiol. 74 (22), 6963-6969 (2008).
- Woolfit, M., et al. Genomic evolution of the pathogenic Wolbachia strain, wMelPop. Genome Biol Evol. 5 (11), 2189-2204 (2013).
- Martinez, J., Sinkins, S. P. Rapid evolution of Wolbachia genomes in mosquito cell culture. bioRxiv. , (2023).
- Serbus, L. R., et al. A cell-based screen reveals that the albendazole metabolite, albendazole sulfone, targets Wolbachia. PLoS Pathog. 8 (9), e1002922(2012).
- Grobler, Y., et al. Whole genome screen reveals a novel relationship between Wolbachia levels and Drosophila host translation. PLoS Pathog. 14 (11), e1007445(2018).
- Rainey, S. M., et al. Wolbachia blocks viral genome replication early in infection without a transcriptional response by the endosymbiont or host small RNA pathways. PLoS Pathog. 12 (4), e1005536(2016).
- O'Neill, S. L., et al. In vitro cultivation of Wolbachia pipientis in an Aedes albopictus cell line. Insect Mol Biol. 6 (1), 33-39 (1997).
- Fenollar, F., Maurin, M., Raoult, D. Wolbachia pipientis growth kinetics and susceptibilities to 13 antibiotics determined by immunofluorescence staining and real-time PCR. Antimicrob Agents Chemother. 47 (5), 1665-1671 (2003).
- Fallon, A. M., Witthuhn, B. A. Proteasome activity in a naïve mosquito cell line infected with Wolbachia pipientis wAlbB. In Vitro Cell Dev Biol Anim. 45 (8), 460-466 (2009).
- Molloy, J. C., Sommer, U., Viant, M. R., Sinkins, S. P. Wolbachia modulates lipid metabolism in Aedes albopictus mosquito cells. Appl Environ Microbiol. 82 (10), 3109-3120 (2016).
- Andrianov, B. V., Goriacheva, I. I., Alexandrov, I. D., Gorelova, T. V. Establishment of a new continuous cell line of Drosophila melanogaster strain infected by the intracellular endosymbiotic bacterium Wolbachia pipientis under natural conditions. Russ J Genet. 46 (1), 9-12 (2010).
- Fattouh, N., Cazevieille, C., Landmann, F. Wolbachia endosymbionts subvert the endoplasmic reticulum to acquire host membranes without triggering ER stress. PLoS Negl Trop Dis. 13 (3), e0007218(2019).
- Fredericks, A. C., et al. Aedes aegypti (Aag2)-derived clonal mosquito cell lines reveal the effects of pre-existing persistent infection with the insect-specific bunyavirus Phasi Charoen-like virus on arbovirus replication. PLoS Negl Trop Dis. 13 (11), e0007346(2019).
- Kirby, K. S. A new method for the isolation of ribonucleic acids from mammalian tissues. Biochem J. 64 (3), 405-408 (1956).
- Zhou, W., Rousset, F., O'Neill, S. Phylogeny and PCR–based classification of Wolbachia strains using wsp gene sequences. Proc R Soc Lond B Biol Sci. 265 (1395), 509-515 (1998).
- Chrostek, E., et al. Wolbachia variants induce differential protection to viruses in Drosophila melanogaster: a phenotypic and phylogenomic analysis. PLoS Genet. 9 (12), e1003896(2013).
- Schneider, D. I., Parker, A. G., Abd-alla, A. M., Miller, W. J. High-sensitivity detection of cryptic Wolbachia in the African tsetse fly (Glossina spp). BMC Microbiol. 18 (S1), 140(2018).
- Stellaris RNAFISH protocol for adherent cells. , LGC Biosearch Technologies. https://biosearchassets.biosearchtech.com/assetsv6/bti_stellaris_protocol_adherent_cell.pdf (2021).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9 (7), 671-675 (2012).
- Freshney, I. Cloning and selection. Culture of Animal Cells: a Manual of Basic Technique. , 207(2010).
- Housden, B. E., et al. Identification of potential drug targets for tuberous sclerosis complex by synthetic screens combining CRISPR-based knockouts with RNAi. Sci Signal. 8 (393), (2015).
- Fenollar, F., et al. Culture and phenotypic characterization of a Wolbachia pipientis isolate. J Clin Microbiol. 41 (12), 5434-5441 (2003).
- Dobson, S. L., Marsland, E. J., Veneti, Z., Bourtzis, K., O'Neill, S. L. Characterization of Wolbachia host cell range via the in vitro establishment of infections. Appl Environ Microbiol. 68 (2), 656-660 (2002).
- Frentiu, F. D., Robinson, J., Young, P. R., McGraw, E. A., O'Neill, S. L. Wolbachia-mediated resistance to dengue virus infection and death at the cellular level. PLoS One. 5 (10), e13398(2010).
- Voronin, D. A., Bochernikov, A. M., Baricheva, E. M., Zakharov, I. K., Kiseleva, E. V. Influence of Drosophila melanogaster genotype on biological effects of endosymbiont Wolbachia (stamm wMelPop). Tsitologiia. 51 (4), 335-345 (2009).
- Venard, C. M. -P., Crain, P. R., Dobson, S. L. SYTO11 staining vs FISH staining: a comparison of two methods to stain Wolbachia pipientis in cell cultures. Lett Appl Microbiol. 52 (2), 168-176 (2011).
- Casper-Lindley, C., et al. Rapid fluorescence-based screening for Wolbachia endosymbionts in Drosophila germ line and somatic tissues. Appl Environ Microbiol. 77 (14), 4788-4794 (2011).
- Khoo, C. C. H., Venard, C. M. P., Fu, Y., Mercer, D. R., Dobson, S. L. Infection, growth and maintenance of Wolbachia pipientis in clonal and non-clonal Aedes albopictus cell cultures. Bull Entomol Res. 103 (3), 251-260 (2013).
- Singh, K. R. P. Cell cultures derived from larvae of Aedes albopictus (Skuse) and Aedes aegypti (L.). Curr Sci. 36 (19), 506-508 (1967).
- Nouri, N., Fallon, A. M. Pleiotropic changes in cycloheximide-resistant insect cell clones. In Vitro Cell Dev Biol. 23 (3), 175-180 (1987).
Yeniden basım ve izinler
